本方案描述了用于冷冻电子显微镜(cryo-EM)的Ni-NTA脂质单层亲和载网的实验台制备方法。这种透射电子显微镜(TEM)载网表面修饰可选择性捕获可溶性的多聚组氨酸标签蛋白复合物,从而通过富集稀释样品并将颗粒固定在远离气-水界面的位置,提高结构解析能力。
本文内容
摘要
摘要
冷冻样品制备仍是蛋白质复合物高分辨率结构解析的主要技术挑战。气液界面处的相互作用‑水界面可能导致蛋白质变性或优势取向,从而限制可达到的分辨率。此外,稀释样品或低丰度目标分子往往表现出不足的颗粒密度,阻碍高效的数据采集。基于脂质的亲和载网为解决这些局限性提供了一种有效策略。本文介绍了一种制备Ni-NTA脂质单层亲和载网的分步操作方案,用于可溶性多聚组氨酸标签蛋白复合物的结构分析。该方案的主要步骤包括:配制脂质混合物,将脂质混合物铺展至储液缓冲液表面,将形成的脂质单层转移至透射电镜载网上,可选择性地对脂质载网进行干燥并储存长达1周,以及使用样品进行冷冻浸渍。成功实施本方案可获得含有单层且分散良好颗粒的冷冻载网,其颗粒密度相较于未使用脂质单层制备的载网有所提高。在配备冷冻载网制备仪、化学通风橱及常规冷冻样品制备工具的实验室中,该流程可在数小时内完成。通过结合详细的书面说明与视频演示,本工作旨在提升Ni-NTA脂质单层亲和载网在冷冻电镜领域中的可及性、可重复性及广泛应用。
引言
用于蛋白质结构测定的实验技术,包括X射线晶体学、核磁共振(NMR)和低温电子显微镜(cryo-EM),均依赖于精细的样品制备。在单颗粒分析(SPA)cryo-EM中,样品质量通常是限制最终重构分辨率的主要因素。随着低温透射电子显微镜(cryo-TEM)和直接电子探测器在技术上的不断进步,数据采集效率和可达到的分辨率持续提高,高分辨率cryo-EM的主要挑战正日益从图像采集转向样品制备与样品质量1,2,3,4,5,6,7。
传统的冷冻电镜载网制备通常包括将几微升样品施加到透射电子显微镜(TEM)载网表面,用滤纸吸去多余液体,然后迅速浸入冷冻剂中,通常是液态乙烷或丙烷-乙烷混合物。理想情况下,制得的冷冻载网应包含薄层玻璃态冰,其中分散着均匀分布的颗粒。然而在实际操作中,达到这一理想状态往往较为困难,通常需要经过多轮优化才能获得适用于高分辨率结构解析的载网。常见问题包括蛋白质在气液界面(AWI)处发生变性8,9、颗粒取向偏好10以及冰层中颗粒密度偏低11,12。对于高度动态、寿命短暂或难以在微摩尔浓度下纯化的蛋白复合物而言,后一问题尤为突出。为应对这些局限性,已发展出多种策略,包括使用氧化石墨烯13、连续超薄碳膜14以及用于捕获生物素化靶标的链霉亲和素包被纳米微珠15。
另一种方法涉及使用设计用于选择性结合目标分子的亲和表面来修饰透射电镜载网。这些亲和载网可在载网表面富集颗粒,同时减少颗粒对气-水界面(AWI)的暴露,从而改善颗粒分布并保持其结构完整性。此外,这种富集效应可从稀释或异质样品中浓缩低丰度的大分子复合物。
在过去十年中,已开发出多种用于SPA冷冻电镜的亲和载网策略。这些方法可根据透射电子显微镜(TEM)载网表面的修饰方式及相应的功能化策略进行分类。常用的表面包括超薄非晶碳14、石墨烯或氧化石墨烯13,16、脂质单层膜或脂质纳米管17,18,以及在脂质单层膜上生长的二维链霉亲和素晶体19,20。在这些方法中,二维链霉亲和素亲和载网在实现高分辨率蛋白质结构解析方面尤为成功21,22,23,24,25,26,27,28,29。相关方法还包括使用单分散的单颗粒链霉亲和素结合脂质单层膜,该方法最近被用于解析迷你染色体维持复合物与双链DNA(dsDNA)结合状态的结构30。
尽管取得了这些进展,用于亲和力载网制备的可及且可重复的方法仍然有限。每种技术对选择性靶标结合都有独特的样品要求,且均未商业化,因此需要专门的制备方案和化学修饰。这些额外步骤可能会显著增加单颗粒冷冻电镜(cryo-EM)工作流程的技术复杂性。因此,本文提供了一个详细的逐步操作方案,旨在促进本文所述亲和力载网技术的制备。Ni-NTA 脂质单层亲和力载网方案此前已常规实施17,可轻松应用于可溶性多聚组氨酸标签蛋白复合物的冷冻电镜结构研究,其分子量范围广泛(97–470 kDa)(图1)。该方法适用于在不含去垢剂的缓冲液中浓度为 0.05 至 0.2 mg/mL 的蛋白质样品。
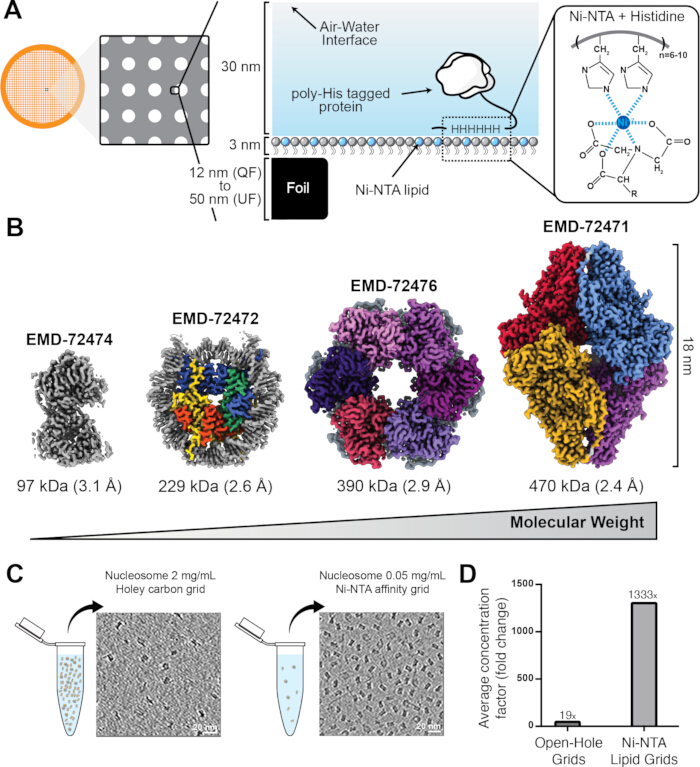
图1:Ni-NTA脂质亲和载网设计概览。(A)20% Ni-NTA脂质冷冻载网示意图。左侧显示冷冻载网整体结构,中间为脂质单层的横截面,展示碳膜、脂质单层、玻璃态冰及附着颗粒的尺寸;右侧描绘组氨酸侧链与Ni-NTA脂质之间的相互作用。(B)使用脂质亲和载网解析的聚组氨酸标记蛋白示例。各蛋白结构按相对比例绘制,并标注分子量、尺寸、分辨率及EMDB数据库编号。(C)采用非脂质冷冻载网(2 mg/mL,右侧)和Ni-NTA脂质亲和冷冻载网(0.05 mg/mL,左侧)制备的聚组氨酸标记核小体的代表性断层切片图像。(D)非脂质冷冻载网与Ni-NTA脂质亲和冷冻载网的平均浓缩倍数比较,显示脂质膜能够将聚组氨酸标记蛋白从气液界面(AWI)处富集浓缩。本图部分内容经Elsevier许可改编自Skrajna等17的图1A,B和图2A,B。请点击此处查看本图的放大版本。
方案
本研究未涉及人类受试者、临床数据或活体动物。所用试剂和设备列于材料表中。
注意:DOPC 指 18:1 (Δ9-cis) PC。Ni-NTA 脂质指 18:1 DGS-NTA(Ni)。低盐缓冲液指含 50 mM NaCl 的 10 mM HEPES(pH 7.4)。稀释缓冲液指含 150 mM NaCl 的 20 mM HEPES(pH 7.4)。
1. 可重复使用玻璃器皿的清洗(约30分钟)
- 准备两个小型培养皿、两个小型培养皿盖、一个带塞的 25 mL 容量瓶和一个带塞的 1 mL 容量瓶。将这些物品放置在水槽附近。
- 在 11.4 L 的塑料桶中,用温自来水溶解阴离子表面活性剂粉末。
- 将玻璃器皿轻轻浸入表面活性剂溶液中。
- 戴上腈类手套,使用器皿刷清洁所有可触及的玻璃器皿表面,并用超纯水彻底冲洗。
- 将玻璃器皿轻轻在纸巾上轻敲,去除残留水分。
- 使用吹风机干燥玻璃器皿,直至无可见水分残留。
注意:将清洗后的玻璃器皿存放于洁净、无尘的环境中。
2. 将脂质平衡至室温(1–4 小时)
注意:如果脂质储备液已预先配制,请跳过本节。
- 在化学通风橱中放置一支装有 25 mg DOPC 粉末的密封安瓿和一支装有 1 mg Ni-NTA 脂质粉末的密封安瓿。
- 将脂质在室温下平衡至少 1 小时。
3. 设置溶剂清洗站(约10分钟)
警告:氯仿是一种危险且易挥发的液体,可抑制中枢神经系统,并对皮肤、眼睛和呼吸道产生刺激。所有涉及使用超过 100 µL 氯仿的操作均须在化学通风橱中进行,并穿戴适当的个人防护装备(PPE),包括手套、实验服和眼部防护装置。由于氯仿可迅速穿透腈类手套,接触后应在 1 分钟内脱下并丢弃受污染的手套。氯仿废液不得与其他化学废液混合处理。
- 准备99.8%氯仿、一个带盖的氯仿废液瓶、99.5%乙醇、一个带盖的乙醇废液瓶、一个锐器盒、两个小型培养皿、两个小型培养皿盖、一个盛有1级滤纸的大培养皿、三片或更多面积为1–2 cm2的自封膜,以及纸巾。将所有材料放置于化学通风橱内(图2)。
- 用20–30 mL氯仿冲洗培养皿,冲洗液倒入相应的废液瓶中。再用乙醇重复冲洗一次。将培养皿自然晾干。
- 将其中一个小型培养皿加入氯仿,另一个加入乙醇。盖上盖子以减少挥发。
- 在实验过程中及时补充培养皿中的液体,特别是当氯仿因污染物而明显变浑浊时。
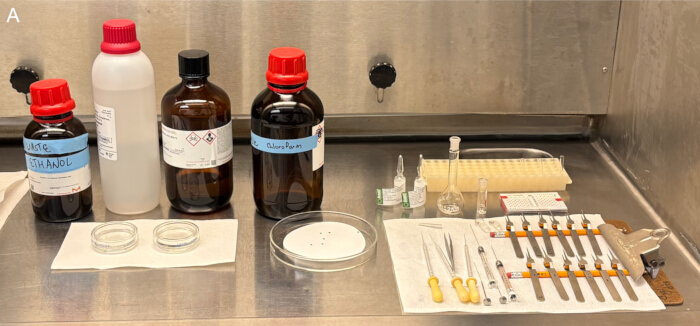
图2:用于脂质混合物制备的化学通风橱,内含工具和试剂。 溶剂清洗站及已清洁的工具、玻璃器皿和透射电镜(TEM)载网的图像。从左至右的瓶子依次为:乙醇废液瓶、乙醇、氯仿和氯仿废液瓶。从左至右的培养皿依次为:乙醇、氯仿和置于滤纸上的TEM载网。其他物品从左至右、从上至下依次包括:置于试管架中的培养管、脂质安瓿瓶、带塞的容量瓶、储存的TEM载网、带橡皮头的玻璃移液管、细尖镊子、玻璃注射器,以及插入间隔物(铅笔短段)的防毛细管镊子。请点击此处查看此图的放大版本。
4. 使用溶剂清洗工具、玻璃器皿和透射电镜载网(约20分钟)
- 准备一对尖头镊子、十二对自闭合防毛细管镊子、三支玻璃移液管、一支25 µL玻璃注射器、一支2.5 µL玻璃注射器、三支置于试管架中的玻璃培养管、一支带塞的25 mL容量瓶、一支带塞的1 mL容量瓶、二十至二十五个带酚醛盖的3.7 mL螺口玻璃小瓶,以及十二个带金网孔碳膜的透射电镜(TEM)载网。将这些材料放置在化学通风橱内的溶剂清洗工作站附近。
注意:不使用时,应在每对防毛细管镊子中插入间隔物(例如短铅笔头),以防止镊尖变形或错位。弯曲的镊子应丢弃。 - 通过将镊子尖端多次浸入氯仿中进行清洗。再用乙醇重复清洗。自然晾干。
- 用玻璃移液管多次吸取并排出氯仿,以清洗玻璃移液管。再用乙醇重复清洗。自然晾干。
- 通过反复吸取并排出氯仿清洗注射器,直至推杆移动顺畅。再用乙醇重复清洗。将推杆从注射器筒中取出,自然晾干。
- 使用玻璃移液管向培养管中多次加入并倒出氯仿,以清洗管壁。再用乙醇重复清洗。将残留液体通过倒置试管并在纸巾上轻敲的方式去除。自然晾干。
- 用玻璃移液管向容量瓶中加入氯仿,塞紧瓶塞,轻轻振荡以润洗内壁表面。将废液倒入废液瓶中。再用乙醇重复清洗。将容量瓶敞口放置,自然晾干。
- 用玻璃移液管向小瓶中加入氯仿,盖上瓶盖,轻轻振荡以润洗内壁表面。倒出溶剂。再用乙醇重复清洗。将小瓶去盖后自然晾干。
- 用尖头镊子夹住TEM载网的加固外缘,避免损伤碳膜,将载网垂直浸入氯仿中三次,再垂直浸入乙醇中三次,完成清洗。
- 将TEM载网碳膜面朝上放置于滤纸上,使其自然晾干。
5. 冷却制胶缓冲液(>20 分钟)
- 将至少 50 mL 的低盐缓冲液置于冰上。
- 将缓冲液预冷至少 20 分钟。
6. 分别制备1 mg/mL的DOPC和Ni-NTA脂质氯仿储备液(约20分钟)
注意:如果脂质储备液已预先配制好,请跳至 第8节,“配制80% DOPC/20% Ni-NTA脂质混合物。”
- 确保DOPC和Ni-NTA脂质粉末已平衡至室温。
注意:刀片和破碎的玻璃安瓿具有锐器危害。使用刀片和开启玻璃安瓿时应小心谨慎。 - 为提高DOPC粉末的可见性,使用刀片切割并剥离安瓿标签。对Ni-NTA脂质安瓿重复相同操作。
- 双手操作,并在锐器容器上方小心打开装有25 mg DOPC的安瓿。将安瓿颈部丢弃至锐器容器中。将安瓿瓶体置于氯仿培养皿附近。对1 mg Ni-NTA脂质安瓿重复相同操作。
- 小心将手套和工作台面上的玻璃碎片刷入锐器容器中。立即更换破损的手套。
- 分别标记一支玻璃移液管用于氯仿、一支用于DOPC、一支用于Ni-NTA脂质。
- 用经溶剂清洗的小型培养皿盛装氯仿。
- 使用DOPC移液管将2–5 mL氯仿转移至DOPC安瓿中。反复吸液和排液,直至底部和侧壁的脂质完全溶解。
- 使用DOPC移液管将DOPC溶液转移至25 mL容量瓶中。使用氯仿移液管加入氯仿,定容至25 mL。
- 将DOPC安瓿丢弃至锐器容器中。
- 使用氯仿移液管将少于1 mL的氯仿转移至1 mL容量瓶中。
- 使用Ni-NTA脂质移液管将氯仿从1 mL容量瓶转移至Ni-NTA脂质安瓿中。反复吸液和排液,直至底部和侧壁的脂质完全溶解。
- 使用Ni-NTA脂质移液管将Ni-NTA脂质溶液转移至1 mL容量瓶中。使用氯仿移液管加入氯仿,定容至1 mL。
- 将Ni-NTA脂质安瓿丢弃至锐器容器中。
7. 准备用于长期保存的脂质小份样品(约15分钟)
- 使用 DOPC 移液器将 1–2 mL DOPC 储存液分装至多个玻璃小瓶中。盖上瓶盖并对小瓶进行标记。
- 使用 Ni-NTA 脂质移液器将 0.2–0.5 mL Ni-NTA 脂质储存液分装至多个玻璃小瓶中。盖上瓶盖并对小瓶进行标记。
注意:液氮(LN2)是一种低温液体,接触后可能先产生短暂的莱顿弗罗斯特效应,随后引起剧烈疼痛、麻木、水疱及冻伤。损伤程度随暴露时间延长而加重,可在不到 1 分钟内从一度烧伤发展至四度烧伤。被液氮冷却的物体也可能造成类似损伤。在液氮中操作冷冻样品工具时,需注意热传导带来的风险。操作时应佩戴面罩以防止溅射伤害。即使佩戴了防冻手套,也不得将手浸入液氮中,因为残留的液氮可能持续接触皮肤造成损伤。切勿将空气中凝结的水蒸气误认为液氮蒸气。液氮气化后体积约膨胀 700 倍,形成无色、无味、可导致窒息的气体。确保所有液氮罐和杜瓦瓶均具备适当的排气装置,以防压力积聚。仅可在通风良好的区域使用液氮,并将未使用的液氮在化学通风橱中蒸发处理。 - 用液氮填充一个小的低温杜瓦瓶。
- 取一个分装小瓶,打开瓶盖,向瓶内通入氮气蒸气,重新盖上瓶盖,并用自封膜密封。对所有分装小瓶重复此操作。
注意:脂质分装储存液可在 −20 °C 下保存最多 3 个月。
8. 配制80% DOPC/20% Ni-NTA脂质混合物(约15分钟)
- 确保 DOPC 和 Ni-NTA 脂质储备液的分装样品已平衡至室温。
- 标记一支玻璃培养管用于 DOPC,一支用于 Ni-NTA 脂质,另一支用于脂质混合物。
- 使用 DOPC 移液枪将 50–100 µL(2–3 滴)DOPC 储备液转移至 DOPC 培养管中。用自封膜密封试管。
- 使用 Ni-NTA 脂质移液枪将 20–50 µL(1–2 滴)Ni-NTA 脂质储备液转移至 Ni-NTA 脂质培养管中。用自封膜密封试管。
- 使用 25 µL 注射器吸取 20 µL DOPC 分装液至注射器筒内。确认筒内无气泡,如有必要重新吸取样品。将分装液排入脂质混合管中。重复一次,总体积达 40 µL。
- 用氯仿清洗注射器,随后用乙醇清洗。
- 使用注射器吸取 10 µL Ni-NTA 脂质分装液。确认筒内无气泡,如有必要重新吸取样品。将分装液排入脂质混合管中,使最终总体积达 50 µL。
- 通过反复抽吸和排液混合脂质溶液。用自封膜密封试管。
- 用氯仿清洗注射器,随后用乙醇清洗,然后空气干燥。
9. 铺展脂单层并转移至透射电镜载网(约10分钟)
- 确保低盐缓冲液已预冷。
- 准备一个小的LED灯、预冷的低盐缓冲液、一个带盖的缓冲液废液瓶、试剂级乙醇、一个乙醇废液瓶、一瓶带滴管的蓖麻油、脂质混合物、一个小培养皿、一支2.5 µL注射器、十二对防毛细作用镊子、十二个透射电镜(TEM)载网以及低尘擦拭纸。将这些材料放置在光线充足的黑色实验台面上(图3)。
- 将每对防毛细作用镊子的平面臂对准TEM载网的碳膜面,沿载网加强的外边缘夹紧。对所有载网重复此操作。
- 将小培养皿完全注满预冷的低盐缓冲液(图4A)。在缓冲液表面中央滴加一滴蓖麻油(图4B、4C)。
注意:后续步骤需迅速进行,因为随着时间推移,脂质单层会逐渐偏离蓖麻油中心,导致转移效率降低。温度波动和振动会加速这一过程。 - 使用2.5 µL注射器吸取1 µL脂质混合物。将注射器针尖降至蓖麻油中心位置,将脂质混合物以悬挂在针尖斜面的液滴形式释放至液面正上方,然后轻轻接触蓖麻油(图4D)。
- 使用LED灯确认是否形成一个直径为2–3 cm的平坦脂质圆环,并被一圈蓖麻油包围(图4E)。若未观察到该形态,需重置成膜培养皿:弃去缓冲液,用试剂级乙醇清洗培养皿,用低尘擦拭纸擦干,重新加入低盐缓冲液、蓖麻油和脂质混合物。
注意:蓖麻油过量会阻碍脂质单层的形成,而不足则无法限制单层扩散。脂质流动性具有温度依赖性。若缓冲液过冷,脂质无法铺展成单层;若缓冲液过热,脂质和蓖麻油会向培养皿边缘迁移并破裂。将预冷的缓冲液倒入室温培养皿中,可实现最佳脂质铺展效果。每次完成载网转移后,如需可重置成膜培养皿。添加新鲜缓冲液前,必须确保培养皿完全无油残留。 - 将夹持的TEM载网碳膜面向下,缓慢移至脂质膜中心,将脂质单层转移至载网上。轻轻接触整个碳膜表面与脂质单层,但不得浸入或松开镊子(图4F)。
- 检查脂质载网,确认碳膜表面完全被液体覆盖且无蓖麻油残留(图5)。若发现油污染,弃用该载网。
- 对所有TEM载网重复上述转移操作。
注意:夹持的脂质载网可能在5–10分钟内干燥。脂质载网可在实验台上夹持过夜后再进行再水合。或者,干燥的脂质载网可放入载网盒中,于室温干燥器内保存最多1周,之后再重新夹持并再水合。
关键步骤:仅在计划2小时内进行 plunge-freezing(快速冷冻)时继续操作。否则,应延迟后续步骤。
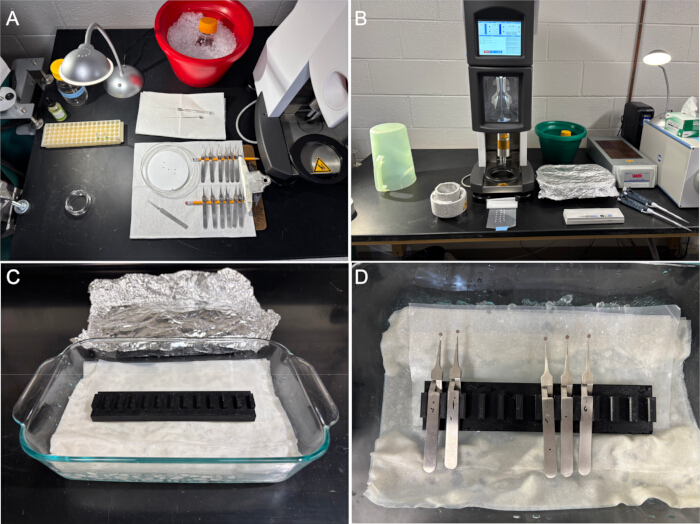
图3:脂质单层膜浇铸与浸没冷冻的台面装置。(A)从左至右、从上至下所示物品包括:蓖麻油滴管瓶、缓冲液废液瓶、LED灯、置于冰上的低温低盐缓冲液、装有脂质等分试样和脂质混合物的试管架、2.5 µL玻璃注射器、空培养皿、装有载于滤纸上的透射电镜(TEM)载网的培养皿、细尖镊子,以及装有间隔片的防毛细镊子。(B)所示物品包括:预冷并加湿的冷冻夹持器、组装好的冷冻夹持器容器、装有稀释缓冲液和样品的冰桶、铝箔覆盖的台面湿度室、密封的自封膜上排列的稀释缓冲液液滴线、冷冻夹持器镊子以及移液器。(C)台面湿度室内部包含冰块、湿纸巾、自封膜和一个台式镊子架。(D)防毛细镊子夹持的脂质载网置于台面湿度室内。请点击此处查看此图的放大版本。
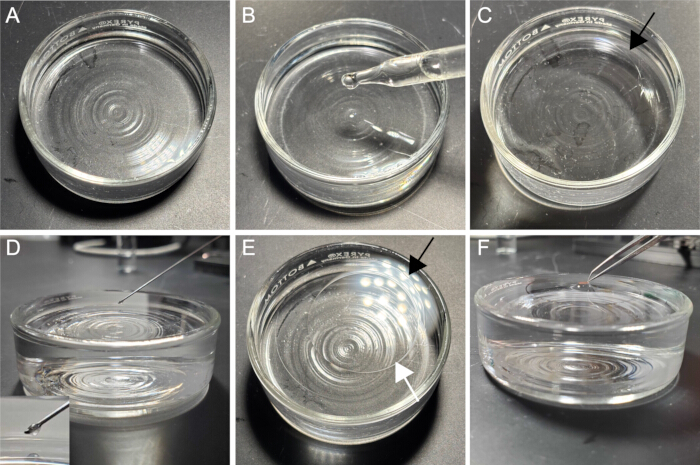
图 4:脂质单分子层的铺展及转移至透射电镜载网。 (A) 装有低盐缓冲液的铺展皿。(B) 将1滴蓖麻油滴加至铺展皿中。(C) 蓖麻油在缓冲液表面形成的圆形油环;黑色箭头指示蓖麻油的边界。(D) 注射器针头位于蓖麻油正上方,针尖斜面朝下;针尖悬挂着1 µL脂质混合液滴。(E) 脂质混合物在蓖麻油环内铺展开;黑色箭头指示蓖麻油边界,白色箭头指示脂质单分子层边界。(F) 将脂质单分子层转移至透射电镜载网的碳膜面。请点击此处查看该图的放大版本。
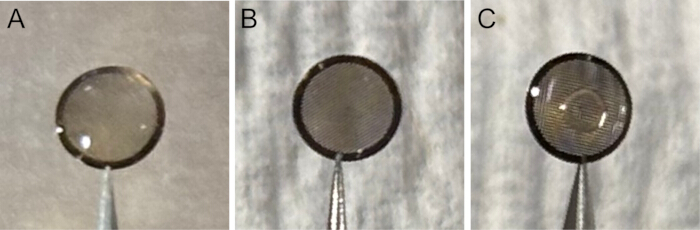
图 5:脂质单层转移后透射电镜载网的示例。(A)成功转移脂质,缓冲液均匀分布于整个载网表面。(B)空气干燥1小时后成功完成脂质转移。(C)脂质转移过程中被蓖麻油污染,污染物可见于载网中心区域。请点击此处查看该图的放大版本。
10. 在4 °C、100%湿度条件下将印迹纸置于冷冻夹中孵育(>1小时)
- 将冷冻载网投入装置的湿度室设置为 4 °C 和 100% 湿度。
- 将滤纸安装到 blotting 垫上。在高湿度环境中孵育滤纸至少 1 小时。
11. 冷却稀释缓冲液(约20分钟)
- 将至少 20 mL 稀释缓冲液置于冰上。
- 将缓冲液冷却至少 20 分钟。
12. 在脂质载网中孵育稀释缓冲液(>15 分钟)
- 准备一个烤盘、一个3D打印的镊子架(补充文件 1–3)、一段25–35 cm长、10 cm宽的自封膜、一段35–45 cm长、30.4 cm宽的铝箔、冰块和纸巾。将这些材料放置在冷冻载样器附近(图3)。
- 将烤盘沿长度方向紧邻冷冻载样器放置。向烤盘中加入半盘冰块,然后覆盖纸巾,并用自来水轻微润湿纸巾。
- 将自封膜沿长度方向放置在烤盘远端的一半区域,直接覆盖在湿润的纸巾上。
- 将3D打印的镊子架沿长度方向置于烤盘中央,直接放在湿润的纸巾和自封膜上。
- 用铝箔覆盖整个烤盘(图3)。
- 在整个实验过程中及时更换融化的冰块。
- 将夹紧的脂质网格置于台面湿度 chamber 内自封膜上方,脂质面朝上(图3)。
注意:避免移动台面湿度 chamber 或用移液枪头触碰脂质网格,这些操作可能导致网格移位。若网格不慎落入自封膜上且未损坏,应将其取回。 - 向每个脂质表面加入2 µL样品稀释缓冲液。用铝箔覆盖 chamber 以减少蒸发。
- 当每个脂质网格表面液体少于1 µL时,补充2 µL稀释缓冲液,以维持网格的水合状态。
- 将水合后的脂质网格在冷藏的台面湿度 chamber 中平衡至少15分钟。
13. 在脂质载网上孵育样本(>15 分钟)
- 确保脂质网格已用稀释缓冲液持续水合至少 15 分钟。
- 确保储备稀释缓冲液已充分预冷。
- 向每个已水合的脂质网格上加入 3 µL 带有多聚组氨酸标签的样品。用铝箔覆盖孵育室以减少蒸发。
- 当网格上残留液体少于 2 µL 时,补充 2 µL 稀释缓冲液以维持脂质网格的水合状态。
- 将网格孵育至少 15 分钟。
14. 准备冷冻电镜载样镊锅(>15 分钟)
- 组装冷冻镊子罐,包括用于间接冷却铜杯的转轴。
- 标记冷冻载网盒,并将其放入冷冻镊子罐中。
- 向冷冻镊子罐中加入液氮(LN2),并盖上盖子以减少冰污染。
- 定期补充液氮,保持液氮液面高于冷冻载网盒。
- 将金属部件和冷冻载网盒在液氮中冷却至少10分钟。
注意:液态丙烷和乙烷属于高度易燃的低温液体,可造成与液氮类似的伤害,但缺乏明显的莱顿弗罗斯特效应,因此接触可能导致立即且持续的损伤。操作时应避免飞溅。若丙烷-乙烷混合物污染了液氮,则处理被污染的液氮时应采取与处理液态丙烷和乙烷相同的高级别防护措施。使用后,应将冷冻镊子罐置于化学通风橱中,使低温液体安全蒸发。 - 向铜杯中加入60:40的液态丙烷-乙烷混合物。
- 使丙烷-乙烷混合物在液氮温度下平衡至少5分钟。
15. 脂质载网的投入式冷冻(约 1 小时)
- 确保印迹纸已在 4 °C 和 100% 湿度条件下平衡至少 1 小时。
- 确保脂质载网已与带有多聚组氨酸标签的样品孵育至少 15 分钟。
- 确认丙烷-乙烷温度低于 −190 °C,然后取出转轴。
- 在固定好的 10 cm2 自封膜上,沿直线滴加三滴 50 µL 稀释缓冲液(图 3)。
- 将一个夹紧的脂质载网依次轻触各稀释缓冲液液滴以洗涤,并在最后一个液滴上释放载网。
- 使用冷冻电镜夹镊取漂浮的脂质载网,并将其安装至冷冻电镜夹具中。
- 用无尘纸吸除已使用的缓冲液液滴并丢弃。
- 在将脂质载网浸入丙烷-乙烷混合液进行冷冻前,设置冷冻电镜夹具参数如下:等待时间 0 秒;总吸除次数 1 次;吸除力度 −10;吸除时间 4 秒;排液时间 0 秒。
- 将冷冻载网从丙烷-乙烷杯转移至冷冻载网盒中的空位。
- 对所有脂质载网重复上述浸入冷冻操作。
结果
为了说明本实验方案的预期结果,进行了一系列实验。将带有和不带有20% Ni-NTA脂单层的Holey-carbon R1.2/1.3透射电镜载网进行样品浸入式冷冻,并使用200 keV冷冻透射电镜成像。每种条件下,对3–9个载网方格进行了成像。冰层厚度在不同载网及载网方格间有所差异,最佳区域含有薄的玻璃态冰和良好包埋的颗粒,这通过快速傅里叶变换(FFT)中特征性的索恩环得到验证31。
在第一个实验中,纯化的多聚组氨酸标签 Staphylococcus aureus 谷氨酸合酶(saGS)被用于演示20% Ni-NTA脂单层亲和载网的最佳制备方法及预期性能(图6)。脂质单层被转移至金质网格透射电镜载网上。脂质载网干燥后置于干燥器中保存1周,随后进行再水化。完全再水化后,将0.1 mg/mL的saGS孵育于载网上15–30分钟,以允许颗粒结合。saGS颗粒在脂质单层上分布均匀,重叠极少或无重叠,平均每张显微照片中颗粒数为274个(N = 7)。
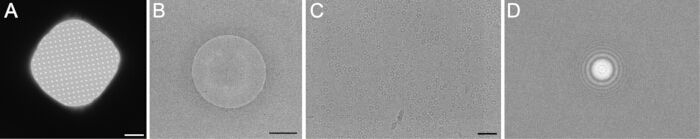
图6:20% Ni-NTA脂质亲和载网的代表性冷冻透射电子显微镜(cryo-TEM)图像。脂质单层按照实验方案所述,干燥1周后用低盐缓冲液重新水化。图中展示了低倍(A)、中倍(B)和高倍(C)下的代表性图像,对应的快速傅里叶变换(FFT)图显示在(D)中。颗粒在载网表面的薄玻璃态冰层中均匀分布,每张显微照片平均含有274个颗粒(N = 7)。比例尺:10 µm、500 nm 和 50 nm。请点击此处查看该图的放大版本。
在第二次实验中,使用表现出颗粒堆叠的 saGS 样品来演示脂质载网对蛋白质聚集的影响(图7)。考察了四种冷冻载网条件:1.0 mg/mL 的 saGS 加载于无脂质的铜网栅格上,0.1 mg/mL 的 saGS 加载于无脂质的铜网栅格上,0.1 mg/mL 的 saGS 加载于含未干燥脂质的金网栅格上,以及 0.1 mg/mL 的 saGS 加载于在再水化前已干燥一周的含脂质金网栅格上。与相同蛋白浓度下制备的无脂质载网相比(平均每幅显微图像含 2 个颗粒,N = 12),脂质载网显示出更高的颗粒密度,平均每幅显微图像含有 40 或 46 个颗粒(N = 12)。这些结果表明,相对于未经修饰的透射电镜载网,存在明显的浓度效应,证实了20% Ni-NTA 脂质单层保持完整。尽管仍观察到颗粒堆叠现象,但脂质载网上的颗粒重叠极少,并保持在相近的焦平面上。相比之下,无脂质载网上的颗粒出现在显著不同的焦深位置,在 1 mg/mL 的较高蛋白浓度下可观察到聚集的颗粒。
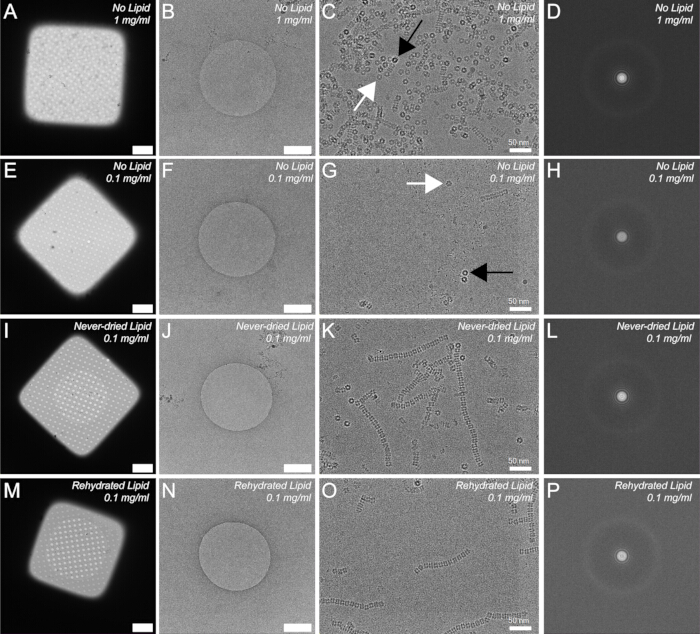
图 7:在含 20% Ni-NTA 脂质和无脂质载网上制备的带多聚组氨酸标签的 saGS 的冷冻透射电镜图像。(A–D)使用 1.0 mg/mL saGS 制备的无脂质载网,分别显示低倍(A)、中倍(B)和高倍(C)图像,及其对应的快速傅里叶变换图像(D)。(E–H)使用 0.1 mg/mL saGS 制备的无脂质载网。(I–L)使用 0.1 mg/mL saGS 制备的未经干燥的脂质载网。
(M–P)使用 0.1 mg/mL saGS 制备的再水化脂质载网。无脂质载网上的颗粒密度低于相应脂质亲和载网上的颗粒密度,平均每幅显微照片分别为 2 个颗粒,而脂质载网分别为 46 和 47 个颗粒(N = 12)。黑色箭头指示严重离焦的颗粒,白色箭头指示接近合焦的颗粒。比例尺:10 µm、500 nm 和 50 nm。请点击此处查看本图的放大版本。
在第三次实验中,将脂质载网暴露于 N-十二烷基-β-D-麦芽糖苷(DDM)中。以浓度为 0.1 mg/mL 的纯化 saGS 作为样品。去垢剂破坏了脂质单层结构。含有 0.05% DDM 缓冲液的脂质冷冻载网(图8)显示出脂质单层中存在间隙、载网表面出现脂质胶束,且颗粒密度较对照条件有所降低。
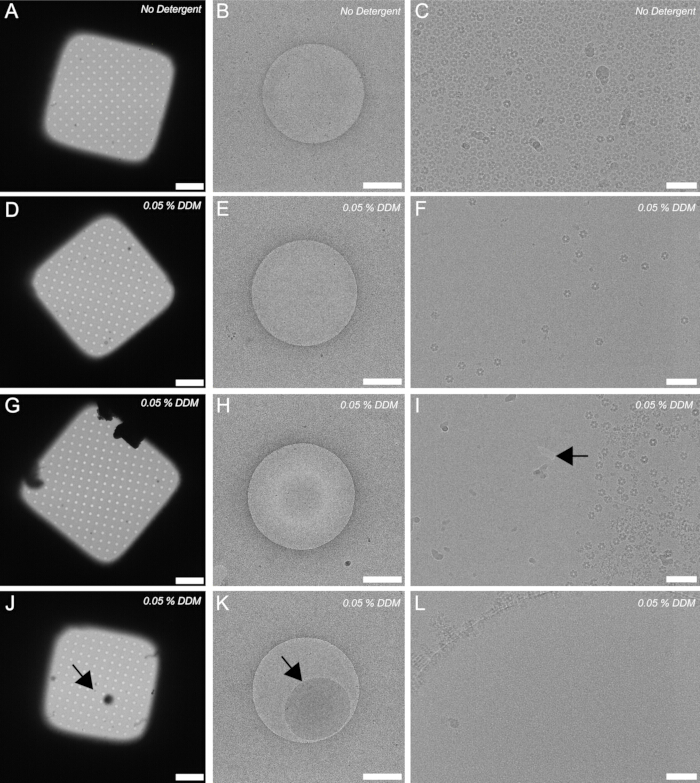
图8:暴露于0.05% N-十二烷基-β-D-麦芽糖苷(DDM)的20% Ni-NTA脂质载网的代表性图像。冷冻载网在低、中、高放大倍数下成像。(A–C)用样品稀释缓冲液再水化的20% Ni-NTA脂质亲和载网图像。(D–L)用含0.05% DDM的样品稀释缓冲液再水化的20% Ni-NTA脂质亲和载网图像。经去垢剂处理的透射电镜载网上,saGS颗粒密度较低。图I中的箭头指示脂质单层中的一个孔洞。图J和K中的箭头指示同一个脂质胶束。比例尺:10 µm、500 nm 和 50 nm。请点击此处查看本图的放大版本。
冰层厚度在不同网格之间以及单个网格方格内部均存在差异。在某些情况下,冰层过薄,甚至在网格方格的部分区域缺失(图9A),分布不均(图9B),或过厚而不适合成像(图9C)。在某些区域,冰层厚度小于蛋白质复合物的直径。在数据采集过程中,应避免干燥区域或冰层极薄(定义为薄于颗粒直径)的区域,因为这些区域中的蛋白质很可能已发生变性。根据本方案的使用经验,约25%–50%的冷冻电镜载网可在多个网格方格中形成足够薄、适合单颗粒分析(SPA)数据采集的冰层。通过调整 blotting 时间或在 plunge-freezing 前改变网格上的终末缓冲液体积,可优化冰层厚度。
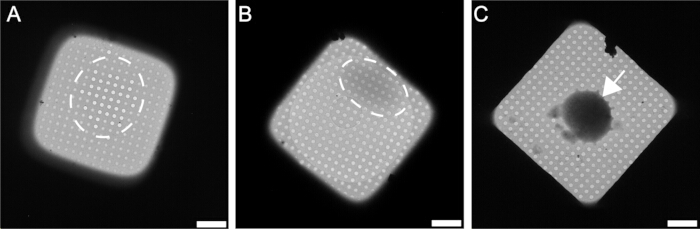
图9:次优Ni-NTA亲和力载网示例。 次优20% Ni-NTA亲和力冷冻载网的代表性冷冻透射电镜显微图像。(A)载网方格中心区域缺乏脂膜,由虚线白圈标示的空孔区域指示。(B)载网方格中冰层不均匀,靠近虚线白圈标示区域处冰层较厚。(C)载网方格中冰层过厚,无法用于成像,由箭头指示。比例尺:10 µm。 请点击此处查看此图的放大版本。
正确制备的亲和力载网应含有脂质单层膜,并在膜上主要吸附单层颗粒。颗粒密度应高于使用相似样品浓度制备的非脂质载网上所观察到的密度。若未能将脂质单层成功转移至透射电镜载网上,则冷冻载网中会出现空的孔洞(图10A),或孔洞中仅含有无脂质膜的玻璃态冰,且颗粒极少或没有颗粒(图10B,C)。
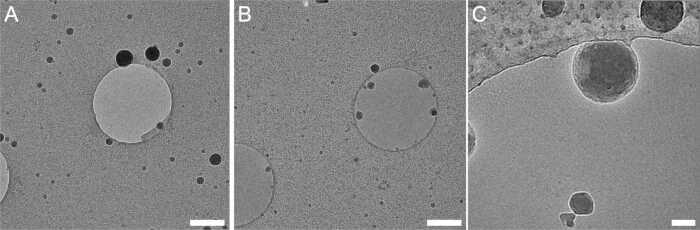
图10:缺乏脂质单层的透射电镜载网示例。 冷冻透射电镜图像显示脂质单层未能成功转移至透射电镜载网表面。多聚组氨酸标签的人类核小体吸附在碳膜上。(A)载网方格中包含空孔的区域。(B)同一载网的不同区域,孔洞中充满玻璃态冰,但未见明显颗粒或脂质膜。(C)缺乏脂质膜但含有玻璃态冰的孔洞高倍图像;颗粒可见于较厚的碳支持膜上。 标尺:1 µm 和 50 nm。 请点击此处查看此图的放大版本。
补充文件1:镊子架3D打印说明。 本补充文件包含在脂质网格水合和样品孵育过程中使用的定制镊子架的详细3D打印说明。请点击此处下载该文件。
补充文件 2:用于 3D 打印台式镊子架的 STL 文件。 本补充文件包含用于 3D 打印镊子架版本的立体光刻(STL)文件,该镊子架用于在台式湿度培养箱中孵育水合脂质载网(图 3C、3D)。请点击此处下载该文件。
补充文件 3:用于 3D 打印冷冻载网夹持器支架的 STL 文件。 本补充文件包含用于 3D 打印夹持器支架版本的立体光刻(STL)文件,该支架用于在冷冻载网转移装置的湿度室中孵育水合脂质载网。请点击此处下载该文件。
讨论
本研究提供了一种制备Ni-NTA脂质单层亲和载网的详细分步实验方案,并强调了该方法在常规测定可溶性多聚组氨酸标签蛋白复合物的冷冻电镜结构中的重要实践考虑因素和优势。该方案中的多个步骤在技术上具有挑战性,容易因操作者失误而出现问题,尤其对于初次使用者而言。
脂质单层修饰可在约2小时内完成,制备得到的脂质载网可干燥后储存以供后续使用。若额外花费2小时并具备冷冻载网制备仪(cryo-plunger),可进一步制备冷冻载网。因此,该方法非常适用于多用户共享平台和冷冻电镜实验室。采用此方法,已成功解析了分子量范围在97至470 kDa之间的可溶性蛋白复合物的结构,分辨率均达到3 Å以下17。Ni-NTA脂质单层对目标蛋白的高效结合依赖于带有柔性连接臂的多聚组氨酸标签(polyhistidine-tagged)组分。尽管在某些样品(如核小体和谷氨酸合酶)中观察到相对于脂质单层存在一定程度的优势取向,但这些取向并未限制分辨率,也未在最终的三维重构中引入拉伸伪影。Ni-NTA脂质单层与多聚组氨酸标签蛋白之间的相互作用促进了透射电镜载网上表面颗粒的高效捕获。因此,可直接使用相对稀释的样品,并通过标准的冷冻电镜数据处理流程(如RELION和cryoSPARC)进行结构分析,无需额外的样品制备步骤。
透射电镜载网的小心操作以及脂质混合物的制备对于获得可重复的实验结果至关重要。脂质单层膜对污染物极为敏感,包括残留的去污剂、油类和灰尘。因此,所有玻璃器皿的彻底清洗非常关键。建议在使用前,先用阴离子表面活性剂清洗,再用超纯水充分冲洗,并彻底风干;随后在使用前立即用氯仿和乙醇进行再次冲洗。
该方案使用金网透射电镜载网,因为其在广泛的样品和缓冲液条件下均呈惰性。为适应不同样品,可在脂质铺展、脂质载网再水化、样品孵育以及冷冻前洗涤步骤中根据需要调整所用缓冲液。含有甘油或其他添加剂的样品缓冲液可在玻璃化前的洗涤步骤中去除。应避免使用含有二硫苏糖醇(DTT)的缓冲液,因为 DTT 会还原镍32,从而干扰多聚组氨酸标签蛋白与 Ni-NTA 脂质单层之间的结合。不建议使用去垢剂,因为 0.05% N-十二烷基-β-D-麦芽糖苷(DDM)会破坏脂质单层结构,而膜蛋白结构研究中常用的其他去垢剂预计也会产生类似影响(图 8D–L)。较低浓度的去垢剂或临界胶束浓度较低的去垢剂是否同样会破坏单层完整性,仍有待确定。
该实验方案中技术要求最高的部分是将脂质单层膜浇铸并转移至透射电镜(TEM)载网上。此步骤对温度、振动和操作技术极为敏感。在室温(约22 °C)下使用预冷缓冲液浇铸脂质膜可获得最佳效果。应尽量减少机械扰动,因为振动可能导致单层膜失稳。因此,在脂质浇铸后,培养皿应保持静止。在转移过程中,蓖麻油和脂质单层膜可能在缓冲液表面逐渐迁移,从而增加转移蓖麻油而非脂质单层膜的可能性(图5C)。正确填充培养皿并精确控制载网方向,对于实现单层膜的完整且均匀转移至关重要。若未能成功将脂质膜转移至TEM载网表面,则会导致载网表面呈疏水性,使缓冲液在碳膜表面形成液滴状。
本研究中仅评估了采用双面 blotting 的冷冻载样装置。然而,其他 blotting 方法(包括手动或单面 blotting)只要确保脂质膜未受损伤,也应能获得可比的结果。在调整本实验方案时,脂质载网的操作应类似于标准透射电镜(TEM)载网,但需注意若干关键因素。应避免进行等离子清洗,且脂质载网在加样前须持续保持水合状态至少 15 分钟。样品在脂质载网上孵育时间应不少于 15 分钟,以确保表面吸附充分;在 blotting 前,载网应至少接触一滴稀释缓冲液,以平衡载网表面最终的缓冲液体积。在整个样品孵育过程中,维持 Ni-NTA 脂质单层的水合状态至关重要,因为水分蒸发可能导致局部盐浓度升高,进而可能改变蛋白质结构或复合物组装状态。更长的孵育时间(>30 分钟)可能会提高载网上颗粒的密度,但需权衡过长孵育可能导致的样品降解风险。本方案中推荐使用 60:40 的液态丙烷-乙烷混合物,但并非严格必需。其他比例的丙烷-乙烷混合物或纯乙烷也可使用,前提是冷冻载样装置配备乙烷杯加热系统,以在整个实验过程中维持冷冻剂处于液态。最后,颗粒分布受冰层厚度影响。在某些情况下,颗粒可能被排除在特别薄的冰区之外,尤其是在载网方孔中心区域附近。因此,blotting 条件可能需要针对每种玻璃化装置进行优化。总体而言,Ni-NTA 脂质单层亲和载网为可溶性多聚组氨酸标签蛋白复合物的结构解析提供了一种稳健且易于实施的策略。通过仔细执行本文所述的分步操作流程,该方法可轻松整合到标准的冷冻电镜(cryo-EM)工作流程中。
致谢
作者感谢北卡罗来纳大学教堂山分校的 Caleb Fisher、Rob McGinty、Nicholas Wright、Blake Fordyce 和 Bryan Roth 提供本实验所用的缓冲液。感谢北卡罗来纳大学教堂山分校冷冻电镜核心设施(CryoEM Core Facility)以及北卡核心设施倡导委员会(UNC Core Facility Advocacy Committee)提供的技术与资金支持。感谢加利福尼亚大学圣克鲁兹分校化学与生物化学系生物分子冷冻电子显微镜设施(Biomolecular Cryo-Electron Microscopy Facility,RRID: SCR_021755)提供的技术协助。本研究由美国国立卫生研究院国家癌症研究所资助号 P30CA016086 及美国国立卫生研究院资助号 R35GM150960(授予 Richard W. Baker)支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 mL 带磨口塞容量瓶 | Avantor | 10124-382 | VWR 容量瓶,透明玻璃,A 级,带序列号,配圆形玻璃磨口塞,1 mL |
| 2.5 µL 玻璃注射器 | Hamilton | 7632-01 | 2.5 微升注射器,可拆卸针头(RN),不包含针头 |
| 3.7 mL 螺纹玻璃小瓶,带酚醛树脂盖 | Fisher Scientific | 03338A | Fisherbrand B 级透明玻璃螺纹小瓶,带附连封盖,3.7 mL |
| 4 孔冷冻电镜载网盒 | MiTeGen | 71166-10 | 带盖圆形冷冻载网盒 |
| 11.4 L 塑料桶 | Sterilite 12 夸脱洗碗盆,多用途塑料清洗桶 | ||
| 25 µL 玻璃注射器 | Hamilton | 80430 | 25 微升注射器,可拆卸针头(RN),包含 22 号、52 mm 长弯曲斜面针头 |
| 25 mL 带磨口塞容量瓶 | Avantor | 10123-994 | VWR 容量瓶,透明玻璃,A 级,带序列号,配圆形玻璃磨口塞,25 mL |
| 99.5% 纯度乙醇 | Thermo Fisher Scientific | 615090040 | 乙醇,99.5%,ACS 级试剂,无水,200 proof |
| 99.8% 纯度氯仿 | Fisher Scientific | AA32614K2 | 氯仿,ACS 级,纯度 ≥99.8% |
| 铝箔 | Walmart | 铝箔,宽度 30.4 cm | |
| 阴离子表面活性剂粉末 | Fisher Scientific | 50-997-492 | Electron Microscopy Sciences Alconox 阴离子粉末洗涤剂,4 磅 |
| 烤盘 | Walmart | Pyrex 232-D 3 夸脱深型玻璃烤盘 | |
| 吸水纸 | Ted Pella | 47000-100 | 标准 Vitrobot 滤纸,Ø55/20 mm,595 级 |
| 带滴管的蓖麻油瓶 | Walmart | 有机蓖麻油,带滴管,1 液体盎司 | |
| 冷冻制样仪压片装置(Cryo-plunger) | Thermo Fisher Scientific | 1151972 | FEI Vitrobot Mark IV |
| DOPC | Avanti Polar Lipids | 850375P-25mg | 18:1 (Δ9-顺式) PC (DOPC),1,2-二油酰基-sn-甘油-3-磷酰胆碱粉末,25 mg |
| 细尖镊子 | Ted Pella | 505 | DUMONT 生物级镊子,5 型,抛光不锈钢 |
| 玻璃培养管 | Fisher Scientific | 14958A | Fisherbrand 一次性燧石玻璃管,平口,1 mL |
| 玻璃移液管 | Fisher Scientific | 13-678-20A | Fisherbrand 一次性硼硅酸盐玻璃巴斯德移液管,14.6 cm |
| 金网覆有孔碳膜的透射电镜载网 | Quantifoil | N1-C14nAu30-01 | QUANTIFOIL R 1.2/1.3 Au 300 目 |
| 1 号滤纸 | Sigma-Aldrich | WHA1001150 | Whatman 定性滤纸,1 号,直径 150 mm |
| 大号带盖培养皿 | Fisher Scientific | 08747E | Corning PYREX 可重复使用带盖培养皿,直径 150 mm,高 15 mm |
| 低尘擦拭纸 | Fisher Scientific | 06-666 | Kimtech Science Kimwipes 精细作业擦拭纸,单层 |
| Ni-NTA 脂质 | Avanti Polar Lipids | 790404P-5mg | 18:1 DGS-NTA(Ni),1,2-二油酰基-sn-甘油-3-[(N-(5-氨基-1-羧基戊基)亚氨基二乙酸)琥珀酰](镍盐) |
| 移液球 | Fisher Scientific | S32325 | Fisherbrand 天然橡胶移液球,2 mL |
| 试剂级乙醇 | Sigma-Aldrich | 362808-1L | 试剂酒精 ≥89%(GC),含 5% 异丙醇和 5% 甲醇 |
| 自闭式抗毛细管镊子 | Ted Pella | 510-5 | DUMONT 抗毛细管反向镊子,生物级,5ACN 型,不锈钢 |
| 自封膜 | Fisher Scientific | S47529 | Parafilm M 封口膜,10 cm |
| 小号带盖培养皿 | Fisher Scientific | 08747A | Corning PYREX 可重复使用带盖培养皿,直径 60 mm,高 15 mm |
| 注射器针头 | Hamilton | 7803-01 | 27 号小接头可拆卸针头(RN),斜面,75 mm 长,45° 角度 |
参考文献
- Chan, L. M., et al. High-resolution single-particle imaging at 100–200 keV with the Gatan Alpine direct electron detector. J Struct Biol. 216 (3), 108108(2024).
- Efremov, R. G., Stroobants, A. Coma-corrected rapid single-particle cryo-EM data collection on the CRYO ARM 300. Acta Crystallogr D Struct Biol. 77 (Pt 5), 555-564 (2021).
- Frechin, L., et al. High-resolution cryo-EM performance comparison of two latest-generation cryo electron microscopes on the human ribosome. J Struct Biol. 215 (1), 107905(2023).
- Herzik, M. A. Jr, Wu, M., Lander, G. C. High-resolution structure determination of sub-100 kDa complexes using conventional cryo-EM. Nat Commun. 10 (1), 1032(2019).
- Karia, D., et al. Sub-3 Å resolution protein structure determination by single-particle cryo-EM at 100 keV. Structure. 33 (10), 1717-1727.e4 (2025).
- McMullan, G., et al. Structure determination by cryoEM at 100 keV. Proc Natl Acad Sci U S A. 120 (49), e2312905120(2023).
- Peng, R., et al. Characterizing the resolution and throughput of the Apollo direct electron detector. J Struct Biol X. 7, 100080(2023).
- D’Imprima, E., et al. Protein denaturation at the air-water interface and how to prevent it. eLife. 8, (2019).
- Noble, A. J., et al. Routine single-particle cryoEM sample and grid characterization by tomography. eLife. 7, (2018).
- Tan, Y. Z., et al. Addressing preferred specimen orientation in single-particle cryo-EM through tilting. Nat Methods. 14 (8), 793-796 (2017).
- Snijder, J., et al. Vitrification after multiple rounds of sample application and blotting improves particle density on cryo-electron microscopy grids. J Struct Biol. 198 (1), 38-42 (2017).
- Cianfrocco, M. A., Kellogg, E. H. What could go wrong? A practical guide to single-particle cryo-EM: From biochemistry to atomic models. J Chem Inf Model. 60 (5), 2458-2469 (2020).
- Cheng, H., et al. Dual-affinity graphene sheets for high-resolution cryo-electron microscopy. J Am Chem Soc. 145 (14), 8073-8081 (2023).
- Yu, G., Li, K., Jiang, W. Antibody-based affinity cryo-EM grid. Methods. 100, 16-24 (2016).
- Arimura, Y., Konishi, H. A., Funabiki, H. MagIC-Cryo-EM, structural determination on magnetic beads for scarce macromolecules in heterogeneous samples. eLife. 13, (2025).
- Zhao, Q., et al. An immobilized antibody-based affinity grid strategy for on-grid purification of target proteins enables high-resolution cryo-EM. Commun Biol. 7 (1), 715(2024).
- Skrajna, A., et al. Nickel-NTA lipid-monolayer affinity grids allow for high-resolution structure determination by cryo-EM. J Struct Biol. 217 (4), 108253(2025).
- Esfahani, B. G., et al. SPOT-RASTR—A cryo-EM specimen preparation technique that overcomes problems with preferred orientation and the air/water interface. PNAS Nexus. 3 (8), pgae284(2024).
- Cookis, T., et al. Streptavidin-affinity grid fabrication for cryo-electron microscopy sample preparation. J Vis Exp. (202), e66197(2023).
- Han, B. G., et al. Long shelf-life streptavidin support-films suitable for electron microscopy of biological macromolecules. J Struct Biol. 195 (2), 238-244 (2016).
- Song, J., et al. Structural basis for inactivation of PRC2 by G-quadruplex RNA. Science. 381 (6664), 1331-1337 (2023).
- Cookis, T., et al. Structural basis for the inhibition of PRC2 by active transcription histone posttranslational modifications. Nat Struct Mol Biol. 32 (2), 393-404 (2025).
- Gillies, J. P., et al. Structural basis for cytoplasmic dynein-1 regulation by Lis1. eLife. 11, (2022).
- Sauer, P. V., et al. Structural and quantum chemical basis for OCP-mediated quenching of phycobilisomes. Sci Adv. 10 (14), eadk7535(2024).
- Sauer, P. V., et al. Activation of automethylated PRC2 by dimerization on chromatin. Mol Cell. 84 (20), 3885-3898.e8 (2024).
- Ciapponi, M., et al. Structural basis of the histone ubiquitination read-write mechanism of RYBP-PRC1. Nat Struct Mol Biol. 31 (7), 1023-1027 (2024).
- Dominguez-Martin, M. A., et al. Structures of a phycobilisome in light-harvesting and photoprotected states. Nature. 609 (7928), 835-845 (2022).
- Marechal, N., Serrano, B. P., Zhang, X., Weitz, C. J. Formation of thyroid hormone revealed by a cryo-EM structure of native bovine thyroglobulin. Nat Commun. 13 (1), 2380(2022).
- Kasinath, V., et al. JARID2 and AEBP2 regulate PRC2 in the presence of H2AK119ub1 and other histone modifications. Science. 371 (6527), (2021).
- Ma, J., et al. Open architecture of archaea MCM and dsDNA complexes resolved using monodispersed streptavidin affinity CryoEM. Nat Commun. 15 (1), 10304(2024).
- Kim, L. Y., et al. Benchmarking cryo-EM single-particle analysis workflow. Front Mol Biosci. 5, 50(2018).
- Zhou, Z., Jin, J., Deng, X., Jia, Z. Protein purification via consecutive histidine-polyphosphate interaction. Protein Sci. 33 (6), e5021(2024).
重印与许可
本文已发表
视频即将推出