LC3免疫印迹是监测自噬的常用方法,但需要仔细优化。本方案描述了一种在KPC来源的胰腺癌细胞中检测和定量LC3-II的可靠方法,包括关键技术要点以及使用Fiji进行密度分析的标准化操作流程。
本文内容
摘要
摘要
自噬在胰腺导管腺癌(PDAC)中发挥着复杂的作用,参与肿瘤进展、应激适应以及治疗耐药性。因此,准确评估自噬体动态对于癌症生物学研究至关重要。在现有方法中,通过免疫印迹检测微管相关蛋白轻链3(LC3)被广泛用于监测自噬体动态,其原理是区分胞质形式(LC3-I)与脂化后定位于自噬体的形式(LC3-II)。然而,由于LC3分子量较小,且两种异构体在电泳迁移率上的差异极小,给实验带来技术挑战,需要仔细优化条件。本文提供了一种在KPC来源的小鼠胰腺癌细胞中通过Western blot半定量分析LC3-II水平的可重复实验方案。该方法整合了细胞裂解、电泳、蛋白转膜和抗体检测等步骤的优化条件,以确保LC3异构体的可靠分离与检测。此外,还提供了使用Fiji(ImageJ)进行LC3-II条带密度分析的标准化操作流程。本方法的灵敏度已在自噬诱导条件(吉西他滨处理)和自噬流受损条件(VMP1基因敲低)下通过检测LC3-II水平升高得到验证。同时,本文也探讨了影响数据解读的关键技术参数,包括裂解缓冲液组成和抗体特异性,以及常见的实验误区。尽管仅依靠LC3免疫印迹不足以全面定义自噬流,但当与其他补充实验联用时,该方法为监测自噬活性提供了一种稳健且易于实施的技术手段。本方案可适用于其他实验体系,有助于在癌症模型中开展自噬机制研究。
引言
巨自噬(下文简称自噬)是一种受调控的降解途径,通过该途径,细胞可降解包括蛋白质和功能障碍的细胞器在内的胞质物质。自噬的一个显著特征是形成一种称为自噬体的双层膜结构,该结构包裹细胞内物质,并将其运送至溶酶体进行降解1,2,3。在正常细胞中,自噬有助于蛋白质和细胞器的受控更新,从而限制氧化应激,降低肿瘤发生的风险。然而,在癌细胞中,这一过程可能被征用来支持细胞在高代谢需求、营养缺乏和缺氧条件下的存活。通过促进对恶劣微环境的适应,自噬还在一定程度上通过减轻治疗诱导的细胞损伤而促进化疗耐药性4,5。
胰腺癌是美国癌症相关死亡的第三大原因。大约90%的胰腺癌被归类为胰腺导管腺癌(PDAC)。与其他一些因早期发现和治疗进展而使患者生存率提高的恶性肿瘤不同,超过80%的PDAC病例在确诊时已处于晚期。这种晚期的临床表现,加上肿瘤生物学行为具有高度侵袭性以及对治疗显著耐药,导致其5年总生存率仅为约11%6。
KPC小鼠模型基于致癌性Kras的胰腺特异性激活以及由Cre重组酶驱动的Trp53条件性缺失,是目前最广泛使用的胰腺导管腺癌基因工程小鼠模型之一。该模型小鼠可自发形成与人类疾病高度相似的肿瘤,病理进程从胰腺上皮内瘤变(PanIN)逐步发展为侵袭性癌。尤为重要的是,该模型重现了胰腺癌的关键特征,包括致密的纤维化间质以及免疫抑制性的肿瘤微环境。从KPC小鼠中分离获得的肿瘤细胞(KPC来源细胞)提供了一种互补的 体外 保留了原始肿瘤诸多遗传和表型特征的系统,可实现对治疗反应的机制研究和受控评估7,8.
VMP1 是一种必需的自噬相关蛋白,通过与 Beclin-1 相互作用并招募 PI3KC3 复合物来启动自噬9,10。除了启动阶段外,VMP1 还参与自噬的多个阶段,包括自噬体形成10、闭合11,以及线粒体自噬12和酶原颗粒自噬(zymophagy)13等选择性过程。VMP1 在整个自噬流通过程中均发挥作用,并可能作为磷脂翻转酶(phospholipid scramblase)发挥额外功能14。在胰腺中,VMP1 的表达通常较低,但在应激条件下(如胰腺炎和癌基因转化)会强烈诱导其表达,此时它在突变型 KRAS 信号通路的下游促进自噬15,16。VMP1 在胰腺癌中呈过表达17,实验性小鼠模型表明,VMP1 依赖性自噬与 KRAS 协同作用,促进肿瘤起始及 PanIN(胰腺上皮内瘤变)的形成18。此外,VMP1 还参与化疗耐药,因为吉西他滨(gemcitabine)等药物可上调 VMP1 的表达19,从而刺激自噬19并支持肿瘤细胞存活17,凸显其促肿瘤作用15。
自噬体的特征是存在自噬相关蛋白微管相关蛋白轻链3(LC3)20。在基础状态下,LC3主要以可溶性形式(LC3-I)存在于细胞质和细胞核中。当自噬被激活时,LC3通过与磷脂酰乙醇胺共价结合而发生脂化修饰,形成膜结合形式的LC3-II1,21。尽管由于该修饰,LC3-II的分子量高于LC3-I,但在SDS-PAGE中其迁移速度更快,这可能是由于其疏水性增加所致。因此,LC3-I向LC3-II的转化反映的是脂化修饰而非蛋白水解加工过程,其中LC3-I通常在约16 kDa处被检测到,而LC3-II则在约14 kDa处被检测到。由于LC3-II的水平与自噬体的数量相关,因此LC3免疫印迹被广泛用于监测自噬活性22。因此,准确评估LC3的动态变化对于解读与自噬相关的实验结果至关重要。
本研究详细阐述了在KPC来源的胰腺癌细胞系中对经典的LC3免疫印迹实验方案进行标准化和技术优化的过程。优化尤为关键,因为LC3是一种低分子量蛋白,其LC3-I和LC3-II两种形式在电泳迁移率上仅相差约2 kDa,且LC3-II为脂化修饰的蛋白形式21,22。因此,实验操作中的微小差异均可能影响LC3的检测效果,导致结果不理想。此外,样品的物种来源也是实现最佳免疫反应性的重要考虑因素。优化后的实验方案具有足够的灵敏度,可检测到经化疗药物吉西他滨处理后以及VMP1基因敲低后LC3-II水平的升高——这两种条件分别已知可刺激自噬以及损害自噬流。最后,本文指出了两个潜在的技术陷阱,以说明其对数据质量和结果解读的影响。该实验流程的总体概述见图1。
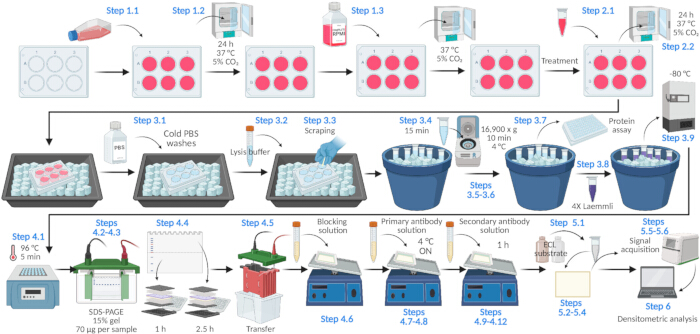
图1:KPC来源细胞中LC3免疫印迹实验方案的示意图。 本图展示了通过免疫印迹检测和定量LC3-II水平所用的实验流程。培养KPC来源的胰腺癌细胞,进行实验处理后,依次进行细胞裂解、蛋白定量、SDS–PAGE电泳、转膜、抗体检测LC3、化学发光信号采集,以及对LC3-II条带进行密度分析,并以加样对照进行归一化。该工作流程突出了可靠评估LC3动态变化所需的主要操作步骤和关键阶段。由BioRender.com制作。请点击此处查看该图的放大版本。
方案
所有涉及动物的实验操作均遵循机构指南,并经麻省总医院机构动物护理和使用委员会(IACUC)在方案编号 #2019N000111 下批准。本研究中使用的KPC来源的胰腺癌细胞系此前已在该批准方案下由Mostoslavsky实验室建立。试剂、化学品和设备信息列于材料表中。
1. 细胞准备
- 在含有10%胎牛血清、100 U/mL青霉素和100 µg/mL链霉素的RPMI 1640培养基(Roswell Park Memorial Institute medium)中,将低代次KrasG12D; Trp53f/+; p48-Cre(以下简称KPC)来源的胰腺肿瘤细胞接种于6孔板中。调整接种密度,使细胞在裂解当天达到70%–90%汇合度。
注意:每孔接种3.5 × 10⁵个细胞通常在72小时后达到约80%汇合度。由于不同实验室及KPC模型间细胞生长可能存在差异,建议在正式实验前通过实验确定最佳接种密度。
注意:为构建稳定的VMP1敲低细胞系,可使用聚乙烯亚胺(PEI)将包装质粒与相应的慢病毒载体共转染至HEK293T细胞以产生慢病毒颗粒。转染后72小时收集病毒上清液,在4 °C下以300 × g离心10分钟以去除细胞碎片,并通过0.45 µm注射器滤器过滤。将KPC细胞与收集的病毒上清液进行一轮转导。使用2.5 µg/mL嘌呤霉素(以10 mg/mL母液按1:4,000稀释)处理72小时,筛选稳定转导的细胞。 - 将细胞置于37 °C、含5%二氧化碳(CO₂)的湿润化培养箱中培养。
- 更换为新鲜培养基,并在相同条件下继续培养。
2. 使用 20 µM 吉西他滨处理
- 在裂解前一天,用RPMI培养基配制10 mM的吉西他滨溶液。每孔加入4 µL 10 mM溶液,使终浓度为20 µM。
- 将细胞在37 °C、含5%二氧化碳(CO₂)的湿润培养箱中孵育24小时。
3. 细胞裂解物
- 将培养板置于冰上,并用预冷的磷酸盐缓冲液(PBS;137 mM NaCl,2.7 mM KCl,8 mM Na₂HPO₄ 和 2 mM KH₂PO₄)洗涤三次。
- 加入 80 µL 裂解缓冲液(50 mM Tris-HCl,pH 8.0,150 mM NaCl,1% Triton X-100 和 0.1% SDS),并添加蛋白酶抑制剂。
注意:若不同孔之间的细胞融合度存在差异,应调整裂解缓冲液体积以获得相近的蛋白浓度。作为参考,每 10% 融合度使用约 10 µL 裂解缓冲液(例如,70% 融合度使用 70 µL,90% 融合度使用 90 µL)。 - 使用 P200 移液器吸头的宽端(近端),彻底刮取每个孔的整个表面,使细胞从培养表面脱离并收集到裂解缓冲液中。
- 将裂解液收集至微量离心管中,并在冰上孵育 15 分钟。
- 在 4 °C 条件下,以 16,900 × g 离心 10 分钟。
- 将上清液转移至新的洁净微量离心管中。
- 取部分裂解液用于蛋白定量,并在分析前保持在冰上。
注意:进行蛋白定量时,将 2.5 µL 裂解液加入 7.5 µL 裂解缓冲液中稀释,再与 200 µL 双辛可宁酸试剂混合。也可采用其他蛋白定量方法。 - 向裂解液中加入 4× Laemmli 上样缓冲液(250 mM Tris-HCl,pH 6.8,8% SDS,40% 甘油,0.04% 溴酚蓝和 20% β-巯基乙醇),充分混匀。对于 77.5 µL 裂解液,加入 25.8 µL Laemmli 上样缓冲液。
- 将样品储存于 −80 °C。
注意:本实验步骤可在此处暂停。样品可在 −80 °C 保存最多两周,之后进行 SDS–PAGE 分析。
4. SDS–PAGE 和蛋白质印迹
- 将样品在 96 °C 加热 5 分钟。
- 每份样品上样 70 µg 至 15% SDS–PAGE 凝胶(厚度 1.5 mm),在染料前沿进入分离胶之前以 90 V 进行电泳。使用自制的 15% 聚丙烯酰胺分离胶,其中含有 15% 丙烯酰胺/双丙烯酰胺、375 mM Tris-HCl(pH 8.8)和 0.1% SDS。
- 将电压升至 120 V,继续电泳直至染料前沿到达凝胶底部或跑出凝胶。在分子量标准蛋白的 10 kDa 标记跑出凝胶前停止电泳。
- 在约 25 kDa 处切开凝胶,分离上部和下部。
- 将蛋白转移至已用甲醇预活化的 0.2 µm PVDF 膜上,转移缓冲液(25 mM Tris 碱、192 mM 甘氨酸和 20% [v/v] 甲醇)中,下部凝胶部分(<25 kDa)以 200 mA 转移 1 小时,上部凝胶部分(>25 kDa)转移 2.5 小时。
- 在封闭缓冲液中室温轻柔振荡封闭膜 1 小时。
- 在含 0.1% Tween-20 的封闭缓冲液中配制 1:1,000 稀释的抗 LC3 一抗溶液。
注意: 抗 LC3 一抗使用 1:1,000 稀释度,抗肌动蛋白(actin)上样对照抗体使用 1:4,000 稀释度。 - 在 4 °C 下,将膜与抗 LC3 一抗在轻柔振荡条件下孵育过夜。
- 用 TBS-T(含 0.1% Tween-20 的 TBS;20 mM Tris-HCl,pH 7.6,150 mM NaCl)洗涤膜 4 次,每次 5 分钟。
- 在封闭缓冲液中配制 1:2,000 稀释的辣根过氧化物酶标记的抗兔二抗溶液。
- 将膜在室温下与二抗孵育 1 小时,同时轻柔振荡。
- 用 TBS-T 洗涤膜 4 次,每次 5 分钟。
- 用 TBS 洗涤膜 2 次。
5. 化学发光检测
- 使用前立即等体积混合试剂A(鲁米诺/增强剂溶液)和试剂B(过氧化物溶液),配制双组分增强型化学发光底物。
- 用实验室擦拭纸轻轻吸去膜上多余的液体。
- 将膜放入不透光的盒子中。
- 向膜上加入增强型化学发光溶液,盖上盒盖,孵育5分钟。
- 让多余的溶液从膜上流尽,然后将膜放入成像系统进行信号检测。
- 根据成像系统的制造商说明获取图像。
6. 使用 Fiji 进行密度分析
- 将图像文件拖放到 Fiji 窗口中以打开该文件。
- 将图像转换为 8 位灰度图像(图像 → 类型 → 8 位)。
- 如有必要,旋转图像以使条带呈水平对齐(图像 → 变换 → 旋转)。
- 启用预览功能,并将网格设置为适当的线条数量(例如,20 条)。
- 调整旋转角度,直到条带正确对齐。
- 使用矩形选区工具在第一条泳道周围定义感兴趣区域(ROI),仅包含对应于 LC3-II 的条带。
注意:选区的宽度不应超过其高度的两倍。分析中所有条带应使用相同的 ROI 尺寸。 - 选择 分析 → 凝胶 → 选择第一条泳道。
- 将同一 ROI 移动到下一个泳道,并将其定位在相应条带周围。
- 选择 分析 → 凝胶 → 选择下一个泳道。
- 重复 步骤 6.6 和 6.7,直至选中最后一个泳道。
- 生成强度分布图(分析 → 凝胶 → 绘制泳道)。
- 使用直线工具定义每个峰的基线,并使用魔棒工具量化条带强度。
- 将数值归一化至上样对照。
结果
本方案描述了在不同实验条件下,通过Western印迹法检测KPC来源的胰腺癌细胞系中LC3的动态变化。该方案可生成LC3及上样对照的化学发光图像。在本研究中,使用肌动蛋白(actin)作为上样对照。
本方案的两个代表性应用如下所示。首先,将对照组KPC细胞与吉西他滨处理的KPC细胞进行了比较。吉西他滨是一种化疗药物,既往已有报道表明其可在胰腺癌细胞中诱导自噬19。图2A展示了一张具有代表性的LC3免疫印迹图,其中以肌动蛋白(actin)作为上样对照。在Fiji软件中通过密度分析获得的定量结果如图2B所示。LC3-II水平经肌动蛋白归一化处理。在吉西他滨处理的细胞中,LC3-II水平显著增加了59%,符合自噬被诱导的结果。
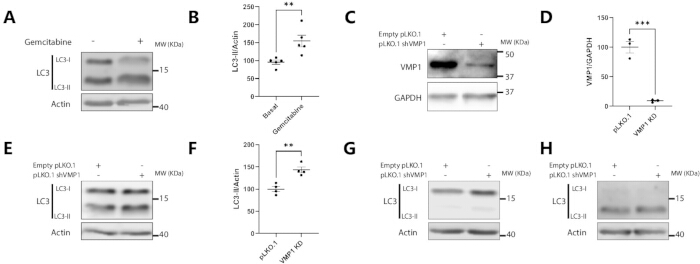
图2:KPC来源的胰腺癌细胞中LC3的免疫印迹分析:(A-B)吉西他滨的作用,(C-F)VMP1下调,以及(G-H)次优技术条件。(A–B) 基础状态及吉西他滨处理条件下LC3的水平。KPC来源的胰腺癌细胞经20 µM吉西他滨处理24小时,或不作处理。收集细胞裂解物,并对LC3和作为上样对照的肌动蛋白(actin)进行免疫标记。(A)显示LC3和肌动蛋白的代表性免疫印迹图像。(B)图表展示了LC3-II条带密度经肌动蛋白归一化后的定量结果。数据以均值±标准误(SEM)表示。**p < 0.01,采用非配对Student’s t检验。每组n = 4。(C–D)shRNA介导的VMP1敲低验证。 稳定表达空pLKO.1质粒(pLKO.1)或编码靶向小鼠VMP1序列shRNA的pLKO.1质粒(VMP1 KD)的细胞被裂解并进行分析。(C)VMP1的代表性Western印迹图像,GAPDH作为上样对照。(D)VMP1表达水平的定量结果显示,VMP1 KD细胞中VMP1表达减少约90%。数据以均值±SEM表示。***p < 0.001,采用非配对Student’s t检验。每组n=3。(E–F)VMP1下调对LC3-II累积的影响。 稳定表达空pLKO.1或shVMP1质粒的KPC来源胰腺癌细胞被裂解,并对LC3和作为上样对照的肌动蛋白进行免疫标记。(E)显示LC3和肌动蛋白的代表性免疫印迹图像。(F)图表展示了LC3-II条带密度经肌动蛋白归一化后的定量结果。数据以均值±SEM表示。**p < 0.01,采用非配对Student’s t检验。每组n = 5。(G-H)次优实验条件。 稳定表达空pLKO.1或shVMP1质粒的KPC来源胰腺癌细胞被裂解,并对LC3和作为上样对照的肌动蛋白进行免疫标记。(G)使用低去垢剂浓度裂解缓冲液制备的裂解物所获得的LC3和肌动蛋白的代表性免疫印迹图像。(H)使用不能确保与小鼠蛋白反应性的初级抗体检测LC3所获得的LC3和肌动蛋白的代表性免疫印迹图像。请点击此处查看该图的放大版本。
另一项实验使用了稳定表达空pLKO.1质粒(pLKO.1)或编码靶向小鼠VMP1序列的shRNA的pLKO.1质粒(VMP1 KD)的KPC来源胰腺癌细胞。首先验证了VMP1的有效下调。图2C展示了以GAPDH作为上样对照的代表性VMP1免疫印迹结果,图2D显示VMP1 KD细胞中VMP1表达量减少了90%。随后在这些细胞中检测了LC3-II水平。由于VMP1是自噬体形成所必需的,预期会出现LC3-II的积累。尽管VMP1的下调并不影响LC3-I向LC3-II的转化,但会损害自噬体的形成及其后续的 cargo 降解,从而导致LC3-II的积累11,15。图2E展示了代表性的LC3和肌动蛋白(actin)免疫印迹结果,图2F展示了LC3-II/肌动蛋白比值的定量分析。与pLKO.1对照组相比,VMP1 KD细胞中LC3-II水平显著增加了43%。
这些结果表明,该方案能够在源自KPC的胰腺癌细胞模型中实现对LC3-II水平的可靠检测与定量。然而,对方案的微小偏离可能导致结果不理想。
由于LC3-II是LC3的脂化形式,因此高效的提取需要使用含有适当浓度去垢剂的裂解缓冲液。 图 2G 显示来自上述相同实验模型的代表性 LC3 和肌动蛋白免疫印迹结果 图2E–F (pLKO.1 与 VMP1 沉默组),但使用低浓度去垢剂的裂解缓冲液(50 mM Tris-HCl,pH 7.4,250 mM NaCl,25 mM NaF,2 mM EDTA 和 0.1% Triton X-100)。尽管肌动蛋白信号仍可接受,但 LC3 信号不理想。仅 LC3-I 条带清晰可见,而 LC3-II 条带几乎无法检测到,且相对于 LC3-I 明显减少。
LC3 免疫印迹中的另一个重要变量是初级抗体的选择。使用在本实验体系中能够实现强效 LC3 检测的初级抗体,获得了 图 2A、2B、2E、2F 和 2G 所示的免疫印迹结果。相比之下,图 2H 显示的是使用另一种初级抗体获得的 LC3 免疫印迹,其结果不理想。在此条件下,LC3-I 几乎无法检测到,而 LC3-II 信号也明显弱于前述实验中所用抗体获得的信号。
讨论
本文介绍了在KPC来源的胰腺癌细胞中对经典LC3免疫印迹实验方案进行的技术优化与标准化。鉴于自噬及自噬相关蛋白在胰腺癌发生与发展过程中日益受到重视的作用23,该标准化流程为监测LC3动态变化提供了可靠的方法。该方案可用于在多种实验条件下评估自噬体池的变化,包括化疗、氧化应激、缺氧、内质网应激以及基因操作(如基因过表达、敲低、敲除或突变)。除了检测LC3动态外,该方案还可进行调整,用于研究LC3与目的蛋白之间的直接或间接相互作用。例如,可利用本流程对目标蛋白进行免疫沉淀,随后在洗脱液中检测LC3。此外,LC3免疫印迹还可应用于分泌性自噬背景下细胞外囊泡的分析,这一新兴领域在胰腺导管腺癌研究中正变得越来越重要24,25。
如图2G–H所示,多个关键步骤必须严格控制,因为微小的偏差可能导致结果不理想。其中最重要的考虑因素之一是裂解缓冲液的组成。有效提取LC3-II需要使用去污剂浓度相对较高的缓冲液,例如RIPA缓冲液或类似配方。而常用于免疫共沉淀实验以维持蛋白质-蛋白质相互作用的低去污剂含量缓冲液,可能无法充分溶解LC3-II。在此类条件下,LC3-I可能仍可被检测到,而LC3-II则难以甚至无法检测,从而影响数据的解读。
另一个关键因素是选择已针对所研究实验体系验证过的初级抗体。本文所展示的技术评估仅限于同一制造商的两种抗体之间的比较,尚不构成对多个克隆或供应商的全面验证。尽管如此,研究结果说明了抗体性能在不同实验体系之间可能存在显著差异。尽管从此次有限的比较中无法得出关于物种特异性的明确结论,但在此模型中评估的替代抗体表现欠佳,突显了进行实证验证的重要性,而非依赖预测的交叉反应性。根据制造商的产品说明书,该抗体已验证适用于人源样本,而对小鼠的反应性则是基于序列同源性预测得出的。尽管在小鼠细胞中观察到微弱的LC3信号(图2H),但同一抗体此前在大鼠胰腺组织及大鼠来源的AR42J细胞中未能产生可检测信号(数据未显示)。这些观察结果进一步强调了在特定生物学模型中验证抗体性能的重要性。
需要优化的其他参数包括凝胶组成和电泳条件。当电泳进行至染料前沿到达凝胶底部、且10 kDa分子量标记物尚未迁移出凝胶时终止电泳,此时15%的分离胶可实现LC3-I与LC3-II的良好分离。相比之下,较低浓度的凝胶(如7%凝胶)则无法提供足够的分辨率。转移条件同样重要,因为LC3是一种低分子量蛋白。转移时间或电流不足会降低转移效率,而转移时间或电流过大则可能导致蛋白穿过膜而丢失。使用孔径较大的膜可能会进一步增加这种风险。
该实验方案可进行若干修改。在收集细胞时,可使用市售的细胞刮刀替代P200移液器吸头。样品可在裂解后立即进行处理,而不必冷冻,但需保持在冰上。也可使用 commercially available 聚丙烯酰胺凝胶,包括4–20%的梯度凝胶。可使用其他封闭试剂,如实验室级脱脂奶粉或含1% BSA的TBS-T缓冲液,以替代此处所述的封闭溶液。同样,也可使用其他抗体孵育缓冲液,但需注意:若溶液中含有辣根过氧化物酶标记的二抗,则不得添加叠氮化钠,因其会抑制过氧化物酶活性。
该方案也可适用于其他实验体系,包括来源于不同组织的细胞系和组织裂解物。然而,由于该实验流程主要在KPC来源的胰腺癌细胞中进行了优化,因此在更广泛的应用中应谨慎考虑。细胞类型、基础自噬水平、蛋白质表达谱以及样本组成的差异可能会显著影响LC3的检测结果。因此,将其应用于其他体系时,可能需要进一步优化,并且必须始终验证抗体与所研究物种的兼容性。
还必须强调LC3免疫印迹的一个基本局限性。仅凭LC3-II的累积不足以明确判断自噬状态,也无法区分自噬诱导增强与自噬体清除受损这两种情况。尽管LC3-II在自噬诱导过程中生成,但它也会在溶酶体中被降解,这是自噬过程的一部分。因此,自噬增强以及LC3结合后阶段的自噬流受阻均可能导致LC3-II的累积26。
这一局限性可通过 图2A、B 和 图2E、F 所示的实验加以说明,在这些实验中,不同生物学条件下均观察到 LC3-II 水平升高。在吉西他滨处理的细胞中,LC3-II 的积累反映了自噬的活跃诱导,这与 VMP1 表达增加以及 LC3-I 向 LC3-II 的转化增强相关11,19。相比之下,VMP1 沉默会损害自噬体的成熟与清除。在此情况下,LC3 脂化过程保持完整,但由于自噬流受损,LC3-II 的降解受阻,导致尽管自噬进程受抑,仍出现 LC3-II 的积累22。由于仅通过 LC3 免疫印迹无法区分这两种不同的生物学状态,因此需要采用 SQSTM1/p62 分析和溶酶体抑制实验等互补方法,以严格评估自噬流26。
与这些互补方法结合使用时,LC3 免疫印迹仍然是监测自噬最易行且信息量最丰富的方法之一。其他替代技术也存在局限性。通过免疫荧光定量 LC3 斑点27无法可靠区分自噬增强与自噬流受损,且可能难以标准化和自动化。然而,免疫荧光所需生物样本量较少,因此在临床样本有限的情况下(如人类活检组织)可能更具优势。此外,LC3 免疫印迹无需基于转染的报告系统,从而避免了蛋白过表达相关的人为假象。最后,常规流式细胞术缺乏足够的分辨率以区分 LC3-I 与 LC3-II,限制了其在评估自噬活性方面的应用价值。
披露
作者声明无利益冲突。
致谢
本研究由以下机构资助:阿根廷国家科学与技术研究委员会 (CONICET) [PIP 2021–2023 GI-11220200101549CO]、国家研究、技术发展与创新促进署 (Agencia I+D+i) [PICT-2021-I-A-00328]、布宜诺斯艾利斯大学 [UBACyT 2023–2025, 20020220300232BA] 以及布宜诺斯艾利斯市 Norberto Quirno 基金会。
作者诚挚感谢 The Company of Biologists 通过“疾病模型”颁发的旅行奖学金提供的资金支持。 &;机制。这项支持为资助访问所产生的工作做出了贡献。有关该慈善机构的更多信息,请访问 https://www.biologists.com/。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| C-DiGit 蛋白印迹扫描仪 | LI-COR BioScience | 3600 | 用于第 5.6 步中的化学发光检测 |
| 10x 磷酸盐缓冲液(PBS) | Corning | 46-013-CM | 用于在第 1.1 步传代前制备无菌的 1x PBS 以洗涤细胞 |
| 2-巯基乙醇(β-mercaptoethanol) | Sigma-Aldrich (Merck) | M3148 | 用于在第 3.8 步中制备 4× Laemmli 样品缓冲液,用于 SDS-PAGE 样品制备 |
| 3D 摇床 | DLAB | SK-D1807-E | 用于在封闭、一抗和二抗孵育以及洗涤步骤中孵育膜(第 4.6、4.8、4.9、4.11、4.12 和 4.13 步) |
| 6 孔细胞培养板 | SORFA | SCP-11-006 | 用于在第 1.1 步中接种细胞 |
| 丙烯酰胺 | Sigma-Aldrich (Merck) | A8887 | 用于制备第 4.2–4.5 步所需的 15% SDS-PAGE 凝胶 |
| 抗甘油醛-3-磷酸脱氢酶,小鼠单克隆抗体,克隆号 6C5 | Merck Millipore | MAB374 | RRID:AB_2107445 反应性: 人、猫、猪、小鼠、兔、鱼、犬、大鼠。用作上样对照以评估基因敲低效率(图 2C 和 2D) |
| 抗小鼠 IgG,HRP 标记抗体 | Cell Signaling Technology | 7076 | RRID: AB_330924。用于在第 4.10 步中制备二抗溶液 |
| 抗兔 IgG,HRP 标记抗体 | Cell Signaling Technology | 7074 | RRID: AB_2099233。用于在第 4.10 步中制备二抗溶液 |
| 抗β-肌动蛋白(ACTB)抗体,小鼠单克隆,AC-15 | Sigma-Aldrich (Merck) | A1978 | RRID:AB_476744 反应性:绵羊、鲤鱼、猫、鸡、大鼠、小鼠、医用水蛭、兔、犬、猪、人、牛、豚鼠。用作上样对照(图 2A、2B、2E、2F、2G 和 2H) |
| 溴酚蓝 | Sigma-Aldrich (Merck) | B0126 | 用于在第 3.8 步中制备 4× Laemmli 样品缓冲液,用于 SDS-PAGE 样品制备 |
| 乙二胺四乙酸(EDTA) | Sigma-Aldrich (Merck) | E9884 | 用于制备低去污剂裂解缓冲液(图 2G 和 2H) |
| 胎牛血清 | NATOCOR | Lintc-634 | 用于制备完全培养基以培养细胞(第 1 和第 2 步) |
| Fiji | 开源软件 | N/A | 图像分析软件 |
| 甘油 | Sigma-Aldrich (Merck) | G5516 | 用于在第 3.8 步中制备 4× Laemmli 样品缓冲液,用于 SDS-PAGE 样品制备 |
| 甘氨酸 | Sigma-Aldrich (Merck) | G7126 | 用于在第 4.5 步中制备转膜缓冲液 |
| Immun-Blot PVDF 膜,卷装,0.2 µm,26 cm x 3.3 m | Bio-Rad | 1620177 | 用于第 4.5 步中的转膜 |
| Intercept(TBS)封闭缓冲液 | LI-COR BioScience | 927-60001 | 用于第 4.6 步的封闭,以及第 4.7 和 4.10 步中一抗和二抗溶液的制备 |
| LC3 A/B (D3U4C) 兔单克隆抗体 | Cell Signaling Technology | 12741 | RRID: AB_2617131 反应性: 人、小鼠、兔。用于在第 4.7 步中制备一抗溶液 |
| LC3B (D11) 兔单克隆抗体 | Cell Signaling Technology | 3868S | RRID: AB_2137707 反应性:人。用作图 2H 中的 LC3 一抗 |
| 甲醇 | Anedra | 6197 | 用于在第 4.5 步中活化 PVDF 膜并制备转膜缓冲液 |
| Millex-HV 针式滤器,0.45 μm PVDF | Merck Millipore | SLHV033RS | 用于过滤含慢病毒的培养基(第 1.1 步) |
| 迷你数字干浴器 | Labnet International, Inc. | D 5060075 | 用于在第 4.1 步中加热样品 |
| Mini-PROTEAN Tetra 电泳系统 | Bio-Rad | 1658025FC | 用于第 4.2、4.3 和 4.5 步中的 SDS-PAGE 和转膜 |
| MISSION 靶向小鼠 Vmp1 的 shRNA(TRCN0000279038) | Sigma-Aldrich (Merck) | SHCLND-NM_029478 | 用于生成稳定的 VMP1 基因敲低细胞系(第 1.1 步) |
| N,N'-亚甲基双丙烯酰胺(双丙烯酰胺) | Sigma-Aldrich (Merck) | M7279 | 用于制备第 4.2–4.5 步所需的 15% SDS-PAGE 凝胶 |
| Nabigem 1g 吉西他滨 | Microsules Argentina | M3060584-3 | 用于第 2 步中的吉西他滨处理 |
| 青霉素-链霉素溶液(Pen-Strep Solution) | Sartorius | 03-031-1B | 用于制备完全培养基以培养细胞(第 1 和第 2 步) |
| Pierce BCA 蛋白定量试剂盒 | Thermo Fisher Scientific | 23227 | 用于蛋白定量(第 3.7 步) |
| Pierce 蛋白酶抑制剂片剂 | Thermo Fisher Scientific | A32953 | 用于在第 3.2 步中制备裂解缓冲液 |
| 聚乙烯亚胺盐酸盐 MAX,线性(PEI MAX),分子量 40,000 | Polysciences | 24765-1 | 用于慢病毒质粒的转染(第 1.1 步) |
| 氯化钾(KCl) | Sigma-Aldrich (Merck) | P9333 | 用于在第 3.1 步中制备 PBS |
| 磷酸二氢钾(KH2PO4) | Sigma-Aldrich (Merck) | P5655 | 用于在第 3.1 步中制备 PBS |
| PowerPac Basic 电源 | Bio-Rad | 1645050 | 用于第 4.2、4.3 和 4.5 步中的 SDS-PAGE 和转膜 |
| 预染蛋白 Ladder | Genbiotech | PM201 | 用于第 4.2 - 4.4 步中的 SDS-PAGE |
| 嘌呤霉素(10 mg/mL 溶液) | InvivoGen | ant-pr-1 | 用于稳定转导细胞的筛选(第 1.1 步) |
| RPMI 1640 | Genbiotech | MC2012L | 用于制备完全培养基以培养细胞(第 1 和第 2 步) |
| 氯化钠(NaCl) | Sigma-Aldrich (Merck) | S9888 | 用于在第 3.1 步中制备 PBS,在第 3.2 步中制备裂解缓冲液,以及在第 4.9 步中制备 TBS |
| 十二烷基硫酸钠(SDS) | Sigma-Aldrich (Merck) | L3771 | 用于在第 3.2 步中制备裂解缓冲液,以及制备第 4.2–4.5 步所需的 15% SDS-PAGE 凝胶 |
| 氟化钠(NaF) | Sigma-Aldrich (Merck) | S7920 | 用于制备低去污剂裂解缓冲液(图 2G 和 2H) |
| 磷酸氢二钠(Na2HPO4) | Sigma-Aldrich (Merck) | S9763 | 用于在第 3.1 步中制备 PBS |
| Sorval ST 16R 离心机 | Thermo Fisher Scientific | 75004380 | 用于在第 1.1 步中离心细胞,在第 3.5 步中离心裂解物 |
| SuperSignal West Pico PLUS 化学发光底物 | Thermo Fisher Scientific | 34577 | 用于第 5.1 步中的化学发光检测 |
| Thermo Scientific 1300 系列 A2 级 II 型 A2 生物安全柜 | Thermo Fisher Scientific | 1386 | 用于第 1.1、1.3 和 2.1 步中的无菌细胞培养操作 |
| Thermo Scientific BB 150 CO2 培养箱 | Thermo Fisher Scientific | BB150-2TCS-L | 用于第 1.2 和 2.2 步中的细胞培养 |
| TMEM49/VMP1 (D1Y3E) 兔单克隆抗体 | Cell Signaling Technology | 12929 | RRID: AB_2714018 反应性:人、小鼠、大鼠。用作一抗以验证图 2C 和 2D 中的 VMP1 基因敲低效率 |
| Tris 碱 | Sigma-Aldrich (Merck) | T1503 | 用于在第 4.5 步中制备转膜缓冲液 |
| Tris 盐酸盐(Tris-HCl) | Sigma-Aldrich (Merck) | T3253 | 用于在第 3.2 步中制备裂解缓冲液,在第 3.8 步中制备 4× Laemmli 样品缓冲液,制备第 4.2–4.5 步所需的 15% SDS-PAGE 凝胶,以及在第 4.9 步中制备 TBS |
| 吐温 X-100 | Sigma-Aldrich (Merck) | T8787 | 用于在第 3.2 步中制备裂解缓冲液 |
| 胰蛋白酶 EDTA | Gibco | 11570626 | 用于在第 1.1 步中传代细胞 |
参考文献
- Grasso D, Renna FJ, Vaccaro MI. Initial steps in mammalian autophagosome biogenesis. Front Cell Dev Biol. 2018;6:146.
- Galluzzi L, et al. Molecular definitions of autophagy and related processes. EMBO J. 2017;36(13):1811–1836.
- Wang Q, Sun Y, Li TY, Auwerx J. Mitophagy in the pathogenesis and management of disease. Cell Res. 2026;36(1):11–37.
- Debnath J, Gammoh N, Ryan KM. Autophagy and autophagy-related pathways in cancer. Nat Rev Mol Cell Biol. 2023;24(8):560–575.
- Altalbawy FMA, et al. Deciphering autophagy signaling in cancer: A paradigm shift from molecular classifications to clinical innovations. Semin Oncol. 2025;52(5):152397.
- Stoffel EM, Brand RE, Goggins M. Pancreatic cancer: Changing epidemiology and new approaches to risk assessment, early detection, and prevention. Gastroenterology. 2023;164(5):752–765.
- Kugel S, et al. SIRT6 suppresses pancreatic cancer through control of Lin28b. Cell. 2016;165(6):1401–1415.
- Hingorani SR, et al. Trp53R172H and KrasG12D cooperate to promote chromosomal instability and widely metastatic pancreatic ductal adenocarcinoma in mice. Cancer Cell. 2005;7(5):469–483.
- Molejon MI, Ropolo A, Re AL, Boggio V, Vaccaro MI. The VMP1-Beclin 1 interaction regulates autophagy induction. Sci Rep. 2013;3:1055.
- Ropolo A, et al. The pancreatitis-induced vacuole membrane protein 1 triggers autophagy in mammalian cells. J Biol Chem. 2007;282(51):37124–37133.
- Zhao YG, et al. The ER-localized transmembrane protein EPG-3/VMP1 regulates SERCA activity to control ER-isolation membrane contacts for autophagosome formation. Mol Cell. 2017;67(6):974–989.e6.
- Vanasco V, Ropolo A, Grasso D, Alvarez S, Vaccaro MI. VMP1-dependent selective mitophagy and mitochondrial fragmentation are protective cellular mechanisms in pancreatitis. Pancreatology. 2018;18(4 Suppl):S86–S87.
- Grasso D, et al. Zymophagy, a novel selective autophagy pathway mediated by VMP1-USP9x-p62, prevents pancreatic cell death. J Biol Chem. 2011;286(10):8308–8324.
- Ghanbarpour A, Valverde DP, Melia TJ, Reinisch KM. A model for a partnership of lipid transfer proteins and scramblases in membrane expansion and organelle biogenesis. Proc Natl Acad Sci U S A. 2021;118(16):e2101562118.
- Renna FJ, Gonzalez CD, Vaccaro MI. Decoding the versatile landscape of autophagic protein VMP1 in cancer: A comprehensive review across tissue types and regulatory mechanisms. Int J Mol Sci. 2024;25(7):3758.
- Lo Ré AE, et al. Novel AKT1-GLI3-VMP1 pathway mediates KRAS oncogene-induced autophagy in cancer cells. J Biol Chem. 2012;287(30):25325–25334.
- Gilabert M, et al. Novel role of VMP1 as modifier of the pancreatic tumor cell response to chemotherapeutic drugs. J Cell Physiol. 2013;228(9):1834–1843.
- Loncle C, et al. The pancreatitis-associated protein VMP1, a key regulator of inducible autophagy, promotes Kras(G12D)-mediated pancreatic cancer initiation. Cell Death Dis. 2016;7(7):e2295.
- Ropolo A, et al. A novel E2F1-EP300-VMP1 pathway mediates gemcitabine-induced autophagy in pancreatic cancer cells carrying oncogenic KRAS. Front Endocrinol (Lausanne). 2020;11:411.
- Tanida I, Ueno T, Kominami E. LC3 and autophagy. Methods Mol Biol. 2008;445:77–88.
- Kabeya Y, et al. LC3, a mammalian homologue of yeast Apg8p, is localized in autophagosome membranes after processing. EMBO J. 2000;19(21):5720–5728.
- Mizushima N, Yoshimori T. How to interpret LC3 immunoblotting. Autophagy. 2007;3(6):542–545.
- Li J, Chen X, Kang R, Zeh HJ, Klionsky DJ, Tang D. Regulation and function of autophagy in pancreatic cancer. Autophagy. 2021;17(11):3275–3296.
- Moresco P, et al. Signal peptide-independent secretion of keratin-19 by pancreatic cancer cells. Proc Natl Acad Sci U S A. 2025;122(27):e2426218122.
- Gonzalez CD, Resnik R, Vaccaro MI. Secretory autophagy and its relevance in metabolic and degenerative disease. Front Endocrinol (Lausanne). 2020;11:266.
- Klionsky DJ, et al. Guidelines for the use and interpretation of assays for monitoring autophagy (4th edition). Autophagy. 2021;17(1):1–382.
- Renna FJ, Herrera Lopez M, Manifava M, Ktistakis NT, Vaccaro MI. Evaluating autophagy levels in two different pancreatic cell models using LC3 immunofluorescence. J Vis Exp. 2023;(194):e65005. doi:10.3791/65005.
重印与许可
本文已发表
视频即将推出