利用离体(ex vivo)组织块模型,将瘦小鼠内脏白色脂肪组织前部的小块组织进行培养,持续7–10天,从而诱导并研究在高脂饮食喂养过程中发生的脂肪组织炎症。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
本方案描述了一种 离体 能够重现高脂饮食(HFD)喂养后内脏脂肪组织(VAT)中观察到的部分细胞和炎症特征的小鼠模型,且无需进行饮食干预 体内来自瘦型小鼠的小块内脏脂肪组织(VAT)外植体在体外培养7–10天,期间会自发形成一种炎症表型,该表型与高脂饮食(HFD)喂养动物的VAT炎症高度相似。重要的是,该模型保留了脂肪组织(AT)的结构完整性,从而可在具有生理相关性的背景下研究炎症过程。在培养过程中,与肥胖相关的炎症关键特征逐渐显现,包括冠状样结构(CLS)的形成、代谢激活型巨噬细胞(MMes)的聚集以及炎症细胞因子产生增加。尽管存在脂肪细胞死亡现象,但其他驱动肥胖相关炎症的因素,如饱和脂肪酸等代谢应激源、脂质代谢紊乱、葡萄糖过量、氧化应激、缺氧、脂肪因子失衡以及脂肪细胞与免疫细胞之间的旁分泌信号交流,在该模型中亦可得到部分再现。该体系支持多种下游应用,包括活细胞成像、流式细胞术、定量PCR、ELISA、免疫染色以及批量或单细胞RNA测序。此外,可施加药物学处理或细胞因子干预,以研究特定信号通路及不同细胞类型的特异性反应。该模型易于定制,符合3R原则,有助于减少实验动物的使用 体内 饮食研究。该模型可重复、成本低且易于实施,为研究脂肪细胞死亡、免疫细胞动态变化以及脂肪组织炎症中的治疗策略提供了一个多功能平台。
引言
脂肪组织(AT)是一种具有代谢活性的器官,在人体中约由20%的脂肪细胞和多种异质性的免疫细胞、成纤维细胞、前体细胞及血管细胞组成1。脂肪组织可分为单房性的白色脂肪组织(WAT)、多房性的棕色脂肪组织(BAT)以及中间型的米色脂肪组织,反映了其在组成、功能和解剖位置上的异质性。WAT分布于皮下(SCAT)、内脏(VAT)、血管周围及骨髓脂肪库中,这些部位在发育起源、基因表达谱和代谢功能上各不相同。除了脂质储存功能外,脂肪组织还作为内分泌器官,分泌多种细胞因子、激素和脂肪因子2。与SCAT相比,VAT代谢活性更高,并富集更多炎症细胞,因此在脂肪组织炎症及2型糖尿病等代谢性疾病的研究中尤为重要3,4,5。
脂肪组织(AT)是代谢健康的关键调节因子,在肥胖症中发挥核心作用,而肥胖症与多种共病密切相关。肥胖会促进脂肪细胞的肥大、增生和增殖6,而脂肪组织的扩张和炎症与高血糖、高胰岛素血症、高甘油三酯血症以及葡萄糖耐受受损密切相关3。脂肪组织扩张被认为伴随着脂肪细胞死亡的增加,每年约有10%的细胞更替率7,从而触发巨噬细胞的募集,后者对组织清除和重塑至关重要8。由于脂肪细胞体积显著大于巨噬细胞(100–200 µm),这些体积约为其五分之一的巨噬细胞在有效吞噬时面临挑战,从而损害组织稳态并促进脂肪组织慢性炎症9。脂肪组织巨噬细胞(ATMs)通过两种机制清除体积过大的凋亡脂肪细胞:一是融合形成多核巨细胞(MGCs),二是围绕死亡脂肪细胞形成冠状结构(CLS),并通过溶酶体外排作用降解它们10,11,12。冠状结构(CLS)的数量与肥胖相关的炎症程度呈正相关11,13。
在健康的脂肪组织中,脂肪组织巨噬细胞(ATMs)主要为抗炎性的M2样巨噬细胞,而肥胖则促进其向促炎性的M1样表型转变14,15。此外,还会出现其他机制上 distinct 的巨噬细胞亚群,包括代谢活化巨噬细胞(MMes)和脂质相关巨噬细胞(LAMs),它们通过溶酶体外排作用在清除死亡脂肪细胞过程中发挥重要作用16,17,18。
为了在具有生理相关性的多细胞环境中研究脂肪组织(AT)炎症,本方案建立了一种基于瘦小鼠内脏脂肪组织(VAT)的器官型外植体培养的离体(ex vivo)小鼠模型。将VAT外植体培养7–10天后,其炎症表型可与高脂饮食(HFD)喂养至少12周后所观察到的表型相媲美,具体体现在冠状结构(CLS)形成、巨噬细胞表型以及炎症细胞因子产生等方面9,19。重要的是,该方法减少了实验动物的使用,无需进行饮食干预的审批程序,并通过减少对长期饮食干预研究的依赖,符合动物实验的“3R”原则。与传统的二维(2D)细胞培养系统(如3T3-L1细胞或原代脂肪细胞培养)相比,该方法保留了组织的复杂性和细胞多样性,从而能够研究生理状态下的细胞间相互作用,包括免疫细胞与脂肪细胞之间的相互作用。
培养的脂肪组织外植体适用于多种分析方法。活体共聚焦成像可实现对脂肪组织巨噬细胞(ATM)积聚、冠状结构(CLS)形成以及多核巨细胞(MGC)形成的动态监测9,19。通过胶原酶消化可分离基质血管组分(SVF),用于流式细胞术分析,包括细胞增殖检测以及M1样、M2样或MMe表型的鉴定12。可在整个外植体、SVF细胞或分选后的巨噬细胞上进行基因表达分析,包括定量PCR(qPCR)和RNA测序9。蛋白表达水平和酶活性可通过Western blot或ELISA进行评估12,20,21,而组织结构和标志物表达则可通过整体染色和免疫荧光技术进行可视化观察9,22。此外,药理学和遗传学干预手段,包括ATM耗竭和细胞因子处理,均可便捷实施21,23,24。
总之,这一 离体 类似高脂饮食诱导的脂肪组织炎症的小鼠模型可用于研究脂肪细胞死亡机制 原位 细胞行为的观察,以及与AT免疫学相关的药理学或遗传学操作(图1).
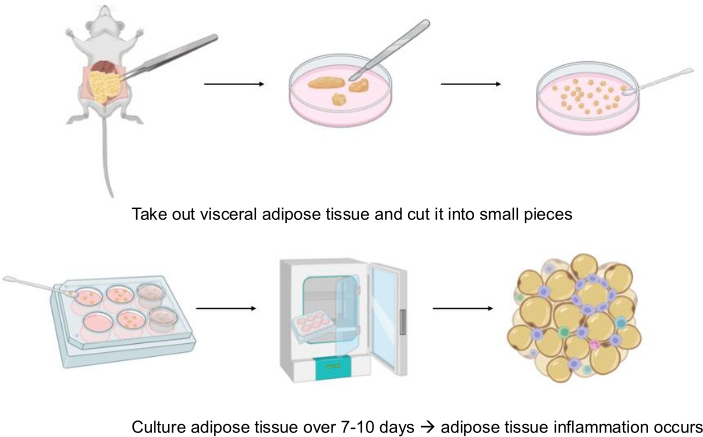
图1:实验流程的图示摘要。 从小鼠中分离内脏脂肪组织(AT),切成小块外植体,并培养7–10天。在培养期间,外植体发展出炎症表型,从而可在受控的离体(ex vivo)条件下研究脂肪组织炎症。 请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
动物实验遵循机构和国家指南进行,并已获得相应监管机构的批准。代表性显微镜实验使用了 Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomato 小鼠(“MacFat”,RRID: Csf1r-eGFP: RRID:IMSR_JAX:018549,Adipoq-iCreERT2: RRID:IMSR_JAX:025124,CAG-tdTomato: RRID:IMSR_JAX:007914)27,28。该报告基因小鼠品系可通过 GFP 表达可视化巨噬细胞,通过 tdTomato 表达可视化脂肪细胞。由于脂肪细胞死亡后 tdTomato 表达会丢失,因此可在培养过程中监测脂肪细胞的存活状态。巨噬细胞的可视化及流式细胞术分析使用了 Csf1r-eGFP 报告基因小鼠(“MacGreen”,RRID:IMSR_JAX:018549)28。非成像实验(包括单细胞 RNA 测序和定量 PCR 分析)使用了 C57BL/6J 小鼠(RRID:IMSR_JAX:000664)。所有转基因品系均以杂合子形式维持在 C57BL/6J 遗传背景上。
动物实验遵循《实验动物护理原则》(NIH出版物第85-23号,1985年修订版)以及相关国家法律,并已获得德国萨克森州莱比锡地方管理局(Landesdirektion Leipzig,德国)的批准(动物实验申请编号:TV11-21-MEZ)。根据当地主管部门的规定,所描述的实验不构成动物实验,因为依据《动物福利法》(TierSchG)第7(2)条,“若脊椎动物仅因科学目的而被处死以获取其器官或组织,则不属于动物实验范畴,而应视为依据《动物福利法》(TierSchG)第4(3)条进行的处死。” 动物的处死须在“动物报告”中予以申报,该报告已包含在动物实验申请文件中。莱比锡大学医学院伦理委员会亦已批准本研究项目。根据动物实验申请TV11-21-MEZ的指导要求,小鼠通过吸入麻醉剂异氟烷过量实施安乐死。有效气体浓度为5%异氟烷,以O₂为载气输送 通过 异氟烷挥发器。当确认出现明确的循环停止(呼吸停止[羽毛测试]和心跳停止[触诊])时,安乐死程序即告完成。
小鼠饲养于莱比锡大学温度受控(22 ± 2 °C)、无特定病原体的环境中,以每笼3–5只的同胞组形式饲养,并维持12小时光照/12小时黑暗的循环。动物可自由饮水并饲喂标准维持饲料(9% kcal脂肪;Sniff GmbH,德国)。代表性实验使用雄性和雌性小鼠进行。本实验方案中所用的试剂、化学品和试剂盒列于材料表中。
1. 准备工作
- 准备试剂和设备
- 在无菌条件下配制培养基,向 RPMI-1640 中添加 10% 胎牛血清(FBS)和 1% 抗生素溶液。
- 将培养基和无菌 PBS 预热至 37 °C。
- 使用 70% 乙醇清洁组织培养罩内的所有设备和工作区域。
- 准备动物
- 根据机构指南处死小鼠,可选择性地称量动物体重。
- 将动物放入盛有 70% 乙醇的玻璃烧杯中。
- 用乙醇擦拭玻璃烧杯外壁,并将其转移至组织培养罩内。
2. 脂肪组织分离(图2)
- 准备小鼠
- 使用钝头镊子将小鼠置于玻璃培养皿中呈仰卧位,或将其固定在解剖板上。
- 在培养皿中加入一层预热的磷酸盐缓冲液(PBS)。
- 更换一副新的手套。
- 用镊子提起下腹部皮肤,用剪刀做一小的横向切口,以打开腹腔。
- 从初始切口处做一条垂直切口(约2 cm,从尾侧向头侧延伸),以暴露内脏器官。
- 分离脂肪垫
- 使用小型锐利剪刀和尖头镊子,定位并切除白色脂肪组织。使用单独的一套器械以防止污染。
- 雄性小鼠:性腺脂肪仅附着于附睾和睾丸。小心提起脂肪垫,在附睾上方剪断,或连同附睾和睾丸一起切除性腺脂肪,之后再将其去除。
- 雌性小鼠:性腺脂肪附着于子宫角和卵巢,且比雄性更明显。小心提起脂肪垫,沿子宫角和卵巢进行切除。
- 将分离的脂肪垫放入盛有PBS的培养皿中。
- 使用刀片去除残留的附睾、睾丸、卵巢或血管。
- 将清理后的脂肪垫转移至第二个含有预热PBS的培养皿中。可选择性称量脂肪垫质量。
注意: 在培养前称量脂肪垫质量,可实现不同实验条件下组织质量的归一化处理。
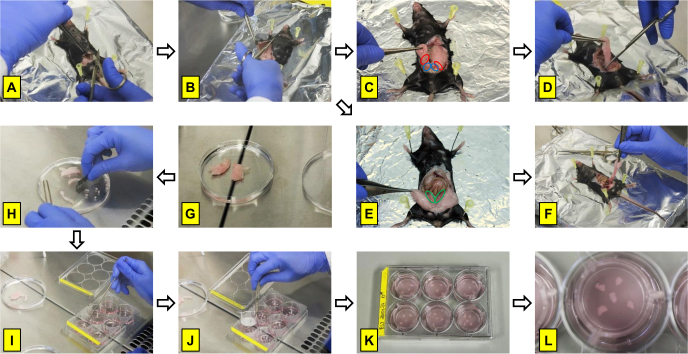
图2: 内脏脂肪组织外植体的分离与培养 (A,B) 打开腹腔并暴露内脏脂肪组织。 (C,D从雄性小鼠中分离附睾脂肪组织,脂肪附着于附睾(红圈)和睾丸(蓝圈)。E,F) 分离雌性小鼠的性腺脂肪组织,脂肪附着于子宫角(绿色圆圈)和卵巢。G,H脂肪组织外植体的制备与修剪。I, J) 将外植体转移至培养板孔中,并放置细胞培养插件。K, L6孔板培养过程中组织块的代表性图像。 请点击此处以查看此图的放大版本。
3. 组织块的制备与培养
- 准备外植体
注意:剃刀刀片锋利,可能造成伤害。请小心操作,并按照机构安全规程处理刀片。- 使用剃刀刀片将脂肪垫切成条状,再切成约10 mm3的立方体(每个外植体约10 mg)。
- 建立外植体培养
- 向6孔板的每孔中加入1–1.5 mL培养基。
注意:为实现标准化,每1 mL培养基使用约50 mg脂肪组织。 - 使用无菌勺子或刮铲将五个外植体转移至每孔中。
- 将外植体均匀地排列成圆形。
- 使用无菌镊子将细胞培养插件覆盖在外植体上。
注意:放置插件时避免引入气泡,并确保外植体位于其中心位置。 - 将外植体在37 °C、5% CO₂和21% O₂条件下培养7–10天。
注意:使用预热的PBS和培养基以提高组织活性。操作应迅速,尽量减少脂肪垫在培养箱外的时间。避免小鼠毛发污染。若毛发附着于组织上,应将其去除,并用温热的PBS冲洗组织。
- 向6孔板的每孔中加入1–1.5 mL培养基。
4. 下游分析
- 经过7–10天的培养后,收集外植体、基质血管组分细胞或培养上清液,用于后续分析,包括显微镜检查、流式细胞术、定量PCR、酶联免疫吸附测定或RNA测序,具体根据实验终点需求而定。
5. 统计学分析
- 使用 GraphPad Prism 10.2 进行统计分析。采用 ROUT 检验(Q = 1%)筛查数据集中的离群值,并采用 Shapiro–Wilk 检验评估数据正态性(α = 0.05)。
- 根据数据特征,选择配对 Student's t 检验或 Wilcoxon 配对符号秩检验进行两组间比较。多组间比较采用单因素方差分析(one-way ANOVA),随后进行 Dunnett's 事后检验。以 p < 0.05 为差异具有统计学意义的标准。
- 数据以均值 ± 标准误(SEM)表示。除非另有说明,n 表示生物学重复次数(即独立小鼠数量)。
访问受限。请登录或开始试用以查看此内容。
结果
在整个培养期间,组织的总体活力均得以维持,并通过多种互补的方法进行监测。可使用共聚焦显微镜结合活力染料(如Calcein25)、针对Perilipin的抗体染色以评估脂肪细胞膜完整性17,26,或脂肪细胞中转基因报告蛋白的表达来评估组织活力。在体外培养中,组织的活性与完整性可维持长达14天,尽管目前仍在评估更长的培养时间。
一种合适的转基因报告基因模型是 Csf1r-eGFP-Adipoq-ERT2-Cre-CAG-tdTomato 小鼠品系(“MacFat”)27,28。该报告基因小鼠品系通过 GFP 表达标记巨噬细胞,通过 tdTomato 表达标记脂肪细胞。由于脂肪细胞死亡后 tdTomato 表达即停止,因此可随时间监测脂肪细胞的存活状态。在为期 14 天的培养期间,tdTomato 表达保持稳...
访问受限。请登录或开始试用以查看此内容。
讨论
鉴于代谢性疾病和糖尿病的全球发病率不断上升,阐明脂肪组织(AT)炎症的潜在机制仍是重要的研究目标。为满足这一需求,已开发出一种离体(ex vivo)组织块培养系统,可在受控的实验条件下诱导并分析脂肪组织(AT)的炎症反应。
该方法的一个关键要求是在整个培养期间保持组织的活性。通过多种互补的方法已证明,脂肪组织(AT)的完整性在体外培养中可维持长达14天。相比之下,以往发表的脂肪组织外植体方法通常仅能维持较短时间的组织活性,约为24小时至3天31,32。使用细胞培养小室插件可通过保持组织水合状态的同时实现有效的气体交换,从而支持组织存活。此外,在无菌条件下快速处理组织、使用预温的培养基和溶液,以及使用锋利的切割器械,对于最大限度减少机械损伤和培养诱导的应激至关重要。在外植体失败的罕见情况下,可通过显微镜观察到明显的巨噬细胞浸润。当培养基中含有酚红时,组织酸化也可通过培养基颜色的变化被识别,从而可将受损的外植体或孔排除在后续分析之外。
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无竞争利益。
致谢
作者感谢 Constance Hobusch 和 Florian Kirmse 提供出色的技术支持。流式细胞术分析在莱比锡大学荧光技术核心单元完成,并得到 Kathrin Jäger 和 Pia Glöckner 的技术支持。本研究由德国研究基金会(Deutsche Forschungsgemeinschaft, DFG)资助,项目编号 209933838 – SFB 1052(项目 B09)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| BD OptEIA 小鼠 TNF ELISA 试剂盒 | BD Biosciences | 560478 | |
| Bodipy 558/568 C12 | 流式细胞术:1:10000;染色:1:2000 | Invitrogen | D3835 |
| 牛血清白蛋白 | 3% | Sigma | A9647 |
| CD107a (LAMP1) – AF647 | 染色:1:100;流式细胞术:1:200 | BioLegend | 121610 |
| CD11c – BV605 | 流式细胞术:1:100 | BioLegend | 117334 |
| CD16/32 | 流式细胞术:1:100 | Invitrogen | 14-0161-82 |
| CD301 – AF647 | 流式细胞术:1:50 | Bio-Rad | MCA2392A647 |
| CD36 – PE | 流式细胞术:1:400 | BioLegend | 102606 |
| CD45 – PE | 流式细胞术:1:100 | BD Pharmingen | 555483 |
| Click-iT Plus EdU Alexa Fluor 350 流式细胞术检测试剂盒 | EdU:5 µM | Invitrogen | C10632 |
| 氯膦酸盐脂质体 | 500 µg/ml 氯膦酸盐 | Liposoma | |
| 胶原酶 II 型 | 1 mg/ml,315 U/mg | Worthington | LS004176 |
| CyQUANT LDH 细胞毒性检测试剂盒 | Invitrogen | C20301 | |
| DAPI | 流式细胞术:0.2 µg/ml | Thermo Fisher | 62248 |
| 乙醇 | 70% | Carl Roth | T913.1 |
| F4/80 – AF647 | 流式细胞术:1:100 | Invitrogen | MF48021 |
| F4/80 – PE-Cy7 | 流式细胞术:1:200 | Invitrogen | 25-4801-82 |
| 胎牛血清 | 1.10 | Gibco | 10270106 |
| 胎牛血清 | 1.20 | Gibco | 10270106 |
| HBSS(无 Mg,无 Ca) | Gibco | 14170138 | |
| HEPES | 13 mM | Roth | HN77.2 |
| Hoechst 33342 | 1:10,000 | Life Technologies | H3570 |
| LysoTracker – AF647 | 流式细胞术:1:20000;染色:1:10000 | Invitrogen | H34477 |
| MAC-2 | 染色:1:1000 | Cedarlane | CL8942AP |
| Millicell 细胞培养插件,30 mm,亲水性 PTFE,0.4 µm | Merck Millipore | PICM0RG50 | |
| PBS(无 Mg,无 Ca) | Gibco | 14190169 | |
| PBS(无 Mg,无 Ca) | Gibco | 14190169 | |
| 青霉素/链霉素(10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| 青霉素/链霉素(10,000 U/ml) | 0.111111111 | Gibco | 11548876 |
| Perilipin | 2 µg/ml | Abcam | ab3526 |
| Plexxicon 5622 | 40 µM | Plexxicon Inc. | HY-114153 |
| RPMI 1640 培养基 | 含 11 mM 葡萄糖 | Sigma Aldrich | R8758 |
| RPMI 1640 培养基 | Sigma | R8758 | |
| 6 孔板用 TC 插件 | Sarstedt | 83.3930.040 | |
| TPP 组织培养板 6 孔 | TPP | 92006 | |
| Triton X-100 | 1% | Carl Roth | 3051.2 |
| 氯化锌 | 0.8 mM | Sigma | Z0152 |
| 甲醛锌 | Polyscience | 21516-3.75 |
参考文献
- Massier L, et al. An integrated single cell and spatial transcriptomic map of human white adipose tissue. Nat Commun. 2023;14(1):1438. doi:10.1038/s41467-023-36983-2.
- Rosen ED, Spiegelman BM. What We Talk About When We Talk About Fat. Cell. 2014;156(1-2):20-44. doi:10.1016/j.cell.2013.12.012.
- Ibrahim MM. Subcutaneous and visceral adipose tissue: structural and functional differences. Obes Rev. 2010;11(1):11-18. doi:10.1111/j.1467-789X.2009.00623.x.
- Bruun JM, Lihn AS, Pedersen SB, Richelsen B. Monocyte chemoattractant protein-1 release is higher in visceral than subcutaneous human adipose tissue: implication of macrophages resident in adipose tissue. J Clin Endocrinol Metab. 2005;90(4):2282-2289. doi:10.1210/jc.2004-1696.
- Curat CA, et al. Macrophages in human visceral adipose tissue: increased accumulation in obesity and a source of resistin and visfatin. Diabetologia. 2006;49(4):744-747. doi:10.1007/s00125-006-0173-z.
- Wang QA, Tao C, Gupta RK, Scherer PE. Tracking adipogenesis during white adipose tissue development, expansion and regeneration. Nat Med. 2013;19(10):1338-1344. doi:10.1038/nm.3324.
- Spalding KL, et al. Dynamics of fat cell turnover in humans. Nature. 2008;453(7196):783-787. doi:10.1038/nature06902.
- Weisberg SP, McCann D, Desai M, Rosenbaum M, Leibel RL, Ferrante AW. Obesity is associated with macrophage accumulation in adipose tissue. J Clin Invest. 2003;112(12):1796-1808. doi:10.1172/JCI200319246.
- Lindhorst A, et al. Adipocyte death triggers a pro-inflammatory response and induces metabolic activation of resident macrophages. Cell Death Dis. 2021;12(6):579. doi:10.1038/s41419-021-03872-9.
- Braune J, et al. Multinucleated giant cells in adipose tissue are specialized in adipocyte degradation. Diabetes. 2021;70(2):538-548. doi:10.2337/db20-0293.
- Cinti S, et al. Adipocyte death defines macrophage localization and function in adipose tissue of obese mice and humans. J Lipid Res. 2005;46(11):2347-2355. doi:10.1194/jlr.M500294-JLR200.
- Wehr R, Lindhorst A, Arndt L, Krueger M, Raulien N, Gericke M. Lysosomal exocytosis by macrophages as a druggable mechanism for anti-inflammatory clearance of dead adipocytes in adipose tissue. Cell Death Dis. 2025. doi:10.1038/s41419-025-08334-0.
- Altintas MM, et al. Apoptosis, mastocytosis, and diminished adipocytokine gene expression accompany reduced epididymal fat mass in long-standing diet-induced obese mice. Lipids Health Dis. 2011;10(1):198. doi:10.1186/1476-511X-10-198.
- Lumeng CN, Bodzin JL, Saltiel AR. Obesity induces a phenotypic switch in adipose tissue macrophage polarization. J Clin Invest. 2007;117(1):175-184. doi:10.1172/JCI29881.
- Lumeng CN, DelProposto JB, Westcott DJ, Saltiel AR. Phenotypic switching of adipose tissue macrophages with obesity is generated by spatiotemporal differences in macrophage subtypes. Diabetes. 2008;57(12):3239-3246. doi:10.2337/db08-0872.
- Haka AS, et al. Exocytosis of macrophage lysosomes leads to digestion of apoptotic adipocytes and foam cell formation. J Lipid Res. 2016;57(6):980-992. doi:10.1194/jlr.M064089.
- Strissel KJ, et al. Adipocyte death, adipose tissue remodeling, and obesity complications. Diabetes. 2007;56(12):2910-2918. doi:10.2337/db07-0767.
- Xu R, et al. Lipid-associated macrophages between aggravation and alleviation of metabolic diseases. Trends Endocrinol Metab. 2024. doi:10.1016/j.tem.2024.04.009.
- Gericke M, Weyer U, Braune J, Bechmann I, Eilers J. A method for long-term live imaging of tissue macrophages in adipose tissue explants. Am J Physiol Endocrinol Metab. 2015;308(11). doi:10.1152/ajpendo.00075.2015.
- Gericke MT, et al. Receptors for NPY and PACAP differ in expression and activity during adipogenesis in the murine 3T3-L1 fibroblast cell line. Br J Pharmacol. 2009;157(4):620-632. doi:10.1111/j.1476-5381.2009.00164.x.
- Arndt L, et al. The role of IL-13 and IL-4 in adipose tissue fibrosis. Int J Mol Sci. 2023;24(6):5672. doi:10.3390/ijms24065672.
- Haase J, et al. Local proliferation of macrophages in adipose tissue during obesity-induced inflammation. Diabetologia. 2014;57(3):562-571. doi:10.1007/s00125-013-3139-y.
- Braune J, et al. IL-6 regulates M2 polarization and local proliferation of adipose tissue macrophages in obesity. J Immunol. 2017;198(7):2927-2934. doi:10.4049/jimmunol.1600476.
- Neugebauer J, et al. The Impact of Resident Adipose Tissue Macrophages on Adipocyte Homeostasis and Dedifferentiation. Int J Mol Sci. 2024;25(23):13019. doi:10.3390/ijms252313019.
- Schopow N, et al. Examination of ex vivo viability of human adipose tissue slice culture. PLoS One. 2020;15(5). doi:10.1371/journal.pone.0233152.
- Braune J, et al. Hedgehog signalling in myeloid cells impacts on body weight, adipose tissue inflammation and glucose metabolism. Diabetologia. 2017;60(5):889-899. doi:10.1007/s00125-017-4223-5.
- Van Rooijen N, Van Nieuwmegen R. Elimination of phagocytic cells in the spleen after intravenous injection of liposome-encapsulated dichloromethylene diphosphonate: an enzyme-histochemical study. Cell Tissue Res. 1984;238(2):355-358. doi:10.1007/BF00217308.
- Sasmono RT, et al. A macrophage colony-stimulating factor receptor-green fluorescent protein transgene is expressed throughout the mononuclear phagocyte system of the mouse. Blood. 2003;101(3):1155-1163. doi:10.1182/blood-2002-02-0569.
- Blüher M. Adipose tissue dysfunction in obesity. Exp Clin Endocrinol Diabetes. 2009;117(6):241-250. doi:10.1055/s-0029-1192044.
- Hotamisligil GS, Shargill NS, Spiegelman BM. Adipose expression of tumor necrosis factor-alpha: direct role in obesity-linked insulin resistance. Science. 1993;259(5091):87-91. doi:10.1126/science.7678183.
- Cohen M, et al. Adipose tissue explant culture using PDMS flow chambers: an alternative to static explant culture. Adipocyte. 2025;14(1):2578286. doi:10.1080/21623945.2025.2578286.
- Du ZY, et al. Depot-dependent effects of adipose tissue explants on co-cultured hepatocytes. PLoS One. 2011;6(6). doi:10.1371/journal.pone.0020917.
- Murano I, et al. Dead adipocytes, detected as crown-like structures, are prevalent in visceral fat depots of genetically obese mice. J Lipid Res. 2008;49(7):1562-1568. doi:10.1194/jlr.M800019-JLR200.
访问受限。请登录或开始试用以查看此内容。
重印与许可
