本方案描述了从有或无人类免疫缺陷病毒-1(HIV-1)感染者的快速尸检后脑组织中分离、纯化和培养高纯度人髓系细胞/小胶质细胞的方法。该方法提供了一种可靠的 离体 研究髓系细胞/小胶质细胞生物学、脑内HIV储存库、神经炎症及HIV治愈策略的平台。
方法文章
分离脑内小胶质细胞以研究人类免疫缺陷病毒-1的持续存在
* These authors contributed equally
本文内容
摘要
摘要
我们已建立并优化了一种可靠的方案,用于从伴有或不伴有HIV-1(HIV)感染者的快速尸检后获取的死后脑组织中分离、培养和研究原代人脑髓系细胞(BrMCs),其中 >97.3%的BrMCs为脑微胶质细胞(MG)。因此,我们将分离得到的BrMCs称为MG或BrMCs/MG,以更准确地代表该细胞群体。该方法可实现全面的 离体 小胶质细胞生物学研究,包括其在维持脑内HIV储存库、介导神经炎症及导致神经元损伤中的作用,以及对HIV治愈策略的评估。
为保持细胞活性以及RNA/蛋白质的完整性,在快速科研解剖后6小时内采集脑组织。包括额叶、顶叶和枕叶皮层、海马以及基底神经节在内的多个脑区,采用酶消化和可控机械解离处理,随后通过密度 梯度离心法获得具有活性的单细胞悬液,并有效去除髓鞘碎片及裂解红细胞。随后采用两步分离法纯化脑源性单核细胞/小胶质细胞(BrMCs/MG),即先去除CD3⁺ T细胞,再通过CD11b⁺磁珠富集,以确保细胞纯度和特异性。
纯化的髓系细胞在添加M-CSF的特定条件下培养,以维持其在长期培养过程中的存活率和功能完整性 离体 培养。该优化平台为脑内HIV储存库及相关机制在BrMCs/MG中的下游分子、免疫学和病毒学分析提供了可靠且可扩展的技术支持。
引言
脑髓系细胞(BrMCs)/小胶质细胞是中枢神经系统(CNS)主要的天然免疫细胞1,2,3。在健康状态下,它们持续监测大脑环境,并参与突触修剪、清除细胞碎片以及支持神经元等多种功能4,5,6。当发生疾病时,小胶质细胞会被免疫激活,引发神经炎症,这在多种中枢神经系统疾病的神经退行性病变过程中发挥关键作用7,8,9。在HIV-1(HIV)感染过程中,BrMCs/小胶质细胞是大脑中主要的HIV储存库,此外还包括CNS中的T细胞以及可能的星形胶质细胞;后者在CNS中HIV储存库的作用可能较小。小胶质细胞携带潜伏感染的、已整合的前病毒HIV DNA,尽管接受了有效的抗逆转录病毒治疗(ART),仍维持低水平的HIV RNA表达10,11,12。BrMCs/小胶质细胞中持续存在的HIV感染导致慢性炎症,并与HIV相关神经认知障碍(HAND)相关,即使在现代ART治疗下,高达50%的HIV感染者(PWH)仍表现出认知、行为和运动功能障碍的症状13,14,15,16。因此,阐明持续感染HIV的小胶质细胞的功能,是理解HIV感染与潜伏的分子机制、小胶质细胞与星形胶质细胞及其他CNS细胞之间的相互作用、神经元损伤以及HAND疾病进程的关键,这对于发现针对神经HIV的治疗靶点至关重要11,12,17。
然而,利用人脑尸检组织研究小胶质细胞存在技术上的挑战。高髓鞘含量,尤其是在白质中,可能导致细胞被截留并堵塞滤膜,从而降低细胞回收率,除非在免疫磁珠分选前去除髓鞘18,19。在PWH死亡后,细胞表面标志物(如TMEM119和P2RY12)可能发生降解,从而增加准确识别小胶质细胞的难度20,21。此外,HIV感染脑组织中的髓系细胞包含外周单核细胞和组织驻留型巨噬细胞,这些细胞与小胶质细胞共享部分共同标志物;因此,需要额外步骤来富集纯化的脑髓系细胞(BrMCs)群体,特别是小胶质细胞22,23。
目前用于分离人源小胶质细胞的方法在处理感染 HIV 的死后组织时效果不佳。荧光激活细胞分选法虽可获得全面的结果,但需要昂贵的设备,耗时较长,并且从少量珍贵的人脑组织中获得的细胞得率较低24,25。免疫集落法具有特异性,但无法同时处理来自多个脑区的样本,且需要长时间孵育,不适合需在过夜运输后快速处理的死后组织26,27。此外,这些方法均无法从同一样本中同时回收 T 淋巴细胞和髓系细胞,而这对实现 HIV 感染中枢神经系统细胞的完整免疫谱分析是必需的17,28。
本方案提供了一种可重复、可靠且高效的从HIV感染的死后人脑组织中分离和富集小胶质细胞及其他中枢神经系统(CNS)免疫细胞的方法。通过可控的机械解离结合温和的酶消化(例如TrypLE Express和DNase I),可最大程度地保留细胞表面抗原并减少细胞聚集29,30。随后采用Percoll密度梯度离心去除髓鞘,再通过免疫磁珠分离CD3⁺ T细胞和CD11b⁺髓系细胞31,32。重要的是,温和的酶处理条件可有效保留关键的髓系标志物(如CD11b和CD68)以及小胶质细胞特异性生物标志物(如TMEM119和P2RY12),从而能够准确表征中枢神经系统细胞并进行下游信号通路分析33。该两步筛选策略还可获得高纯度的CD3⁺ T细胞组分,适用于病毒学和免疫学研究;鉴于T细胞在病毒中枢神经系统储存库中的作用,以及T细胞浸润入脑后在HIV相关神经损伤中的影响,这一方法对神经HIV(NeuroHIV)研究尤为重要34,35。
总体而言,这种两步顺序法——首先耗竭 CD3⁺ T细胞随后进行CD11b富集⁺ 来自CD3阴性组分的髓系细胞——可同时提高细胞纯度和中枢神经系统细胞得率,最大限度地利用这些珍贵、有限且宝贵的组织样本。分离获得的细胞适用于多种下游应用,包括整体及单细胞RNA测序、流式细胞术、功能检测以及病毒学分析,如HIV DNA/RNA定量和病毒扩增实验,以确定中枢神经系统驻留免疫细胞内的具有复制能力的病毒储存库17,36,37.
本方案适用于在BSL-2+条件下具备尸检脑组织处理能力的实验室,因为许多HIV感染者(PWH)在临终时正处于抗逆转录病毒治疗(ART)抑制状态或仅有短暂的ART中断。该方案仅需标准的免疫磁珠分离和流式细胞术平台,即可验证分离后脑单个核细胞(BrMCs)/小胶质细胞的特异性。经过少量修改后,该方案还可适用于研究阿尔茨海默病、多发性硬化、长程COVID19(long COVID19)和创伤性脑损伤等中枢神经系统疾病38,39,40。本方案还已优化用于分离SIVmac251或SIVmac239感染的非人灵长类动物(NHPs)12,41,以及HIV感染或潜伏感染的人源化小鼠模型中的脑细胞,从而提供一种在脑内研究HIV感染的生理相关模型。与人类脑组织相比,这些动物模型更易于获取,为研究HIV感染、HIV潜伏以及相关神经HIV(neuroHIV)机制和转化研究提供了宝贵的互补资源。
方案
注意:所有人类/NHP 组织均须在 BSL-2 条件下操作。进行 Percoll 处理、ACK 缓冲液和 DMSO 操作时,应使用适当的个人防护装备,包括防护服、手套、口罩和面罩。化学和生物废弃物应根据机构指南进行处理。组织解离过程中使用的一次性器械(如手术刀、移液器和培养皿)丢弃前须用 10% 漂白剂冲洗,然后放入生物危害袋中。可重复使用的器械(如镊子和剪刀)须先用 10% SDS 冲洗,再进行清洗和高压灭菌。
1. 脑组织采集
- 人源样本
注意:本研究使用的人体组织是根据加州大学圣地亚哥分校(UCSD;IRB 编号 160563)机构审查委员会(IRB)批准的方案获取的12。人源供体为正在接受抗逆转录病毒治疗(ART)的 HIV 感染者。供体的关键特征,包括年龄、性别、死后间隔时间(PMI)和 ART 状态,此处简要总结,并已在先前发表的研究中详细描述12。- 在死亡后 ≤6 小时内采集组织 ,以保持细胞活力和 RNA 完整性,并在 24 小时内送至处理实验室。
- 非人灵长类动物(NHP)样本
注意:恒河猴(Macaca mulatta)饲养于埃默里国家灵长类研究中心(ENPRC, PROTO201700286)或加州国家灵长类研究中心(CNPRC, UCD IACUC #22832)。动物护理和实验操作均按照各机构动物护理和使用委员会(IACUC)的规定进行,并符合机构和联邦指南。所有动物护理设施均获得美国农业部以及国际实验动物评估和认证协会(AAALAC)的认证。- 尸检后立即采集组织12。
- 组织采集
注意:所有操作均应在置于冰上的预冷称量皿中进行。- 根据组织可获取情况,每个脑区采集 2–20 g 组织(例如额叶、顶叶、枕叶皮层、海马、基底神经节)。
- 将组织置于冰上预冷的 DMEM/F12 培养基中,培养基中补充 ART 药物:100 nM 奈韦拉平(Nevirapine)、200 nM 拉替拉韦(Raltegravir)、25 nM 达芦那韦(Darunavir)。组织保存于 4 °C。
- 运输条件
- 将样本置于密封管中,于 4 °C 冰上保存。
- 由经认证的人员按照 UN3373 B 类物质运输规定12 运输样本,并在冰上过夜运送至处理实验室。
2. 组织制备
- 将组织转移至50 mL离心管中。加入20–40 mL含DNase(10 U/mL)的冷HBSS,轻轻倒置离心管,洗涤组织10–15次,直至上清液澄清。
注意:此步骤旨在去除血液、碎片和污染物,因此请确保液体体积足够,使组织块在洗涤过程中可自由移动。 - 使用无菌镊子去除并弃去脑膜和大血管。
- 将组织转移至新的培养皿中,并按脑区记录组织重量(不包括容器重量)。
- 在约10 mL HBSS + DNase I(10 U/mL)中,用无菌镊子将组织撕成约1–2 mm的碎片。
注意:可在培养皿中使用手术刀进行切碎处理。
3. 酶消化
- 通过混合10 mL 1x重组细胞解离酶与DNase I(终浓度10 U/mL)配制消化液。
- 将旋转摇床预热至 37 °C 以及含有DNase I(终浓度10 U/mL)的重组细胞解离酶 37 °C 培养箱
- 将步骤3.1中组织转移至消化液混合物中,并转入培养瓶(T150用于体积 > 50 mL;如果使用较小的烧瓶 <50 mL),并在旋转摇床中孵育: 37 °C,150 rpm,30 min。
- 使用10 mL和5 mL移液管轻轻吹打混匀。
注意:避免剧烈吹打。 - 室温孵育5分钟,使组织沉淀。
- 细胞收集
- 收集上清液至50 mL离心管中;此即为 系列 #1加入10% FBS以终止收集的上清液中的酶活性。
- 将剩余组织重悬于含 DNase I(10 U/mL)和 10% FBS 的 HBSS 中(每克组织加入 10 mL)。轻柔吹打混匀,经 70–100 µm 筛网
注意:如果酶消化充分,所有组织将全部通过滤网。 - 500 × g 离心 × g,室温,10 分钟;此为 样本集 #2.
注意:为最大程度回收产物,让悬液静置沉淀后,仅将上清液转移至新管中。
- 最终处理
- 将收集液(C1 和 C2)在 500 离心 × g 10 分钟
- 弃去上清液。将C1和C2的细胞沉淀合并至同一管中。
4. 髓鞘碎片清除(Percoll 梯度法)
- 通过将9份Percoll与1份10x HBSS混合制备等渗Percoll(SIP)。制备量应约为每克组织2.5 mL。
- 通过将3.5 mL SIP与5.5 mL 1x HBSS混合制备35% Percoll工作液。制备量应约为每克组织4.5 mL。
- 密度分离
- 将步骤3.7.2中获得的细胞沉淀重悬于35% Percoll溶液中。每克原始组织重量(即解离前测得的组织重量)使用约4.5 mL的35% Percoll。
- 注意:在50 mL离心管中用35% Percoll重悬细胞(每管最多30 mL)。若组织量较大,需将细胞分装至多个50 mL离心管中。
- 小心地在每根离心管上层加入10 mL 1x HBSS。冰上或4 °C孵育5分钟。
- 在4 °C条件下以800 ×g离心45分钟(减速过程中不使用刹车)。
- 分层回收
- 小心弃去上清液及髓鞘层,避免扰动下层界面相。
- 将沉淀物和界面相(位于髓鞘层下方,含有混合脑细胞及Percoll组分)收集至新的50 mL锥形离心管中,以避免带入杂质。
- 稀释与洗涤
- 按3:1的比例加入HBSS进行稀释(例如,每10 mL收集的悬液加入30 mL HBSS),实现约3倍稀释。
- 在4 °C条件下以1,000 × g离心10分钟(使用全速刹车和加速)。
- 完全移除上清液。
- 红细胞裂解与细胞计数
- 用ACK缓冲液处理步骤4.5.3获得的细胞沉淀(5 mL,10分钟,37 °C)。
- 使用台盼蓝染色法计数活细胞。
- 注意:预期产量:每克组织约0.1–1 × 10⁶ 个中枢神经系统细胞,具体产量取决于组织状态。
- 加入10 mL PBS以终止ACK裂解缓冲液的作用。在500 × g条件下离心5分钟。
注意:可选暂停点: 细胞可在分选前过夜培养,接种密度为每毫升培养基(DMEM/F-12,含谷氨酰胺和丙酮酸钠补充剂(500 mL)、10%热灭活FBS、1x HEPES缓冲液、1x 抗生素-抗真菌剂(100x原液5.5 mL)、10 ng/mL MCSF(1,000x原液))0.5–1 × 10⁶ 个细胞。
完成上述组织解离、红细胞裂解、细胞计数及可选的过夜培养步骤后,根据制造商说明书,使用市售的细胞分离试剂盒分离CD3+ 和 CD11b+ 细胞群体。有关试剂盒、试剂及完整分离流程的详细信息见下文材料表,分离工作流程简要概述如下。
5. CD3⁺ T细胞分离(阳性选择)
注意:首先使用适用于 CD3 的释放型免疫磁珠阳性选择试剂盒(参见材料表),从制备的单细胞悬液中分离 CD3+ 细胞。保留此步骤产生的 CD3+ 和 CD3- 两个组分。第 6 步需要使用 CD3- 组分。
- 配制释放缓冲液。
- 在使用当天,将40倍浓缩的释放缓冲液用细胞分离缓冲液稀释至1倍浓度,并置于4–6 °C或冰上保存。
注意:每个待处理样本需准备2.5 mL的1倍释放缓冲液。
- 在使用当天,将40倍浓缩的释放缓冲液用细胞分离缓冲液稀释至1倍浓度,并置于4–6 °C或冰上保存。
- 准备细胞样本并用分选混合液标记。
- 将步骤4.6.3获得的细胞沉淀重悬于5 mL圆底聚苯乙烯管中的细胞分离缓冲液中,浓度为1 × 10⁸ 个细胞/mL。
- 按每毫升样本加入100 µL CD3分选混合液。轻轻混匀样本,并在室温下孵育3分钟。
- 用磁性颗粒标记样本。
- 使用前立即涡旋振荡磁性颗粒30秒。按每毫升样本加入100 µL磁性颗粒。轻轻混匀样本,并在室温下孵育3分钟。
- 用细胞分离缓冲液将样本总体积调至2 mL,并通过轻柔吹打悬浮液上下2至3次进行混匀。
- 通过磁性分离法分离CD3+ 细胞群。
- 将未加盖的样本管放入磁性细胞分离器中,在室温下孵育5分钟。
- 注意:与磁性颗粒结合的细胞构成CD3+ 组分,在磁场中仍附着于管壁;未结合的上清液构成CD3- 组分。
- 在不将试管从磁性分离器中取出的情况下,将上清液转移至一个洁净、已标记的15 mL锥形管中,用于收集CD3- 组分。
- 将试管从磁性分离器中取出,用2 mL细胞分离缓冲液轻柔地重悬保留的细胞。
- 重复步骤5.4.1至5.4.3,共进行三次5分钟的磁性分离,将所有上清液收集至同一个CD3- 组分管中。
- 将CD3+ 组分从磁性颗粒中释放出来。
- 向保留的细胞中加入2.5 mL 1倍释放缓冲液(按步骤5.1.2配制),通过轻柔吹打悬浮液上下2至3次进行混匀。在室温下孵育3分钟。
- 将未加盖的试管放入磁性细胞分离器中,在室温下孵育5分钟。
- 在不将试管从磁性分离器中取出的情况下,将上清液转移至一个洁净、已标记的15 mL锥形管中,用于收集CD3+ 组分。
注意:释放缓冲液可使磁性颗粒与标记细胞解离;所得上清液即为纯化的CD3+ 组分,而残留的磁性颗粒在磁场中仍结合于管壁,随后被弃去。
- 细胞计数与冷冻保存
- 对细胞进行计数,并将剩余细胞用冷冻混合液(90% FBS + 10% DMSO)在异丙醇基冷冻介质中于-80 °C冷冻保存24小时,随后将样本转移至液氮中;同时将CD3+ 分装样本进行速冻保存。
6. CD11b⁺ 髓系细胞分离(自 CD3⁻ 组分)
注意:将步骤 5.4.4 中保留的 CD3- 组分进行第二次免疫磁珠阳性分选,以分离 CD11b+ 髓系细胞,所用试剂为抗 CD11b 磁性微珠及柱式磁性分离器(参见材料表)。
- 准备分离缓冲液并确定细胞数量。
- 通过将20倍浓度的缓冲液在等渗冲洗液中稀释,制备1×BSA基础分离缓冲液,并将配制好的缓冲液在使用前保持低温(4–8 °C)。
- 使用血细胞计数板或自动细胞计数仪测定CD3组分中的总细胞数。
- 用抗CD11b磁性微珠标记细胞。
- 将细胞悬液在300 × g 条件下离心10分钟,并完全吸除上清液。
- 每1 × 10⁷ 个总细胞,用80 µL的1×BSA基础分离缓冲液重悬细胞沉淀。
- 每1 × 10⁷ 个总细胞加入20 µL抗CD11b磁性微珠,充分混匀后在4–8 °C条件下孵育15分钟。
- 注:若在湿冰上孵育而非在冰箱中,可能需要更长的孵育时间。在较高温度下或超过推荐时间孵育,可能会增加非特异性细胞标记的风险。
- 每1 × 10⁷ 个细胞加入1 mL的1×分离缓冲液洗涤标记后的细胞,在300 × g 条件下离心10分钟,并完全吸除上清液。
- 将最多1 × 10⁸ 个总细胞重悬于500 µL分离缓冲液中。
- 进行基于层析柱的磁性分离。
- 将磁性分离柱放入磁性分离器中,并用500 µL的1×分离缓冲液(小容量柱)或1 mL的1×分离缓冲液(大容量柱)冲洗平衡;弃去冲洗液。
注:当样本中总细胞数较少时,使用小容量柱。当样本中总细胞数较多(如脾脏来源或联合免疫制备物)时,使用大容量柱。 - 在已平衡的柱下方放置一个洁净的5 mL圆底聚苯乙烯管,将500 µL(小容量柱)或1 mL(大容量柱)标记的细胞悬液加至柱的顶部。
- 待样本完全进入柱内后,洗涤柱三次,每次加入500 µL的1×分离缓冲液(小容量柱)或每次1 mL(大容量柱)。只有在柱的储液器排空后,才加入下一次洗涤液。
注:步骤6.3.2和6.3.3中收集的合并流出液即为未标记的CD11b-组分。 - 将柱从磁性分离器上取下,并将其置于一个洁净、已标记的用于收集CD11b+组分的5 mL聚苯乙烯管上。
- 用移液器将1 mL(小容量柱)或2 mL(大容量柱)的1×分离缓冲液加至柱顶部,并立即用力按下随柱附带的推杆,将标记的细胞迅速冲洗至收集管中。
- 将磁性分离柱放入磁性分离器中,并用500 µL的1×分离缓冲液(小容量柱)或1 mL的1×分离缓冲液(大容量柱)冲洗平衡;弃去冲洗液。
- CD11b+组分的定量与后续处理
- 对两个组分(CD11b+和CD11b-)的细胞进行计数,并将CD11b-部分的等分试样在异丙醇基冷冻介质中,用冷冻混合液(90% FBS + 10% DMSO)冷冻保存24小时后,迅速在-80 °C下冷冻,随后将样本转移至液氮中保存。
- 将CD11b+细胞用于后续实验。
结果
本方案中描述的优化流程可从死后获得的HIV感染人脑组织中可重复地分离出具有活性且高度富集的T细胞和BrMCs/小胶质细胞。通过一系列关键阶段的质量控制点(包括细胞活力评估、产量定量以及免疫表型鉴定)可确认本方案的成功实施。以下描述了一次成功实验的代表性结果。
组织解离与细胞回收
如图1A所示,经过机械解离和密度梯度离心后,处理良好的样本在Percoll离心后应产生肉眼可见清晰的沉淀,髓鞘碎片残留极少。在使用获得性免疫缺陷综合征患者(PWH)快速尸检脑组织的代表性实验中,免疫磁珠分选前每克脑组织的总细胞产量通常为8.0 × 10⁴ 至 1.0 × 10⁶ 个细胞,显著低于脾组织的细胞产量(约5 × 10⁷ 个细胞/g)(表1),反映了这些组织之间固有的生物学差异。
较低的产量或细胞活力下降通常与较长的死后间隔时间(>24 h)、次优的组织储存条件或匀浆过程中过度的机械力有关。在此类情况下,经Percoll离心后可见髓鞘层更厚且更为弥散,含有中枢神经系统细胞的界面层则界限不清。若髓鞘层去除不完全(方案步骤4.4),可能导致髓鞘碎片残留,这些残留物在台盼蓝排斥计数时可能被误判为死细胞。此类污染还可能干扰后续抗体标记,从而影响磁性分离的效率。如怀疑存在髓鞘残留,建议在免疫磁珠分选前增加一次Percoll梯度离心步骤。
CD3+ T 细胞组分
CD3⁺ T细胞的阳性分选步骤具有双重目的:一方面富集T细胞组分以用于并行的中枢神经系统(CNS)细胞分析,另一方面从富集髓系细胞的组分中去除浸润的T淋巴细胞,从而排除分离所得髓系细胞中可能存在的T细胞污染。在代表性实验中,CD3⁺细胞约占总分离细胞的2–8%(约1 × 10⁴ 个细胞/克组织)(表1),这一结果与既往报道一致,表明在HIV感染的中枢神经系统组织中,T细胞浸润程度有限且水平较低。
CD11b⁺ BrMC 富集、表征和 离体 培养
在进行CD3⁺细胞耗竭后,将CD3⁻组分通过磁性微珠进行CD11b⁺细胞筛选。如先前报道(12),该操作可使CD11b⁺脑膜来源细胞(BrMCs)的纯度提高至95.2%,而筛选前组分中仅为28.4%。采用高灵敏度的RT-qPCR检测T细胞标志物CD3E(可检测每一百万个BrMCs中单个T细胞),在分离得到的BrMCs/小胶质细胞中未检测到T细胞(12),证实其具有高纯度,并排除了T细胞污染的可能性。
纯化的CD11b⁺脑髓系细胞(BrMCs)随后在小胶质细胞培养基中培养长达2周,以促进细胞恢复和贴壁,从而启动细胞生长。如图1B所示,分离的人源BrMCs在分离后第5天即形成单层结构,并呈现双极形态。这些细胞现已可用于离体(ex vivo)检测、表征及后续功能分析。代表性流式细胞术分析显示,从非人灵长类动物(NHP)脑组织中分离的CD11b⁺细胞群纯度如图2A所示,其中97.3%的细胞共表达CD11b和TMEM119。此前已有文献报道过人源及其他NHP BrMC制备物的纯度12。在那些分析中,CD11b⁺细胞比例从28.4%富集至95.5%,而来自人源样本的分离细胞群中,TMEM119⁺细胞占比高达95.9%。我们将这些细胞称为小胶质细胞,尽管其中可能含有少量其他脑驻留的髓系细胞亚群。
类似的方法也可用于分离脾脏 CD3⁺ T 细胞和 CD11b⁺ 髓系细胞(SMCs)(表1). 纯度评估显示,CD3的纯度约为98.9%+ 细胞和 99.3% 的 CD11b+ 细胞 (图2B,C). 这些可存活的细胞群体(图 2E,F) 可在培养中维持,从而能够与分离的中枢神经系统细胞进行配对比较分析(图 2D).
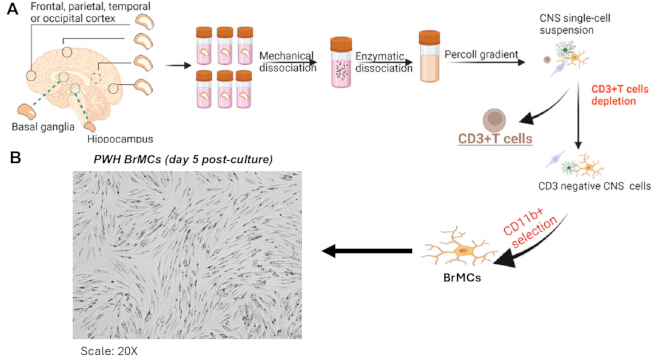
图 1。一种两步连续分离法用于纯化脑髓系细胞(BrMCs)。(A)两步法分离中枢神经系统(CNS)细胞以纯化CD11b⁺ BrMCs的示意图。(B)培养5天后BrMCs的形态(100倍放大),显示小胶质细胞(MG)成功贴壁。缩写:BrMCs = 脑髓系细胞;CNS = 中枢神经系统;MG = 小胶质细胞。请点击此处查看该图的放大版本。
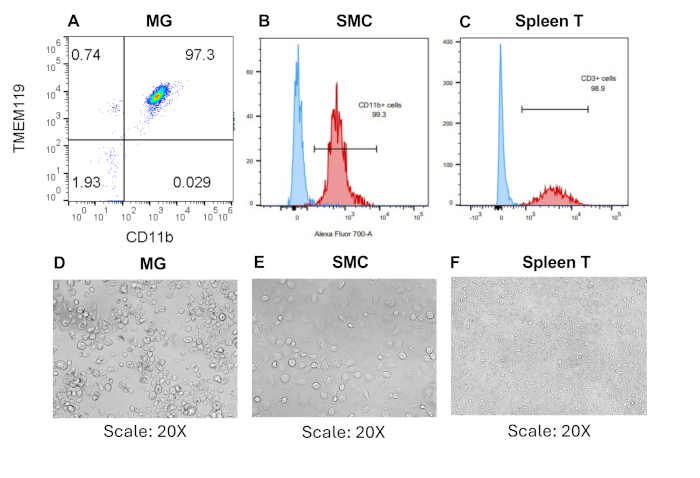
图2.成功分离脾脏T细胞和髓系细胞。(A-C)使用所示抗体对CD3⁺和CD11b⁺组分进行流式细胞术分析。(D-F)代表性图像(下方)显示从脑和脾脏分离后培养7天的的小胶质细胞、CD3⁺ T细胞和脾脏髓系细胞(比例尺:20倍)。缩写:SMCs = 脾脏髓系细胞;MG = 小胶质细胞。 请点击此处查看该图的放大版本。
| 区域 | 组织重量 (g) | 分离前 | CD3+ T 细胞 | CD11b+ BrMCs/SMC | |||
| PWH | 活细胞 | 细胞数/克组织 | 活细胞 | 细胞数/克组织 | 活细胞 | 细胞数/克组织 | |
| FCP | 18.25 | 8.82E+06 | 4.83E+05 | 7.30E+05 | 1.33E+04 | 2.82E+06 | 1.55E+05 |
| PCT | 4.1 | 3.53E+05 | 8.61E+04 | 1.20E+05 | 2.93E+04 | ||
| TCX | 16 | 4.15E+06 | 2.59E+05 | 2.79E+06 | 1.74E+05 | ||
| OCC | 4.24 | 1.75E+06 | 4.13E+05 | 4.50E+05 | 1.06E+05 | ||
| CRB | 11.4 | 4.15E+06 | 3.64E+05 | 2.64E+06 | 2.32E+05 | ||
| H | 1 | 1.23E+06 | 1.23E+06 | 6.00E+04 | 6.00E+04 | ||
| SPL | 5.25 | 2.82E+08 | 5.37E+07 | 2.98E+07 | 5.68E+06 | 9.60E+06 | 1.83E+06 |
表1: 中枢神经系统细胞两步分离法后各细胞类型的得率。
讨论
为获得可重复的实验数据,必须严格遵循本方案的每一步操作。任何步骤的遗漏或仓促处理都可能导致细胞得率、存活率和纯度下降。分析前最关键的要素是组织在死亡后处理的速度42。人脑组织应尽快处理,理想情况下应在死亡后6–12小时内进行。延迟处理会导致小胶质细胞表面抗原(如TMEM119和P2RY12)降解,并降低细胞存活率20。为避免此问题,必须确保组织被迅速转移,并立即在含DNase I的HBSS中于4 °C保存。
必须谨慎调整机械解离过程43。过度匀浆会破坏细胞并释放DNA,导致细胞结团,从而降低得率和柱层析效率44。如果组织未充分匀浆,活细胞将仍被困在组织碎片中。在解离液中加入DNase I有助于防止结团45。通常采用三到四次研磨循环,并在每次之间进行洗涤,效果较好。进行Percoll密度梯度离心时,必须严格遵循离心机设定参数,且不得使用刹车功能,否则会混合各层,破坏细胞分离效果45。当向Percoll悬液中添加HBSS时,应沿离心管管壁缓慢倾注,以保持各层分离。若实验人员对此操作不熟悉,建议先使用有色溶液练习,再应用于珍贵组织。在CD11b+磁珠柱分离过程中,细胞及所有缓冲液均应保持在4–8 °C。若在微珠孵育期间温度超过此范围,可能导致非特异性标记、抗体帽化以及微珠摄取,这些都会显著降低纯度和分选效率33。
该方案可根据不同组织类型或实验室条件进行调整。如果组织中含有大量红细胞(例如心脏灌注不完全时),可在Percoll梯度离心前增加ACK裂解步骤,以去除红细胞并提高分离效果46。ACK孵育时间不宜过长,以免影响白细胞的活性47。若细胞得率仍然较低,应使用解剖显微镜检查滤网上的残留物。若发现仍有较多存活组织,可增加研磨循环次数,或将组织切碎至每份小于0.5 g。在从Percoll梯度中收集细胞时,建议在沉淀上方保留少量Percoll液体,以避免丢失中间层细胞。若在MACS分离过程中柱子发生堵塞,通常说明上样细胞过多,或悬液中仍有残留碎片。
尽管本方案旨在用于 HIV 感染的人类脑组织,但在解读结果时仍需考虑一些重要局限性。机械解离总会引发细胞应激,可能暂时改变小胶质细胞的基因表达并激活炎症通路33,48。另一个局限性在于使用 CD11b 作为主要筛选标记物。CD11b 存在于多种中枢神经系统髓系细胞中,而不仅限于小胶质细胞,同时也表达于浸润的单核细胞和巨噬细胞;由于神经炎症的存在,这些细胞在 HIV 感染组织中更为常见49。为了区分常驻小胶质细胞与浸润细胞,需要进一步利用小胶质细胞特异性标记物(如 TMEM119、P2RY12 和 SALL1)进行分析20,50。第三个局限性是组织获取的限制以及供体间的差异。死后人脑样本无法重复获取,因此难以使用同一供体的技术重复样本来优化实验方案。此外,不同组织在得率、存活率及小胶质细胞活化状态方面存在差异,尤其是在 HIV 感染者(PWH)中,其神经认知状态、抗逆转录病毒治疗(ART)史及其他健康状况差异显著。这些差异必须在实验中仔细记录并加以控制。
与其他方法相比,使用抗CD11b、CD45、TMEM119或P2RY12抗体进行基于FACS的分离可实现高纯度,但需要昂贵的设备,耗时较长,并会增加细胞应激33,51。此外,其细胞回收率低于基于磁珠的方法52。免疫铺片法虽然特异性很高,但同样耗时,需要特殊的基质制备,且难以扩展用于处理多个脑区来源的组织53。商业化的酶解离试剂盒可提高单细胞得率并减少机械应力,但成本更高,并可能因蛋白酶活性改变细胞表面标志物,从而降低后续免疫磁珠分选或流式细胞术步骤的标记效率54,55。因此,本方案在主要解离步骤中包含温和的酶消化处理,以保留细胞表面抗原,这对CD11b、CD68和TMEM119等敏感标志物尤为重要。本方案采用的分步免疫磁珠耗竭-富集策略,先去除CD3+ T细胞,再进行CD11b+阳性选择,相比单步法具有显著的工作流程优势。该方法可在最大化髓系细胞组分纯度的同时,实现T细胞的回收,用于并行的免疫学研究。这种双重回收策略在HIV储存库研究中尤为有用,因为中枢神经系统中的T细胞和髓系细胞均是重要的研究对象。
分离得到的CD11b+细胞可用于多种研究应用。在病毒储存库研究中,该细胞组分适用于检测HIV p24抗原、通过微滴数字PCR测定HIV DNA/RNA拷贝数,以及进行ex vivo病毒出芽实验56,57。这些分析均需要活性富集的髓系细胞,对于理解尽管接受抗逆转录病毒治疗(ART)仍持续存在的中枢神经系统(CNS)病毒储存库具有重要意义58。在转录组学研究中,采用本方案制备的细胞适用于批量及单细胞RNA测序59,60,使研究人员能够在单细胞水平上研究小胶质细胞的活化状态、与疾病相关的小胶质细胞特征以及小胶质细胞对HIV感染的反应61。通过少量调整,例如使用不同的分选试剂盒和调整梯度液体积,该实验流程还可应用于其他神经系统疾病,包括阿尔茨海默病、多发性硬化、长新冠(long COVID19)和创伤性脑损伤,这些疾病同样需要对死后组织中的小胶质细胞进行分析49,62。
综上所述,本实验方案提供了一种可靠、可扩展、灵活且可重复的方法,用于从人和动物脑组织中分离髓系细胞/小胶质细胞。由于该方法适用于多种下游分析平台,并能够从单个组织样本中回收多种免疫细胞类型,因此对于神经免疫学、病毒学和神经病理学领域的研究人员而言,是一种有价值的工具。
披露
作者声明无利益冲突。
致谢
我们感谢来自加州大学圣地亚哥分校的 Sara Gianella 博士 “最后礼物” 我们感谢加州大学圣地亚哥分校队列为收集人体组织所做的贡献。同时感谢埃默里国家灵长类动物研究中心的 Ann Chahroudi 博士、俄勒冈健康与科学大学的 Afam Okoye 博士 & 科学大学以及加州大学戴维斯分校的 Satya Dandekar 博士提供了恒河猴组织。本研究由 R21MH128034、R21AI167709、R01MH136852、R01MH139446 和 R01AI186609 项目资助。资助方在研究设计、数据收集与分析、发表决定或手稿准备过程中未发挥任何作用。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 mL 注射器 | VWR | Cat# 76837-040 | |
| 25 mL 血清移液管 | VWR | Cat# 76201-710 | |
| ACK 裂解缓冲液 | Thermo Fisher Scientific | Cat# A1049201 | |
| 抗生素-抗真菌剂(100 倍) | Thermo Fisher Scientific | Cat# 15240112 | |
| autoMACS 冲洗液 | Miltenyi Biotec | Cat# 130-091-222 | |
| 生物安全柜(BSL-2) | |||
| CD11b 微珠,人和小鼠 – 冻干粉 | Miltenyi Biotec | Cat# 130-097-142 | |
| CD11b 微珠,非人灵长类 | Miltenyi Biotec | Cat# 130-091-100 | |
| CD3 微珠试剂盒,非人灵长类 | Miltenyi Biotec | Cat# 130-092-012 | |
| 细胞计数载片 | Thermo Fisher Countess | Cat# C10312 | 替代品 VWR,Cat# 10228-0050 |
| Clorox 杀菌漂白剂 | Essendant | Cat# 50371500 | |
| Corning 未经处理的培养皿 | Thermo Fisher Scientific | Cat# 08-772-32 | |
| 食蟹猴 M-CSF | Kingfisher Biotech | Cat# RP1612Y-100 | |
| 带鲁尔锁扣接头的一次性注射器 | BD | Cat# 14-829-45 | |
| DMEM/F-12 | Thermo Fisher Scientific | Cat# 11320082 | |
| DNase I,重组型,无 RNase 活性 | Roche | Cat# 4716728001 | |
| EasySep 缓冲液 | STEMCELL Technologies | Cat# 20144 | |
| EasySep FITC 阳性选择试剂盒 II | STEMCELL Technologies | Cat# 17682 | |
| EasySep 人 CD3 阳性选择释放试剂盒 | STEMCELL Technologies | Cat# 17751 | |
| Falcon 细胞筛,70 µm 和 100 µm | Corning | Cat# 21008-950 | |
| 胎牛血清(FBS) | VWR | Cat#97068-091 | |
| 精细弯头镊子 | VWR | Cat# 82027-410 | |
| 庆大霉素 | Thermo Fisher Scientific | Cat# 15750060 | |
| Gibco RPMI 1640 | Thermo Fisher Scientific | Cat# 11875-119 | |
| HBSS,1 倍,不含钙、镁和酚红 | Thermo Fisher Scientific | Cat# 14175103 | |
| HBSS,10 倍,含钙、镁和酚红 | Thermo Fisher Scientific | Cat# 14060040 | |
| 血细胞计数板或自动细胞计数仪 | |||
| 人 M-CSF | PeproTech | Cat# 300-25 | 替代品 Cat# 78057 |
| 用于磁性分离的等渗冲洗/稀释溶液 | Miltenyi Biotec | 130-091-222 | |
| L-谷氨酰胺(200 mM) | Thermo Fisher Scientific | Cat# 25030-061 | |
| MACS BSA 储存液(20 倍) | Miltenyi Biotec | Cat# 130-091-376 | |
| 磁性分离系统 | EasySep 或 MACS | ||
| MS 柱 | Miltenyi Biotec | Cat# 130-042-201 | |
| 青霉素-链霉素 | Thermo Fisher Scientific | Cat# 15140122 | |
| Percoll | Cytiva/GE Healthcare, | Cat# GE17-0891-01 | |
| 防护服 | Kappler ProVent | Cat# 17-988-497B | |
| 冷冻离心机 | |||
| 丙酮酸钠(100 mM) | Thermo Fisher Scientific | Cat# 11360070 | |
| 标本镊 | VWR | Cat# 82027-440 | 替代品 Cat# 82027-438 |
| 无菌一次性手术刀片 | Cardinal Health | Cat# 11213-237 | 替代品 VWR,Cat# 89140-800 |
| TrypLE Express 酶(1 倍),含酚红 | ThermoFisher | Cat# 1250510 |
参考文献
- Prinz M, Masuda T, Wheeler MA, Quintana FJ. Microglia and central nervous system-associated macrophages: from origin to disease modulation. Annu Rev Immunol. 2021;39:251-77.
- Labzin LI, Heneka MT, Latz E. Innate immunity and neurodegeneration. Annu Rev Med. 2018;69:437-49.
- Thompson KK, Tsirka SE. The diverse roles of microglia in the neurodegenerative aspects of central nervous system (CNS) autoimmunity. Int J Mol Sci. 2017;18(3):504.
- Cornell J, Salinas S, Huang HY, Zhou M. Microglia regulation of synaptic plasticity and learning and memory. Neural Regen Res. 2022;17(4):705-16.
- Konishi H, Kiyama H, Ueno M. Dual functions of microglia in the formation and refinement of neural circuits during development. Int J Dev Neurosci. 2019;77:18-25.
- Fujita Y, Yamashita T. Neuroprotective function of microglia in the developing brain. Neuronal Signal. 2021;5(1):NS20200024.
- Gao C, Jiang J, Tan Y, Chen S. Microglia in neurodegenerative diseases: mechanism and potential therapeutic targets. Signal Transduct Target Ther. 2023;8(1):359.
- Leng F, Edison P. Neuroinflammation and microglial activation in Alzheimer disease: where do we go from here? Nat Rev Neurol. 2021;17(3):157-72.
- Hickman S, et al. Microglia in neurodegeneration. Nat Neurosci. 2018;21(10):1359-69.
- Donoso M, et al. Identification, quantification, and characterization of HIV-1 reservoirs in the human brain. Cells. 2022;11(15):2379.
- Asahchop EL, et al. Reduced antiretroviral drug efficacy and concentration in HIV-infected microglia contributes to viral persistence in brain. Retrovirology. 2017;14(1):47.
- Tang Y, et al. Brain microglia serve as a persistent HIV reservoir despite durable antiretroviral therapy. J Clin Invest. 2023;133(12):e167417.
- Thompson LJP, et al. HIV-associated neurocognitive disorder: a look into cellular and molecular pathology. Int J Mol Sci. 2024;25(9):4697.
- Olivier IS, Cacabelos R, Naidoo V. Risk factors and pathogenesis of HIV-associated neurocognitive disorder: the role of host genetics. Int J Mol Sci. 2018;19(11):3594.
- Eggers C, et al. HIV-1-associated neurocognitive disorder: epidemiology, pathogenesis, diagnosis, and treatment. J Neurol. 2017;264(8):1715-27.
- Prates GS, et al. HIV expression persists in the cerebrospinal fluid of HIV-associated neurocognitive disorders despite effective ART. Emerg Microbes Infect. 2026;15(1):2616945.
- Ash MK, Al-Harthi L, Schneider JR. HIV in the brain: identifying viral reservoirs and addressing the challenges of an HIV cure. Vaccines (Basel). 2021;9(8):867.
- Andersen ND, Srinivas S, Piñero G, Monje PV. A rapid and versatile method for the isolation, purification and cryogenic storage of Schwann cells from adult rodent nerves. Sci Rep. 2016;6(1):31781.
- Flores-Obando RE, Freidin MM, Abrams CK. Rapid and specific immunomagnetic isolation of mouse primary oligodendrocytes. J Vis Exp. 2018;(135):e57543.
- Van Wageningen TA, et al. Regulation of microglial TMEM119 and P2RY12 immunoreactivity in multiple sclerosis white and grey matter lesions is dependent on their inflammatory environment. Acta Neuropathol Commun. 2019;7(1):206.
- Honarpisheh P, et al. Potential caveats of putative microglia-specific markers for assessment of age-related cerebrovascular neuroinflammation. J Neuroinflammation. 2020;17(1):366.
- Rai MA, et al. Comparative analysis of human microglial models for studies of HIV replication and pathogenesis. Retrovirology. 2020;17(1):35.
- Gumbs SB, et al. Human microglial models to study HIV infection and neuropathogenesis: a literature overview and comparative analyses. J Neurovirol. 2022;28(1):64-91.
- Ma Z, Zhou Y, Collins DJ, Ai Y. Fluorescence activated cell sorting via a focused traveling surface acoustic beam. Lab Chip. 2017;17(18):3176-85.
- Sutermaster BA, Darling EM. Considerations for high-yield, high-throughput cell enrichment: fluorescence versus magnetic sorting. Sci Rep. 2019;9(1):227.
- Simon M, et al. Loss of perivascular aquaporin-4 localization impairs glymphatic exchange and promotes amyloid β plaque formation in mice. Alzheimers Res Ther. 2022;14(1):59.
- Olah M, et al. A transcriptomic atlas of aged human microglia. Nat Commun. 2018;9(1):539.
- Nühn MM, et al. Shock and kill within the CNS: a promising HIV eradication approach? J Leukoc Biol. 2022;112(5):1297-315.
- Donlin LT, et al. Methods for high-dimensional analysis of cells dissociated from cryopreserved synovial tissue. Arthritis Res Ther. 2018;20(1):139.
- Montanari M, et al. Automated-mechanical procedure compared to gentle enzymatic tissue dissociation in cell function studies. Biomolecules. 2022;12(5):701.
- Galatro TF, et al. Isolation of microglia and immune infiltrates from mouse and primate central nervous system. In: Clausen BE, Laman JD, editors. Inflammation: Methods and Protocols. New York: Humana Press; 2017. p. 333-42.
- Grabert K, McColl BW. Isolation and phenotyping of adult mouse microglial cells. In: Rousselet G, editor. Macrophages: Methods and Protocols. New York: Humana Press; 2018. p. 77-86.
- Ocañas SR, et al. Minimizing the ex vivo confounds of cell-isolation techniques on transcriptomic and translatomic profiles of purified microglia. eNeuro. 2022;9(2):ENEURO.0348-21.2022.
- Subra C, Trautmann L. Role of T lymphocytes in HIV neuropathogenesis. Curr HIV/AIDS Rep. 2019;16(3):236-43.
- Farhadian SF, et al. HIV viral transcription and immune perturbations in the CNS of people with HIV despite ART. JCI Insight. 2022;7(13):e160267.
- Marsh SE, et al. Dissection of artifactual and confounding glial signatures by single-cell sequencing of mouse and human brain. Nat Neurosci. 2022;25(3):306-16.
- Jolly S, et al. Single-cell quantification of mRNA expression in the human brain. Sci Rep. 2019;9(1):12353.
- Schroeter CB, et al. One brain-all cells: a comprehensive protocol to isolate all principal CNS-resident cell types from brain and spinal cord of adult healthy and EAE mice. Cells. 2021;10(3):651.
- Swartzlander DB, et al. Concurrent cell type-specific isolation and profiling of mouse brains in inflammation and Alzheimer's disease. JCI Insight. 2018;3(13):e121109.
- Zhao J, et al. Single-cell RNA sequencing reveals the heterogeneity of liver-resident immune cells in human. Cell Discov. 2020;6(1):22.
- Li X, et al. Histone decrotonylation plays a distinct role in HIV latency. Sci Adv. 2026;12(15):eaec0149.
- Heng Y, et al. The effects of postmortem delay on mouse and human microglia gene expression. Glia. 2021;69(4):1053-60.
- Trujillo M, et al. Combined mechanical and enzymatic dissociation of mouse brain hippocampal tissue. J Vis Exp. 2021;(176):e63007.
- Herron S, Delpech JC, Madore C, Ikezu T. Using mechanical homogenization to isolate microglia from mouse brain tissue to preserve transcriptomic integrity. STAR Protoc. 2022;3(4):101670.
- STEMCELL Technologies. How to prepare a single cell suspension from a frozen cell sample. protocols.io. 2019. doi:10.17504/protocols.io.4umgwu6.
- Volovitz I, et al. A non-aggressive, highly efficient, enzymatic method for dissociation of human brain tumors and brain tissues to viable single cells. BMC Neurosci. 2016;17(1):30.
- Manglani M, Gossa S, McGavern DB. Leukocyte isolation from brain, spinal cord, and meninges for flow cytometric analysis. Curr Protoc Immunol. 2018;121(1):e44.
- Bakina O, et al. In situ Patch-seq analysis of microglia reveals a lack of stress genes as found in FACS-isolated microglia. PLoS One. 2024;19(7):e0302376.
- Narasipura SD, et al. Inflammatory responses revealed through HIV infection of microglia-containing cerebral organoids. J Neuroinflammation. 2025;22(1):36.
- Haage V, et al. Comprehensive gene expression meta-analysis identifies signature genes that distinguish microglia from peripheral monocytes/macrophages in health and glioma. Acta Neuropathol Commun. 2019;7(1):20.
- Pan J, Wan J. Methodological comparison of FACS and MACS isolation of enriched microglia and astrocytes from mouse brain. J Immunol Methods. 2020;486:112834.
- Bordt EA, et al. Isolation of microglia from mouse or human tissue. STAR Protoc. 2020;1(1):100035.
- Bohlen CJ, Bennett FC, Bennett ML. Isolation and culture of microglia. Curr Protoc Immunol. 2019;125(1):e70.
- MacMullan MA, et al. An enzyme-free, cold-process acoustic method for gentle and effective tissue dissociation. bioRxiv. 2023:2023.10.03.560704. doi:10.1101/2023.10.03.560704.
- Mattei D, et al. Enzymatic dissociation induces transcriptional and proteotype bias in brain cell populations. Int J Mol Sci. 2020;21(21):7944.
- Kuzmichev YV, et al. Application of ultrasensitive digital ELISA for p24 enables improved evaluation of HIV-1 reservoir diversity and growth kinetics in viral outgrowth assays. Sci Rep. 2023;13(1):10958.
- Ferreira EA, Clements JE, Veenhuis RT. HIV-1 myeloid reservoirs: contributors to viral persistence and pathogenesis. Curr HIV/AIDS Rep. 2024;21(2):62-74.
- León-Rivera R, et al. Central nervous system viral seeding by mature monocytes and potential therapies to reduce CNS viral reservoirs in the cART era. mBio. 2021;12(2):e03633-20.
- Alyaqoobi Z, He Y, Wang X. Single-cell and bulk transcriptome analysis reveals the impact of inflammatory microglia on prognosis and immunotherapy response in primary glioblastoma. Clin Transl Oncol. 2026;28(6):2314-34.
- Farhadian SF, et al. Single-cell RNA sequencing reveals microglia-like cells in cerebrospinal fluid during virologically suppressed HIV. JCI Insight. 2018;3(18):e121718.
- Spurgat MS, Tang SJ. Single-cell RNA-sequencing: astrocyte and microglial heterogeneity in health and disease. Cells. 2022;11(13):2021.
- Marsh SE, et al. Multi-modal analysis and modeling of human neurodegenerative disease to reveal disease mechanisms and biomarkers. Alzheimers Dement. 2022;18:e061905.