该方案描述了进行杂交链式反应荧光检测所需的步骤 原位 杂交(HCR-FISH)在 黑腹果蝇 幼虫视叶。本文详细介绍了探针设计、杂交、扩增及组织封片的操作步骤,以促进对发育中视叶的可视化观察。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
杂交链式反应FISH在发育过程中的应用 果蝇 视叶
* These authors contributed equally
本文内容
摘要
摘要
理解神经发育需要精确表征基因表达的时间和位置。诸如 原位 杂交技术长期以来已能够实现发育组织中基因表达的可视化。尽管 原位 杂交技术被广泛应用于 黑腹果蝇 胚胎,其在视觉系统发育研究中的应用受到若干技术挑战的限制。例如,较长的探针通常难以充分渗透至视叶,而依赖可扩散催化报告分子(如辣根过氧化物酶)的方法在整体样本制备中往往产生较低的信噪比。荧光杂交链式反应 原位 杂交链式反应荧光原位杂交(HCR-FISH)克服了上述诸多局限,实现了更稳定的信号检测。与传统FISH相同,DNA探针单体可与组织内的RNA序列杂交。然而,在HCR-FISH中,携带荧光标记的放大探针形成稳定的发夹结构,可触发额外单体的聚合,从而增强信号强度。多重探针组的使用还允许采用更短的寡核苷酸(约45 nt,而传统FISH中可达1,000 nt),提高了探针穿透性,并在整体样本中产生更均匀的染色效果。本文介绍了一种优化的HCR-FISH实验方案,适用于 果蝇 幼虫视叶。本方案通过优化固定条件并提高探针和发夹寡核苷酸的浓度,对现有的HCR-FISH方法进行了改进,以增强信号强度和组织穿透性。文中提供了详细的试剂清单和分步操作流程。此外,还展示了该技术在发育神经生物学中的潜在应用,包括新生神经元的可视化,以及在内源标记蛋白或抗体染色等常规方法无法提供足够信息时,对基因表达模式的表征。
引言
要理解大脑是如何组装的,需要鉴定出存在的细胞类型多样性以及每种细胞类型中表达的基因组合1。单细胞RNA测序技术的最新进展使研究人员能够以高分辨率回答这些问题2。然而,许多单细胞方法无法保留空间信息,因此需要额外的实验将转录组定义的细胞类型簇定位到发育中大脑的特定区域。
诸如 GAL4-UAS 的双元基因表达系统可提供位置信息,但无法实现定量分析3。此外,基因表达与报告基因检测之间的时间延迟可能掩盖早期发育阶段中具有生理相关性的表达模式。免疫染色是确定组织特异性表达模式的另一种常用方法4。然而,分泌蛋白通常分布弥散,难以精确定位。
核苷酸标记方法,例如原位杂交(in situ hybridization, ISH),也被广泛用于获取基因表达的空间信息5。在 ISH 中,标记的 DNA 寡核苷酸与目标 RNA 的互补序列特异性结合。早期的 ISH 方法使用放射性标记的 DNA 探针6,而后续的实验方案则采用了更安全的标记物,如地高辛、荧光素和罗丹明7,8,9。科学家迅速将 ISH 技术应用于黑腹果蝇(Drosophila melanogaster)研究,用以解析多线染色体的结构,并在整体胚胎中标记如 hunchback 等间隔基因的表达模式10,11。
尽管原位杂交(ISH)具有广泛应用价值,但其在较厚的整体标本(如幼虫视叶)中的应用仍受到若干技术局限性的阻碍。许多 原位 实验方案依赖于可扩散的催化报告分子,例如辣根过氧化物酶,这通常导致信噪比较低12此外,许多方法采用针对单一序列的长探针以提高特异性。尽管这种方法有效,但 果蝇 胚胎和多线染色体中,较长的探针难以充分渗透到幼虫脑组织,且常导致标记不均10,11,13.
单分子荧光原位杂交(smFISH)与杂交链式反应荧光技术的发展 原位 杂交(HCR-FISH)解决了其中许多局限性14,15通过使用覆盖单个基因区域的一组短探针,单分子荧光原位杂交(smFISH)将探针的平均长度从约1,000 nt缩短至约40 nt。16这显著提高了探针的穿透性,同时保持了较强的信号强度。HCR-FISH 通过使用荧光标记的放大探针,进一步提高了信噪比,从而增强定位准确性并放大信号输出。重要的是,该扩增步骤似乎与转录本浓度呈线性关系,因此能够实现基因表达水平的定量测量。17.
HCR-FISH 从与目标序列互补的引发探针开始。这些未标记的 DNA 寡核苷酸包含一个单链引发序列,可与荧光标记的 H1 放大探针的输入区域结合。H1 放大探针呈发夹结构,在未与引发序列结合时保持催化失活状态。一旦结合,H1 放大探针打开,暴露出可与配对探针 H2 结合的序列。该相互作用使 H2 发夹结构打开,从而使其能够结合另一个 H1 探针(图 1)15。H1 与 H2 结合的重复循环生成一种稳定的聚合物,在放大荧光信号的同时降低背景噪声。由于每个引发序列均特异性对应一对 H1/H2 探针,因此可同时使用具有不同引发序列和荧光染料的多种探针,在同一样本中标记多个基因。
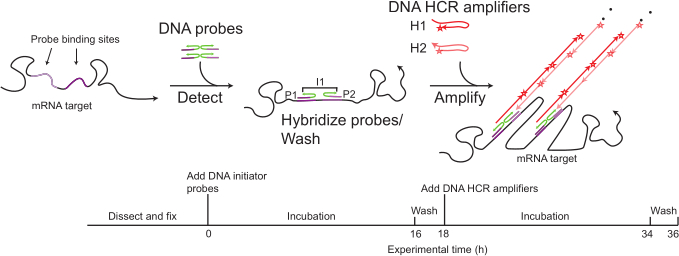
图1:HCR-FISH 工作流程的图示。 含有引发序列的 DNA 探针与靶标 RNA 转录本杂交。荧光标记的 DNA 放大发夹结构结合至引发序列,并发生连续聚合,形成稳定的双链放大链。直接连接荧光团可增强信号放大效果及信噪比。请点击此处查看此图的放大版本。
HCR-FISH 技术的近期改进进一步提升了其应用价值。通过采用可分裂的引发探针设计,可提高扩增器的特异性;而将 HCR 引发物与二抗偶联,则可实现免疫组织化学与 HCR-FISH 的同步检测18。此外,目前可选的荧光染料种类不断扩展,现已能够同时对多达 10 个基因进行多重成像19,20。
尽管 HCR-FISH 的初步概念验证实验是在斑马鱼(Danio rerio)中进行的,但该方法已在多种生物体系中得到广泛应用,特别是在那些抗体昂贵或无法获得的非模式生物中15。探针合成相比抗体制备也提供了更快的替代方案,后者往往需要数月的开发时间。因此,HCR-FISH 为通过单细胞 RNA 测序数据集鉴定出的候选基因提供了快速验证手段21。即使在已建立的遗传模式生物中,当 GAL4 报告系统或免疫组织化学无法充分标记特定细胞群体时,HCR-FISH 仍是一种用于空间定位新生神经元的有价值方法。
本文描述了一种针对三龄幼虫优化的HCR-FISH实验方案 果蝇 视叶。该方案借鉴了先前在其他生物中发表的方法,并将其应用于 果蝇 视觉系统22常用的固定条件 果蝇 免疫组织化学的实验条件已针对FISH应用进行了优化。探针和发夹结构的浓度已提高,以增强信号强度并改善试剂对组织的穿透性。采用PCR管替代点样板,以减少试剂消耗并简化对小型组织样本的操作。此外,洗涤和杂交时间也已缩短,以适应较小样本的尺寸 果蝇 与其他常用于HCR-FISH的昆虫系统相比,大脑组织具有更高的复杂性。
代表性应用展示了该方法如何在发育过程中为特定神经元群体提供位置信息。这些实验表明,与抗体染色或报告基因品系相比,某些转录本(如 abrupt)可通过 HCR-FISH 更早地被检测到。本文还讨论了在研究果蝇(Drosophila)视觉系统发育过程中应用 HCR-FISH 时可能遇到的挑战、相应的故障排除策略及其应用前景。
访问受限。请登录或开始试用以查看此内容。
方案
Drosophila melanogaster 的所有实验均按照纽约市立学院、哥伦比亚大学和纽约大学关于实验生物护理与使用的指南进行。本实验方案中使用的研究工具列于材料表中。
1. 准备缓冲液
注意:使用滤芯枪头,在无核酸酶的离心管中配制所有试剂。
注意:整个操作过程中需佩戴手套。实验开始前,用RNase去污染溶液清洁工作台面。
- 准备无核酸酶溶液
- 通过将20x PBS、Triton X-100和甘氨酸溶于无核酸酶水中,配制1x PBS-T,终浓度为1x PBS、1% (v/v) Triton X-100和1 mM甘氨酸。
- 通过将20x SSC和Tween-20溶于无核酸酶水中,配制5x SSCT,终浓度为5x SSC并含0.1% (v/v) Tween-20。
- 将20x PBS用无核酸酶水稀释,配制1x PBS。
2. 设计探针
- 要设计商业探针,选择 目标物种中感兴趣的目的亚型 使用供应商的网页界面订购与所需扩增子匹配的探针。
注意: 商业化的HCR探针化学体系及引发序列均为专有技术 并由 Molecular Instruments 持有专利。- 修改目标区域 如果需要进行转录本特异性或pre-mRNA检测,可使用网络界面。
- 为高表达转录本订购约20个探针,对于整体样本中低丰度转录本,可使用多达40个探针。 黑腹果蝇 制备物。
注意: 为较短的转录本订购专用的寡核苷酸,以适应较少的探针结合位点。
- 手动设计探针时,需下载目标转录本的FASTA序列。确定是针对单一转录本还是该基因的所有转录本。
注意: 优先选择从RNA测序数据集中鉴定出的组成型外显子或高表达的转录本异构体 增强信号- 若设计用于前体mRNA检测的探针,应设计跨越内含子-外显子连接区的探针。探针应跨越剪接位点 检测成熟转录本。使用内含子探针检测细胞核内的新生转录本。
注意: 内含子探针可能不会与成熟的细胞质转录本共定位,因此可能需要额外的标记物来识别细胞。 - 确定探针集大小。对于短转录本,在无法设计较大探针集的情况下,至少使用约5个探针;标准应用使用20个探针;对于整体样本中实现最佳灵敏度,建议使用约40个探针。18,23.
- 若自行设计探针,应使用由2bp间隔区分开的25nt序列,并在每条寡核苷酸的5’端添加分裂的引发序列。
注意: 尽管第一代分裂启动子序列已公开,但新一代商业化的启动子序列属于专有技术18. - 若自行设计探针,需验证探针序列,确保每组内各探针具有相似的熔解温度,并确认探针间序列完全一致(100%同源性)。
注意: 避免富含G的强二级结构区域,并保持各探针之间的GC含量相近24. 尽量减少重复序列,并使用BLAST评估脱靶结合25. - 在适当情况下使用公开可用的探针设计软件26,27.
注意: 开源设计工具可能无法重现商业探针设计流程的优化性能。
- 若设计用于前体mRNA检测的探针,应设计跨越内含子-外显子连接区的探针。探针应跨越剪接位点 检测成熟转录本。使用内含子探针检测细胞核内的新生转录本。
3. 解剖、固定并预杂交大脑
- 将探针杂交缓冲液预热至 37 °C。
注意:探针杂交缓冲液含有甲酰胺。操作时须佩戴适当的个人防护装备,并在化学通风橱中进行。 - 使用无核酸酶的去离子水将每组探针稀释至终浓度为 1 µM。
- 将约 250 µL 无核酸酶的 PBS 溶液分装至解剖皿中。
- 用镊子将一只自由爬行的三龄幼虫转移至 PBS 中。用一对镊子夹住腹部,用另一对镊子夹住口钩,将口钩从身体上拉开,以分离出脑和腹神经索(VNC)。
- 去除脂肪体和唾液腺,保留腹神经索。将解剖得到的脑组织转移至含有 600 µL 冰上预冷的无核酸酶 PBS 的离心管中。
注意:在整个解剖过程中保持视叶浸没在液体中,以防止组织干燥。 - 重复解剖操作,直至收集到约六个视叶。解剖过程应在 20 分钟内完成,以尽量减少组织降解。
- 加入 200 µL 16% 多聚甲醛(PFA),使终浓度达到 4% PFA。轻轻颠倒混匀离心管,并在室温下孵育 15 分钟。
注意:PFA 具有毒性和致突变性。操作时须佩戴手套,并在化学通风橱中进行。 - 移除样品中的固定液,并按指定化学废弃物处理。用 600 µL 冷的无核酸酶 PBS 洗涤样品三次,使用 解剖皿收集洗涤液。
注意:检查洗涤液中是否有组织丢失,并在解剖显微镜下回收任何移位的脑组织。 - 将脑组织转移至含有 100 µL 预热探针杂交缓冲液的 PCR 管中。
通过轻弹管壁轻轻混匀,在室温下孵育 10 分钟。
注意:确保脑组织保持浸没状态,不附着于管壁。
4. 杂交探针
- 通过将每组探针各0.4 pmol加入探针杂交缓冲液中,配制终体积为100 µL的4 nM探针溶液。
注意:若初始染色信号强度较低,可将探针浓度提高至16 nM。 - 移除预杂交缓冲液时避免扰动组织,向每个样本中加入稀释后的探针溶液。
- 将样本置于37 °C摇床上孵育16–24小时。
5. 放大探针信号
- 将扩增缓冲液置于室温。每份样品准备约 200 µL 扩增缓冲液。
- 平衡洗涤缓冲液。将探针洗涤缓冲液在水浴中预热至 37 °C 。
注意:探针洗涤缓冲液含有甲酰胺。请在化学通风橱中操作。 - 移除探针溶液,并于 -20 °C 保存以供重复使用。
注意:探针溶液可重复使用,直至染色强度下降。 - 在 37 °C 预热的探针洗涤缓冲液中,对样品进行四次洗涤,每次 10 分钟。在室温的 5x SSCT 中对样品进行两次洗涤,每次 5 分钟。
- 加入不含发夹探针的 100 µL 扩增缓冲液。在室温下孵育 30 分钟。
- 将热循环仪预热至 95 °C。将 2 µL 的每种 3 µM 发夹探针原液分别加入不同的 PCR 管中。每种发夹探针准备一个独立的 PCR 管。
注意:若染色产生稀疏的点状信号或信噪比较低,应提高扩增剂浓度。 - 在 95 °C 孵育发夹探针 90 秒。避光并在室温下继续孵育至少 30 分钟。
- 配制扩增溶液。将发夹探针加入扩增缓冲液中,每份样品终体积为 100 µL。
- 从样品中移除扩增缓冲液,加入含发夹探针的扩增缓冲液。
在避光条件下(用铝箔包裹),于室温在旋转摇床上孵育过夜 。 - 移除扩增溶液。在 150 µL 的 5x SSCT 中洗涤样品两次,每次 5 分钟。在 150 µL 的 5x SSCT 中于旋转摇床上洗涤三次,每次 10 分钟。用无核酸酶 PBS 进行两次快速洗涤,以去除去污剂。
6. 为成像制备脑组织切片
- 将成像间隔贴纸粘附到玻璃载玻片上。轻轻按压以确保贴合。 使用镊子的底端去除滞留的气泡。
- 使用镊子沿腹神经索将脑部纵向剖开。
- 将脑组织置于隔片孔的中央,侧向定位,使视叶朝上。
- 加入足量的抗荧光淬灭封片剂(约 25 µL) 用镊子均匀分布封片剂,以填满孔板并避免引入气泡。
- 将盖玻片置于样品上,并用指甲油封固。
访问受限。请登录或开始试用以查看此内容。
结果
对于研究发育神经生物学的科学家而言, HCR-FISH 提供了一种强大的方法,用于可视化基因表达模式,并确定发育中的神经元在黑腹果蝇(Drosophila)视叶内的空间位置。
在 Drosophila 视叶中(图 2A),髓质神经节中的神经元起源于由空间模式化神经上皮——外增殖中心(Outer Proliferation Center, OPC)产生的神经干细胞(神经母细胞)(图 2B)28。这些神经母细胞按顺序表达转录因子,随时间推移产生多样化的神经元。因此,神经元根据出生顺序排列成同心环状结构29,30,31,32...
访问受限。请登录或开始试用以查看此内容。
讨论
本研究描述了一种用于HCR-FISH的改良方法 黑腹果蝇 幼虫视叶。常规 原位 杂交方法在整体幼虫脑组织中通常效果较差,主要由于探针渗透有限和信号强度低。本文介绍的方案通过优化多个关键步骤,提高了发育中视叶染色的质量。通常用于 果蝇 免疫组织化学方法经过调整,以在保持RNA完整性的同时保护组织形态。提高探针和扩增剂的浓度可增强信号强度和信噪比,尤其对于表达较弱的转录本而言效果显著,例如 突然的此外,较短的探针长度改善了在约100 µm厚的幼虫脑组织中的渗透,包括DAPI染色通常渗透受限的区域图 2D).
成功实施本方案需注意若干技术要点。解剖过程中,视叶必须始终保持浸没在缓冲液中,以防止固定前组织脱水。由于HCR-FISH用于检测RNA转录本,所有步骤均应在无RNase的条件下进行,以最大限度减少RNA降解。正确的发夹探针制备对于实现有效的信号放大也至关重要。发夹探针必须在扩增前分别进行变性与冷却,以防止在探针结合前发生过早的聚合反应。
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在任何竞争性经济利益。
致谢
作者感谢Claude Desplan提供了Molecular Instruments的HCR-FISH探针以及dpp-GAL4; UAS-Stinger果蝇品系。作者还感谢Molecular Instruments的Aneesh Acharya和Harry Choi在HCR-FISH技术实施方面提供的技术反馈和讨论。本实验方案改编自此前已发表和未发表的HCR-FISH方法,这些方法由Meg Younger22、Hunter Whitbeck、Bogdan Sieriebriennikov、Amanda Araujo Gomes Ferreira、Yen-Chung Chen和Yanqiqi Zeng开发。Bogdan Sieriebriennikov得到了人类前沿科学计划(HFSP,项目编号LT000010/2020-L)的支持。Jennifer Malin得到了美国国立卫生研究院(NIH)R00资助项目EY032269的支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10% Tween-200 | 伯乐生命科学公司 | 1662404 | NA |
| 20x PBS,pH 7.4 | Growcells.com | MRGF-6396 | 2.74 M NaCl,53.7 mM KCl,20.3 mM Na2HPO4,29.4 mM KH2PO4 |
| 20x SSC | 高质量生物学 | 351-003-131 | 3M NaCl,0.3M 柠檬酸钠 |
| 37 °C孵箱 | Fisher Scientific(Isotemp) | 15-015-2633 | NA |
| 37 °C 水浴 | Fisher Scientific | FSGPD15D | NA |
| 铝箔 | Reynolds Wrap/Fisher Brand | 15-078-291 | NA |
| 抗体:小鼠抗Abrupt | DSHB | 突然;RRID: AB_528344 | 稀释比例:1:20 |
| 抗体:鸡抗GFP | Millipore Sigma | 目录号 06-896;RRID: AB-619712 | 稀释比例:1:500 |
| 抗体:兔抗GFP | Life Technologies | #11122;RRID:AB_221569 | 稀释比例:1:500 |
| 抗体:兔抗 Dll | Genscript/Desplan 实验室 | - | 稀释比例:1:200 |
| 抗体:大鼠抗NCadherin | DSHB | DN-Ex #8,RRID: AB_528121 | 稀释比例:1:50 |
| 抗体:兔抗 SoxN | Genscript/Desplan 实验室 | - | 稀释比例:1:200 |
| 抗体:豚鼠抗Traffic jam | D. Godt 惠赠 | - | 稀释比例:1:2,000 |
| 抗体:驴抗大鼠 405 | 杰克逊免疫研究实验室 | 货号 # 712-475-150;RRID: AB_2340680 | 稀释比例:1:100 |
| 抗体:驴抗鸡488 | 杰克逊免疫研究实验室 | 货号 #703-545-155;RRID: AB_2340375 | 稀释比例:1:200 |
| 抗体:驴抗小鼠488 | 杰克逊免疫研究公司 | 货号 #715-545-151;RRID: AB_2341099 | 稀释比例:1:200 |
| 抗体:驴抗兔 488 | 杰克逊免疫研究实验室 | 编号 #711-545-152;RRID: AB_2313584 | 稀释比例:1:200 |
| 抗体:驴抗兔 A555 | 赛默飞世尔科技 | 目录号 #A-31572;RRID: AB_162543 | 稀释比例:1:200 |
| 抗体:驴抗大鼠Cy3 | 杰克逊免疫研究实验室 | 货号 #712-165-153;RRID: AB_2340667 | 稀释比例:1:200 |
| 抗体:驴抗豚鼠 647 | Jackson ImmunoResearch | 货号 #706-605-148;RRID: AB_2340476 | 稀释比例:1:200 |
| 抗体:驴抗大鼠647 | 杰克逊免疫研究实验室 | 货号 #712-605-153;RRID: AB_2340694 | 稀释比例:1:200 |
| 抗荧光淬灭封片剂 | 赛默飞世尔科技 | S36940(SlowFade Gold 抗荧光淬灭封片剂) | 其他慢速淬灭剂也可以使用,包括含 DAPI (S36936) 的淬灭剂 |
| 共聚焦显微镜 | Zeiss | LSM-880 | NA |
| 盖玻片(22 × 30) | VWR | 16004-332 | NA |
| 果蝇:黑腹果蝇:ab-GFP-FLAG | BDSC | 38626;RRID:BDSC_38626 | NA |
| 果蝇:黑腹果蝇:Canton S | BDSC | 64349;RRID:BDSC_64349 | NA |
| 果蝇:黑腹果蝇:dpp-Gal4 | BDSC | 1553;RRID:BDSC_1553 | NA |
| 果蝇:黑腹果蝇:ham-GFP.FPTB | BDSC | 83660;RRID:BDSC_83660 | NA |
| 果蝇:D. melanogaster:yw;10xUAS-myr-GFP; | BDSC | 32198;RRID:BDSC_32198 | NA |
| 果蝇:黑腹果蝇:UAS-Stinger | BDSC | 84277;RRID:BDSC_84277 | NA |
| 果蝇:黑腹果蝇 wit-KO-Gal4 | BDSC | 600136;RRID:BDSC_600136 | NA |
| 镊子 | Dumont | #5 或 #55s | NA |
| 载玻片 | VWR | 16005-106 | NA |
| 甘氨酸 | Millipore Sigma | G7126-10MG | NA |
| HCR 扩增缓冲液 | 分子仪器 | HCR Gold RNA-FISH 试剂盒 | NA |
| HCR-Gold 放大器 | 分子仪器 | HCR Gold RNA-FISH 试剂盒 | NA |
| HCR HiFi 探针 | 分子仪器 | HCR Gold RNA-FISH 试剂盒 | NA |
| HCR探针杂交缓冲液 | 分子仪器 | HCR Gold RNA-FISH 试剂盒 | 含有甲酰胺 |
| HCR探针洗涤缓冲液 | 分子工具 | HCR Gold RNA-FISH 试剂盒 | 含有甲酰胺 |
| 指甲油(透明) | 电子显微镜科学公司 | 72180 | NA |
| 无核酸酶水(非DEPC处理) | 赛默飞世尔科技 | AM9937 | NA |
| 摆动式混合器 | 康宁/费舍尔科学公司 | 10-320-100 | NA |
| 多聚甲醛,16%(w/v) | 电子显微镜科学公司 | 15710 | 有毒的 |
| PCR仪/热循环仪 | Bio-Rad | 1851148(C1000 Touch Thermal Cycler) | NA |
| 0.2 mL 带圆顶盖条的 PCR 分离管条 | USA Scientific | #1402-2400 | NA |
| 培养皿(150 × 15 mm;用于制作解剖用培养皿) | Fisher Scientific | FB0875714 | NA |
| RNase ZAP | 赛默飞世尔科技 | AM9780 | NA |
| 间隔片贴纸 | SUNJin | IS016(iSpacer贴片(0.2 mm深)) | NA |
| Sylgard 弹性体试剂盒(用于制作解剖皿) | Fisher Scientific | NC9285739 | NA |
| Triton X-100 | 默克密理博西格玛 | X100 | NA |
参考文献
- Zeng H, Sanes JR. Neuronal cell-type classification: challenges, opportunities and the path forward. Nat Rev Neurosci. 2017;18(9):530-46.
- Macosko EZ, Basu A, Satija R, Nemesh J, Shekhar K, Goldman M, et al. Highly parallel genome-wide expression profiling of individual cells using nanoliter droplets. Cell. 2015;161(5):1202-14.
- Brand AH, Perrimon N. Targeted gene expression as a means of altering cell fates and generating dominant phenotypes. Development. 1993;118(2):401-15.
- Coons AH, Kaplan MH. Localization of antigen in tissue cells: improvements in a method for the detection of antigen by means of fluorescent antibody. J Exp Med. 1950;91(1):1-13.
- Pardue ML, Gall JG. Chromosomal localization of mouse satellite DNA. Science. 1970;168(3937):1356-8.
- Gall JG, Pardue ML. Formation and detection of RNA-DNA hybrid molecules in cytological preparations. Proc Natl Acad Sci U S A. 1969;63(2):378-85.
- Singer RH, Ward DC. Actin gene expression visualized in chicken muscle tissue culture by using in situ. hybridization with a biotinylated nucleotide analog. Proc Natl Acad Sci U S A. 1982;79(23):7331-5.
- Bauman JG, Wiegant J, Borst P, van Duijn P. A new method for fluorescence microscopical localization of specific DNA sequences by in situ. hybridization of fluorochrome-labelled RNA. Exp Cell Res. 1980;128(2):485-90.
- Herrington CS, Burns J, Graham AK, Evans M, McGee JO. Interphase cytogenetics using biotin- and digoxigenin-labelled probes. I. Relative sensitivity of both reporter molecules for detection of HPV16 in CaSki cells. J Clin Pathol. 1989;42(6):592-600.
- Tautz D, Pfeifle C. A non-radioactive in situ hybridization method for the localization of specific RNAs in Drosophila. embryos reveals translational control of the segmentation gene hunchback. Chromosoma. 1989;98(2):81-5.
- Rudkin GT, Stollar BD. High-resolution detection of DNA-RNA hybrids in situ. by indirect immunofluorescence. Nature. 1977;265(5593):472-3.
- van de Corput MP, Dirks RW, van Gijlswijk RP, van de Rijke FM, Raap AK. Fluorescence in situ. hybridization using horseradish peroxidase-labeled oligodeoxynucleotides and tyramide signal amplification for sensitive DNA and mRNA detection. Histochem Cell Biol. 1998;110(4):431-7.
- Schröder C, Tautz D, Seifert E, Jäckle H. Differential regulation of the two transcripts from the Drosophila. gap segmentation gene hunchback. EMBO J. 1988;7(9):2881-7.
- Dirks RM, Pierce NA. Triggered amplification by hybridization chain reaction. Proc Natl Acad Sci U S A. 2004;101(43):15275-8.
- Choi HMT, Chang JY, Trinh LA, Padilla JE, Fraser SE, Pierce NA. Programmable in situ. amplification for multiplexed imaging of mRNA expression. Nat Biotechnol. 2010;28(11):1208-12.
- Femino AM, Fay FS, Fogarty K, Singer RH. Visualization of single RNA transcripts in situ. Science. 1998;280(5363):585-90.
- Trivedi V, Choi HMT, Fraser SE, Pierce NA. Multidimensional quantitative analysis of mRNA expression within intact vertebrate embryos. Development. 2018;145(1):dev156869.
- Choi HMT, Schwarzkopf M, Fornace ME, Acharya A, Artavanis G, Stegmaier J, et al. Third-generation in situ. hybridization chain reaction: multiplexed, quantitative, sensitive, versatile, robust. Development. 2018;145(12):dev165753.
- Schulte SJ, Fornace ME, Hall JK, Shin GJ, Pierce NA. HCR spectral imaging: 10-plex, quantitative, high-resolution RNA and protein imaging in highly autofluorescent samples. Development. 2024;151(4):dev202159.
- Schwarzkopf M, Liu MC, Schulte SJ, Ives R, Husain N, Choi HMT, et al. Hybridization chain reaction enables a unified approach to multiplexed, quantitative, high-resolution immunohistochemistry and in situ. hybridization. Development. 2021;148(22):dev199847.
- Ferreira AAG, Cordoba S, Rajesh R, Choi BJ, Desplan C. A developmental single-cell atlas of the Drosophila. visual system glia reveals cell type diversification and subcellular mRNA compartmentalization. bioRxiv. 2023. Available from: https://www.biorxiv.org/content/10.1101/2023.08.06.552169v2
- Herre M, Goldman OV, Lu TC, Caballero-Vidal G, Qi Y, Gilbert ZN, et al. Non-canonical odor coding in the mosquito. Cell. 2022;185(17):3104-23.e28.
- Olivares-Abril J, Joha J, Lee JY, Davis I. Optimization of hybridization chain reaction for imaging single RNA molecules in Drosophila. larvae. Fly (Austin). 2024;18(1):2409968.
- Burge S, Parkinson GN, Hazel P, Todd AK, Neidle S. Quadruplex DNA: sequence, topology and structure. Nucleic Acids Res. 2006;34(19):5402-15.
- Altschul SF, Gish W, Miller W, Myers EW, Lipman DJ. Basic local alignment search tool. J Mol Biol. 1990;215(3):403-10.
- Lovely AM, Duerr TJ, Stein DF, Mun ET, Monaghan JR. Hybridization chain reaction fluorescence in situ. hybridization (HCR-FISH) in Ambystoma mexicanum tissue. Methods Mol Biol. 2023;2562:109-22.
- Kuehn E, Clausen DS, Null RW, Metzger BM, Willis AD, Ozpolat BD. Segment number threshold determines juvenile onset of germline cluster expansion in Platynereis dumerilii. J Exp Zool B Mol Dev Evol. 2022;338(4):225-40.
- Hofbauer A, Campos-Ortega JA. Proliferation pattern and early differentiation of the optic lobes in Drosophila. melanogaster. Roux Arch Dev Biol. 1990;198(5):264-74.
- Li X, Erclik T, Bertet C, Chen Z, Voutev R, Venkatesh S, et al. Temporal patterning of Drosophila. medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456-62.
- Hasegawa E, Kitada Y, Kaido M, Takayama R, Awasaki T, Tabata T, et al. Concentric zones, cell migration and neuronal circuits in the Drosophila. visual center. Development. 2011;138(5):983-93.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila. visual center. Dev Biol. 2013;380(1):12-24.
- Zhu H, Zhao SD, Ray A, Zhang Y, Li X. A comprehensive temporal patterning gene network in Drosophila. medulla neuroblasts revealed by single-cell RNA sequencing. Nat Commun. 2022;13(1):1247.
- Konstantinides N, Holguera I, Rossi AM, Escobar A, Dudragne L, Chen YC, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316-22.
- Konstantinides N, Kapuralin K, Fadil C, Barboza L, Satija R, Desplan C. Phenotypic convergence: distinct transcription factors regulate common terminal features. Cell. 2018;174(3):622-35.e13.
- Garcia-Alonso L, VanBerkum MF, Grenningloh G, Schuster C, Goodman CS. Fasciclin II controls proneural gene expression in Drosophila. Proc Natl Acad Sci U S A. 1995;92(23):10501-5.
- Simon F, Holguera I, Chen YC, Malin J, Valentino P, Njoo-Deplante C, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila. optic lobe. Nat Neurosci. 2026;29(5):1068-78.
- Malin JA, Chen YC, Simon F, Keefer E, Desplan C. Spatial patterning controls neuron numbers in the Drosophila. visual system. Dev Cell. 2024;59(9):1132-45.e6.
- Pinto-Teixeira F, Koo C, Rossi AM, Neriec N, Bertet C, Li X, et al. Development of concurrent retinotopic maps in the fly motion detection circuit. Cell. 2018;173(2):485-98.
- Erclik T, Li X, Courgeon M, Bertet C, Chen Z, Baumert R, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365-70.
- Özel MN, Simon F, Jafari S, Holguera I, Chen YC, Benhra N, et al. Neuronal diversity and convergence in a visual system developmental atlas. Nature. 2021;589(7840):88-95.
- Marques GS, Teles-Reis J, Konstantinides N, Brito PH, Homem CCF. Asynchronous transcription and translation of neurotransmitter-related genes characterize the initial stages of neuronal maturation in Drosophila. PLoS Biol. 2023;21(5):e3002115.
- Pan Y, Rauskolb C, Irvine KD. Near-infrared nuclear markers for Drosophila. imaging. microPublication Biol. 2022;2022. Available from: https://www.micropublication.org/journals/biology/micropub-biology-000639
访问受限。请登录或开始试用以查看此内容。
重印与许可
