本方案介绍了一种与显微镜兼容的磁性纳米驱动平台,该平台整合了荧光超顺磁性纳米颗粒、校准的电磁铁以及实时共聚焦成像技术,可对施万细胞进行远程可控刺激,并动态监测其机械感应反应。
本文内容
摘要
摘要
机械力在调控细胞行为中起着关键作用,然而现有的许多机械刺激方法依赖于直接物理接触或人工构建的细胞外环境,从而限制了其在动态活细胞研究中的灵活性。本文介绍了一种用于远程、非接触式且可调控的施万细胞力刺激的磁性纳米驱动平台。 体外该集成系统能够在同一实验过程中实现远程磁刺激与同步的活细胞成像。本文描述了荧光超顺磁性纳米颗粒(SPIONs)的制备,可选的靶向肌动蛋白的功能化SPIONs(f-SPIONs)的制备,显微镜兼容型电磁刺激装置的构建与校准,单颗粒及单细胞水平磁力的估算,以及磁驱动与实时共聚焦成像的整合。施万细胞是高度机械敏感性的胶质细胞,在周围神经的发育、维持和修复中发挥关键作用。实时监测其对机械刺激的响应对于理解机械力如何影响细胞骨架组织和细胞行为至关重要。该平台为研究施万细胞的力学生物学提供了可重复的工作流程,并可适用于其他机械响应性细胞类型及多细胞系统。
引言
机械信号调控多种细胞过程,包括黏附、迁移、增殖、分化以及表型可塑性1,2,3。机械生物学研究表明,神经元和胶质细胞在发育过程中均表现出显著的机械敏感性和响应性4,5,6,7。为了研究细胞如何感知和响应力学刺激,已发展出多种实验方法,包括原子力显微镜(AFM)、微吸管抽吸、光镊、基于拉伸的培养系统以及微流控平台8,9,10,11,12。这些技术极大地推动了力传导研究的发展。然而,许多方法需要与细胞直接物理接触,或依赖于预先设定的人工力学环境,因而较难实现远程、动态可控且兼容成像的刺激。
磁性纳米颗粒介导的力传递为远程力学刺激提供了一种替代策略13,14,15,16,17,18。由于大多数生物组织的磁化率较低,外加磁场可在无直接接触的情况下穿透生物样本,并选择性地作用于递送至细胞或组织内的磁响应性颗粒。在磁场梯度存在时,这些颗粒会受到定向力的作用,可用于在亚细胞、细胞或组织水平施加机械扰动8,9。该方法具有非接触性、可调节性、与活体成像兼容等优势,并有望拓展至更复杂的生物系统。
施万细胞是具有高度机械敏感性的胶质细胞19,20,在周围神经的发育、维持和修复过程中发挥关键作用21,22。 对施万细胞在物理刺激下反应进行动态观察,有助于理解力学信号如何调控细胞骨架的组织结构和细胞行为。然而,许多传统的施加力系统难以与实时高分辨率显微镜技术兼容。为克服这一局限,我们开发了一种磁性纳米驱动平台,该平台结合了靶向肌动蛋白细胞骨架的荧光磁性超顺磁性纳米颗粒(f-SPIONs)、一种可兼容共聚焦显微镜载物台的定制电磁装置,以及用于力估算的定量分析框架。该集成系统可在同一实验过程中实现远程磁刺激与同步的活细胞成像。
本文所述的工作流程包括荧光磁性超粒子(SPIONs)的制备、可选的基于鬼笔环肽的肌动蛋白靶向功能化以生成f-SPIONs、纳米颗粒表征、电磁装置的构建与磁场校准、磁力估算,以及结合实时共聚焦成像的磁刺激实验。尽管本方案在此针对施万细胞进行了优化,该平台仍可为其他力学响应性生命系统相关研究提供实用的框架。
方案
本方案中描述的实验使用了一种 established 大鼠施万细胞系(RSC96),未涉及人类受试者或活体动物。本研究是包含动物实验的一项 broader 研究项目的一部分,已获得吉林大学第一医院动物福利与伦理委员会批准(批准号:2022-0045)。
1. 荧光磁性超粒子的制备
- 合成油酸包覆的 Fe₃O₄ 纳米颗粒。
注:油酸包覆的 Fe₃O₄ 纳米颗粒采用热分解法合成,方法如先前所述20,23。- 在反应瓶中加入 2 mmol 的 Fe(acac)₃、6 mmol 油酸、6 mmol 油胺以及 5 mmol 的 1,2-十六烷二醇至 20 mL 苄醚中。
- 在氮气氛围下搅拌混合物 15 分钟,直至获得均一的前驱体溶液。
- 以 20 °C/min 的速率将混合物加热至 200 °C。
- 在 200 °C 下维持反应 30 分钟。
- 将温度升至 265 °C,并回流反应 30 分钟。
- 让反应混合物自然冷却至室温。
- 通过磁分离收集 Fe₃O₄ 纳米颗粒。
- 用乙醇洗涤纳米颗粒 3 次。
- 将纯化后的纳米颗粒重新分散于甲苯中。
- 组装 Fe₃O₄·Cy3.5 超粒子。
注:Fe₃O₄·Cy3.5 超粒子的制备方法如先前所述20,24,25。- 在 50 mL 三颈圆底烧瓶中,将 28 mg 油酸包覆的 Fe₃O₄ 纳米颗粒分散于 4 mL 甲苯中。
- 制备水相溶液:将 12.5 mg 十二烷基硫酸钠和 3 mg 花菁 3.5(Cy 3.5)溶于 12.5 mL 水中。
- 将 Fe₃O₄ 纳米颗粒的甲苯悬浮液(28 mg 溶于 4 mL,浓度为 7 mg/mL)与上述水相表面活性剂/染料溶液混合,形成水包油型微乳液。
- 充分混合,直至形成稳定的乳液。
- 将三颈圆底烧瓶加热至 60 °C,并在 300 rpm 条件下持续搅拌 6 小时。
注:无需进行减压或旋转蒸发操作。 - 在上述条件下蒸发甲苯,诱导 Fe₃O₄ 纳米颗粒聚集。使用一次性移液管取少量溶液转移至试管中并静置,若无相分离现象,则表明甲苯已完全去除。
- 将 Fe₃O₄·Cy3.5 超粒子悬浮液转移至 15 mL 离心管中,在室温下以 2,370 × g 离心 5 分钟以收集超粒子,小心弃去上清液,避免扰动沉淀。
- 将沉淀重新分散于超纯去离子水中,并在室温下以 2,370 × g 再次离心 5 分钟。弃去上清液,重复洗涤三次,以去除残留的游离 Cy3.5 染料和十二烷基硫酸钠。
- 用聚多巴胺(PDA)包覆超粒子。
注:聚多巴胺包覆的超粒子制备方法如先前所述20,26。- 在室温下以 2,370 × g 离心 Fe₃O₄·Cy3.5 超粒子悬浮液 5 分钟,弃去上清液。
- 将沉淀重新分散于 10 mM Tris 缓冲液(pH 8.5)中。
- 向悬浮液中加入 26 mg 多巴胺单体。
- 在碱性条件下于室温搅拌混合物 3 小时。
- 在室温下以 2,370 × g 离心悬浮液 5 分钟。
- 去除上清液,并将沉淀重新分散于超纯水中,得到 Fe₃O₄·Cy3.5@PDA 粒子(SPIONs)。
- 可选步骤:用鬼笔环肽-Alexa Fluor 350 对粒子进行功能化修饰。
注:超粒子通过市售的鬼笔环肽-Alexa Fluor 350 进行表面功能化修饰20。- 制备含有 100 单位鬼笔环肽-Alexa Fluor 350 的 5 mL 水溶液。
- 向该溶液中加入含 2 mg 粒子的 200 µL Fe₃O₄·Cy3.5@PDA 悬浮液。
- 在室温下轻轻搅拌混合物 24 小时。
- 在室温下以 2,370 × g 离心混合物 5 分钟。
- 弃去上清液,并将沉淀重新分散于去离子水中。
- 将最终的 Fe₃O₄·Cy3.5@PDA@鬼笔环肽(f-SPIONs)制剂避光保存,直至使用。
2. 纳米颗粒的表征
- 确定形貌和尺寸。
- 根据仪器要求,制备用于透射电子显微镜(TEM)或高分辨率透射电子显微镜(HRTEM)的纳米颗粒样品。
- 获取图像以确定颗粒的整体形貌、核壳结构及平均直径(图1)。
- 制备用于动态光散射(DLS)的水相纳米颗粒悬浮液。
- 测量流体动力学直径和多分散指数(PDI)。
- 比较电子显微镜与DLS结果,以评估制剂的均一性和胶体行为。
- 确定磁学性质。
- 制备适用于超导量子干涉装置(SQUID)分析的干燥或浓缩纳米颗粒样品。
- 在300 K条件下记录磁滞回线。
- 确定饱和磁化强度、剩磁和矫顽力。
- 确认颗粒表现出超顺磁性行为,且剩磁和矫顽力可忽略不计。
- 确定荧光性质。
- 将f-SPION悬浮于超纯去离子水中,并将悬浮液转移至石英比色皿中。
- 使用荧光分光光度计记录光致发光光谱。
- 确认在洗涤和重新悬浮后,荧光信号仍可被检测到。
- 使用靶向制剂时验证与肌动蛋白相关区域的定位。
- 获取RSC96细胞。
注:本研究中使用的RSC96细胞是一种通过长期培养原代大鼠施万细胞而建立的自发转化大鼠施万细胞系,购自中国科学院细胞库(中国上海,CSTR: 19375.09.3101RATGNR6),并经检测无支原体和真菌污染。实验使用第3至第10代细胞。 - 将细胞培养于添加10%胎牛血清(FBS)和1%青霉素-链霉素溶液(100 U/mL青霉素和100 µg/mL链霉素)的杜氏改良伊格尔培养基(DMEM)中。
- 以每35 mm细胞培养显微镜皿1 × 10⁵个细胞的密度接种RSC96细胞,并在含5% CO₂的湿润环境中于37 °C培养24小时,以促进细胞贴壁。
- 吸除原有培养基,用磷酸盐缓冲液(PBS)洗涤细胞两次,然后加入含有15 µg/mL f-SPIONs的完全培养基。将细胞与f-SPIONs共孵育12小时。
- 吸除培养基,用含1 mM去铁胺的冰冻PBS洗涤细胞两次,以彻底去除未被内化的颗粒。
- 采集共聚焦图像以评估颗粒的细胞内分布。将成像参数设置为针孔1艾里单位(AU),z轴步进0.43 µm,以获得细胞内结构的高分辨率光学切片。
- 检查颗粒是否在肌动蛋白相关细胞区域富集。
- 获取RSC96细胞。
3. 电磁刺激装置的构建与校准(图2)
- 组装电磁装置。
- 构建一个紧凑型电磁线圈系统,其尺寸适合共聚焦显微镜载物台和活细胞培养腔 (图2A,B).
- 将线圈连接至可调电源或外部电流源。
- 使用 COMSOL Multiphysics 4.3b 对梯度磁场环境进行数值模拟图2C,D).
- 确认电磁铁在不同输入电流下产生相应的梯度磁场(GMF)图2G).
- 测量磁通密度并校准梯度磁场。
- 将电磁铁置于培养皿旁,磁极尖端朝向培养皿中心,并距离培养皿外壁1 mm处(图2E,F).
- 在所有后续的活细胞磁力刺激和成像实验中,保持电磁铁与培养皿之间的这种相对几何构型。
- 使用数字高斯计,以培养皿底部的定位网格作为空间参考,在刺激区域内的预定义位置测量磁通密度。
- 根据磁通密度的空间变化计算局部场强梯度。
- 使用实验测得和计算得到的磁场梯度值,对数值模拟的磁场梯度进行校准和验证。
4. 平台递送磁力的估算。
- 定义力估算模型。
- 使用磁性纳米颗粒在非均匀磁场中受力的方程27,28:
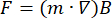
- 在超顺磁性颗粒与外加磁场完全对齐的假设下,将方程简化为:
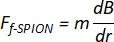
其中:
F 为纳米磁力
m 为磁偶极矩
 为磁场梯度
dB/dr 为相应磁场发生装置产生的磁场梯度(T/m)。 - 在所有计算中使用经校准设备测得的磁场梯度。
- 使用磁性纳米颗粒在非均匀磁场中受力的方程27,28:
- 估算作用于单个纳米颗粒上的力。
- 根据高分辨透射电子显微镜(HRTEM)图像确定颗粒的平均尺寸。
- 假设磁性核心为球形几何结构,计算其体积。
- 根据磁性核心的磁性组分,估算 Fe₃O₄ 的磁性体积。
- 根据以下公式计算磁偶极矩:
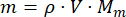
其中:
Mm 表示在给定磁场强度下 f-SPIONs 的质量磁化强度(16 A·m2/kg);
ρ 为 Fe₃O₄ 的密度(5.24 g/cm3);
V 为每个 f-SPION 中 Fe₃O₄ 磁性核心的体积(5.89 × 10⁻17 cm3)。 - 将磁偶极矩乘以测得的磁场梯度,以估算作用于单个纳米颗粒上的力(
 )。
- 估算每个雪旺细胞(Schwann cell)摄取的纳米颗粒数量。
- 将 RSC96 雪旺细胞以每孔 5 × 10⁵ 个细胞的密度接种于 35 mm 细胞培养显微镜皿中。
- 在标准培养条件下孵育 24 小时。
- 更换为含有 15 µg/mL f-SPIONs 的新鲜培养基。
- 继续孵育 12 小时。
- 用含 1 mM 去铁胺的冰冻磷酸盐缓冲液(PBS)洗涤细胞两次。
- 收集细胞并计数。
- 采用电感耦合等离子体原子发射光谱法(ICP-AES)测定细胞内铁含量。
- 通过将每个细胞的平均铁质量除以每个颗粒的铁质量,计算每个细胞内化的颗粒数量
 。
- 估算传递至单个雪旺细胞的力。
- 根据以下公式计算细胞水平的受力:
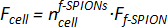
其中:
为作用于单个 f-SPION 上的磁力。
 为每个细胞内化的 f-SPIONs 数量。
Fcell 为作用于单个细胞上的磁力。 - 将计算结果报告为传递至单个雪旺细胞的估算磁力(Fcell)。
- 明确指出该数值为基于模型的估算值,而非细胞内力的直接测量结果。
- 根据以下公式计算细胞水平的受力:
5. 结合磁刺激与实时共聚焦激光扫描显微镜(CLSM)成像
- 用磁性纳米颗粒加载施万细胞。
- 将施万细胞接种于适用于成像的 ibidi 培养皿或微流控培养腔室中。
- 让细胞贴壁并恢复。
- 将现有培养基更换为含有 15 µg/mL f-SPIONs 的新鲜培养基。
- 孵育细胞 12 小时,以完成 f-SPIONs 的加载。
- 在继续下一步前检查细胞形态。
- 去除未被内化的颗粒。
- 移除含有纳米颗粒的培养基。
- 用含有 1 mM 去铁胺的 PBS 洗涤细胞两次。
- 将洗涤液更换为适用于成像的活细胞培养基。
- 在成像前确认细胞外颗粒背景信号较低。
- 将电磁装置与共聚焦激光扫描显微镜(CLSM)成像系统整合。
- 将电磁铁与活细胞培养腔室组装,并将电磁铁置于预校准的位置。
- 将组装好的活细胞培养腔室放置在共聚焦显微镜的载物台上(图3)。确认培养皿位于有效刺激区域之内(图3A)。
- 根据预设参数启动电磁铁,并确认培养皿区域内存在有效的梯度磁场暴露(图3B)。
- 确认物镜能够无干扰地到达焦平面。
- 确认该装置不会阻碍物镜定位或载物台移动。
- 考虑到电磁铁运行过程中产生的热量,根据预先确定的最佳培养条件调整活细胞腔室组件的温度设置,以确保内部环境维持在 37 °C 和 5% CO₂(图3C)。
- 确认整个系统运行正常且稳定。
- 活细胞中功能性 Ca2⁺ 成像。
- 将细胞在含有 3 µM Fluo-4 AM 和 0.1% Pluronic F-127 的 Krebs–Ringer 溶液(pH 7.4)中于 37 °C 孵育 30 分钟。
- 孵育后,用 PBS 洗涤两次,并将样品转移至 CLSM 系统的活细胞成像平台进行成像(图4A)。
- 利用 ibidi 培养皿底部的定位网格,对五个预定义位置进行成像。
- 将每个成像视野均等地划分为 25 个区域,并根据各区域内实际的细胞密度,从每个区域中选择 0–3 个细胞进行荧光强度定量。
- 将单个细胞的完整轮廓定义为感兴趣区域(ROI),通过分析 ROI 内荧光强度的变化(ΔF)来监测磁力诱导的钙响应。
- 将荧光强度变化计算为 ΔF = (Fstim - F0)。若刺激前后荧光强度的相对变化(ΔF/F0)超过 10%,则视为一次钙响应事件。
注意:Funstim 表示磁力刺激前的荧光强度,F0 表示基线荧光强度,Fstim 表示磁力刺激后诱发的荧光强度。 - 为进行背景校正,从每个 ROI 的荧光强度值中减去在无细胞区域测得的平均背景荧光强度。
- 进行三次独立实验,每次实验包含一个培养皿。
- 进行延时成像并在成像过程中施加磁刺激。
- 设置延时成像参数如下:每帧采集间隔为 2.1 秒,总采集时长为 650 秒,使用 1 AU 进行标准高分辨率光学切片成像。
- 在细胞成像过程中,先持续采集 50 秒图像而不通电流,以记录无磁力刺激条件下的细胞内钙荧光强度(Funstim)(图2H 和 图4B)。
- 将前 50 秒记录的荧光强度归一化,并定义为基线荧光强度(F0)。
- 随后,向电磁铁施加 3.0 A 的恒定电流,使加载了磁性纳米颗粒的施万细胞暴露于 3.25 T/m 的梯度磁场中,从而受到磁力刺激。继续延时成像 10 分钟,以记录磁力刺激期间的细胞内钙荧光强度(Fstim)(图2H 和 图4C)。
- 定量计算荧光强度变化 ΔF/F0(图4D、E)。
- 进行统计分析并处理 Ca2⁺ 荧光数据。
- 对每个细胞,计算其在分析时间序列中的中位 ΔF/F₀ 值,并将该值作为细胞水平的 Ca2⁺ 响应指标。
- 每种实验条件进行三次独立实验,每次实验每种条件使用一个培养皿。将三次独立实验中分析的所有细胞数据合并用于描述性展示,并以 n 表示每组中分析的细胞总数。
- 使用 Kolmogorov-Smirnov 检验评估细胞水平 ΔF/F₀ 数据的正态性。
- 由于 Ca2⁺ 荧光响应数据呈非正态分布,因此以中位数和四分位距(IQR)表示数据。
- 采用非参数 Friedman 检验分析组间差异,随后进行 Wilcoxon 符号秩检验进行两两比较,方法如先前报道。
- 以 P < 0.05 为差异具有统计学意义的标准。
结果
高分辨率透射电子显微镜(HRTEM)显示,经表面修饰后,最终的纳米颗粒制剂具有聚集的磁性核心和外层壳结构(图1)。最终的f-SPIONs平均总直径为63.36 ± 16.65 nm,其中富含Fe₃O₄的磁性核心直径约为56.60 ± 6.19 nm,外层壳由聚多巴胺和鬼笔环肽-Alexa Fluor 350组成,平均厚度约为5.79 ± 1.36 nm。这些结果证实了成功构建了一种适用于磁驱动和基于荧光成像的超粒子结构。
磁滞回线分析表明,这些颗粒表现出显著的超顺磁性行为,具有可忽略的剩磁和矫顽力。在施加10,000 Oe(1.0 T)的磁场下,其饱和磁化强度达到约35 A·m2/kg(图5)。在无磁场梯度的情况下,f-SPIONs在水相介质中表现出良好的分散性(图6A)。当暴露于梯度磁场时,f-SPIONs表现出灵敏的磁响应性(图6B)。荧光分析进一步证实,颗粒在合成及表面修饰后仍保持光学可检测性(图7)。
电磁刺激装置已成功整合到活细胞成像系统中(图3)。磁场校准结果显示,该装置在细胞培养区域产生了稳定的梯度磁场(图2E、F),在当前实验配置下,体外梯度磁场约为3.25 T/m(图2G)。
共聚焦成像显示,荧光磁性纳米颗粒能有效载入施万细胞中(图7)。洗涤后,荧光信号主要与细胞相关,而非与培养基中游离的颗粒相关。对于靶向肌动蛋白的制剂,共聚焦成像进一步显示颗粒在肌动蛋白相关细胞区域富集。
延时共聚焦成像表明,磁刺激与活细胞成像可在同一实验流程中进行,且在整个刺激期间保持对细胞稳定的光学通路 (图 2H 和 图4A).
定量分析进一步关联了纳米颗粒设计、设备校准和细胞载荷。在体外 3.25 T/m 的梯度磁场下,作用于单个 f-SPION 的磁力估计约为 1.59 × 10⁻⁵ pN。根据细胞内铁含量定量结果,每个 RSC96 施万细胞约内化了 9.30 ± 2.88 × 10³ 个颗粒,相当于每个细胞所受的总磁力估计为 0.15 ± 0.05 pN。
与基线荧光相比,在f-SPIONs介导的磁刺激下,RSC96细胞表现出活跃的Ca2+动态变化,并且Ca2+荧光信号显著增强(图4D)。对Ca2+荧光信号的定量分析显示,磁刺激组RSC96细胞内Ca2+荧光强度变化(ΔF/F0)为62.96 [35.07–91.67],显著高于正常对照组(-5.74 [-15.66–1.20])、f-SPIONs对照组(-16.70 [-22.02–-12.00])以及梯度磁场对照组(-12.90 [-21.24–-6.97])(图4E)。
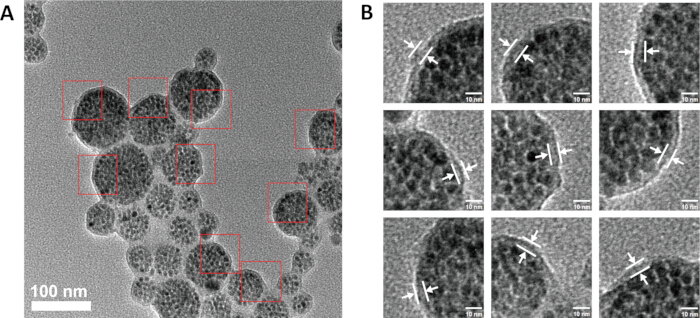
图1:通过高分辨透射电子显微镜(HRTEM)观察f-SPIONs的形貌及核壳结构。(A) f-SPIONs呈球形,具有典型的核壳结构,其内部磁性核心由Fe₃O₄纳米颗粒和Cy3.5组成。(B) 外层壳由PDA和鬼笔环肽-Alexa Fluor 350构成。B图展示了A图中红色框选区域的代表性放大视图,白色线条和箭头指示所测得的壳层厚度。B图中的比例尺为10 nm。共进行了三次独立测量,总计分析了680个纳米颗粒。 请点击此处查看该图的放大版本。
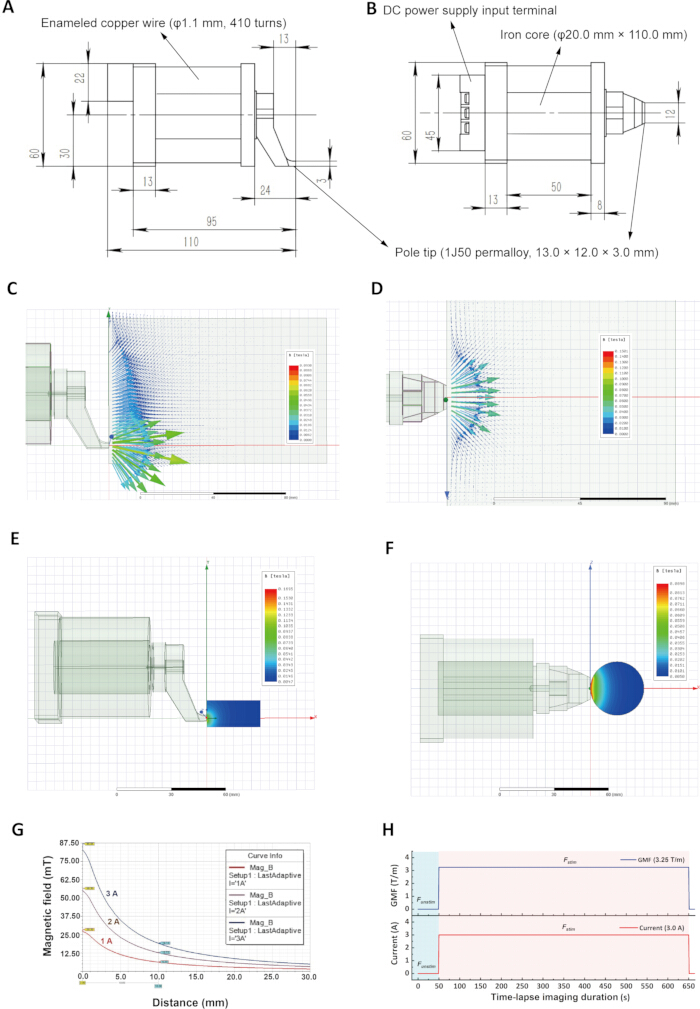
图2定制电磁装置的构建、校准及活细胞磁刺激操作 (A,B) 电磁铁线圈采用1.1 mm漆包铜线绕制在铁芯上,共410匝。线圈外径为60 mm,内径为20 mm,长度为110 mm,直流电阻约为1.2 Ω。极尖尺寸为13.0 mm × 12.0 mm × 3.0 mm(长×宽×高),由1J50坡莫合金制成。C,D电磁铁的最大输入电流不超过3 A。在3 A的输入电流下,磁极尖端附近产生的磁场梯度约为6.7 T/m。E,F) 在3 A输入电流下,培养皿内靠近磁极尖端处的梯度磁场分布。在细胞成像区域产生了平均约为3.25 T/m的静态磁场梯度。G) 不同输入电流(1 A、2 A 和 3 A)下电磁铁产生的磁场梯度。H) 活细胞延时成像、电流施加及梯度磁场暴露的实验方案。在无电流输入的情况下连续采集延时图像50秒,随后施加3.0 A的持续恒定电流,并继续进行延时成像10分钟。DC:直流电。GMF:梯度磁场。图E、F和G经Liu等许可改编。20. 请点击此处以查看此图的放大版本。
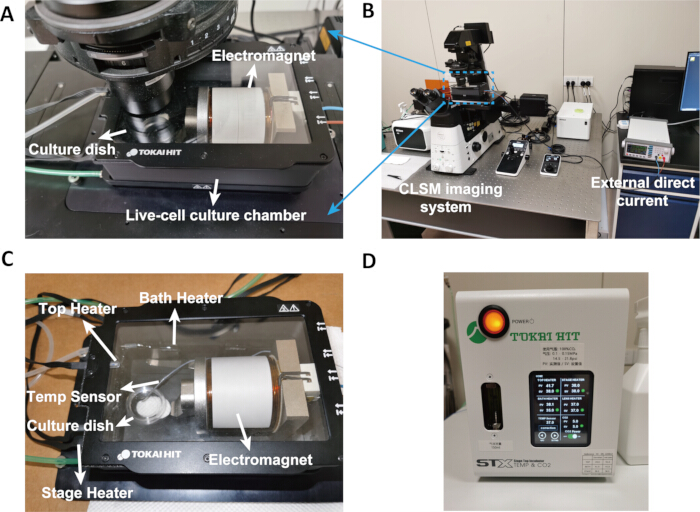
图3将电磁铁整合至活细胞培养腔室 (A) 位于活细胞培养室校准位置的定制紧凑型电磁铁,用于对细胞培养皿区域施加梯度磁场。B) 共聚焦激光扫描显微镜成像系统、磁性纳米操控平台与外部直流电源的集成装置。C优化细胞培养腔室各个组件的温度设置,可确保在电磁铁运行期间培养皿内的温度保持稳定。D细胞培养室各组件的温度设定参数。CLSM:共聚焦激光扫描显微镜。PV:测量值。SV:设定值。Top Heater:顶部盖板加热器温度。Stage heater:显微镜载物台及培养室底部加热温度。Bath heater:水浴温度。Lens heater:物镜加热器温度。Temp sensor:温度探针测得的实际温度。 请点击此处以查看此图的放大版本。
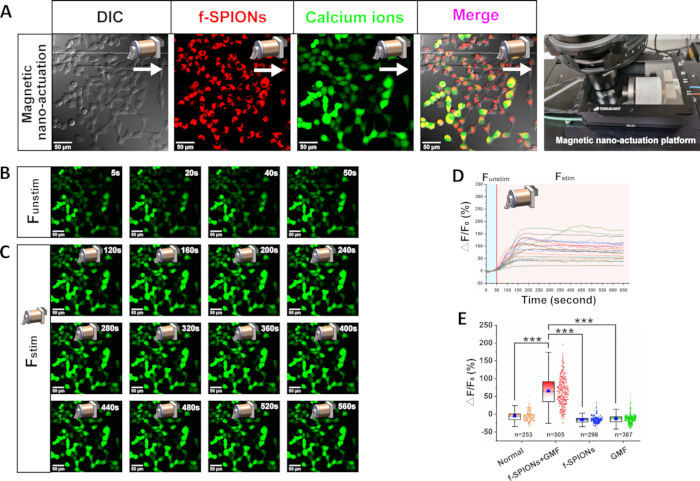
图4:磁力刺激下施万细胞钙反应的代表性图像. (A) 磁刺激与活细胞钙成像的整合工作流程2+ 磁性纳米驱动平台中的成像。B) 基线 Ca2+ 磁刺激前采集的荧光图像(F未刺激). (C) 钙2+ 磁刺激后获得的荧光图像(F刺激),显示荧光强度的变化(ΔF)。(D) 时间分辨 Ca2+ 磁刺激前后监测的信号轨迹。E) 钙信号变化的定量分析与比较2+ 不同实验组之间的荧光变化(ΔF/F₀)。DIC:微分干涉相差。F未刺激:磁力刺激前的荧光强度。F0:基础荧光强度。F刺激:磁力刺激后诱发的荧光强度。ΔF:荧光强度的变化。“Normal”代表正常对照组,“f-SPIONs+GMF”代表磁性纳米激活组,“f-SPIONs”代表f-SPIONs对照组,“GMF”代表梯度磁场对照组。共进行了三次独立实验,每次实验每种实验条件使用一个培养皿。对于每个细胞,采用分析时间序列中ΔF/F₀的中位数作为细胞水平的响应指标。数据以中位数和四分位距(IQR)表示,n表示三次独立实验中分析的细胞总数。统计分析采用Friedman检验,随后进行Wilcoxon符号秩检验,方法参照Liu等人的报道。图E中的定量数据经Liu等人许可改编。20. 请点击此处以查看此图的放大版本。
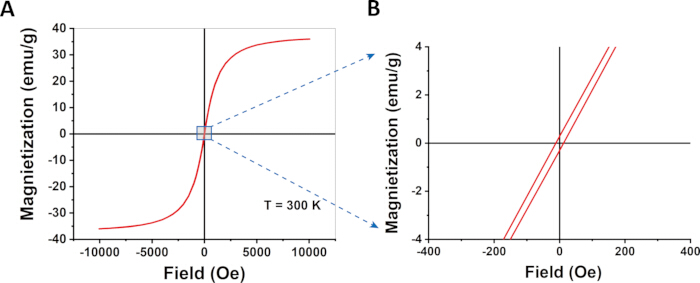
图5:f-SPIONs的超顺磁特性。(A) f-SPIONs的磁滞回线,显示典型的超顺磁行为。(B) 零磁场附近磁滞回线的放大视图。请点击此处查看此图的放大版本。
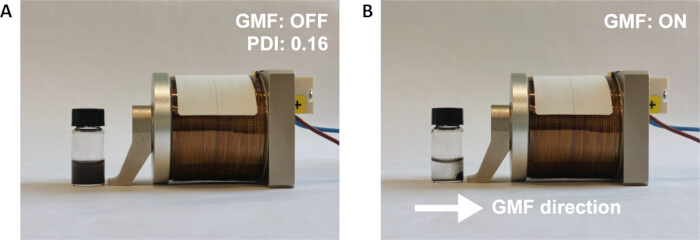
图6f-SPIONs 的水相分散性及梯度磁场响应性 (A在无梯度磁场的情况下,f-SPIONs 在水相介质中保持良好分散。B) 当施加梯度磁场时,功能化超顺磁性氧化铁纳米颗粒(f-SPIONs)迅速沿磁场梯度方向迁移并聚集。GMF:梯度磁场。PDI:多分散系数。箭头指示梯度磁场的方向。 请点击此处以查看此图的放大版本。
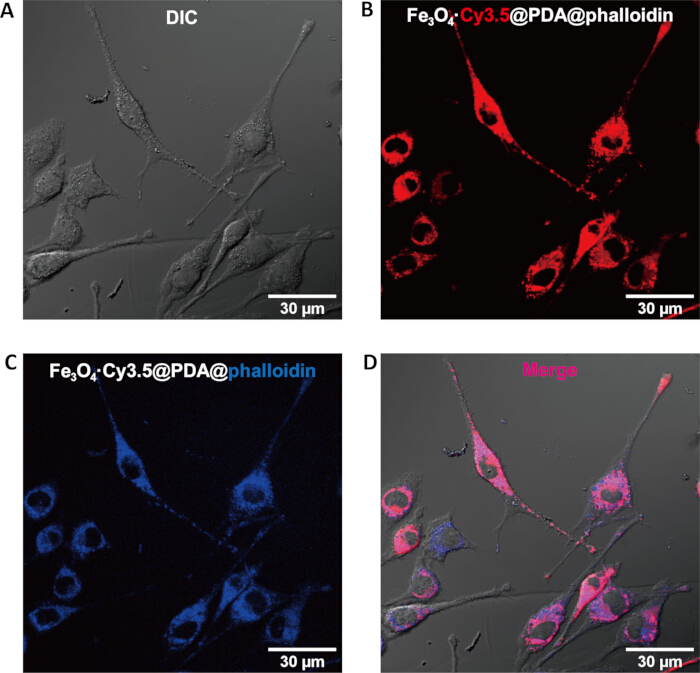
图7:CLSM 荧光成像观察施万细胞对 f-SPION 的内吞作用。 (A) f-SPIONs共孵育后施万细胞的CLSM成像15 µg/mL)孵育 12 小时,随后洗涤(针孔 = 1 AU;z 步长 = 0.43 µm),显示细胞形态保存良好,且细胞外颗粒背景极少。B) 在Cy3.5通道(激发/发射波长:561–568/607 nm)中检测到红色荧光,表明雪旺细胞内存在Cy3.5标记的f-SPIONs。C) 在Alexa Fluor 350通道(Ex/Em:350–360 nm/440–460 nm)中检测到蓝色荧光,表明鬼笔环肽-Alexa Fluor 350功能化模块已成功掺入。D) 合并图像显示红色与蓝色荧光信号之间存在显著的空间重叠,表明磁性-荧光复合微粒成功构建。DIC:微分干涉相差。 请点击此处以查看此图的放大版本。
讨论
氧化铁纳米颗粒被广泛认为是具有优良生物相容性的磁性纳米材料。作为广泛应用的磁共振成像对比剂,超顺磁性Fe₃O₄纳米颗粒已在临床影像诊断中得到广泛应用29,30。在我们课题组最近的研究中20,f-SPIONs被证实具有极低的细胞毒性及优异的生物安全性。该纳米磁力驱动平台以f-SPIONs作为机械致动器,并结合可控电磁体构建而成,可有效激活雪旺细胞的细胞骨架动态变化,诱导机械敏感型Piezo1离子通道开放,触发跨膜Ca2⁺内流,进而促进细胞内的基因表达“重编程”及表型转变20。
成功实施该平台有几个关键步骤。第一个关键步骤是纳米颗粒的制备。颗粒在合成及表面修饰后必须保持良好的分散性、磁响应性以及光学可检测性。任何阶段的聚集都会降低细胞摄取的一致性,改变有效磁性,并影响活细胞成像的质量。
第二个关键步骤是细胞加载和洗涤过程。纳米颗粒的浓度和孵育时间必须足以产生可检测的细胞内加载,同时避免造成过多的细胞外积累或影响细胞形态。彻底去除未内化及与细胞膜结合的颗粒至关重要,尤其是在使用荧光成像评估细胞内定位时。洗涤不充分可能导致对定位模式的误判,还可能扭曲细胞水平的力估算结果。
第三个关键步骤是将磁刺激装置相对于样品进行几何对准。由于磁力直接取决于局部磁场梯度,因此电磁线圈与样品平面的相对位置必须与校准配置保持一致。即使线圈与样品之间的距离或对准发生微小变化,也可能改变有效的刺激条件。
该平台可根据所研究的生物学问题进行调整。当仅需常规的磁性加载和力传递时,可使用PDA包被的荧光超粒子(SPIONs)而无需进行靶向肌动蛋白的功能化修饰。当需要在富含肌动蛋白的亚细胞区域实现定位时,则可改用鬼笔环肽功能化的制剂(f-SPIONs)。这种模块化设计是该平台的一项实用优势。
当前技术存在若干局限性。首先,计算得出的每个细胞摄取的磁性颗粒数量代表的是群体平均值,而在单细胞水平上,颗粒负载不可避免地表现出异质性。其次,本研究中报告的磁力数值是基于模型的估算值,而非对细胞内机械载荷的直接测量。第三,本方案主要针对在体外成像条件下培养的施万细胞进行设计和开发。在密集的三维细胞培养系统和组织中,由于纳米颗粒的摄取、细胞内分布、光学可及性以及力学耦合情况可能与二维培养存在差异,因此可能需要进行大量优化。最后,可选的肌动蛋白靶向策略虽可提高颗粒定位于肌动蛋白相关区域的可能性,但并不能确保在活细胞内对所有富含肌动蛋白的结构实现均匀或特异性的靶向。
尽管存在这些局限性,当前的磁性纳米驱动平台相较于现有的力传递技术仍具有若干显著的方法学优势。例如,原子力显微镜(AFM)能够实现精确的局部力施加,但需要与目标直接发生机械接触,且并不总是能够方便地与长期活细胞成像相结合8。基于拉伸的系统和工程化基底可在细胞群体水平上提供机械刺激,但其依赖于预设的材料界面,不适合远距离细胞内力的传递10。光镊技术在力施加方面具有高空间分辨率,但存在激光诱导组织损伤的风险8。基于微移液管的方法操作相对简单,但通量和力分辨率相对较低12。微流控系统在生成特定的力学微环境(如剪切应力和流体压力)方面具有优势,但在重现复杂的细胞环境以及整合多种力学刺激模式方面面临技术挑战11。相比之下,本平台在一个统一的工作流程中集成了远程非接触式刺激、可控的磁性驱动、基于荧光的颗粒追踪以及与实时共聚焦成像的直接兼容性。
相同的通用策略可适用于其他机械响应性细胞类型以及更复杂的生物模型。该方法还可能扩展至更密集的多细胞系统,例如神经类器官、上皮囊肿或类似Madin-Darby犬肾(MDCK)的上皮组织。在这些体系中,需要进一步优化颗粒穿透性、颗粒分布以及在机械耦合的三维样本中对受力的估算。尽管存在这些挑战,当前的工作流程仍为在活体系统中广泛开发磁机械刺激策略提供了切实可行的基础。
披露
作者声明不存在竞争性财务利益。
致谢
本工作得到了国家自然科学基金(项目编号:82571677 和 82001304,负责人:Y.W.)、吉林省医疗卫生领域人才专项计划(项目编号:JLSRCZX2025-134,负责人:Y.W.)以及吉林大学白求恩计划项目(项目编号:2024B19,负责人:Y.W.)的支持。作者感谢吉林大学化学学院(超分子结构与材料国家重点实验室)和中国科学院长春应用化学研究所,在纳米材料的设计、合成与表征方面提供的协助。作者同时感谢吉林大学第一医院转化医学研究院在共聚焦激光扫描显微镜(CLSM)成像方面提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1,2-十六烷二醇 | Sigma-Aldrich | 213748 | 技术级,90%;用于热分解合成 |
| 35 mm ibidi µ-培养皿 | ibidi | 80156 | 用于施万细胞培养与成像 |
| 苄基醚 | Sigma-Aldrich | 108014 | 98%;用于铁的溶剂3O4 纳米颗粒合成 |
| 共聚焦激光扫描显微镜 | 尼康 | AXR(Ti2-E) | 用于活细胞和荧光成像 |
| 定制电磁铁 | 定制构建 | N/A | 用于体外梯度磁场生成的紧凑型单极电磁铁 |
| Cyanine3.5 羧酸 | Duofluor 公司 | D10128 | 用于铁检测的荧光染料3O4·Cy3.5 超粒子组装;分子量 593.20;储存于 -20 °C,避光 |
| 甲磺酸去铁胺盐 | Sigma-Aldrich | D9533 | 用于去除未内化及膜结合铁的铁螯合剂 |
| 数字高斯计 | 宽场磁性 | WT103 | 用于测量磁通密度并校准自制电磁铁产生的梯度磁场 |
| 盐酸多巴胺 | Sigma-Aldrich | H8502 | ≥98%(薄层色谱);用于聚多巴胺包覆 |
| 动态光散射仪 | 马尔文仪器公司 | Zetasizer Nano-ZS | 用于流体动力学直径和PDI测定 |
| Fluo-4 AM | Invitrogen,Thermo Fisher Scientific | F14201 | 活细胞钙离子成像用钙指示剂2+ 成像 |
| 荧光分光光度计 | 岛津 | RF-6000 | 用于光致发光表征 |
| 高分辨率透射电子显微镜 | JEOL | JEM-F200 | 用于纳米颗粒形貌和核心的高分辨率透射电子显微成像–壳层结构 |
| 电感耦合等离子体原子发射光谱仪 | PerkinElmer | Optima 3300 DV | 用于细胞内铁含量定量 |
| 乙酰丙酮铁(III),Fe(acac)3 | Sigma-Aldrich | F300 | 97%;铁的前体3O4 纳米颗粒合成 |
| 活细胞培养箱(置于显微镜载物台上的培养装置) | TOKAI HIT | TENP&CO2 | 用于磁刺激期间的活细胞共聚焦成像 |
| 油酸 | Sigma-Aldrich | O1008 | ≥99%(气相色谱);Fe的表面配体3O4 纳米颗粒合成 |
| Oleylamine | Sigma-Aldrich | O7805 | 技术级,70%;纳米颗粒合成配体 |
| 鬼笔环肽–Alexa Fluor 350 | Invitrogen,Thermo Fisher Scientific | A22281 | 可选的肌动蛋白靶向功能化试剂 |
| Pluronic F-127 | Invitrogen,Thermo Fisher Scientific | P3000MP | 用于促进活细胞Fluo-4 AM的负载2+ 成像 |
| 可编程直流稳压电源 | 潼门 | eTM-L605SPL(60 V,5 A) | 用于为定制电磁铁供电,以产生体外梯度磁场 |
| RSC96 雪旺细胞 | 中国科学院细胞库 | N/A | 大鼠来源的施万细胞系 |
| 十二烷基硫酸钠(SDS) | Sigma-Aldrich | 436143 | ACS试剂, ≥99.0%;用于水包油型微乳液的表面活性剂 |
| SQUID磁强计 | Quantum Design Inc. | MPMS-XL | 用于在 300 K 下测量磁滞回线 |
| 甲苯 | Sigma-Aldrich | 244511 | 无水,99.8%;用于超粒子组装的溶剂 |
| 透射电子显微镜 | FEI | EP 5018/40,Tecnai Spirit Biotwin | 用于细胞和神经组织超微结构的观察 |
参考文献
- Cheng B, et al. Mechanobiology across timescales. Nat Rev Phys. 2025;7:621-44.
- Di X, et al. Cellular mechanotransduction in health and diseases: from molecular mechanism to therapeutic targets. Signal Transduct Target Ther. 2023;8:282.
- Pillai EK, Franze K. Mechanics in the nervous system: from development to disease. Neuron. 2024;112(3):342-61.
- Franze K. The mechanical control of nervous system development. Development. 2013;140(15):3069-77.
- Franze K, Guck J. The biophysics of neuronal growth. Rep Prog Phys. 2010;73:094601.
- Moore SW, Sheetz MP. Biophysics of substrate interaction: influence on neural motility, differentiation, and repair. Dev Neurobiol. 2011;71(11):1090-101.
- Franze K, Janmey PA, Guck J. Mechanics in neuronal development and repair. Annu Rev Biomed Eng. 2013;15:227-51.
- Sun W, et al. Biophysical approaches for applying and measuring biological forces. Adv Sci (Weinh). 2022;9(5):e2105254.
- Mohammed D, et al. Innovative tools for mechanobiology: unraveling outside-in and inside-out mechanotransduction. Front Bioeng Biotechnol. 2019;7:162.
- Constantinou I, Bastounis EE. Cell-stretching devices: advances and challenges in biomedical research and live-cell imaging. Trends Biotechnol. 2023;41:939-50.
- Polacheck WJ, Li R, Uzel SGM, Kamm RD. Microfluidic platforms for mechanobiology. Lab Chip. 2013;13(12):2252-67.
- Li Z, et al. Non-invasive acquisition of mechanical properties of cells via passive microfluidic mechanisms: a review. Biomicrofluidics. 2021;15(3):031501.
- Xiao Y, Du J. Superparamagnetic nanoparticles for biomedical applications. J Mater Chem B. 2020;8(3):354-67.
- Yang X, et al. Nanotechnology enables novel modalities for neuromodulation. Adv Mater. 2021;33(52):e2103208.
- Semeano AT, et al. Effects of magnetite nanoparticles and static magnetic field on neural differentiation of pluripotent stem cells. Stem Cell Rev Rep. 2022;18(4):1337-54.
- Lee B, et al. Design of oxide nanoparticles for biomedical applications. Nat Rev Mater. 2025;10:252-67.
- Kim YJ, et al. Magnetoelectric nanodiscs enable wireless transgene-free neuromodulation. Nat Nanotechnol. 2025;20:121-31.
- Signorelli L, Hescham SA, Pralle A, Gregurec D. Magnetic nanomaterials for wireless thermal and mechanical neuromodulation. iScience. 2022;25(11):105401.
- Liu T, Wang Y, Lu L, Liu Y. SPIONs-mediated magnetic actuation promotes nerve regeneration by inducing and maintaining repair-supportive phenotypes in Schwann cells. J Nanobiotechnology. 2022;20:159.
- Liu T, et al. f-SPION-mediated magnetic stimulation induces reparative Schwann cell reprogramming via cytoskeletal dynamics-gated activation of Piezo1. J Nanobiotechnology. 2026;24:298.
- Jessen KR, Mirsky R, Lloyd AC. Schwann cells: development and role in nerve repair. Cold Spring Harb Perspect Biol. 2015;7(7):a020487.
- Jessen KR, Mirsky R. The repair Schwann cell and its function in regenerating nerves. J Physiol. 2016;594(13):3521-31.
- Sun S, Zeng H. Size-controlled synthesis of magnetite nanoparticles. J Am Chem Soc. 2002;124(28):8204-5.
- Zhuang J, Wu H, Yang Y, Cao YC. Controlling colloidal superparticle growth through solvophobic interactions. Angew Chem Int Ed Engl. 2008;47(12):2208-12.
- Bai F, et al. A versatile bottom-up assembly approach to colloidal spheres from nanocrystals. Angew Chem Int Ed Engl. 2007;46(35):6650-3.
- Tang L, et al. Investigating the optimal size of anticancer nanomedicine. Proc Natl Acad Sci U S A. 2014;111(43):15344-9.
- Tay A, Kunze A, Murray C, Di Carlo D. Induction of calcium influx in cortical neural networks by nanomagnetic forces. ACS Nano. 2016;10(2):2331-41.
- Tay A, Di Carlo D. Magnetic nanoparticle-based mechanical stimulation for restoration of mechano-sensitive ion channel equilibrium in neural networks. Nano Lett. 2017;17(2):886-92.
- Cheng FY, et al. Characterization of aqueous dispersions of Fe(3)O(4) nanoparticles and their biomedical applications. Biomaterials. 2005;26(7):729-38.
- Lee N, et al. Iron oxide-based nanoparticles for multimodal imaging and magnetoresponsive therapy. Chem Rev. 2015;115(19):10637-89.
重印与许可
标签
本文已发表
视频即将推出