豆科植物与土壤共生 细菌,形成根瘤,在其中细菌将大气中的氮固定供植物利用。MicroCT 能够对根瘤这种不透明硬组织的组织结构、类菌体区域和维管束进行无损三维成像,相较于需要切片的传统成像技术具有优势。
方法文章
Medicago sativa 根瘤的三维显微CT成像
* These authors contributed equally
本文内容
摘要
摘要
豆科植物Medicago sativa与土壤细菌Sinorhizobium meliloti之间的共生关系会形成固氮根瘤。传统的破坏性方法,包括石蜡切片、振动切片和冷冻切片,已被用于观察细菌在根瘤中的分布情况,但这些方法极难获得可靠的三维信息。这些技术通常需结合荧光标记或染色,而标记过程可能引入额外的胁迫,影响植物生长和根瘤形成。显微计算机断层扫描(microCT)作为一种相对快速、简便且可靠的植物生物学研究工具,能够以非破坏性方式对植物组织学特征进行三维(3D)可视化,从而避免样品制备过程中的破坏性伪影,并确保高保真度的三维重建。尽管microCT已应用于豆科植物根瘤的研究,但目前仍缺乏一套从植物收获、样品制备、扫描到软件成像全过程的详细且标准化的操作方案。
本研究以紫花苜蓿(Medicago sativa)为模型,展示了一步一步的显微CT工作流程。该方案包括从根部切除根瘤、固定、对比度增强、样品安装、扫描以及三维重建。文中重点强调了影响图像质量、组织保存和对比度等要素的关键参数。利用该方法,无需对根瘤进行物理切片,即可在三维空间中观察整体组织结构、类菌体侵染细胞以及维管束。本文所述的技术流程为原生根瘤的无损、高分辨率成像提供了一种可重复的方法,且可能适用于其他豆科植物物种,为研究人员提供了研究根瘤内部结构及细菌空间排列的实用工具。
引言
豆科(Leguminosae)或蝶形花科(Fabaceae)植物,例如紫花苜蓿(Medicago sativa),可与根瘤菌科(Rhizobiaceae)的固氮土壤细菌(如中慢生根瘤菌 Sinorhizobium meliloti)形成共生关系,从而在根部形成根瘤。在氮素受限条件下,植物释放类黄酮化合物以吸引细菌。这会激活共生细菌中结瘤因子(Nod factors)的表达,引发根毛卷曲,并进一步形成包围细菌的侵染结构1,2,3,4。侵染丝从该结构壁的薄弱区域形成,延伸成一条管状通道,将细菌带入根毛细胞内部5。当侵染丝到达根部内皮层时,会引发一系列细胞分裂,启动一种特化的根部器官——根瘤的形成1,2,5。随后,细菌侵染根瘤细胞并在细胞内定殖,被细胞内的共生体膜所包裹。在此过程中,植物为细菌提供碳源及其他营养物质;作为回报,细菌为植物固定大气中的氮,将不可利用的氮气转化为植物可利用的氨2,3,4。因此,根瘤作为一种重要的生物固氮工厂,能够在不依赖合成氮肥的情况下维持植物生长。这种生物固氮过程在经济和环境方面均具有重要意义,因为它使豆科植物无需依赖合成肥料即可生长6。此外,部分豆科植物形成不定型根瘤,其内部具有明确的分区结构,细菌在不同区域中分化并更高效地进行固氮4。因此,为了深入研究生物固氮过程,有必要对根瘤的外部形态和内部结构(即细菌在根瘤内实际占据植物细胞的位置)进行可视化观察。然而,根瘤是一种不透明的器官,内部富含呈红色的植物蛋白豆血红蛋白(leghemoglobin),这给传统的成像方法带来了挑战。
过去使用的成像技术具有破坏性。石蜡切片、振动切片和冷冻切片曾被用于制备组织切片,但这些方法会破坏组织的天然状态,并引入干扰三维(3D)重建的伪影6,7,8,9,10。已有成功基于石蜡包埋的根瘤组织切片完成重建的案例,但该方法使用脱水样本,且需要超过200个独立切片8。在单个切片中可观察到部分维管系统结构,但无法显示维管束如何分支并环绕根瘤。在共聚焦显微镜成像前,已对组织切片实施过多种荧光标记和染色技术,但这些方法通常存在以下问题8,9,10:(i)植物根瘤组织具有强烈的自发荧光,(ii)许多方法在成像前需要进行组织透明化处理,(iii)荧光染色可能损伤根瘤组织,(iv)接种表达绿色荧光蛋白(GFP)标记的细菌会对植物生长和根瘤形成造成应激影响,以及(v)天然根瘤体积过大,难以对整个样本进行完整切片5,11。
计算机断层扫描(CT)成像在临床医学中广泛应用,用于诊断和治疗目的12,13。其小型化版本——X射线显微断层扫描(MicroCT),是一种可对小型样本进行无损三维(3D)可视化成像的技术。与CT通过将设备围绕较大样本旋转不同,MicroCT通过将较小样本靠近X射线源旋转,从而实现更高的分辨率。MicroCT已应用于动物发育生物学研究,同时也逐渐成为植物生物学中一种有前景的工具6,10,14,15,16,17,18,19。尤为重要的是,MicroCT和基于同步辐射的X射线断层扫描已被广泛用于植物生理学研究,以探究木质部栓塞现象,并将基于成像的估算结果与传统的水力流测量方法进行交叉验证20,21,22。由于该技术可在无需物理切片的情况下对完整器官进行多尺度成像,MicroCT能够保留整个根瘤内的空间结构关系。在使用适当对比剂的条件下,MicroCT可分辨出维管束和侵染区等组织水平的结构,并能穿透传统光学方法因光散射而受限的区域,这对不透明或具有自发荧光特性的根瘤尤其有价值。样本还可被重复扫描,或在光学显微镜或电子显微镜样本处理后纳入后续的关联分析流程,亦可归档以供未来研究使用。尽管已有少数研究采用MicroCT和基于同步辐射的X射线CT来研究大豆根瘤,但尚无详细记录涵盖从根瘤采集、染色到成像与重建的完整流程,尤其是针对苜蓿等较小根瘤的研究6,14。X射线成像的对比度依赖于组织密度,而大多数植物组织密度较低,对X射线的衰减能力弱。在无对比剂的情况下,常规台式MicroCT无法将根瘤与背景区分开来。本研究采用磷钨酸(PTA)作为非特异性染色剂,该染剂可结合蛋白质及其他生物分子,且已被证明可在植物组织中产生高对比度14。
本研究提供了一种基于常规实验室系统的紫花苜蓿根瘤微计算机断层扫描(microCT)成像的详细分步实验方案,该方法可作为X射线显微成像(XRM)和同步辐射平台的一种更易获取的替代方案6,14。该工作流程涵盖了从根部采集根瘤、固定、染色、增强对比度、样品安装、扫描、三维重建到数据分析的具体操作步骤(图1)。在各步骤之间,我们提供了详细的参数设置,以确保样品稳定固定、保持湿润状态并获得良好的成像对比度。最终,该microCT流程是一种可重复的方法,能够在不破坏样品的前提下,以高分辨率可视化整个紫花苜蓿根瘤在天然状态下的三维组织学特征,包括整体组织结构、植物细胞内的细菌定殖情况、明确的固氮区域以及维管束结构。我们认为,该实验方案可适用于其他豆科植物物种,为研究人员提供一种实用且完整的三维结构与组织构象观察方法。
方案
1. 根瘤的收获与固定
- 使用解剖刀(见材料表)在目标根瘤两侧的根部进行直线切割,使根瘤仍附着在根上(图2)。
- 将8至12个根瘤转移至含有10 mL 70% (v/v) 乙醇的20 mL玻璃小瓶中(见材料表)。
2. 根瘤染色
- 在200 mL广口方瓶中,将2 g PTA粉末加入200 mL 70%乙醇中,配制1% (w/v) PTA溶液(参见材料表)。振荡至完全溶解,4 °C保存。染色液需在使用前1天配制。
- 除去固定过程中使用的70%乙醇,加入10 mL 1% PTA溶液(参见材料表)。
- 将玻璃瓶置于摇床中,室温下以80 rpm振荡4周。每周更换一次染色液,加入10 mL新鲜的1% PTA溶液(参见材料表,图2)。
3. 结节包埋
- 在100 mL敞口玻璃烧杯中,使用电热板于100 °C加热熔化石蜡(参见材料表)。
- 选择200 µL移液器吸头用于样品包埋。将吸头尖端浸入熔化石蜡中浅层(1–2 mm),以密封其狭窄端(参见材料表)。
- 在35 mm微型培养皿中,用2 mL 70%乙醇冲洗样品5分钟(参见材料表)。
- 将0.2 g低熔点琼脂糖加入25 mL锥形瓶中,加入20 mL去矿物质水,配制成1%(w/v)低熔点琼脂糖溶液。在电热板上50 °C加热并轻轻振荡数次,直至完全溶解。随后将锥形瓶置于40 °C水浴中保温(参见材料表)。
- 将约25 µL的1%低熔点琼脂糖加入倒置的已密封移液器吸头中,静置1分钟使其冷却凝固(参见材料表)。
- 用精细镊子夹取一个根瘤,转移至移液器吸头中,使其固定在1%低熔点琼脂糖内。使用加样枪头小心移动根瘤,尽可能靠近移液器吸头的石蜡密封端,注意避免损伤根瘤组织(参见材料表)。
- 将含有根瘤的吸头置于支架中,静置使低熔点琼脂糖完全凝固。凝固后,用Parafilm封住吸头开口端以保持湿度(参见材料表)。将样品置于4 °C冰箱中保存,并在一周内完成包埋样品的扫描。
4. 显微CT成像
- 将移液器吸头倒置安装在尺寸合适的样品 holder 上,以尽可能靠近 X 射线源,并确保样品准确居中(参见材料表)。
- 打开 CT 软件。将装有样品的 holder 紧固地拧在微计算机断层扫描仪(microCT)的旋转台上(参见材料表、图 3、补充图 1)。
- 打开相机视图和 X 射线源,然后开启连续 X 射线成像屏幕(补充图 1)。
- 垂直调节样品高度,使感兴趣区域位于 X 射线连续成像屏幕的中心位置。记录此高度,供步骤 4.10 后续使用(补充图 1)。
- 将 binning 设置为 512 × 512,调节像素尺寸(参见补充表 1),使样品占据 X 射线连续成像视野的大部分区域,两侧保留少量空白空间(补充图 1)。
- 通过每隔 45° 旋转一次并进行调整,使样品在连续 X 射线成像屏幕上居中(补充图 1)。
- 将 binning 更改为 2048 × 2048(参见补充表 1、补充图 1)。
- 在扫描模式菜单中选择无滤光片,并将电压设为 50 kV,电流设为 40 µA(参见补充表 1、补充图 1)。
- 执行平场校正:将样品向下移动至 68 mm,使其不在连续 X 射线成像屏幕的视野范围内。关闭平场校正,设置曝光时间,使平均 X 射线透射率为 55%。然后开启平场校正(参见补充表 1、补充图 1)。
- 将样品移回步骤 4.4 中确定的高度位置(补充图 1)。
- 在扫描选项中设置文件名和存储文件夹路径(补充图 1)。
- 将旋转步进设为 0.200°。将帧平均设为3,将随机移动设为30。选择360° 扫描(参见补充表 1、补充图 1)。
- 如需要,可调节部分宽度以排除过多的空白区域,从而减小数据量(补充图 1)。
- 点击扫描以开始扫描(补充图 1)。
5. 图像重建
- 打开图像重建软件,并加载扫描中的所有二维投影图像(参见材料表,图4)。
- 点击预览,以查看绿色线位置处的重建结果(补充图2)。
- 在输出选项卡中调整直方图。裁剪右侧的平坦区域,左侧保留值为0或略小于0的数值(补充图2)。
- 在开始选项卡中,点击精细调节进行后期对齐。将参数步长设为1,试验次数设为5。点击开始和确定。当结果在输出选项卡中显示后,点击prv窗口并逐项浏览结果,选择最佳对齐图像,并保留在该最佳图像上(补充图2)。
- 在输出选项卡中,通过勾选“使用ROI”旁边的复选框来激活感兴趣区域(ROI)。选择圆形作为ROI形状。通过返回到开始选项卡并移动绿色线以预览不同位置,调整ROI大小以匹配数据体积中的样品尺寸。在样品周围保留一定空白区域(补充图2)。
- 返回到开始选项卡。移动顶部和底部的红线,以裁剪重建数据中不需要的区域。通过将绿色线移至红线附近并在输出选项卡中预览重建结果,检查是否排除了重要数据(补充图2)。
- 在输出选项卡中,将重建结果以TIFF(16位)图像格式保存至指定位置(补充图2)。
- 返回到开始选项卡并点击开始(补充图2)。
6. 三维可视化
- 打开 Dragonfly 软件(参见材料表)。
注意:有关 Dragonfly 及其功能的更多信息,请访问 https://dragonfly.comet.tech/ - 导入重建的 TIFF 图像。
- 选择所有图像,并确认图像间距与扫描文本文件中的缩放图像像素尺寸相同(补充图 3)。
- 调整窗宽窗位,以获得具有良好对比度的三维视图(补充图 3)。
- 滚动浏览不同的二维切片平面(XY,横断面;XZ,冠状面;YZ,矢状面)(补充图 3)。
- 右键单击图像,导出视图的屏幕截图,以便按需保存切片图像(图 4)。
结果
我们从三株 M. sativa 植株中各收获两个根瘤。其中两个根瘤用于染色时间的比较,另外四个根瘤则在完成28天的1%磷钨酸(PTA)乙醇溶液(70%)染色后进行成像,以增强对比度。通过使用1%低熔点琼脂糖作为移液器吸头内的封片介质,我们实现了样品周围X射线密度较低的封片环境。染色液成功增强了植物组织的对比度(图5A、B,补充图4)。根据数据直方图,样品信号可轻松与背景及移液器吸头区分开来,从而实现了对整个根瘤外部与内部结构的无遮挡三维可视化(图5A、B)。
外表皮层可见,但与其他组织相比对比度较低(图 5C–E)。另一方面,维管束从样本底部到顶部均清晰且连接良好(图 5A,B)。在横切面中,可以清楚地观察到这些维管束的数量及其分支情况(图 5C)。此外,内部组织具有良好的对比度,能够清晰识别皮层和植物液泡(图 5C–E)。高对比度也使得感染细胞与未感染细胞易于区分(图 5C–E)。冠状面和矢状面切片揭示了分生区、感染区和分化区的分布情况(图 5D)。补充视频 1 展示了一个三维重建根瘤的 360° 视图。
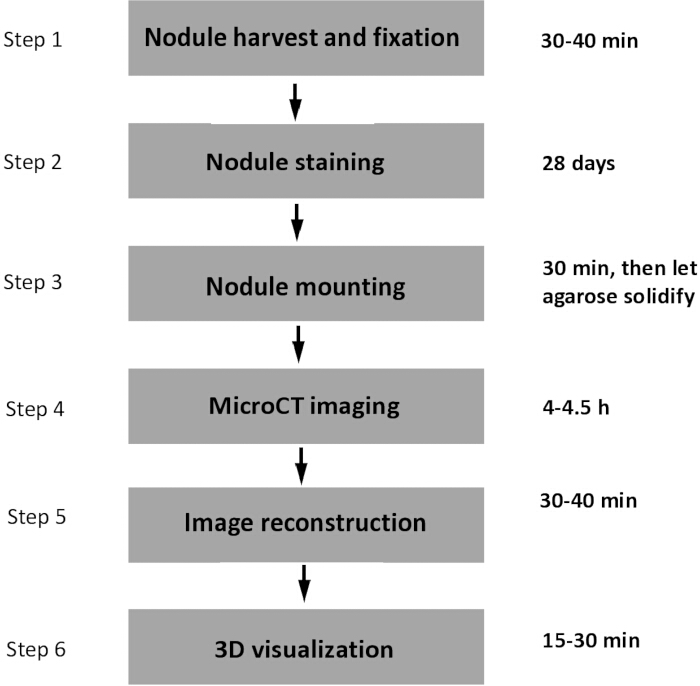
图1:实验流程图。 使用微计算机断层扫描(microCT)成像豆科植物根瘤的实验流程概览,以及各步骤所需时间。请点击此处查看该图的高清版本。
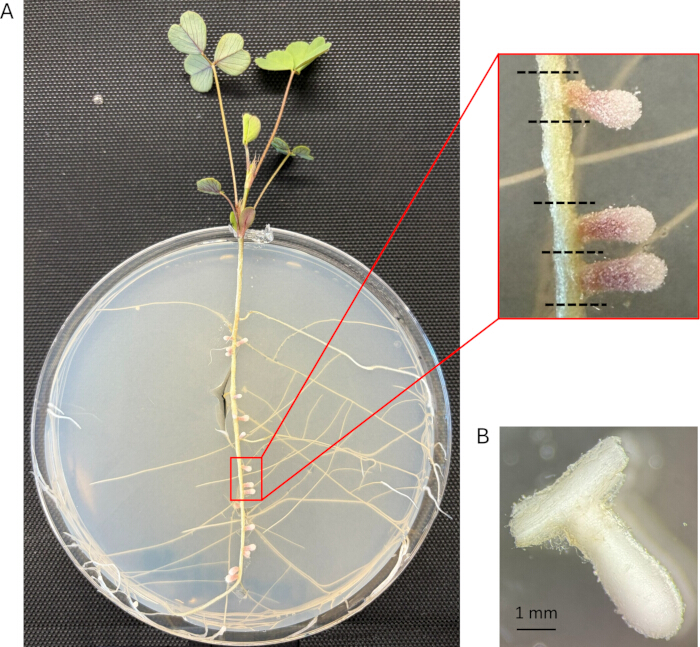
图2:M. sativa 根瘤,用于本实验方案。(A)接种 S. meliloti 细菌 28 天后(28 dpi)的 M. sativa 植株。黑色虚线表示建议的切割线,用于切除图中所示的根瘤。每株植物切除两个根瘤,共三株植物,共扫描四个样品。(B)M. sativa 在接种后第 28 天的根瘤,经 4 周 PTA 染色处理后的结果。请点击此处查看此图的放大版本。
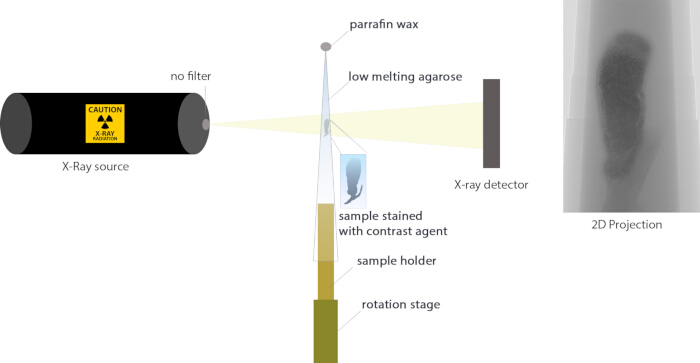
图3:显微CT样品制备示意图。 经对比剂染色的根瘤被固定在微量移液器吸头内的低熔点琼脂糖中。微量移液器吸头一端用石蜡密封,并固定在显微CT设备的旋转台上。X射线源(无滤光片)位于设备的一侧,射线穿过样品后到达另一侧的X射线探测器。扫描结果生成基于组织密度的二维投影图像。请点击此处查看此图的放大版本。
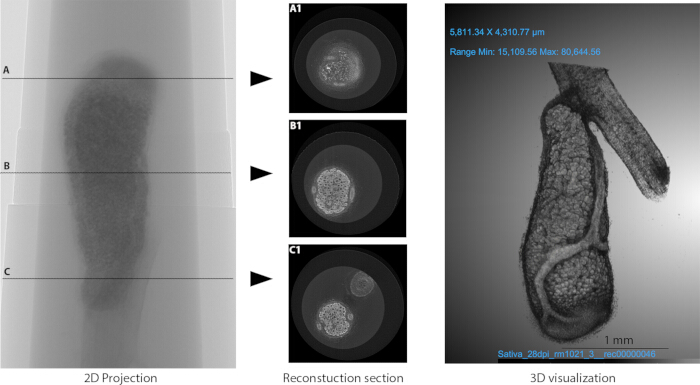
图4示例图像重建与三维可视化 (左)二维投影。(中) 重建部分. A1、B1 和 C1 显示了来自显微CT二维投影的A、B和C位置处重建的横截面。(右)由重建图像生成的根瘤三维可视化图。 请点击此处以查看此图的放大版本。
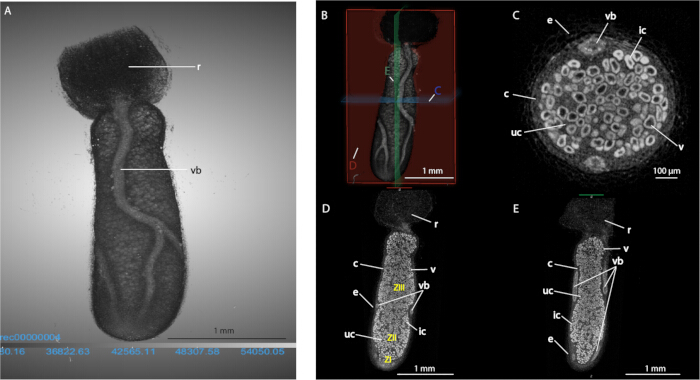
图5:带注释的代表性图像。 (A注释 3D 可视化 M. sativa 根瘤。B红色、蓝色和绿色轮廓显示在三维图像上,表示横断面(C),冠状(D)以及矢状面(E) 平面。标注的横断面(C),冠状(D)和矢状面(E) 部分的 M. sativa 根瘤。缩写:c – 皮层;e – 表皮;ic – 感染细胞;r – 根;uc – 未感染细胞;v – 液泡;vb – 维管束;ZI – I区(分生区);ZII – II区(感染区);ZIII – III区(分化区) 请点击此处以查看此图的放大版本。
补充图1. 微计算机断层扫描成像软件界面截图。(A1)打开和关闭样品台门。(A2)开启相机视图。(A3)开启X射线源。(A4)开启连续X射线视图。(A5)调节样品高度。(A6)调节像素大小。(A7)旋转样品。(A8)更改二值化设置。(A9)更换滤光片。(A10)访问扫描模式的选项。(A11)设置X射线源的电压和电流。(A12)双击以关闭平场校正。(A13)扫描选项。(B1)平场校正已关闭。(B2)访问扫描模式的选项。(B3)平均X射线透射率。(B4)调节曝光时间。(B5)更新平场图像。(C1)命名文件并选择数据保存位置。(C2)设置旋转步长、帧平均、随机移动及360度扫描。(C3)调节部分宽度。(C4)开始扫描。请点击此处下载该文件。
补充图2. 图像重建软件截图。(A1)选择样本预览位置。(A2)预览样本。(A3)参数微调。(A4)设置试运行次数及后对齐参数步长。(A5-6)重建区域的顶部与底部。(A7)开始重建。(B1)调整对比度。(B2)查看并逐项浏览后对齐结果。(B3)创建圆形感兴趣区域(ROI)。(B4)选择文件格式及数据保存位置。请点击此处下载该文件。
补充图3. 三维可视化软件截图。(A)图像间距信息。(B)选择、旋转和缩放工具(顶部);对比度窗宽窗位调节(底部)。(C)显示比例尺(顶部);更改背景颜色(底部)。请点击此处下载该文件。
补充图4. 经PTA染色14天、17天和28天后的MicroCT重建图像。(A)经14天PTA染色后重建的M. sativa切片显示外层存在噪声(n = 1)。(B)经17天PTA染色后重建的M. sativa切片显示外层对比度更高,但内部清晰度较(A)差(n = 1)。(C)经28天PTA染色后重建的M. sativa切片显示外层和内层的对比度均优于(A)和(B)(n = 4)。请点击此处下载该文件。
补充表1:显微CT成像参数。请点击此处下载该文件。
补充视频 1:三维结节视频。请点击此处下载该文件。
讨论
以下是一些关于样品制备和染色的建议。在进行显微CT成像的样品制备过程中,仔细切除根瘤对于保持其结构完整性至关重要。我们建议在根瘤附着点两侧保留一小段根组织,以维持其空间位置关系并尽量减少组织损伤。使用对比剂对于增强X射线衰减、可视化内部解剖结构至关重要14。先前一项采用磷钨酸(PTA)染色的研究表明,为在不同植物种类和组织类型中实现足够的对比度,至少需要14天的染色时间,且未发现过度染色的证据14。在该研究中,由Bradyrhizobium诱导产生的大豆根瘤(在接种后14天固定)染色了35天14。以此染色时间范围(14–35天)为参考,我们对自身的根瘤样品在多个时间点(14、17和28天)进行了初步染色试验,并比较了所得图像的对比度。本方案最终选择28天的染色时间,因其相比更短的时间点提供了更优的对比度、更清晰的细胞边界以及更均匀的染色效果(补充图4)。需要说明的是,14天和17天的重建结果来自单个根瘤,而非系统性的重复实验,而28天的条件则包含了全部四个扫描的根瘤;染色时间应根据研究所需的分辨率进行调整。此外,28天的染色周期并不短。如先前研究所建议,微波辅助染色可能有助于加速PTA渗透,从而缩短所需染色时间14。基于碘的染色剂(如卢戈氏碘液)也常用于增强植物组织的对比度23,24。本研究选择PTA是基于其在根瘤组织中已证实的效果,未对不同染色剂进行比较,因为本研究的主要目标是建立一种单一且可重复的实验流程14。未来的研究应在不同植物种类和组织类型中测试其他染色剂的效果。
正确的包埋同样至关重要。应确保样品始终完全被低熔点琼脂糖覆盖,以防止脱水并维持其天然形态。包埋后,样品需在 4 °C 下保存过夜,以确保琼脂糖充分凝固,从而在扫描过程中保持稳定。安装好的样品必须牢固固定在扫描台上,以防止数据采集过程中发生漂移或振动伪影。
MicroCT 可在比光学显微镜和电子显微镜分辨率更低的水平上,对整个根瘤组织进行无损的三维可视化。X射线显微成像(XRM)和基于同步辐射的X射线CT通常能提供比传统MicroCT质量更高、分辨率更高的图像。基于同步辐射的X射线CT还可实现对新鲜且未经染色的样品直接扫描,因为高光子通量和光束相干性可在无需对比度增强剂的情况下实现快速采集并获得足够的对比度6。与Duncan等(2022)14和Nakhforoosh等(2024)6的研究进行直接比较受到实验设计差异的限制:物种(大豆 vs Medicago sativa)、根瘤类型(定型根瘤 vs 不定型根瘤)以及成像方式(XRM和基于同步辐射的X射线CT vs 传统MicroCT)。尽管如此,我们根瘤重建图像的标称像素尺寸约为1.75 µm,比Duncan等(2022)14中根瘤扫描的2.2 µm(图4A)更精细,但其重建图像仍比我们的更清晰。这可能反映出有效分辨率不仅仅取决于标称像素尺寸;XRM物镜的光学放大倍数、探测器灵敏度、光源稳定性、相机质量以及重建方法均会产生影响。虽然大而低密度的结构(如液泡)易于区分(如本研究所示),但无法分辨单个细胞内类菌体的占据情况以及更小或密度更低的细胞器,也无法实时捕捉动态生物学过程。磷钨酸(PTA)和碘基对比剂是非特异性的,不能报告分子身份。亚细胞层面的问题仍需依赖荧光显微镜或电子显微镜。这些成像方法互为补充:MicroCT适用于整器官形态和三维组织结构的研究,为光学显微镜和电子显微镜提供背景信息,而后两者则用于解析更精细的结构和分子细节。
我们已成功使用接种了其他 S. meliloti 菌株的 M. sativa 以及接种了多种不同 S. meliloti 菌株的 M. truncatula 和 Trigonella foenum-graecum 在相似时间点和发育阶段的根瘤重复了该工作流程(未发表数据)。我们未测试不同发育阶段的根瘤,因为本研究的目的是对成熟的、具有固氮功能的根瘤进行表征并提供可重复的实验方案。尽管如此,该工作流程应同样适用于不同发育阶段的根瘤,因为更相关的限制因素是根瘤的大小。本研究中扫描的根瘤长度约为 2.5 mm(补充表 1)。在本研究所用的显微CT设备上,我们建议扫描的根瘤最小长度为 1 mm。可成像的根瘤大小将受所用设备的影响,因为不同设备的放大倍数可能有所不同。
最近的证据表明,根瘤内的定殖程度是一个重要的参数,与固氮效率直接相关。含有更高比例感染细胞的根瘤比细菌定殖细胞较少的根瘤具有更强的固氮能力25。此外,根瘤的健康状况取决于维管组织的发育程度,维管结构受损或发育受限意味着根瘤存在缺陷,并导致植物整体健康状况下降26。鉴于微计算机断层扫描(microCT)能够可视化定殖情况和维管结构,该技术填补了固氮研究领域的一项重要空白。本工作流程使根瘤内外部结构的无损可视化成为常规可及的技术,而这些结构正是决定固氮效率、进而驱动作物共生固氮供给能力的直接因素。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Stephanie Sage在植物样品制备方面的帮助。Xia Zhao协助完成了样品包埋。我们感谢Madi Mitchell在项目初期讨论中提供的建议。我们感谢Tom Kleist和Kexi Yi在数据分析解释方面的指导。我们还感谢Keith Duncan(Donald Danforth植物科学中心)在实验方案方面提供的建议。本项目由Stowers医学研究所提供经费支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 20 mL 玻璃小瓶 | Sigma-Aldrich | Z190527 | 用于固定和染色时盛放根瘤。 |
| 200 µL 吸头 | Fisherbrand | 02-717-144 | 用于成像时盛放根瘤。 |
| 35 mm 微孔培养皿 | Fisher Scientific | 507532924 | 用于染色后清洗根瘤。 |
| Dragonfly 软件 | Comet Technologies Canada Inc. | V2022.2 | 用于在三维视图中可视化和操作二维重建图像。 |
| 乙醇 | Decon Labs | V1001 | 用于固定和清洗根瘤。 |
| 精细镊子 | Dumont | AA-Inox-E | 用于调整吸头内的根瘤位置。 |
| 凝胶加样吸头 | Corning (Costar) | 4853 | 用于在吸头内的琼脂糖中操控根瘤。 |
| 加热板 | Mirak | SP72725 | 用于熔化石蜡和溶解低熔点琼脂糖。 |
| 低熔点琼脂糖 | GeneMate | 490001-602 | 用于根瘤包埋,以维持其方向性和湿度。 |
| MicroCT | Bruker | Bruker SkyScan 1272 | 用于扫描根瘤。 |
| NRecon 软件 | Bruker | V2.2.0.6 | 用于重建二维投影图像。 |
| 旋转摇床 | VWR | 77591-858 | 用于震荡根瘤,加速染色剂渗透。 |
| 石蜡 | McCormick Scientific | 39503002 | 用于密封吸头的窄端。 |
| Parafilm 封口膜 | Alkali Scientific | PM996 | 用于密封吸头,防止样品干燥。 |
| 磷钨酸 | Electron Microscopy Science (EMS) | 19500 | 用于根瘤染色。 |
| 样品 holder - 长 3.4 cm,直径 0.63 mm | Bruker | 随仪器配套的 Bruker 套件 | 用于在成像过程中固定吸头和样品。 |
| 手术刀 | Fisher Scientific | S07890 | 用于采集根瘤。 |
| Skyscan 软件 | Bruker | v1.5.1.0 | 用于操控 MicroCT。 |
| 水浴锅 | Boekel Grant | 640013001 | 用于在包埋根瘤时保持琼脂糖处于液态。 |
参考文献
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
重印与许可
本文已发表
视频即将推出