本实验方案详细描述了评估完整生物体对热应激、氧化应激、内质网应激以及线粒体应激耐受能力的逐步操作步骤。同时提供了评估神经元是否在应激耐受中发挥作用的方法。
本文内容
摘要
摘要
生物在其一生中会暴露于多种环境和细胞内的应激源。抵抗不同应激源的能力与其健康寿命和寿命密切相关。秀丽隐杆线虫(C. elegans)是研究应激抗性保守分子机制的理想模式生物,适用于应激抗性的测量。此外,C. elegans 拥有结构简单的神经系统,有助于理解应激抗性的神经基础。本文介绍了在四种不同应激条件下测量 C. elegans 应激抗性的方法:热应激、内质网(ER)应激、线粒体应激和氧化应激。将线虫群体置于固体琼脂平板上,通过施加高温诱导热应激,或使用含有不同浓度化合物的琼脂来诱导内质网、线粒体或氧化应激。我们设置了逐步增加的应激剂量,并滴定出最佳剂量,以示例方式比较了 RIC 神经元消融品系与野生型品系在应激抗性上的差异。在应激条件下,每小时或每天监测 C. elegans 的存活情况,绘制并比较存活曲线,以识别不同 C. elegans 品系在应激抗性能力上的差异。该方法为评估野生型、突变体或神经元操作品系的 C. elegans 在多种应激源、不同剂量和时间尺度下的抗性提供了可重复的实验体系,同时有助于揭示多种应激反应背后的分子与神经机制。
引言
生物体在其生命周期中会经历多种环境胁迫。大多数胁迫因素,包括高温、缺氧、辐射、氧化应激、渗透压应激以及病原体胁迫,都会引起细胞功能障碍和内环境稳态失衡,从而触发细胞内的应激反应。为应对动态变化的环境挑战和胁迫因素,生物体进化出了高度保守的应激反应通路。这些保守的应激反应通路包括热休克反应(HSR)1、内质网(ER)和线粒体中的未折叠蛋白反应(UPR)2,以及氧化应激反应3。不同应激反应通路的主调控因子通常是转录因子,它们可诱导应答基因的表达,以恢复蛋白质稳态并促进细胞存活4。这些反应包括合成分子伴侣以重新折叠错误折叠的蛋白质,以及通过蛋白质降解途径清除受损蛋白质4。若未能激活应激反应,则会导致细胞质或细胞器中受损蛋白质的累积,进而引发细胞和组织功能障碍。细胞应激反应失衡已与多种慢性疾病相关,从神经退行性疾病到代谢综合征均受其影响5,6。相反,适当激活应激反应通路可显著改善健康寿命并延长寿命7。因此,研究抗应激的分子机制对于利用保护性应激反应改善健康具有重要意义。为此,有必要建立可重复的方法和技术,以精确量化活体动物中的抗应激能力。
过去15年的研究发现表明,神经信号在多种物种中对增强应激抵抗能力具有重要作用8。早期研究发现,神经元中的热休克反应(HSR)和内质网未折叠蛋白反应(ER UPR)足以激活非神经组织中的应激反应,从而提出了应激抵抗的细胞非自主性调控概念8,9,10。自这一初始发现以来,越来越多的证据表明,多种应激抵抗通路能够响应环境信号,并通过神经信号传导促进机体的应激抵抗能力。具体而言,热休克反应(HSR)10,11、内质网未折叠蛋白反应(ER UPR)12,13、线粒体未折叠蛋白反应(UPRmt)14,15以及氧化应激反应3均可通过神经元以细胞非自主性方式促进应激抵抗。这种应激抵抗的细胞非自主性调控机制在包括果蝇 D. melanogaster16,17,18,19和小鼠20,21在内的多种生物中具有保守性。
为了促进研究神经元在多种应激因素下对胁迫抗性的作用,本文提供了一种系统性方案,用于检测四种由神经调控的胁迫条件下的抗性:热胁迫、内质网(ER)胁迫、线粒体胁迫和氧化胁迫。C. elegans 作为一种易于操作的模式生物,被用于测量对这四种胁迫的抗性。利用 C. elegans 进行胁迫抗性检测,不仅可以在细胞水平上研究应激反应的激活,还可以在个体水平上进行研究。
由热应激、内质网应激、线粒体应激和氧化应激激活的应激反应通路在包括人类在内的多种生物中是保守且功能重要的22,23,24,25。热应激会导致蛋白质错误折叠和聚集,并激活热休克反应,该反应对于维持蛋白质稳态至关重要26。C. elegans 的生理环境温度为 20 °C,高于 25 °C 的温度会诱导 C. elegans 发生热应激27。我们分别在 30 °C、35 °C 和 37 °C 三种升高的挑战性温度下诱导热应激。
内质网是蛋白质合成与折叠的主要场所28。内质网腔内未折叠或错误折叠蛋白质的积累会激活未折叠蛋白反应,以恢复蛋白质稳态29。内质网应激可由一种化学物质——衣霉素诱导,该物质阻断N-连接糖基化 ,导致错误折叠蛋白在内质网腔中积聚30。内质网腔内对蛋白质错误折叠应激的耐受性增强,表现为存活率提高12。我们用不同浓度的衣霉素(25–200 µg/mL)处理线虫,并通过测定其存活率来评估其敏感性。
线粒体是细胞的代谢中心,也是细胞的“能量工厂”。线粒体内的活性氧(ROS)和未折叠蛋白会触发线粒体未折叠蛋白反应,并诱导线粒体应激31。线粒体应激可通过抗霉素A(antimycin A)诱导,这是一种线粒体复合体III抑制剂,可阻断电子传递并导致ROS产生32。我们使用不同浓度的抗霉素A(5–80 µg/mL)来确定线粒体应激抗性检测的最佳剂量。
氧化应激通常由环境毒素和代谢产生的细胞自由基引起。氧化应激会对所有生物体中的蛋白质、脂质和DNA造成损伤33。百草枯是一种除草剂,可通过向氧气传递电子并产生过量超氧自由基,是诱导氧化应激的强效物质34。我们施加四种递增剂量的百草枯(2.5–20 mM),在 C. elegans中观察到最长存活时间范围为3至12天。
这四种应激条件易于产生高度可重复的 C. elegans 抗应激结果。此前已有文献报道过抗应激方法35,36,37,38,39,40。与先前综述中总结的不同应激源及存活分析方法相比35,本文建立了详细的、可操作的分步实验方案,以实现可重复且一致的应激检测。此前发表的若干实验方案主要集中于单一特定的应激检测,例如热休克36 或氧化应激38;而本方案涵盖了热应激、内质网(ER)应激、线粒体应激和氧化应激四种不同的应激检测方法。以往报道的应激检测方案还采用了荧光报告基因作为终点检测指标,例如针对内质网、线粒体和氧化应激的通路特异性荧光转录报告基因40,或热休克反应报告系统39;而本方案采用存活检测来有效评估 C. elegans 的整体健康状况。尤为重要的是,本方案对四种检测方法均进行了剂量滴定,提供了可用于选择有效剂量范围的参考依据;同时优化了不同应激检测的时间尺度(从数小时到数天);此外,我们以神经元调控多种应激反应的新功能为例,展示了如何验证神经元是否参与调控抗应激能力。
建立一种抗逆性测定方法需要选择合适的胁迫因子和可靠的评估指标。C. elegans 的生存测定已被广泛用作测量生理过程(包括寿命、抗逆性以及病理性感染)的有力工具。利用 C. elegans 进行生存测定的一个关键优势在于,由于其具有自体受精、子代数量多以及从卵到年轻成虫仅需三天的短发育周期等特点,易于制备和使用同龄同步化的线虫进行实验。在培养的 C. elegans 种群中,雄性个体极为稀少,因此通常不用于生存测定(包括本实验方案),而主要用于遗传杂交35。与其他终点评估方法(如荧光报告基因、蛋白质和脂质积累检测)相比,生存测定能有效反映 C. elegans 的整体健康状况,且完成时间相对较短,通常为数小时至数周不等,具体时长取决于胁迫因子的剂量。本研究采用存活率作为评估不同 C. elegans 品系抗逆能力的主要指标。存活状态通过运动能力和对轻微机械刺激的反应来判定;在 C. elegans 抗逆测定中,对刺激无反应被视为死亡的判断标准。C. elegans 的生存测定可在含细菌食物的固体或液体培养基中进行35。然而,液体环境并非线虫的自然生境,线虫在液体培养中被迫持续剧烈游动,导致其生存曲线缩短41。本文采用固体培养基来评估不同浓度胁迫因子对野生型及神经元消融突变体线虫存活率的影响。这些浓度梯度实验数据可为其他研究人员开展类似的抗逆性测定提供参考。
方案
涉及 C. elegans 的实验在美国堪萨斯州曼哈顿市的堪萨斯州立大学进行,遵循机构生物安全和实验室指南。C. elegans 作为一种无脊椎模式生物,本研究无需经过脊椎动物实验伦理委员会审批。所有使用的试剂、设备、软件和菌株的详细信息均列于材料表中。
1. 制备NGM(线虫生长培养基)平板并准备Escherichia coli OP50
- 制备NGM平板
- 称取 3 g NaCl、17 g 琼脂(粉末状)和 2.5 g 蛋白胨,加入 900 mL 超纯去离子水(dd H2O,并定容至 1 L,通过高压灭菌进行灭菌。将培养基冷却至约 60 °C 在一个 60 °C 水浴锅
- 加入 1 mL 1 M CaCl2 (用ddH₂O配制)2O 和滤器除菌),1 mL 5 mg/mL 胆固醇(溶于乙醇并滤器除菌),1 mL 1 M MgSO₄(溶于ddH₂O并滤器除菌)2O 和滤膜除菌),以及 25 mL 1 M KP 缓冲液。
配制 KP 缓冲液时,将 130 mL 的 1 M K2HPO4 含870 mL的1 M KH2PO4 用ddH₂O配制2O. 充分混匀后,用1 M KOH将pH调至6.0。配制完成后,测得的pH值通常接近6.0,一般无需进一步调节。KP缓冲液的可接受pH范围为5.8–6.2,目标pH值为6.0。使用前需确认最终pH值约为6.0。如有必要,使用1 M K2HPO4 或 1 M KH2PO4. - 充分混匀后,将NGM培养基倒入培养皿中。对于60 mm培养皿,每皿倒入10 mL NGM培养基; 对于35 mm培养皿,每皿倒入3 mL NGM培养基。将NGM琼脂平板置于室温(22–25 °C在接种细菌食物前,将其置于平坦的台面上静置至少 24 小时。
注意:制备和倾注熔融的 NGM 琼脂时,应使用耐热手套和适当的实验室个人防护装备,以防止烫伤和接触高温液体。
- 准备 Escherichia coli OP50 细菌食物 秀丽隐杆线虫
- 划线 大肠杆菌 OP50 细菌接种至 Luria-Bertani (LB) 琼脂平板,于 37 °C 过夜(LB 琼脂平板:向 100 mL 去离子水中加入 1 g NaCl、1 g 胰蛋白胨、0.5 g 酵母提取物和 1.5–2.0 g 琼脂粉)2O,高压灭菌20分钟,冷却至50-60 °C 将培养基倒入培养皿中,置于洁净、平坦的台面上晾干。
- 接种单菌落于100 mL液体LB培养基中(LB培养基:向100 mL ddH₂O中加入1 g NaCl、1 g胰蛋白胨和0.5 g酵母提取物)2O,高压灭菌20分钟。冷却至以下温度 37 °C 接种前
- 在培养基中培养细菌 37 °C 摇床培养箱中培养,直至菌液在10倍稀释后于600 nm处的光密度(OD600)达到约0.3100 µL 细菌悬液混合 900 µL LB 培养基)。收集并储存细菌悬液于 4 °C细菌食物可在接种到NGM平板前储存长达一周。40.
- 使用多通道重复移液器将OP50细菌接种到NGM平板上。接种 200 µL 用于60 mm的琼脂平板,以及 100 µL 用于35 mm琼脂平板。将接种后的NGM平板置于室温(约22–25 °C在使用前,将平板置于平坦的台面上静置至少24小时。平板在室温下存放时间不得超过48小时。将接种好的平板放入洁净的塑料盒中并储存于 4 °C.
注意:若使用非透气板,接种的OP50可能需要更长时间才能干燥。
注意:操作时需谨慎 E. coli 采用适当的微生物操作规范进行OP50培养,穿戴实验服、手套和护目设备。根据机构的生物安全规程对工作台面进行消毒,并妥善处理细菌废弃物。
2. C. elegans 的培养与同步化
本部分的工作流程总结于图1A中。
- 在接种了OP50的NGM平板上,于20 °C条件下培养线虫,每周两次将成虫转移至新的接种OP50的NGM平板,以避免线虫饥饿。使用铂金丝挑取20–40只产卵期成虫放置到新鲜的接种OP50的NGM平板上,并清除随产卵期成虫从原平板转移过来的任何幼虫和卵。使用已知数量的产卵期成虫有助于准确记录,并确保在后续步骤(第1.2节)中将其完全移除。
注意:根据野生型品系(N2)的条件,总共20–40只产卵期成虫在2小时内足以产生80–120个卵。当产卵期成虫处于成年期第一天(第1天)时,其产卵处于最佳窗口期。对于繁殖力较低或较高的品系,应相应调整产卵期成虫的数量。本步骤的目标是获得足够数量的卵,以发育为同步化的线虫,用于后续的应激实验。 - 大约2小时后,从平板上移除产卵期成虫。统计此步骤中移除的产卵期成虫数量,并确认最初放置在平板上的全部20–40只产卵期成虫均已移除。
- 将含有卵的平板在20 °C条件下培养,直至线虫发育至晚期L4阶段,用于应激实验。将线虫同步至L4阶段,以最大限度减少因成虫年龄和生殖状态差异引入的变异性12,35,37,38,40,42,43。在20 °C条件下,野生型品系的线虫在固体琼脂平板上产卵后约54–58小时达到均匀同步的晚期L4阶段 (我们的观察结果及36,40)。
注意:对于发育延迟的品系,应根据其特定的发育速率调整同步至晚期L4阶段的时间。
注意:操作 C. elegans 时应采用适当的微生物操作规范,穿戴实验服和手套,以尽量减少接触生物材料并防止污染。
3. 应激条件与数据采集
- 热应激实验
本部分的工作流程总结于图1B。- 将线虫同步至晚期L4阶段(第2节),并在20 °C下维持培养。将同步化的L4期线虫转移至35 mm OP50细菌接种的NGM平板上(第1节),每组使用4个平板作为技术重复,每个平板放置30–35条线虫。生物学重复的设置参见第4节。
- 将含有晚期L4期线虫的平板放入30、35或37 °C的培养箱中。确保在将实验用线虫平板放入前,培养箱已达到设定温度。野生型线虫在30、35或37 °C下的平均存活时间约为4小时至3天(图2B–D),而生理非应激状态下的平均存活时间约为20天(图2A)。
关键步骤:将所有实验平板以琼脂面朝下的方式单层放置于35 °C培养箱中,以实现快速且均匀的温度平衡。
注意:在30、35或37 °C下的热应激实验期间,大多数线虫不会产卵。在极少数产卵的情况下,未观察到任何卵孵化。因此,无需将线虫转移至新鲜平板。 - 在每次技术重复平板的每个时间点记录死亡线虫数量,并将数据记录在评分数据表上。在35 °C或37 °C热应激条件下每小时评分一次线虫存活情况,在30 °C热应激条件下每日评分一次。评分在室温下使用解剖显微镜进行。评分过程中,仅取出待检测的平板,其余平板应保持在指定的热应激温度下,以尽量减少热应激暴露的中断。此操作有助于维持所有样本间一致的实验条件。
关键步骤:为尽量减少热应激暴露的中断,每次评分期间每个平板在培养箱外停留时间不得超过3分钟。根据应激实验不同时间点的线虫存活情况,在室温下对一个平板进行评分通常需要约30秒至3分钟。考虑到手动评分所需时间,评分顺序至关重要。建议按条件依次对每个技术重复进行评分,直至所有条件下的技术重复均完成。例如,在三个条件/组(A、B和C)各含4个技术重复平板的情况下,评分顺序应为:A1、B1、C1 → A2、B2、C2 → A3、B3、C3 → A4、B4、C4。 - 根据是否对轻柔的物理刺激产生运动反应来评估线虫存活状态 。活跃移动的线虫记为存活,无需额外物理刺激。对于未表现出自发运动的线虫,使用铂金丝挑针轻触其后部体区两次以进行温和刺激。若无运动反应,则记录为死亡,并在记录后将死亡线虫从平板中移除。每次触碰后约2秒的观察足以判断是否存在运动反应。建议使用手持计数器记录存活与死亡线虫数量,以减少计数误差。为确保每条线虫仅被计数一次且不重复计数,可在平板下方放置带网格的透明塑料片,或在平板底部绘制网格,将平板划分为若干网格区域以便计数。
注意:评分后立即将平板放回热应激培养箱中。 - 定期监测线虫存活情况,直至所有个体死亡或根据预设标准进行删失处理。整理记录的存活数据,并用于生成生存曲线以供后续分析。
- 内质网应激实验
本部分的工作流程总结于图1C。- 制备内质网应激实验用培养基平板。将衣霉素储存液(10 mg/mL溶于二甲基亚砜(DMSO),–20 °C保存)加入液态NGM培养基(第1.1.2节)中,终浓度为25、50、100或200 µg/mL。例如,为制备1 L内质网应激实验培养基,加入2.5、5、10或20 mL衣霉素储存液(10 mg/mL溶于DMSO),以在培养基平板中达到25、50、100或200 µg/mL的终浓度。若实验中包含未处理对照组,则向相应对照培养基中加入等量DMSO(2.5、5、10或20 mL)。
关键步骤:在搅拌条件下将高压灭菌后的NGM培养基冷却至约55 °C,加入衣霉素至所需终浓度。充分混匀后,将含衣霉素的NGM培养基各3 mL倒入35 mm平板中。每个35 mm琼脂平板接种100 µL OP50细菌(第1.2节)。含衣霉素的OP50接种NGM平板可在4 °C保存至多一周后使用。
注意:衣霉素具有危害性,必须在化学通风橱中操作,并穿戴实验服、手套和眼部防护装备。避免吸入及皮肤或眼部接触。 - 将线虫同步至晚期L4阶段(第2节),并在20 °C下维持培养。将同步化的L4期线虫转移至含衣霉素的35 mm OP50细菌接种NGM平板上,每组使用4个平板作为技术重复,每个平板放置30–35条线虫。生物学重复的设置参见第4节。
- 将所有平板在20 °C下培养。每日记录死亡线虫数量。野生型线虫在25、50、100或200 µg/mL衣霉素下的平均存活时间约为8至11天(图2E,F) ,而生理非应激状态下的平均存活时间约为20天(图2A)。
注意:在衣霉素诱导的内质网应激实验中,虽有产卵现象,但卵在含衣霉素的琼脂平板上无法孵化。因此,无需将线虫转移至新鲜平板。 - 每日对每个技术重复平板上的死亡线虫数量进行评分,并将数据记录在评分数据表上。评分在室温下使用解剖显微镜手动完成。活跃移动的线虫记为存活,无需物理刺激。对于未表现出自发运动的线虫,使用铂金丝挑针轻触其后部体区两次以进行温和刺激。若无反应,则记录为死亡,并在记录后将死亡线虫从平板中移除。建议使用手持计数器以确保计数准确。为确保每条线虫仅被计数一次且不重复计数,可在平板下方放置带网格的透明塑料片,或在平板底部绘制网格,将平板划分为若干网格区域以便计数。
注意:评分后立即将平板放回培养箱中。在下次评分前,将线虫在培养箱中维持约24小时。 - 每日监测线虫存活情况,直至所有个体死亡或根据预设标准进行删失处理。整理记录的存活数据,并用于生成生存曲线以供后续分析。
- 制备内质网应激实验用培养基平板。将衣霉素储存液(10 mg/mL溶于二甲基亚砜(DMSO),–20 °C保存)加入液态NGM培养基(第1.1.2节)中,终浓度为25、50、100或200 µg/mL。例如,为制备1 L内质网应激实验培养基,加入2.5、5、10或20 mL衣霉素储存液(10 mg/mL溶于DMSO),以在培养基平板中达到25、50、100或200 µg/mL的终浓度。若实验中包含未处理对照组,则向相应对照培养基中加入等量DMSO(2.5、5、10或20 mL)。
- 线粒体应激实验
本部分的工作流程总结于图1D。- 制备线粒体应激实验用培养基平板。将抗霉素A储存液(5 mg/mL溶于DMSO,–20 °C保存)加入液态NGM培养基(第1.1.2节)中,终浓度为5、10、20、40或80 µg/mL。例如,为制备1 L线粒体应激实验培养基,加入1、2、4、8或16 mL抗霉素A储存液(5 mg/mL溶于DMSO) ,以在培养基平板中达到5、10、20、40或80 µg/mL的终浓度。若实验中包含未处理对照组,则向相应对照培养基中加入等量DMSO(1、2、4、8或16 mL)。
关键步骤:在搅拌条件下将高压灭菌后的NGM培养基冷却至约55 °C,加入抗霉素A至所需终浓度。充分混匀后,将含抗霉素A的NGM培养基各3 mL倒入35 mm平板中。每个35 mm琼脂平板接种100 µL OP50细菌(第1.2节)。含抗霉素A的OP50接种NGM平板可在4 °C保存至多一周后使用。
注意:抗霉素A具有危害性,必须在化学通风橱中操作,并穿戴实验服、合适的手套和眼部防护装备。避免吸入及皮肤或眼部接触。 - 将线虫同步至晚期L4阶段(第2节),并在20 °C下维持培养。将同步化的L4期线虫转移至含抗霉素A的35 mm OP50细菌接种NGM平板上,每组使用4个平板作为技术重复,每个平板放置30–35条线虫。生物学重复的设置参见第4节。
- 将所有平板在20 °C下培养。每日记录死亡线虫数量。
关键步骤:由于存在卵孵化和幼虫发育问题,在实验前10天内每两天将线虫转移至新鲜平板一次。当平板上不再观察到新的幼虫或卵时,停止转移。所有技术重复应经历相同次数的转移。例如,当仅有一个平板需要转移时,该生物学重复中的所有平板需同时转移。野生型线虫在5、10、20、40或80 µg/mL抗霉素A下的平均存活时间约为1.5至5天(图2G,H),而生理非应激状态下的平均存活时间约为20天(图2A)。
注意:抗霉素A诱导的线粒体应激实验要求在实验前10天内每两天将线虫转移至新鲜平板一次。转移操作旨在防止过度拥挤和饥饿,并区分实验线虫与其后代。 - 每日对每个技术重复平板上的死亡线虫数量进行评分,并将数据记录在评分数据表上。评分在室温下使用解剖显微镜手动完成。活跃移动的线虫记为存活,无需物理刺激。对于未表现出自发运动的线虫,使用铂金丝挑针轻触其后部体区两次以进行温和刺激。若无反应,则记录为死亡,并在记录后将死亡线虫从平板中移除。建议使用手持计数器以确保计数准确。为确保每条线虫仅被计数一次且不重复计数,可在平板下方放置带网格的透明塑料片,或在平板底部绘制网格 ,将平板划分为若干网格区域以便计数。
注意:评分后立即将线虫放回培养箱中。在下次评分前,将线虫在培养箱中维持约24小时。 - 每日监测线虫存活情况,直至所有个体死亡或根据预设标准进行删失处理。整理记录的存活数据,并用于生成生存曲线以供后续分析。
- 制备线粒体应激实验用培养基平板。将抗霉素A储存液(5 mg/mL溶于DMSO,–20 °C保存)加入液态NGM培养基(第1.1.2节)中,终浓度为5、10、20、40或80 µg/mL。例如,为制备1 L线粒体应激实验培养基,加入1、2、4、8或16 mL抗霉素A储存液(5 mg/mL溶于DMSO) ,以在培养基平板中达到5、10、20、40或80 µg/mL的终浓度。若实验中包含未处理对照组,则向相应对照培养基中加入等量DMSO(1、2、4、8或16 mL)。
- 氧化应激实验
本部分的工作流程总结于图1E。- 制备氧化应激实验用培养基平板。将百草枯储存液(0.5 M溶于ddH2O,–20 °C保存)加入液态NGM培养基(第1.1.2节)中,终浓度为2.5、5、10或20 mM。
关键步骤:在搅拌条件下将高压灭菌后的NGM培养基冷却至约55 °C,加入百草枯至所需终浓度。充分混匀后,将含百草枯的NGM培养基各3 mL倒入35 mm平板中。每个35 mm琼脂平板接种100 µL OP50细菌(第1.2节)。OP50细菌可在实验前2–3天接种。含百草枯的OP50接种NGM平板可在4 °C保存至多一周后使用。
注意:百草枯具有高毒性,必须在化学通风橱中操作,并佩戴合适手套、实验服和眼部防护装备。避免吸入、摄入及皮肤或眼部接触。 - 将线虫同步至晚期L4阶段(第2节),并在20 °C下维持培养。将同步化的L4期线虫转移至含百草枯的35 mm OP50细菌接种NGM平板上,每组使用4个平板作为技术重复,每个平板放置30–35条线虫。生物学重复的设置参见第4节。
- 将所有平板在20 °C下培养。每日记录死亡线虫数量。野生型线虫在2.5、5、10或20 mM百草枯下的平均存活时间约为2.5至5天(图2I,J),而生理非应激状态下的平均存活时间约为20天(图2A)。
注意:在百草枯诱导的氧化应激实验中,无需将线虫转移至新鲜平板。百草枯平板上存在少量幼虫,其发育停滞在L2阶段或更早阶段,全程不会干扰同步群体的识别或导致饥饿。考虑到转移操作可能引入的物理应激,不建议在实验期间进行线虫转移。 - 每日对每个技术重复平板上的死亡线虫数量进行评分,并将数据记录在评分数据表上。评分在室温下使用解剖显微镜手动完成。活跃移动的线虫记为存活,无需物理刺激。对于未表现出自发运动的线虫,使用铂金丝挑针轻触其后部体区两次以进行温和刺激。若无反应,则记录为死亡,并在记录后将死亡线虫从平板中移除。建议使用手持计数器以确保计数准确。为确保每条线虫仅被计数一次且不重复计数,可在平板下方放置带网格的透明塑料片,或在平板底部绘制网格,将平板划分为若干网格区域以便计数。
注意:评分后立即将线虫放回培养箱中。在下次评分前,将线虫在培养箱中维持约24小时。 - 每日监测线虫存活情况,直至所有个体死亡或根据预设标准进行删失处理。整理记录的存活数据,并用于生成生存曲线以供后续分析。
- 制备氧化应激实验用培养基平板。将百草枯储存液(0.5 M溶于ddH2O,–20 °C保存)加入液态NGM培养基(第1.1.2节)中,终浓度为2.5、5、10或20 mM。
4. 数据分析
- 记录每个时间点各技术重复孔中死亡线虫的数量。死亡率数据按时间点(施加胁迫条件后的小时或天数)、实验组(不同品系或不同处理条件)和技术重复(1、2、3 或 4 号孔)记录在评分表中。在每个评分时间间隔(根据实验设定为每小时或每天),分别记录每孔中死亡线虫的数量,并持续追踪累积死亡率直至实验结束。
- 将每个评分时间点的死亡率数据输入OASIS 2(在线生存分析应用2)44 用于生成Kaplan-Meier生存曲线并进行log-rank统计分析。或者,可在各个时间点计算死亡线虫的百分比,并使用非配对双尾Student's t检验在组间进行比较 t检验 (适用于两组)或单因素方差分析,随后进行Tukey多重比较检验(适用于三组及以上)。
注意:出现破裂或母体孵化(bagging)的线虫在被观察到时即记为死亡,以反映总体存活率。在下文代表性结果中,破裂的线虫和母体孵化的线虫均被纳入报告的存活曲线。不同条件下删失(censored)线虫的数量已记录在案。 补充表1。 逃离检测平板、在平板壁上干燥或在计分时缺失的线虫被视为删失数据,从后续生存分析中排除。动物若表现出运动能力受损,但对轻触刺激仍有反应,则记为存活。在检测开始前已表现出产卵缺陷的线虫,不纳入生存分析。 - 所有应激实验均需在不同日期至少进行三次独立的生物学重复。每次生物学重复包含四块技术重复的平板,每板均含有线虫。同一生物学重复内的技术重复数据将合并,以生成一条单独的生存曲线。各独立的生物学重复需分别进行分析,并作为独立的数据集呈现,而非合并数据。每次生物学重复均使用 freshly 制备的培养基和新配制的应激诱导化合物批次进行。上述方案描述的是每项应激实验中完成一次生物学重复的操作步骤。本方案中排除雄性个体,仅包含并分析雌雄同体。
注意:本实验方案中的培养箱湿度未进行控制,而培养箱温度则严格控制在实验所需温度。本文所报告的实验未在盲法条件下进行,实验人员在评分时知晓样本的基因型和处理条件。建议在条件允许时对基因型和处理条件采用盲法,以尽量减少潜在的评分偏倚。
结果
根据上述方案,我们首先使用野生型(WT)N2线虫检测了线虫在四种胁迫因素——热胁迫、内质网(ER)胁迫、线粒体胁迫和氧化胁迫——梯度剂量下的存活情况。随后,我们利用神经元消融品系,检测了中间神经元RIC在胁迫抗性中的作用,并与野生型线虫进行了比较。
滴定热应激剂量并比较 RIC 消融菌株的热应激抗性
在 20 °C 的生理温度下,野生型(WT)线虫的平均寿命为 20.67 天(图 2A)。根据第 3.1 节所述的热应激实验步骤,我们测定了 WT 线虫在 30、35 和 37 °C 升高温度下的存活情况,作为递增剂量的热应激处理。数据显示,WT 线虫在 30 °C 下的平均寿命为 3.11 天(图 2B);在 35 °C 下的平均存活时间为 5.36 小时,在 37 °C 下为 4.89 小时(图 2C)。这些结果表明,在更高温度下,线虫的存活率显著下降。统计分析结果及 P 值详见补充表 2及图注。本数据为研究人员在设计热应激实验时选择最佳应激温度和时间尺度提供了可靠依据。研究人员可采用 30 °C 条件观察线虫数天内的存活情况,或使用 35 °C 或 37 °C 条件在数小时内快速评估线虫的存活状态。
接下来,我们采用 35 °C 作为热应激条件,评估 RIC 神经元消融对生存率的影响,并与野生型动物进行比较。该温度可产生中等程度的热应激,避免了 37 °C 条件下的极端严酷性,同时相比 30 °C 能引发更显著的反应,且可在约 12 小时内完成完整的生存率测定实验。
C. elegans 头部区域存在一对章鱼胺能中间神经元,称为 RIC 神经元9,10。通过在 tbh-1 基因启动子驱动下表达半胱氨酸天冬氨酸蛋白酶-3(caspase-3)基因,构建了 RIC 神经元消融品系,并已在先前研究中使用45。简言之,将 tbh-1 启动子构建至 mec-18p::caspase-3 (p12)::nz 和 mec-18p cz::caspase-3 (p17) 供体质粒中,以替换原有的 mec-18 启动子。将三个构建体——tbh-1p::caspase-3(p12)::nz(20 ng/µL)、tbh-1p::cz::caspase-3(p17)(20 ng/µL)以及 tbh-1p::GFP(20 ng/µL,作为标记 RIC 神经元的报告基因,用于判断 RIC 神经元是否被成功消融)——与荧光共注射标记 myo-3p::GFP(5 ng/µL)共同注射到野生型 N2 品系中,以建立 RIC 遗传性消融品系。选取三个独立的注射品系作为 RIC 神经元消融株系进行维持。转基因品系通过筛选带有荧光 myo-3p::GFP 标记的线虫进行保种。各项应激实验的结果均通过两个或三个独立品系进行验证。RIC 神经元消融是否成功,通过检测 RIC 神经元消融品系中 tbh-1p::GFP 荧光信号的缺失来确认;而在 tbh-1p::GFP 报告基因对照品系中,可在 RIC 神经元中观察到 GFP 表达(补充图 1)。
根据第3.1节中提供的热应激实验步骤,我们检测了野生型和RIC神经元消融品系在35 °C热应激条件下的存活情况 (图2D)。根据第4.1–4.3节中数据分析步骤的结果显示,在35 °C热应激条件下,RIC神经元消融品系与野生型N2对照组之间未发现显著差异(图2D)。
所有热应激实验的代表性结果均在不同日期进行了三次独立的生物学重复实验(补充图2)。参与动物数量(n值见图注) 代表结果及补充图中所示生存曲线的数据来自单次生物学重复中的四次技术重复的合并数值。
滴定内质网应激剂量并比较 RIC 消融菌株的内质网应激抗性
根据第 3.2 节中提供的内质网应激检测步骤,我们测定了野生型(WT)线虫在 25、50、100 或 200 µg/mL 衣霉素处理下随内质网应激剂量增加的存活情况(图 2E)。与生理非应激状态下约 20 天的平均存活时间相比(图 2A),野生型线虫在 25 µg/mL 衣霉素下的平均存活时间为 10.74 天,在 50 µg/mL 下为 9.13 天,在 100 µg/mL 下为 9.3 天,在 200 µg/mL 下为 8.93 天(图 2E)。在这些剂量范围内增加衣霉素浓度并未显著改变线虫的存活时间。统计分析结果及 P 值详见补充表 2及图注。该数据为研究人员在内质网应激检测中选择最佳衣霉素剂量提供了可靠依据。
接下来,我们使用50 µg/mL的衣霉素(tunicamycin),该剂量为所测试剂量中的中等剂量,作为内质网(ER)应激条件,以评估RIC神经元消融对生存的影响,并与野生型(WT)动物进行比较。根据第3.2节中所述的内质网应激检测步骤,我们检测了在50 µg/mL衣霉素诱导的内质网应激条件下,野生型和RIC神经元消融品系的生存情况(图2F)。根据第4.1–4.3节中数据分析的步骤,RIC神经元消融品系的生存曲线相较于野生型N2对照组显著右移,表明其在内质网应激条件下生存时间延长。该结果提示,RIC神经元的消融增强了对内质网应激的抵抗能力(图2F)。
所有内质网应激检测的代表性结果均来自不同日期进行的三次独立生物学重复实验(补充图3动物数量(图注中注明的 n 值)参与 与代表性结果及补充图中所示生存曲线相对应的是单次生物学重复中四次技术重复的合并数据。
滴定线粒体应激剂量并比较 RIC 消融菌株的线粒体应激抗性
根据第 3.3 节中提供的线粒体应激检测步骤,我们测定了野生型(WT)线虫在 5、10、20、40 或 80 µg/mL 抗霉素 A 作用下的存活情况,以代表递增的线粒体应激剂量(图 2G)。野生型线虫的存活曲线表现出显著的剂量依赖性变化。与生理非应激状态下约 20 天的平均寿命相比(图 2A),在 5 µg/mL 抗霉素 A 下野生型线虫的平均寿命为 4.96 天,在 10 µg/mL 下为 3.77 天,在 20 µg/mL 下为 2.68 天,在 40 µg/mL 下为 1.65 天,在 80 µg/mL 抗霉素 A 下为 1.4 天(图 2G)。统计分析结果及 P 值详见补充表 2及图注。该数据为研究人员在设计线粒体应激检测时选择合适的抗霉素 A 剂量和时间尺度提供了可靠依据。研究人员可选择 5 µg/mL 的剂量以评估线虫在约 10 天内的存活情况,或使用更高浓度的抗霉素 A 在数天内获得存活结果。需注意,较高浓度会加速死亡,而较低浓度则导致存活率更缓慢地下降,从而更易于区分不同菌株之间的细微差异。
接下来,我们使用5 µg/mL抗霉素A诱导线粒体应激条件,该剂量在测试范围内导致生存率呈现较为 缓慢的下降,用于评估RIC神经元消融对生存率的影响,并与野生型动物进行比较。根据第3.3节中所述的线粒体应激实验步骤,我们在5 µg/mL抗霉素A诱导的线粒体应激条件下检测了野生型(WT)和RIC神经元消融品系的生存情况(图2H)。按照第4.1–4.3节所述的数据分析步骤,RIC神经元消融品系的生存曲线相较于野生型N2对照组显著右移,表明其在线粒体应激条件下生存时间延长。该结果提示,RIC神经元的消融可增强对线粒体应激的抵抗能力(图2H)。
线粒体应激实验的所有代表性结果均在不同日期进行了三次独立的生物学重复实验(补充图4)。参与动物数量(n 值见图注) 代表性结果及补充图中所示生存曲线的数据来自单次生物学重复中的四次技术重复的合并数值。
滴定氧化应激剂量并比较RIC消融菌株的氧化应激抗性
根据第3.4节所述的氧化应激实验步骤,我们测定了野生型(WT)线虫在2.5、5、10或20 mM百草枯条件下随氧化应激剂量增加的存活情况(图2I)。野生型线虫的存活曲线表现出显著的剂量依赖性变化。与生理非应激状态下约20天的平均寿命相比(图2A),在2.5 mM百草枯条件下野生型线虫的平均寿命为4.92天,5 mM时为3.81天,10 mM时为2.93天,20 mM时为2.81天(图2I)。统计分析结果及P 值详见补充表2及图注。该数据为研究人员在设计氧化应激实验时选择最佳百草枯剂量和时间尺度提供了可靠依据。研究人员可选择2.5 mM剂量以评估线虫约10天内的存活情况,或使用更高浓度的百草枯在数天内获得存活结果。需注意,较高浓度(10 mM和20 mM)会加速死亡,而中低浓度(2.5 mM和5 mM)则导致存活率更缓慢地下降,从而更易于区分不同菌株间的细微差异。
接下来,我们采用5 mM的百草枯(paraquat)——在已测试剂量中的一个中等剂量——作为氧化应激条件,以评估RIC神经元消融对生存率的影响,并与野生型(WT)动物进行比较。根据第3.4节所述的氧化应激实验步骤,我们检测了在5 mM百草枯诱导的氧化应激条件下,野生型和RIC神经元消融品系的生存情况。图2J)。采用第4.1–4.3节中所述的数据分析步骤,结果显示,在5 mM百草枯诱导的氧化应激条件下,RIC神经元消融品系与野生型N2对照组之间无显著差异。图2J).
所有代表性的氧化应激检测结果均在不同日期进行了三次独立的生物学重复实验(补充图5)。参与实验的动物数量(n值见图注) 代表结果及补充图中所示生存曲线的数据来自单次生物学重复中的四次技术重复的合并数值。
故障排除
在百草枯诱导的氧化应激实验中,一个常见问题是线虫会从琼脂平板上逃逸,导致样本丢失以及可用于分析的线虫数量减少。棕榈酸 可在检测板中添加屏障或其他“围栏”以部分抑制这种逃逸行为46,47,尽管改善程度有限,且未能彻底消除该问题。在健康状况和寿命方面未观察到显著差异 秀丽线虫 棕榈酸处理后48棕榈酸屏障起到一种厌恶作用 "围栏" 在NGM平板上以防止 秀丽隐杆线虫 因应激、饥饿或病原体而逃离。为尽量减少蠕虫逃逸,应用 30 µL 10 mg/mL 棕榈酸 将乙醇中的棕榈酸(将0.5 g棕榈酸加入50 mL 100% EtOH中)加至35 mm检测板边缘,轻轻旋转培养板以形成连续的环状。待乙醇完全挥发后,棕榈酸 环起到物理和化学屏障的作用,以减少线虫逃逸。在与棕榈酸环接触时死亡的线虫将被剔除,不纳入生存分析。
警告:棕榈酸及其溶液必须使用适当的实验室个人防护装备(PPE)进行操作,包括手套、实验服和眼部防护,应避免与皮肤和眼睛接触。
数据可用性
图2及补充图所依据的生存数据,包括所有生物学重复实验的数据和统计结果,均见于补充图1–5、补充表1–2和补充文件1中。
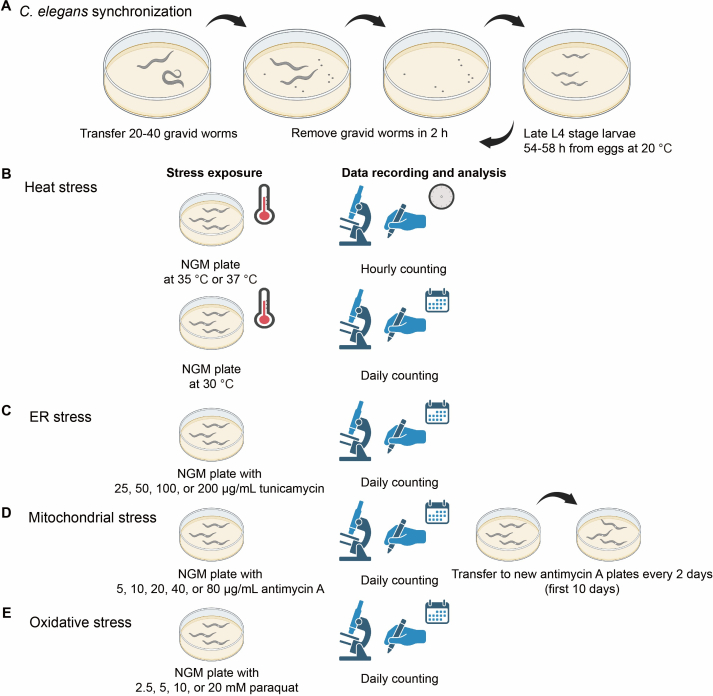
图1:应激实验流程。 (A通过收集处于产卵期的线虫在2小时内所产的卵,获得同步化的线虫。所有应激实验均使用同步化线虫,并在发育54–58小时后处于晚期L4阶段时,将其转移至应激培养板或相应应激条件下 从卵中获取 20 °C. (B在热应激实验中,将同步化的线虫转移至NGM平板中 35 °C 或 37 °C 培养箱中,每小时记录死亡的线虫数量。对于热应激实验中的 30 °C 孵育箱中,每天记录死亡线虫数量。C在内质网应激实验中,将同步化的线虫转移至含有25、50、100或 200 µg/mL 衣霉素。每天记录死亡线虫数量。D) 在线粒体应激实验中,将同步化的线虫转移至含有 5、10、20、40 或 80 µg/mL 抗霉素A,并通过每日评分评估存活情况。为防止子代干扰,在实验前10天内,每两天将线虫转移至含新鲜抗霉素A的培养板中一次。(E在氧化应激实验中,同步化的线虫被 转移至含有2.5、5、10或20 mM百草枯的NGM平板上,通过每日评分评估存活情况。通过比较各实验生成的Kaplan–Meier生存曲线来评价抗逆性。 请点击此处以查看此图的放大版本。
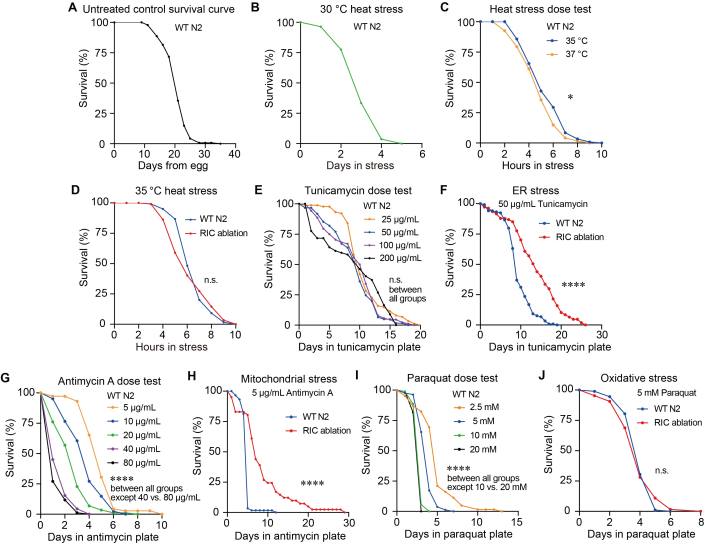
图2:滴定热、内质网、线粒体及氧化应激剂量,并比较 RIC 神经元消融后的应激抗性 菌株 (A) 在非应激条件下WT N2品系的代表性Kaplan–Meier生存曲线(n = 141,平均生存期 = 20.67天)。(B代表性 野生型 N2 品系的 Kaplan-Meier 生存曲线 30 °C 热应激(n = 111,平均存活时间 = 3.11 天)。(C) 野生型 N2 品系的代表性 Kaplan-Meier 生存曲线 35 °C 和 37 °C 热应激(n = 119, 121);log-rank检验, P = 0.0244,* 表示 P < 0.05. (D代表性野生型 N2 和 RIC 神经元消融株的 Kaplan–Meier 生存曲线 35 °C 热应激(n = 117, 120);log-rank 检验, P = 0.4972,n.s. 表示无显著差异。以野生型 N2 作为对照。 (E) 菌株WT N2在不同浓度衣霉素处理下的剂量-反应存活曲线(n = 88, 61, 88, 67);log-rank检验, P = 0.6472 (25 µg/mL 与 100 µg/mL), P = 0.1473 (25 µg/mL 与 50 µg/mL), P = 0.6581 (50 µg/mL 与 200 µg/mL), P = 1 (25 µg/mL 与 200 µg/mL; 50 µg/mL 与 100 µg/mL; 100 µg/mL 与 200 µg/mL),n.s. 表示无显著性差异。F) 野生型 N2 和 RIC 的代表性 Kaplan-Meier 生存曲线 神经元消融品系下 50 µg/mL 衣霉素诱导的内质网应激(n = 119, 107);log-rank检验,****表示 P < 0.0001. (G) 野生型 N2 品系经不同浓度抗霉素 A 处理后的代表性 Kaplan-Meier 生存曲线(n = 72, 81, 88, 91, 85);log-rank 检验, P = 0.000038 (5 µg/mL 与 10 µg/mL), P = 0.00002 (10 µg/mL 与 20 µg/mL), P = 1.60 × 10⁻8 (20 µg/mL 与 40 µg/mL), P < 0.0001 (5 µg/mL 与 20 µg/mL; 5 µg/mL 与 40 µg/mL; 5 µg/mL 与 80 µg/mL; 10 µg/mL 与 40 µg/mL; 10 µg/mL 与 80 µg/mL;或 20 µg/mL 与 80 µg/mL), P = 0.189 (40 µg/mL 与 80 µg/mL),**** 表示 P < 0.0001. (H代表性Kaplan-Meier生存曲线,显示野生型N2与RIC神经元消融品系在 5 µg/mL 抗霉素A诱导的线粒体应激(n = 59, 41);log-rank检验,P = 3.2 × 10⁻9,**** 表示 P < 0.0001. (I) 不同浓度百草枯处理下野生型 N2 品系的代表性 Kaplan–Meier 生存曲线(n = 62, 81, 88, 93);log-rank 检验, P = 1.80 × 10⁻7 (2.5 mM 与 5 mM) P < 0.0001(2.5 mM 对比 10 mM;2.5 mM 对比 20 mM;5 mM 对比 10 mM;5 mM 对比 20 mM) P = 0.1445(10 mM 与 20 mM 比较),**** 表示 P < 0.0001. (J代表性Kaplan-Meier生存曲线,显示在5 mM百草枯诱导的氧化应激条件下,野生型N2与RIC神经元消融品系的生存情况(n = 92, 64);log-rank检验, P = 0.9817,n.s. 表示无显著差异。所有实验均进行了三次独立的生物学重复。本图展示的是其中一次生物学重复的代表性结果。 每个生物学重复包含四个含有线虫的技术重复孔板。贡献的动物数量(n) 该生存曲线图中的数据来自单个生物学重复中的四次技术重复的合并数值。独立的生物学重复被分别分析,而非合并,其结果作为独立的数据集展示于补充图2–5中。采用log-rank检验对生存分布进行比较,以评估显著性。详细的统计学方法 P 技术重复样本的数值、平均生存率及标准误包含在补充表2中。 请点击此处查看此图的放大版本。
补充图1:缺失 tbh-1p::在RIC神经元消融品系中观察到GFP荧光,而在RIC神经元中观察到GFP表达的 tbh-1p::GFP 报告基因对照菌株。 (ARIC神经元消融的荧光图像 菌株 tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17) tbh-1p::GFP; myo-3p::GFP 和 a tbh-1p::GFP 报告基因对照菌株 OH16150 tbh-1p::GFP; tdc-1p::mCherry。使用488 nm激发光对晚期L4阶段的线虫进行成像,GFP通道曝光时间为800 ms,明场通道曝光时间为176 ms。黄色箭头指示对照组中RIC神经元的位置 tbh-1p::GFP 报告基因型菌株或 RIC 神经元的预期位置,后者在 RIC 神经元消融型菌株中缺失。 tbh-1p::在RIC神经元消融品系中,RIC神经元位置未检测到GFP信号,而 tbh-1p::在RIC神经元中观察到GFP信号 tbh-1p::GFP 报告基因对照菌株 OH16150。RIC 神经元消融菌株中体壁肌的荧光来自 myo-3p::GFP,一种共注射标记。 (An = 14(OH16150);n = 20(RIC神经元消融品系)。B, C) 另外两个生物学重复的代表性结果。使用488 nm激发光对晚期L4期线虫进行成像,曝光时间为1007 ms(B)或 1998 毫秒(C)GFP 通道的曝光时间为 176 毫秒(B 和 C)明场通道的曝光时间。 (Bn = 8(OH16150);n = 17(RIC 神经元消融品系)。Cn = 14,OH16150;n = 13,RIC 神经元消融品系 请点击此处下载该文件。
补充图 2:非应激条件下或热应激下的生存曲线生物学重复。 (A,B)非应激条件下两个独立生物学重复的 Kaplan-Meier 生存曲线。(A)n = 123,平均生存时间为 20.52 天;(B)n = 130,平均生存时间为 22.74 天。(C,D)在 30 °C 热应激下 WT N2 品系的 Kaplan-Meier 生存曲线。数据来自两个独立的生物学重复。(C)n = 130,平均生存时间为 3.72 天;(D)n = 98,平均生存时间为 3.77 天。(E,F)在 35 °C 或 37 °C 热应激条件下的 Kaplan-Meier 生存曲线。数据来自两个独立的生物学重复。(E)n = 118, 121;log-rank 检验,P = 0.0409,* 表示 P < 0.05;(F)n = 122, 120;log-rank 检验,P = 0.0251,* 表示 P < 0.05。(G,H)在 35 °C 热应激条件下 WT N2 与 RIC 神经元消融品系的 Kaplan-Meier 生存曲线。数据来自两个独立的生物学重复。(G)n = 79, 76;log-rank 检验,P = 0.2217,n.s. 表示无显著差异;(H)n = 77, 81;log-rank 检验,P = 0.1881,n.s. 表示无显著差异。显著性通过 log-rank 检验比较生存分布进行评估。技术重复间的详细统计 P 值、平均生存时间及标准误(S.E.)见补充表 2。请点击此处下载该文件。
补充图3:内质网应激条件下生存曲线的生物学重复实验。 (A, B) 野生型N2品系在不同浓度衣霉素处理下的Kaplan-Meier生存曲线。数据来自两次独立的生物学重复实验。(A) n = 110, 102, 100, 96;(B) n = 88, 77, 75, 69。不同组间(A 和 B)的统计学 P 值见补充表2。(C, D) 在50 µg/mL衣霉素诱导的内质网应激条件下,野生型N2品系与RIC神经元消融品系的Kaplan-Meier生存曲线。数据来自两次独立的生物学重复实验。(C) n = 104, 55;log-rank检验,P = 0.012,* 表示 P < 0.05;(D) n = 85, 109;log-rank检验,P = 0.0001,*** 表示 P < 0.001。采用log-rank检验比较生存分布的显著性差异。各技术重复间的详细统计学 P 值、平均生存时间及标准误(S.E.)见补充表2。 请点击此处下载该文件。
补充图4:线粒体应激条件下生存曲线的生物学重复实验。 (A,B)在不同浓度抗霉素A处理下,野生型N2品系的Kaplan-Meier生存曲线。数据来自两次独立的生物学重复实验。(A)n = 71, 80, 81, 88, 90。(B)n = 71, 85, 83, 88, 87。不同组间(A 和 B)的统计学 P 值见补充表2。(C,D)在抗霉素A诱导的线粒体应激条件下,野生型N2品系与RIC神经元消融品系的Kaplan-Meier生存曲线。数据来自两次独立的生物学重复实验。(C)n = 105, 78;log-rank检验,P = 0.000004,**** 表示 P < 0.0001。(D)n = 89, 73;log-rank检验,**** 表示 P < 0.0001。显著性通过log-rank检验比较生存分布进行评估。各技术重复间的详细统计学 P 值、平均生存时间及标准误(S.E.)见补充表2。请点击此处下载该文件。
补充图5:氧化应激条件下生存曲线的生物学重复。 (A,B)在不同浓度百草枯处理下,野生型N2品系的Kaplan-Meier生存曲线。数据来自两次独立的生物学重复实验。(A)n = 38, 63, 60, 31。(B)n = 55, 77, 86, 107。不同组间(A 和 B)的统计学 P 值见补充表2。(C,D)在5 mM百草枯诱导的氧化应激条件下,野生型N2品系与RIC神经元消融品系的Kaplan-Meier生存曲线。数据来自两次独立的生物学重复实验。(C)n = 87, 82;log-rank检验,P = 0.2629,n.s. 表示无显著差异。(D)n = 116, 118;log-rank检验,P = 0.1184,n.s. 表示无显著差异。显著性通过log-rank检验比较生存分布进行评估。详细统计学 P 值、平均生存时间及技术重复间的标准误(S.E.)见补充表2。 请点击此处下载该文件。
补充表 1:所有生存曲线中包含的线虫数量汇总。该表格总结了初始线虫数量,以及破裂、体内孵化和删失的线虫数量。请点击此处下载该文件。
补充表 2: 所有生存曲线的详细统计分析,包括 P 值、平均生存时间和标准误。请点击此处下载该文件。
补充文件 1:支持本研究结果的数据。
包含 RIC 神经元成功消融的验证结果,以及主图中所展示数据对应的所有生物学重复实验的结果。请点击此处下载该文件。
讨论
在此,我们描述了标准化的步骤 在热应激、内质网应激、线粒体应激和氧化应激条件下进行可重复的应激检测 C. elegans (图1)。我们考察了四种胁迫因子剂量递增对野生型蠕虫存活率的影响(图2)。我们还展示了一个利用神经元消融品系研究中间神经元在抵抗全部四种胁迫因子中的作用的示例图2).
为了成功实施本文所介绍的应激实验方案,在操作过程中需注意以下几个关键点。由于不同实验室之间在琼脂粉、培养基、环境温度和湿度等方面存在差异,建议根据本方案及结果部分所述的滴定方法和步骤,对每种应激条件或应激诱导化合物的浓度进行优化。理想的应激条件应在野生型对照线虫中产生可重复的中等程度存活反应,从而提供足够的动态范围,以检测到应激抗性升高或降低的变化。应避免使用导致几乎全部存活或几乎完全致死的条件。其次,必须确保所有生物学重复和技术重复中的线虫均处于相同的发育阶段。可通过第2.1–2.3节所述方法实现线虫的同步化,推荐采用晚期L4阶段的同步化。在C. elegans应激反应研究领域,从L4阶段开始进行应激实验是一种广泛采用的标准做法,已有大量研究使用同步化的L4期动物开展氧化应激42、热应激40,43以及其他类型的应激抗性实验35。从L4阶段开始可确保发育阶段的一致性,同时最大限度减少因成虫年龄和生殖状态差异(如产卵开始和胚胎滞留)所引入的变异,这些因素均可能影响应激抗性的测量结果12,37,38,40。由于本研究中所有实验组均经过同步化处理且操作一致,该方法为比较不同组间的应激抗性提供了可靠且合理的基础。最后,若线虫在实验开始前曾经历饥饿或应激处理,则其后代应在正常喂养且无应激的条件下恢复培养数代后,再作为产卵期成虫用于产生同步化子代,以进行后续的应激实验。
不同独立生物学重复实验之间可能出现的实验间变异性,可能源于平板制备与储存过程中的差异,包括含有应激诱导化合物的平板在 4 °C 下储存的时间长短,以及接种 OP50 细菌的时机。为了提高在不同日期进行实验时的可重复性,应按照第 1.1 节中所述的 NGM 平板制备方案、第 3.2.1 节中所述的衣霉素诱导内质网应激平板方案、第 3.3.1 节中所述的抗霉素 A 诱导线粒体应激平板方案,以及第 3.4.1 节中所述的百草枯诱导氧化应激平板方案,对关键的平板制备步骤进行标准化。具体而言,倾注后的琼脂平板应在室温下干燥约 24 小时,待琼脂完全凝固后再接种 OP50 细菌。接种 OP50 的 NGM 平板应在室温下再额外干燥 24 小时,然后置于 4 °C 储存。最佳干燥时间可能因使用带透气盖或非透气盖的平板以及当地环境条件(如温度和湿度)而异。因此,各实验室应根据自身条件优化此步骤,并在所有独立生物学重复实验中保持一致的干燥时间,以确保实验结果的可重复性。应激检测平板应在制备后一周内使用,以尽量减少应激诱导化合物的降解和细菌的过度生长,这两者均可能影响检测的一致性。
本方案还通过使用神经元消融品系,以四种应激源为例,展示了研究中间神经元在应激反应中作用的方法(图 2)。可利用在特定神经元中特异性表达的基因启动子驱动半胱天冬酶-3(caspase-3)的表达,从而消融目标神经元。本文中我们采用了 tbh-1 启动子,该启动子可在RIC神经元中特异性驱动基因表达,用于消融RIC神经元。tbh-1 启动子已被广泛验证可用于针对RIC神经元的遗传操作,常规用于细胞特异性表达、功能回补、钙成像以及神经元沉默实验45,49,50。与已有文献对 tbh-1 的表征一致,我们观察到 tbh-1p::GFP 的表达严格局限于RIC神经元,未在其他组织中检测到荧光信号(补充图 1)。我们未在RIC神经元消融品系中专门检测子代数量或生殖系形态;然而,并未观察到明显的生理缺陷。已有报道指出,tbh-1 报告基因在体性生殖腺鞘细胞(生殖系统中的体细胞)中存在额外表达51,52。尽管我们无法完全排除 tbh-1 在RIC神经元之外存在低水平表达的可能性,但我们认为非RIC细胞中的表达不太可能解释在RIC神经元消融动物中观察到的应激抗性增强现象。尽管该方法已被广泛应用49,50,但其局限性在于可能存在靶神经元以外细胞的非特异性表达。因此,还需采用其他方法进一步验证神经元的功能,例如监测神经元对各种应激源的活动反应,或评估该神经元释放的神经递质在应激实验中的作用。
秀丽隐杆线虫 生存实验是测量应激抗性的有力工具,因为其 线虫相对较短的寿命(约20至30天, 图2)以及多种胁迫因素引起的快速死亡,通常在数小时至数天内发生(图2)。然而,生存实验的一个局限性在于其采用二元的存活/死亡终点,因此无法捕捉在胁迫暴露过程中发生的渐进性生理功能衰退。互补性实验方法,如在多个时间点进行的抽搐实验或自动运动(速度)测量,可提供有关胁迫期间神经肌肉功能逐步丧失的额外信息。另一个局限性是,死亡的判定依据为对轻柔物理刺激无反应,这可能会低估运动能力严重受损动物的实际存活力。此外,人工评分会引入观察者依赖性的变异和潜在偏倚。为尽量减少这些影响,应在同一独立生物学重复中由同一名研究人员完成所有评分,且该研究人员应对基因型和实验条件设盲。保持一致的评分条件也至关重要,包括在每个时间点使用相同的显微镜放大倍数和照明设置,以减少不同培养板之间及不同实验之间的变异。在代表性结果中,我们展示了一个示例:与野生型蠕虫相比,RIC神经元消融品系在内质网和线粒体胁迫下表现出增强的抗胁迫能力,但在热胁迫和氧化胁迫下则无此表现。图2)。在四种胁迫条件下,仅有两种条件下存在生存差异,这本身并不能确立该神经元对特定通路的作用;本文的生物学结论旨在展示方法与观察结果,而非提出机制性主张。
除了此处描述的应激存活实验外,目前已开发出多种自动化平台用于测量C. elegans的存活情况。自动化评分可显著提高通量,实现连续或高频监测,并减少人工评分所带来的观察者依赖性偏差和劳动强度53,54,55。这些系统在大规模遗传学或化学筛选中具有显著优势。然而,大多数自动化方法通过运动停止来推断死亡,这可能导致将处于静息状态或在应激条件下运动能力严重受损的线虫误判为死亡,具体结果取决于成像算法和检测阈值。自动化检测还可能受到环境因素的影响,包括温度、冷凝、真菌或细菌污染以及培养条件的差异,这些因素均可能干扰线虫的识别并影响存活率的测量。相比之下,人工评分使实验者能够识别异常表型,例如体内孵化(bagging)、内部孵化或破裂的个体,这些情况可能需要特定的评分或删失标准。尽管人工评分更为耗时,且易受观察者间变异的影响,但通过盲法评分、标准化评分标准以及由同一研究人员进行一致的评分,可将这些局限性降至最低。因此,人工与自动化存活实验各有其独特的优缺点,方法的选择应根据实验目的、所需的通量以及应激模型的性质而定。
综上所述,本文所述方法为评估秀丽隐杆线虫(C. elegans)对多种环境应激因素(包括热应激、线粒体应激、内质网应激和氧化应激)的反应提供了标准化且可重复的实验框架。评估生物体对多种应激因素的抵抗能力至关重要,因为遗传或生理上的扰动可能增强其对某一类应激的耐受性,同时增加对其他类型应激的易感性,从而揭示应激特异性和共有的应激适应机制。这些检测方法能够对不同基因型和实验条件下的应激抗性进行定量比较,并可广泛用于研究基因、神经元及代谢通路在维持应激抵抗能力和生理稳态中的作用。更广泛而言,这些方法为鉴定在不利环境条件下促进生物体健康与存活的机制提供了强有力的实验平台。
披露
作者无任何利益冲突需披露。
致谢
本研究的资助来自堪萨斯州生物医学研究卓越网络(K-INBRE, P20 GM103418)、研究卓越中心(COBRE, P20 GM113109)以及堪萨斯州立大学约翰逊癌症研究中心(癌症研究扩展奖),以上经费由 S.H. 获得。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 衣霉素 | Sigma-Aldrich | T7765 | 内质网应激诱导剂 |
| 抗霉素A | Sigma-Aldrich | A8674 | 线粒体应激诱导剂 |
| 甲基紫精二氯化物水合物(百草枯) | Sigma-Aldrich | 856177 | 氧化应激诱导剂 |
| 棕榈酸 | MP Biomedicals, LLC | 100905 | 抑制 C. elegans 逃逸 行为 |
| 胆固醇 | MP Biomedicals, LLC | 101382 | 用于NGM |
| 氯化钙 | 赛默飞世尔科技公司 | C79-500 | 用于 NGM |
| 无水硫酸镁 | Mallinckrodt Pharmaceuticals plc | 6070 | 用于 NGM |
| 琼脂 | Apex Chemicals Co., Ltd | 20-273 | 用于 NGM |
| 蛋白胨 | Apex Chemicals Co., Ltd | 20-260 | 用于NGM |
| 磷酸二氢钾 | 赛默飞世尔科技公司 | P285-3 | 用于 NGM |
| 氯化钠 | Thermo Fisher Scientific Inc. | S640-3 | 用于 NGM |
| 磷酸氢二钾 | Allied Chemical,通用化学部门 | 2131号 | 用于NGM |
| 培养皿(35 mm) | Genesee Scientific, LLC | 32-103 | 应激检测平板 |
| 培养皿(60 mm) | Genesee Scientific, LLC | 32-105 | 维持 秀丽隐杆线虫 |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC 冷却振荡培养箱 | Eppendorf / 新不伦瑞克科学仪器公司 | C24KC | 37 °C 培养箱 |
| DigiTherm® 38升加热/冷却培养箱 | Tritech Research Inc. | DT2-MP-47L | 35 °C 培养箱 |
| Fisher Scientific Isotemp 低温培养箱 | Fisher Scientific | 146E | 30 °C 培养箱 |
| SHELab SRI20P 制冷培养箱 | Sheldon Manufacturing Inc. | SRI20P | 20 °C 培养箱 |
| Leica M165 FC 研究型体视显微镜 | 徕卡显微系统 | M165 FC | 用于成像的显微镜 |
| ACCU-SCOPE 3075-DIA 变倍体视显微镜 | ACCU-SCOPE 公司 | 3075-DIA | 用于处理和计分线虫的显微镜 |
| Microsoft Excel 2019 | 微软公司 | 原始数据绘图 | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | 数据可视化 | |
| OASIS 2 | POSTECH,PMID:27528229 | 统计分析 | |
| BioRender | Science Suite 公司 | 示意图 | |
| ImageJ | 美国国立卫生研究院(NIH) | 图像处理 | |
| Adobe Illustrator 2021 | Adobe 公司 | 图版组装 布局 | |
| 野生型 | 秀丽隐杆线虫遗传学中心,CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz;tbh-1p::cz::caspase-3(p17);tbh-1p::GFP;myo-3p::GFP | 自制 | RIC消融 | |
| nIs107 [tbh-1::GFP] III。zfIs10 [tdc-1::mCherry] IV。RIC 神经元同时标记有 GFP 和 mCherry | 秀丽隐杆线虫遗传学中心,CGC | OH16150 |
参考文献
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
重印与许可
本文已发表
视频即将推出