一种可定制的方法,用于将分泌型免疫蛋白递送至活体小鼠大脑,以实现对神经免疫相互作用的时间和空间特征进行表征。
本文内容
摘要
摘要
尽管分泌型免疫蛋白被 increasingly 认识到会影响神经系统功能,但在定义其在大脑复杂环境中的时空动态方面仍存在技术障碍。例如,小胶质细胞作为大脑中一类关键的免疫细胞,会释放多种因子,与众多不同的细胞靶点相互作用。小胶质细胞来源的蛋白质可向其他细胞类型传递信号 通过 诸如表面受体结合但不发生内化、被动膜转运、吞噬作用摄取或内吞作用介导的摄取等机制。本文介绍了一种局部递送小胶质细胞来源的分泌蛋白的方法 解析细胞相互作用的机制及其下游功能效应 体内我们介绍了如何制备用于递送的蛋白质样品,如何对目标脑区进行立体定位注射以递送蛋白质,以及为通过免疫组织化学方法可视化固定敏感性蛋白质而进行脑组织采集与制备的最佳实践。该方法为神经免疫通信的时空可控研究提供了灵活的框架,有助于深入探究免疫来源的蛋白质如何动态调控神经元及脑功能的机制。
引言
神经免疫通信,即神经系统与免疫系统之间的分子对话,直到最近才被确认为理解健康与疾病的关键。大脑曾被认为在很大程度上免受免疫系统活动的影响1,2,但现在已认识到其内部存在高度动态的免疫微环境,使神经系统能够在全身范围内发送和接收免疫信号3。这种强大且双向的交互作用通常由存在于大脑内或神经系统界面(如脉络丛、脑膜和血管周围间隙)的免疫活性细胞介导4。然而,在脑实质内部,免疫信号主要由小胶质细胞介导,这些细胞是寿命较长的组织驻留型巨噬细胞,在胚胎发育期间首次定植于大脑。尽管实验研究通常特别关注其吞噬功能,小胶质细胞还通过释放多种多样的免疫因子,与其局部微环境以及远距离的细胞进行相互作用5。
模拟感染、损伤和疾病等复杂多因素状况 体内尽管这种方法有助于全面理解神经系统在应激状态下的反应,但会引发一系列具有广泛且多样化后果的因素,这些因素错综复杂,难以厘清。此外,由于不同脑区之间的细胞具有高度异质性,确定单个因子的因果释放及其相关效应仍然具有挑战性。虽然慢病毒和腺相关病毒载体等工具可通过精确定位的感染实现特定因子的过表达,已在多种情境下用于研究神经元和星形胶质细胞等其他脑细胞分泌因子的作用,但迄今为止,小胶质细胞仍难以通过此类方法进行特异且稳健的调控。6因此,将小胶质细胞来源的信号分子递送至特定脑区的能力,为区分其在不同环境中的精确作用及后果提供了一种有效方法。
该方法的目标是将小胶质细胞来源的因子在时空特异性地递送至活体小鼠脑内,从而便于后续研究特定蛋白质或分子的功能影响。此外,这种颅内给药方法可适用于多种其他研究背景和科学问题,例如 通过 多种因素的联合给药,例如相互作用的免疫因子或抑制剂,或对特定时间范围内组织反应的考察。尽管本方案将重点描述用于免疫组织化学终点的组织采集与制备步骤,但该给药方法也可与其他多种脑组织检测终点相结合,例如采集目标脑区的新鲜冷冻组织穿刺样本,用于qPCR或蛋白质丰度分析。 通过 Western blot 或 ELISA,或对注射脑区的神经元活动进行电生理记录。
方案
所有涉及动物的操作均依照美国国立卫生研究院(National Institutes of Health)发布的《实验动物护理与使用指南》进行,并经研究机构动物护理与使用委员会(IACUC)批准的方案执行。本文所述所有操作均经杜克大学(Duke University)动物护理与使用委员会审查并批准。所用试剂和设备列于材料表中。
1. (可选)制备含有目标标记物的注射剂
- 购买、分离或制备目标免疫蛋白或分子的纯化形式(参见 讨论 有关蛋白质优化和验证建议的指导)。
- 如有需要,应根据蛋白质的化学结构确定最佳标记策略。例如,如果蛋白质的特定结构域或区域对其功能至关重要,则应避免在这些位点进行偶联。标记后应验证蛋白质功能是否正常。
注意:对于纯化蛋白,常见的化学标记方法包括根据制造商说明书将染料与巯基(通常位于半胱氨酸残基上,使用马来酰亚胺或碘乙酰胺类染料)或与氨基(通常位于赖氨酸残基上,使用N-羟基琥珀酰亚胺(NHS)酯或异硫氰酸酯类染料)进行偶联。也可从常规供应商处购买试剂盒进行偶联反应。- 确保去除任何未结合的染料,例如在使用前将蛋白质和染料通过适当大小的层析柱离心,以捕获蛋白质并使未结合的染料随流出液除去。
- 或者,可对目标蛋白进行遗传标记以用于检测,将其在目标细胞中表达,然后进行纯化。标记可直接与蛋白融合,或通过柔性连接子连接,常见的标记包括荧光蛋白(如 eGFP、tdTomato、mCherry)和自标记标签(如 HaloTag、SNAP-tag)。
- 分装蛋白质以避免可能造成损伤的冻融循环。为获得最佳效果,使用前应针对每次冻融循环次数验证蛋白质的正常功能。 体内. 储存于 -80 °C.
注意:在无需区分内源性和外源性蛋白的情况下(例如注射到基因敲除啮齿类动物模型中),未标记蛋白可能已足够。应通过实验优化实验条件。
2. 手术器械的准备
- 将以下手术器械放入一个可耐受高压灭菌的容器中,并放入蒸汽指示条:手术刀柄、镊子、小剪刀、止血钳、钻头(1.35 mm)以及仅用于尖端无菌技术的手术洞巾。对手术器械进行灭菌处理 通过 高压灭菌于 121 °C 在15–20 psi下持续30分钟。
- 所需额外材料:无菌棉签、聚维酮碘溶液、70% 乙醇、0.9% 生理盐水、异氟烷、玻璃拉制微量移液管、无菌手术刀片、脱毛膏、眼用润滑剂、组织粘合剂或外科缝线、加热垫、电子天平、配制好的药物及胰岛素注射器,以及手术记录本。
- 准备玻璃拉制微移液管时,选择外径约为1.0 mm、可插入注射装置,内径在0.5 mm至0.8 mm之间的玻璃毛细管。将其装入微电极拉制仪中,设置参数以拉制出细窄但坚固的锥形尖端(具体参数取决于所用仪器,需根据实际情况单独优化)。
注意:通常,较低的温度有助于避免产生过长且柔软的尖端,这种尖端在进入脑实质时可能发生弯曲;较低或中等的拉力有助于避免尖端开口过小,从而防止堵塞或注射阻力。使用解剖显微镜检查所有拉制后的移液器尖端,并使用精细镊子轻轻剪切尖端开口,使其内径开口约为 20 µm. 若使用倒角工具,角度应小于 35°. - 将灭菌器械、额外材料和需注射的蛋白质冰上携带至手术区域图1A)。将已灭菌的器械小心地拆包并放置于手术巾上,使所有器械的尖端均朝向指定的无菌区域中心(图1B,C)。使用止血钳将钻头置于无菌区域中央。将无菌手术刀片安装至刀柄上,并使刀片端保持在无菌区域内。
- 将加热垫预热至 37 °C 如果进行多个手术,打开珠子灭菌器。
- 使用细针将矿物油注入微量移液器尖端,确保玻璃移液管全长无气泡。将玻璃移液管装载到显微注射仪上,并小心排出将要加载的蛋白体积。根据已发表的推荐方案,加载目标蛋白至相应体积 关键词:矿物油,微量移液器,玻璃移液管,显微注射仪,蛋白加载,无气泡7 将样品注入进样器,然后将进样器移至一侧。
3. 立体定位手术操作
注意:所有手术均在通风良好的手术室中进行,所有人员均穿戴个人防护装备,包括手套、口罩、头套、鞋套和防护服。异氟烷气体暴露具有健康风险,因此需要配备废气清除系统(如活性炭罐),并在使用异氟烷前后对活性炭罐进行称重。确保所有设备(如麻醉蒸发器、通风系统和废气清除设备)在使用前均已通过适当认证并校准。
- 确保麻醉蒸发器中装有适量的异氟烷,并将氧气流速设置为1 L/min。将小鼠放入异氟烷麻醉舱前,记录其体重,麻醉舱的异氟烷输送浓度设定为3.5%–4%。记录手术开始时间。
- 监测动物呼吸频率是否降低,然后通过脚趾夹捏反射消失确认麻醉完全。一旦动物完全麻醉,将其转移至立体定位仪上预热的加热垫,并通过鼻罩以1 L/min的流速持续给予2%异氟烷。根据动物的呼吸频率,按需调整异氟烷流量。
- 在每只眼睛上轻轻涂抹足量的眼部润滑剂。术中持续监测润滑剂,确保其完全覆盖眼睛。根据需要重新涂抹。
- 使用无菌棉签将脱毛膏涂抹于头部顶部,并按摩至毛发中。随后用浸有0.9%生理盐水的棉签擦拭,以去除脱毛膏及头部毛发。重复涂抹脱毛膏并清除,直至头部顶部所有毛发完全去除。
注意:切勿将脱毛膏涂抹于已去除毛发的暴露皮肤,或使脱毛膏在毛发上揉搓超过约3分钟。长时间接触脱毛膏可能导致皮肤灼伤。 - 根据动物体重给予适当剂量的术前镇痛药。具体的镇痛药剂量、给药途径和给药时间需经动物护理与使用委员会(IACUC)审查和批准。本研究使用了4 mg/kg的美洛昔康 通过 手术开始时给予的皮下注射。
- 将动物头部牢固地固定在耳杆之间,尽量保持颅骨平坦且水平。轻轻下压动物头部,确认无任何移动。若头部出现下陷或移动,需重新固定耳杆直至完全稳定。
- 使用无菌棉签,将碘伏以由内向外的环形方式涂抹于头部,然后用70%乙醇重复相同操作。
- 重复使用聚维酮碘,然后再次使用70%乙醇2次,共使用3次。
注意:该区域现被视为无菌区域,仅允许使用无菌器械进入。 - 使用手术刀以流畅的动作从眼睛上方约1厘米处垂直切至两耳之间中点附近。用无菌棉签轻轻分离皮肤,暴露颅骨。确认可清晰观察到前囟(bregma)和后囟(lambda),随后将手术刀片小心放入指定的锐器废弃物容器中妥善处理。
- 使用齿状镊子将无菌钻头安装到钻机上。将钻机固定在立体定位仪机械臂上,并将其置于前囟中心正上方,轻轻接触颅骨。将立体定位仪的Z轴位置归零。
- 为确保头部位置正确而进行质量控制措施:
- 在前囟零点校准后,将钻头移至后囟,再次调整Z轴位置,使其刚好接触颅骨表面。记录后囟处的Z轴位置。
- 将钻头向上移回,然后在 Y 轴位置移动 -2.1 mm,此处应大致位于前囟与后囟的中点。再将 X 轴位置分别向两侧移动 -1.5 mm 和 +1.5 mm,再次记录钻头刚接触颅骨时两个位置的 Z 值。
- 确保记录的每个Z轴位置都 <0.2 mm。根据需要进行调整。
- 再次将坐标归零于前囟,然后将立体定位仪的机械臂移动至目标 (X,Y) 坐标。
注意:已发表的小鼠立体定位坐标图谱通常使用正常成年体重(约28 g)的参考小鼠。体型更大或更小的小鼠可能无法完全匹配这些参考坐标。建议在正式进行蛋白注射前,先使用染料进行预实验注射,以确认坐标准确性。为调整坐标,可考虑采用前囟-后囟校正比例法:以前囟到后囟的实际测量距离(mm)乘以参考图谱推荐的坐标值,再除以参考图谱中的前囟-后囟距离,作为初步校正的起点。 - 打开钻机,缓慢降低Z轴方向的机械臂,使其接触颅骨。小心地钻穿颅骨,确保不接触或损伤下方的脑组织。当钻孔到位后,脑组织表面将呈现出光滑且湿润的外观。
注意:间歇性钻孔和较低的钻速(1000 rpm)有助于减少因过度摩擦产生的热量,钻孔过程中或钻孔后应用无菌生理盐水可减少骨尘气溶胶化。使用个人防护装备(口罩、护目用具)对于避免实验人员受到风险至关重要。 - 根据需要,若进行多个注射位点操作,重复步骤 3.12。
- 从立体定位臂上取下钻孔装置。若需进行多台手术,使用无菌的带齿镊子将钻头从钻孔装置上取下,并放入干热灭菌器中。10秒后,将钻头从灭菌珠中取出,置于手术巾上的无菌区域内。
- 用无菌棉签蘸取0.9%生理盐水,湿润暴露的颅骨,并擦去钻孔过程中产生的任何粉尘。检查动物的眼部润滑剂,必要时补充涂抹。
4. 目标蛋白的注射及手术恢复
- 将装有样品的注射器固定到立体定位仪机械臂上。在前囟处重新归零,并调整至目标(X, Y)坐标。将注射器针头通过颅骨钻孔缓慢下降,直至刚好到达颅骨下方的脑表面。对Z轴平面进行归零。
- 非常缓慢地将注射器尖端插入至略低于目标 Z 坐标(约额外 -0.2 mm)的位置,然后将其回撤至正确的坐标位置。
- 缓慢注射目标蛋白,注射速率不得超过 500 nL/min。记录注射时间。
注意:应仔细考虑注射体积,以实现理想的定位靶向,同时避免组织损伤。应对每个目标区域进行经验性测试,以优化注射体积和给药速率(参见 讨论 如需更多详细信息。 - 注射结束后,为防止注入物回流,需将注射器在原位保留额外5–10分钟。
- 缓慢地将注射器在1–2分钟内从脑组织中撤出。
- 若进行多次注射,请重复步骤 4.1–4.5。
- 完成操作后,从立体定位仪上取下注射器。
- 使用无菌棉签蘸取生理盐水,润湿手术切口部位。将布比卡因或其他首选局部麻醉药局部涂抹于皮肤。
- 使用无菌镊子闭合切口部位,并使用组织粘合剂(或其他首选方法,如缝合线或皮肤缝合钉)封闭伤口。
注意:务必避免将组织粘合剂接触到动物的眼睛或除切口外的任何皮肤区域。可使用无菌移液器吸头和移液器,以比制造商提供的施用工具更精确的方式涂抹组织粘合剂。 - 松开耳杆和鼻锥,将动物放入已预热的清洁笼具中恢复。记录动物脱离异氟烷麻醉的时间。
- 监测动物并记录首次观察到动物站立的时间。当动物完全恢复行走能力且持续至少30分钟时,将其放回清洁的饲养笼中,并提供补充护理,如水凝胶和复水磨碎饲料。
注意:除非在动物恢复后24小时内立即采集组织,否则应在术后第一周内每天称重并监测一次,以评估是否存在任何不良反应、伤口是否正常愈合,并确认动物恢复健康。术后镇痛药物应根据经IACUC审查并批准的方案给予;本实验中在术后前3天每天皮下注射4 mg/kg美洛昔康。所有观察结果均应记录在日志本中。若观察到动物出现疾病行为,例如活动减少、体重减轻 >体重减轻达到术前体重的15%,或出现其他健康状况不良的迹象时,应联系兽医进行会诊,或对动物实施人道安乐死并将其移出研究。
5. 免疫组织化学实验步骤的组织制备
- 准备以下材料:1× PBS、镊子、小剪刀、30 mL 注射器或灌注泵、26 号蝶形针头、两个 15 mL 圆锥形离心管、PBS 中的 4% 多聚甲醛(PFA)、三个小称量舟(用于清洗组织上的 PFA) PBS 中的 30% 蔗糖
注意:PFA 具有致癌性,会释放有毒蒸气,需特殊操作和处理。所有 PFA 的配制、使用和处置均应在化学通风橱或生物安全柜中进行。所有 PFA 废物,包括液体废物以及任何接触过 PFA 的固体材料(如移液器吸头、离心管、称量皿等),均应按照实验所在机构的规定放入危险废物容器中。 - 遵循机构规定的安乐死操作指南。确认动物死亡后,将其移至托盘或容器上方,使用镊子和剪刀打开动物腹腔,暴露心脏。
- 使用泵或30 mL注射器,以冷的1×PBS对动物进行心脏灌注。
注意:处死与灌注之间的时间应尽可能短,以避免凝血;若从多只小鼠收集组织,应逐只进行操作。 - 将整个脑组织从颅骨中取出,转移至含有4% PFA溶液的15 mL锥形管中,固定时间不超过2 h。记录每个脑组织放入PFA溶液的时间,以确保组织不会过度固定。
注意:针对特定靶标的组织固定条件应通过实验进行优化。例如,C1q 与神经元核糖核蛋白复合物的相互作用对过度固定敏感。8. 请参阅 讨论 有关选择合适固定方法的更多细节,请参见。 - 在组织固定适当时间后,用 PBS 清洗三次,以去除组织中残留的 PFA。
- 将脑组织转移至含有 PBS 溶液中 30% 蔗糖的 15 mL 锥形管中,并于 4 °C 直到脑组织沉入底部,平均需要1–3天。
- 为了包埋固定好的脑组织,需准备以下材料:PBS中的30%蔗糖溶液、冷冻包埋介质、适当尺寸的一次性冷冻模具(如22 mm × 22 mm)、剃须刀片、镊子、血清移液管及吸头。
- 将冷冻包埋介质与30%蔗糖溶液按1:1比例混合,制备包埋液。若使用22 mm × 22 mm的模具,每个模具约需5 mL包埋液。充分涡旋振荡,以均匀混合不同黏度的溶液。
- 对于矢状脑切片,使用剃刀刀片沿中线切开脑组织(图2A)。用样本信息标记每个组织模具,包括半球侧。可根据需要将半球侧分别置于单独的模具中,或共同包埋于同一模具内,包埋时使中线朝向模具底部(图2B).
- 加入适量包埋液以完全包裹并浸没脑组织。将装有组织的模具在室温下静置1小时。
注意:包埋液在涡旋振荡后仍存在较多气泡是正常的。1小时的孵育时间足以使气泡充分消散。 - 收集干冰,并将一块平坦的金属架或金属板放在干冰上,以形成用于冷冻的平整表面。
- 轻轻地将每个注满的模具平放在干冰上。移动模具后、冷冻开始前,使用镊子检查以确保脑组织仍处于正确位置。一旦包埋液完全变为不透明,即表示已完全冻结,此时可将包埋的组织转移至 -80 °C 直至准备进行免疫组织化学检测图2C).
- 使用冷冻切片机(舱内温度:-20 至 -25 °C,头部温度:-15 至 -18 °C) 以收集 15–40 µm 将矢状切片置于带电荷的载玻片上,确保切片之间留有足够间距,以便使用记号笔绘制隔离圈。每张载玻片上可均匀放置三个矢状切片。
注意:若要观察敏感蛋白或敏感性未知的蛋白,仅收集免疫组织化学实验所需的切片,并于同日完成实验。包埋的组织可保存后重新在 -80°C 用于后续实验。或者,载有切片组织的载玻片可存放于 -80°C.
6. 对注射蛋白进行免疫组织化学染色
- 准备免疫组织化学所需材料:1x TBS、疏水笔(pap pen)、皂苷(saponin)、牛血清白蛋白(BSA)、目标一抗、二抗、基于苏丹黑B的自发荧光淬灭剂、70%乙醇、含DAPI的封片剂、盖玻片、指甲油。
注意:市售的自发荧光淬灭溶液通常含有二甲基甲酰胺(DMF),需谨慎使用和处理。操作时必须佩戴手套,并根据所在机构的规定,将使用过的溶液收集至有机废液容器中。 - 使用移液管向载玻片上的组织切片加入1x TBS,室温洗涤10分钟。
- 吸除1x TBS洗涤液,然后使用疏水笔在每份组织切片周围画出疏水屏障。
注意:在首次1x TBS洗涤后进行此步骤,有助于去除可能粘附在载玻片上的包埋剂残留,从而提高屏障效果。在画屏障前,使用擦拭纸小心去除多余液体。但需注意避免再水化的组织干燥。 - 重复1x TBS室温洗涤10分钟,共洗涤3次。
- 配制通透缓冲液:将0.1%皂苷加入1x TBS中。现配现用,或在2周内使用完毕。每张切片加入约100 µL,室温孵育10分钟。
- 配制封闭缓冲液:在1x TBS中加入0.1%皂苷和1% BSA。该封闭缓冲液也将用于稀释一抗和二抗,因此应多配制一些,并于4 °C保存,2周内使用完毕。吸除通透缓冲液后,每张切片加入约100 µL封闭缓冲液,室温孵育1小时。
- 配制一抗溶液:将一抗加入封闭缓冲液中。建议起始浓度为1:500,后续可根据实验结果调整。吸除封闭缓冲液后,每张切片加入约100 µL一抗溶液。
注意:为增强目标蛋白的内源性荧光信号,可使用针对标签的一抗(如抗GFP抗体)进行信号放大。 - 将载玻片置于一抗溶液中,4 °C孵育过夜。
注意:为防止过夜孵育过程中溶液蒸发,应确保每张切片上有足量的一抗溶液,并在载玻片存放区域增加湿度。 - 用1x TBS在室温下洗涤三次,每次10分钟,以去除未结合的一抗。
- 配制二抗溶液:将二抗加入封闭缓冲液中。建议起始浓度为1:200,可根据需要调整。每张组织切片加入约100 µL溶液,室温避光孵育1小时。
注意:此步骤中载玻片应始终避光处理。 - 用1x TBS在室温下洗涤10分钟,去除二抗溶液。
- 根据制造商说明书新鲜配制自发荧光淬灭溶液。通过将20x淬灭液稀释至70%分子生物学级乙醇中,制备1x工作液。
- 逐张载玻片操作:吸除1x TBS,加入1x淬灭溶液。轻轻旋转载玻片20–30秒,使溶液充分覆盖组织切片区域。
- 将淬灭液倒入废液容器中,然后使用移液管向每张切片加入TBS,倒掉TBS至废液容器,并快速重复TBS洗涤,直至流出的TBS澄清(通常2–3次即可)。
- 向切片上加入1x TBS,防止其在处理下一张载玻片前干燥,再依次对每张载玻片重复淬灭步骤。
- 逐张载玻片操作:彻底吸除TBS,然后每张组织切片至少滴加一滴含DAPI的封片剂。盖上盖玻片,并用指甲油密封盖玻片边缘,防止封片剂蒸发或盖玻片移动。对所有载玻片重复此操作。
- 若不立即成像,将载玻片于-20 °C长期保存。
结果
C1q 是一种在体内广泛高表达的大型(约 450 kD)蛋白质,在先天免疫系统中具有明确的功能,是经典补体通路的关键成员。然而,C1q 在大脑中的功能作用仍在研究之中。大脑中的 C1q 主要由小胶质细胞——即大脑的常驻免疫细胞——合成并释放9。已有大量研究反复证实,C1q 在正常脑发育、学习与记忆过程中的突触清除,以及在疾病状态下的作用10,11,12,13,14。此外,在啮齿类动物和非人灵长类动物中均观察到,随着大脑老化,C1q 会在神经元结构内部或紧邻区域发生积聚9,15,16。本实验室关注 C1q 在脑老化过程中积聚所导致的功能性后果。本研究发现,C1q 在成年及衰老的啮齿类动物脑中可与神经元内的蛋白质(包括 RNA 结合蛋白)发生相互作用8。由于已有研究显示 T 细胞能够内吞来自其他细胞类型的 C1q17,我们进而探究了神经元是否也能在体内内吞外源性 C1q in vivo。
本研究首先对3月龄雄性小鼠进行单侧脑室内(ICV)注射,每只注射2 µL C1q蛋白。由于C1q在野生型成年小鼠脑中存在表达,我们采用了两种策略:第一,将C1q蛋白注射至C1q -/-(敲除型)小鼠体内;第二,通过594-马来酰亚胺偶联对C1q进行荧光标记,以便在C1q +/+(野生型)动物中区分内源性与外源性C1q蛋白。蛋白注射浓度为1 mg/mL,溶解于含10 mM HEPES、300 mM NaCl、pH 7.2的缓冲溶液中。左侧脑室注射所用的立体定位坐标如下:X = +1.0 mm,Y = -0.4 mm,Z = -2.5 mm,注射速率为500 nL/min。为减少回流,注射结束后玻璃拉针在原位保留5分钟后再行拔出。注射后1小时采集组织,并制备矢状切片用于免疫组织化学分析。成功的注射应使荧光信号局限于立体定位靶向区域。
首先,在 C1q -/- 小鼠中,我们对左侧(图 3A)和右侧(图 3B)半脑进行完整的免疫组织化学染色(步骤 6.1–6.17)后,成像了 30 µm 厚的矢状切片。使用抗 NeuN 抗体标记神经元胞体(青色),并使用抗 C1q 抗体(红色)标记 1 小时前注射至左侧脑室的未标记 C1q。在左侧半脑的脑室周围实质中可观察到大量 C1q,且海马 CA3 区神经元胞体与 C1q 之间存在高度共定位(图 3A),这与我们在内源性表达 C1q 的野生型小鼠中观察到的结果相似。如预期,在注射后 1 小时,对侧半脑的脑室周围(或实质任何区域)均未观察到注射的 C1q(图 3B)。接下来,我们对经脑室内注射 C1q-594 的 C1q +/+ 野生型(C57BL/6J)小鼠脑组织进行了成像。结果证实,在仅进行自发荧光淬灭并用含 DAPI(蓝色)的封片剂封片(步骤 6.12–6.17)后,可在 30 µm 厚的矢状切片中观察到 C1q-594(品红色)。在左侧(注射侧)半脑中,荧光标记的注射 C1q(品红色)呈现出相同的脑室周围分布模式(图 3C)。
为了确认神经元的共定位,在两只2月龄的C1q -/- 雄性小鼠中进行了二次实验。在其中一个半脑,小鼠接受了脑室内注射 2 µL C1q-594 的注射,而在另一侧半脑,小鼠接受了 2 µL 热灭活(HI)C1q-594。热灭活在594-马来酰亚胺偶联后进行,将一半制备好的蛋白质置于设定为 56 °C 30分钟。先前的研究表明,热灭活会改变天然C1q蛋白的结构并破坏其激活功能。18正常、天然的 C1q,浓度为 200 µg/mL 在悬浮缓冲液(50 mM HEPES,150 mM NaCl,pH 7.5)中可溶于溶液,在明场显微镜下不形成任何可见聚集体(图4A)。相比之下,当相同的蛋白质样品被加热后,在明场下可观察到明显的聚集体图4B),提示蛋白质构象发生变化。接下来,确定了注射 HI-C1q 是否 体内 会改变神经元对C1q的摄取。注射后1小时采集脑组织,每个半脑均按照上述方案进行相同处理。在 20 µm 矢状切面,通过免疫组织化学染色鉴定神经元。使用相同设置在海马CA3区采集40倍图像,以显示NeuN+神经元(青色)和C1q-594(红色)图 5A,B)。在注射了正常C1q-594的半脑中,观察到强烈的C1q标记信号(图 5A),而在注射 HI-C1q-594 的半球中,CA3 区未观察到 C1q-594,但可观察到荧光蛋白在脑室边缘聚集图4C),这与C1q蛋白在神经元摄取中的正常功能改变一致。由不知分组情况的实验人员在8个40倍视野下对NeuN+细胞进行手动定量,结果显示CA3区神经元密度在两侧半球间无显著差异。图 5D),但注射了HI-C1q-594的半脑中C1q阳性神经元的比例显著降低图5C)通过双尾 t检验 (p = 0.026,n = 2只动物,每只动物每侧半球分析2张图像。
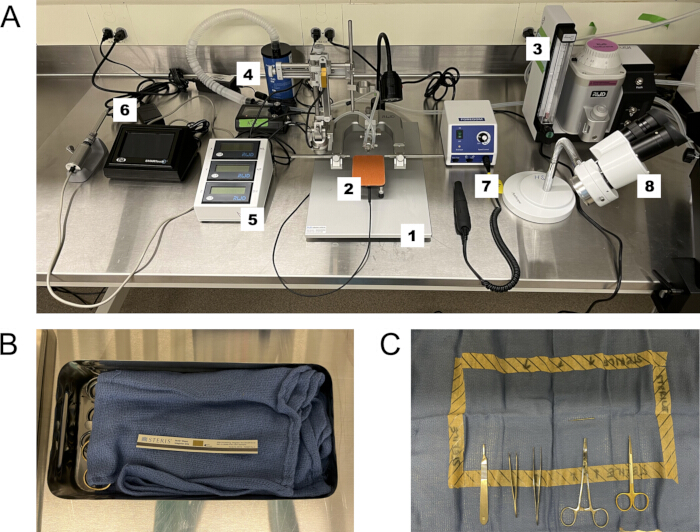
图1:手术设备及无菌术野准备。(A)手术器械:1. 立体定位仪,2. 实验动物加热垫,3. 异氟烷挥发罐,4. 异氟烷废气吸收罐,5. 数字化立体定位臂,6. 微量注射器,7. 钻孔机,8. 体视显微镜。(B)高压灭菌器械及铺有蒸汽指示条的无菌手术巾,用于确认灭菌效果。(C)将高压灭菌后的器械小心地“尖端朝内”放置于灭菌手术巾上划定的无菌区域内。器械手柄应保持在无菌区域外,器械尖端仅可在使用聚维酮碘和70%乙醇消毒后接触动物。请点击此处查看该图的放大版本。
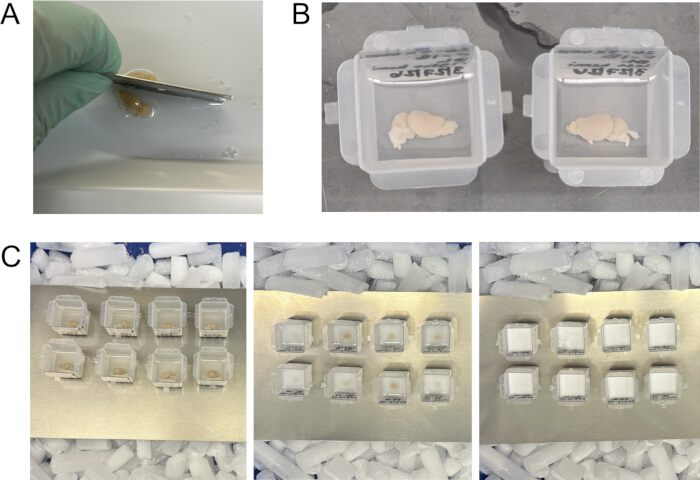
图 2: 用于矢状切片的脑组织处理与冷冻。(A)使用剃刀刀片沿中线切开脑组织,然后将每个半脑的中线侧朝下放入冷冻模具中。(B)向模具中加入冷冻包埋介质与含30%蔗糖的PBS溶液按1:1比例混合的混合液。(C)将装有脑组织的模具置于干冰上进行冷冻(左图),完全冻结后组织将变为不透明(右图)。请点击此处查看该图的放大版本。
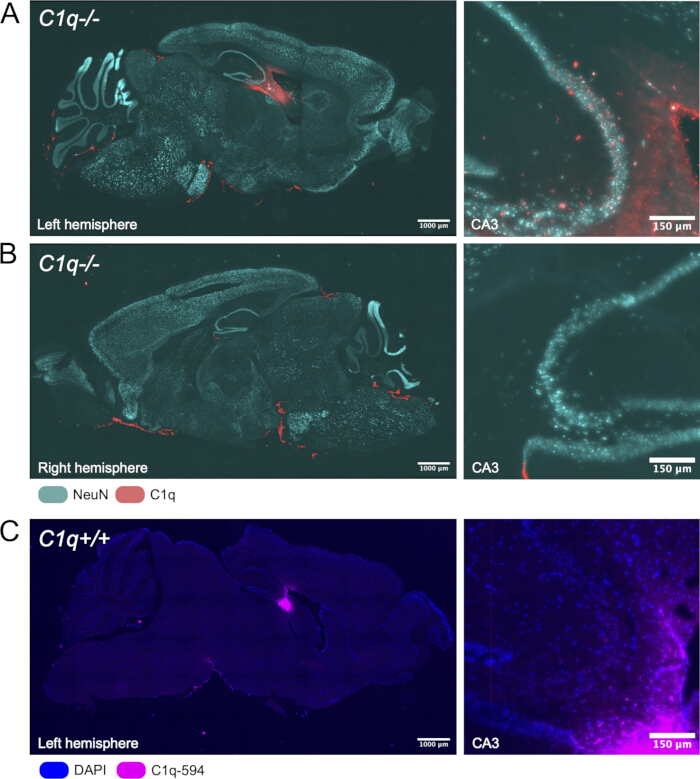
图3:脑室内注射C1q蛋白后1小时的代表性结果。(A)注射侧半脑中注射的C1q蛋白(红色)与NeuN阳性神经元胞体(青色)的矢状切面,以及邻近脑室的海马CA3区局部放大图。(B)同一动物对侧半脑的矢状切面,显示注射的C1q蛋白(红色)与NeuN阳性神经元胞体(青色),以及CA3区局部放大图。(C)野生型动物经脑室内注射经594-马来酰亚胺偶联荧光标记的C1q蛋白(品红色),未经免疫组织化学放大,但用DAPI(蓝色)封片,以及CA3区局部放大图。左侧图像比例尺 = 1000 µm,右侧图像比例尺 = 150 µm。 请点击此处查看该图的放大版本。
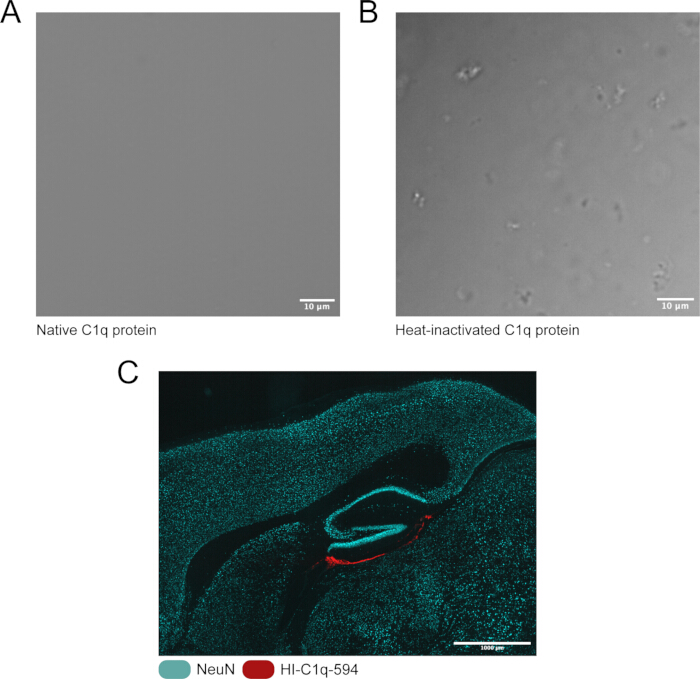
图4:C1q蛋白的热灭活。(A)天然C1q蛋白,以缓冲液(50 mM HEPES,150 mM NaCl,pH 7.5)配制至200 μg/mL,通过明场显微镜成像。(B)同一来源的C1q蛋白,以相同缓冲液和相同浓度配制,但在成像前于56 °C加热处理30分钟,再进行明场显微镜观察。(C)脑室内注射1小时后,热灭活(HI)-C1q-594(红色)与NeuN+细胞(青色)在矢状切片中的定位。顶部标尺 = 10 µm,底部标尺 = 1000 µm。 请点击此处查看该图的高清版本。
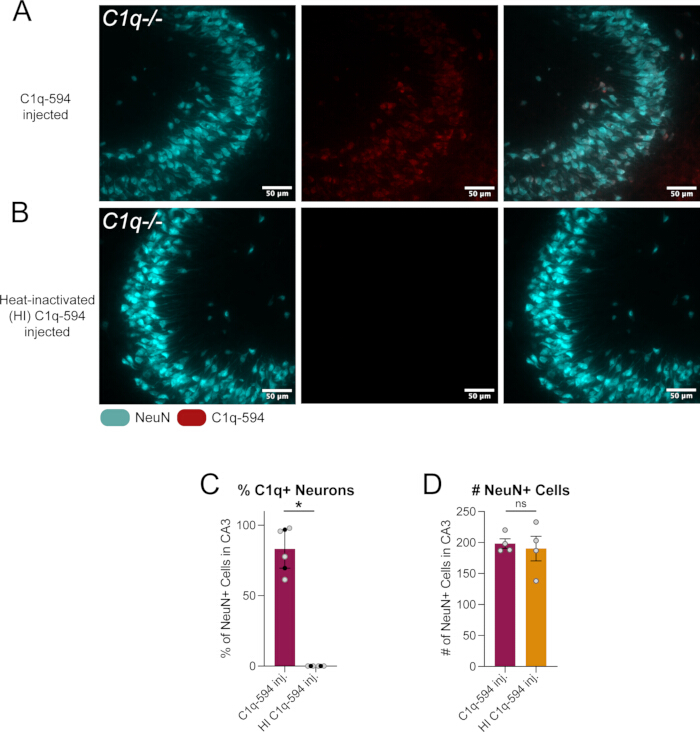
图5:海马区神经元对正常C1q蛋白与热灭活C1q蛋白摄取的定量分析。 (A)在脑室旁的海马CA3区矢状切面,其中1小时前注射了C1q-594。NeuN阳性神经元胞体(青色),C1q-594(红色),以及两者的叠加图像。(B)在脑室旁的海马CA3区矢状切面,其中1小时前注射了热灭活(HI)-C1q-594。NeuN阳性神经元胞体(青色),C1q-594(红色),以及两者的叠加图像。(C)在40倍视野下NeuN阳性细胞中C1q-594阳性细胞所占百分比的定量分析,双尾t检验。(D)在40倍视野下NeuN阳性细胞数量的定量分析,双尾t检验。比例尺 = 50 µm。 请点击此处查看该图的放大版本。
| 蛋白质标记 | 抗体 | |
| 可视化 | 直接检测,不依赖抗体 | 可能与其他蛋白质发生交叉反应,依赖抗原的可及性 |
| 准备 | 准备时间较长,技术要求较高,需对目标蛋白进行标记验证,因为标记可能改变蛋白质结构和功能;反应产率可能较低,需要大量输入蛋白 | 无需自行准备,许多抗体已商品化且经过验证 |
| 实验灵活性 | 可根据需要实现活细胞示踪 | 需要固定样本 |
| 灵敏度 | 由于化学计量比限制,灵敏度较低 | 可实现信号放大 |
表1: 蛋白质标记的优缺点 与抗体检测
讨论
越来越多的证据表明,小胶质细胞通过分泌一系列日益复杂的因子,在中枢神经系统稳态中发挥关键作用5。以精确的时空方式递送小胶质细胞来源因子的能力,为解析在多种环境和遗传条件下复杂的神经免疫通讯提供了有力工具。
该方法可轻松适用于回答多种生物学问题。尽管此前该方法被用于更好地理解补体C1q(一种分子量很大的蛋白质)在神经元功能中的作用8它也可用于研究其他大分子蛋白质以及细胞因子和趋化因子等小分子蛋白质的作用。尽管细胞因子和趋化因子的免疫功能已相对明确, 体内 这些因子通常在应激刺激下被广泛地共同释放。此外,不同免疫因子在非免疫性或非经典通路中所发挥的、常与稳态调节相关的生理功能也日益明确。采用本方法可实现对特定因子的独立研究,也可针对特定脑区,甚至探究这些因子在维持机体稳态中的作用。该实验方案的另一项有益应用是在转基因小鼠品系中递送目标蛋白,例如基因敲除小鼠或特定疾病模型小鼠。在不表达该蛋白的内源性蛋白的小鼠中,精确控制目标蛋白的定位与剂量,可用于判断该蛋白的急性、局部给药是否诱导某种效应,例如行为学改变。此外,也可将蛋白注射至某种特定受体或信号通路蛋白缺失的转基因小鼠品系中,而该受体或蛋白被假定为注射因子功能发挥所必需。
此外,小胶质细胞来源因子的颅内给药可与其他因子注射联合进行,以更深入地理解特定蛋白的功能机制。例如,为了探究小胶质细胞来源蛋白C1q如何进入神经元并与其翻译机制相互作用,我们此前采用该技术,在注射C1q前30分钟共同给予内吞作用抑制剂。这使我们得以确定C1q能够进入神经元 通过 内吞作用,因为与抑制剂共同应用导致神经元内C1q显著减少8可采用阻断抗体或其他假设的竞争性结合因子进行类似的实验。这些联合给药实验还可通过延长或缩短注射间隔进行时间上的调控,例如,一种因子在另一种之前30分钟注射,或分别在另一种之前5分钟与1小时注射。
使用该方法设计实验时,应考虑多个因素,首先是从策略上确定目标蛋白的检测方法。本文展示了两种具有代表性的方法:对目标蛋白进行直接荧光标记(图3C)以及使用抗体进行免疫组织化学检测(图3A),每种方法各有其优缺点(表1)。基于抗体的检测方法灵敏度高,并可实现信号放大,但需要对组织进行固定,因此不适用于活体成像等研究蛋白动态变化的应用场景。直接荧光标记可避免这一限制,但需要对蛋白本身进行修饰,这可能影响其性质,因此必须进行充分验证。无论采用哪种方法,严谨的验证都至关重要。商业化的抗体广泛可得,但可能存在脱靶结合或交叉反应,因此特异性验证极为关键。在可行的情况下,应使用适当的对照实验来确认抗体性能,例如比较野生型组织与蛋白敲除组织中的染色结果,后者仍是抗体验证的金标准。
相比之下,直接荧光标记在实验使用前需要进行制备和验证。尽管该方法能够不依赖抗体而直接可视化目标蛋白,但必须确认荧光标签不会改变蛋白的结构、定位、相互作用或功能。适当的验证依赖于具体蛋白,可能包括通过Western blot确认预期的分子量、验证细胞内或亚细胞定位是否正常,或通过共免疫沉淀等实验检测已知蛋白-蛋白相互作用是否得以保留。最终,基于抗体的检测和直接蛋白标记各有其优势与局限性,最合适的方法应通过针对目标蛋白并结合已发表建议的预实验研究来确定19。
为了确保该方法的可靠性,实验人员需预先通过实验优化并验证所选用的立体定位坐标和注射蛋白浓度。可通过注射示踪染料(如快绿)进行预实验,注射后立即收集脑组织,以直观确认染料是否定位于目标区域,并据此调整坐标,以实现最精确的注射。作者建议参考已发表的研究来确定目标区域的准确立体定位坐标,或根据眶前点-人字缝比率计算适用于大鼠或小鼠的坐标,具体方法如文中所述。 实验方案.
为了对所注射的蛋白质得出实验结论,应在设计良好的实验中考虑并包含若干关键对照。研究小胶质细胞来源的蛋白质存在固有的挑战 通过 颅内给药。如果研究者关注某种特定蛋白在特定脑区的反应,手术本身可能引发炎症反应,从而干扰实验结果。在研究免疫相关蛋白时,最简单的对照方法是设置手术对照,包括假手术对照(执行所有操作步骤,但不注射蛋白)或溶剂对照(执行所有步骤,但注射等体积的蛋白缓冲液而非蛋白本身)。这些对照有助于区分实验效应是由手术或组织损伤引起,还是由蛋白本身所致。更确切的做法是增设一个对照组,注射相同体积和浓度的无活性或无关蛋白。在选择对照蛋白时,需考虑其与实验蛋白的相对分子大小;例如,C1q 是一种非常大的蛋白(约 450 kD),因此使用牛血清白蛋白(约 66 kD)这类常见对照蛋白可能并不合适。因此,本研究采用热灭活的 C1q 作为无活性蛋白对照。根据注射蛋白在样本采集前目标时间窗内的扩散范围,可将上述对照之一设置于对侧半脑,作为同一受试对象内的对照,如图所示。 代表性结果 (图4 和 图5).
在实验设计中,组织固定策略是一个重要的考虑因素,因为固定剂的类型和固定时间会显著影响蛋白质的可视化、组织形态,甚至在某些情况下影响蛋白质功能。交联型固定剂(如多聚甲醛,PFA)通常能更好地保存组织结构,但可能因过度的蛋白质交联而降低对固定敏感表位的检测,增加自发荧光,并需要进行抗原修复。相比之下,非交联型固定剂(如基于乙醇、丙酮或甲醇的溶液)通常更有利于保存对固定敏感的蛋白质,但可能损害组织完整性。这些权衡可通过优化固定时间和方法来缓解,例如使用新鲜冷冻切片进行原位固定、生理盐水灌注后短暂浸入PFA,或标准的灌注固定,具体方法应根据实验目标而定。由于没有一种固定策略适用于所有应用场景,研究者应根据主要实验终点选择并实证优化固定条件,以在组织保存与蛋白质检测之间达到最佳平衡。
本方案的目的是标准化蛋白质递送,而非规定实验结果的量化方法;然而,根据研究目标的不同,可采用多种方法。在本示例中,通过针对细胞标志物(例如,NeuN用于神经元)的免疫标记,并量化目标蛋白的共定位,来评估特定细胞类型的蛋白质摄取情况图5),尽管荧光报告小鼠品系可作为识别特定细胞群体的替代方法。另一个重要结果是蛋白质的扩散,其扩散程度受注射蛋白生化特性的影响显著。当需要精确表征蛋白质扩散范围时,我们建议共同注射一种惰性荧光示踪剂(如已知分子量的葡聚糖),以评估颅内递送后在特定时间点的注射分布及组织扩散情况。作者此前已开展此类实验,用于确定实验参数 代表性结果 部分8.
最后,在故障排除过程中,可能需要优化蛋白质检测和颅内递送条件。一个常见的挑战是获得目标蛋白质的可靠荧光信号。如上所述,固定策略是决定信号质量的关键因素。如果出现高背景自发荧光同时目标荧光信号较弱的情况,建议首先缩短组织固定的持续时间或降低固定强度,因为过度固定较为常见,可能导致自发荧光增强和目标信号减弱。本方案中包含了一种自发荧光淬灭溶液,可改善目标荧光的信噪比。若操作正确,注射过程应造成最小的组织损伤。在注射针进入部位不应出现空化或病灶形成。若出现上述情况,则可能需要优化玻璃拉制移液管的制备,以确保组织穿透干净利落。例如,确认移液管尖端具有足够的刚性,在接触脑实质时不发生弯曲,并根据需要调整斜面以形成锋利边缘,便于顺利进入。对于深部脑区的注射,可能还需要增加拉制移液管的长度,以便在不使注射装置接触脑表面的情况下到达目标区域。当将注射液直接注入脑实质而非脑室时,建议使用较小的注射体积(<1 µL),以最大限度减少水肿、防止注射部位发生空化,并减少移液管撤出过程中的回流。还建议缓慢注射(<500 nL/min),并在注射完成后等待5–10分钟再撤出移液管,以使注射液充分扩散至周围组织。若在撤出移液管过程中观察到液体沿注射轨迹回流,或在免疫组织化学处理后在注射通路上检测到液体扩散痕迹,则应减少注射体积和/或降低注射速率,并延长注射后的等待时间。
披露
作者声明无利益冲突。
致谢
本研究得到了国家阿尔茨海默病协调中心(NACC;NSH)、阿尔茨海默病协会(NSH)以及杜克大学脑科学研究所(DIBS)Germinator 奖项(JD)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.9% 生理盐水(药用级) | Cytiva | Z1376 | |
| 30 mL 注射器 | Becton, Dickinson and Company (BD) | 302832 | |
| 70% 乙醇 | Koptec | UN1170 | |
| Alexa Fluo 594 C5 Maleimide | Invitrogen | A10256 | |
| 麻醉蒸发器 | RWD | TAIJI-IE | |
| 珠式灭菌器 | VWR | 75999-324 | |
| BSA | Genessee Scientific | 25-529 | |
| 蝶形针 - Vacutainer Safety-Lok | Becton, Dickinson and Company (BD) | 367281 | |
| 盖玻片 - 50 mm No. 1 | Avantor (VWR) | 48393-081 | |
| 数字啮齿类立体定位仪 | RWD | 68803 | |
| 一次性冷冻模具 | Electron Microscopy Sciences | 70182 | 22 mm x 22 mm,用于成年小鼠脑矢状切片 |
| 解剖显微镜 | Leica | MZ FLIII | |
| 包埋介质 - Tissue-Tek OCT | Sakura | 4583 | |
| 眼用润滑剂 | Optixcare | OPX-4242 | |
| 玻璃毛细管拉制仪 | Sutter Instrument Co. | Model P-30 | 我们使用 1.14 mm、3.5" 规格的毛细管作为注射器 |
| 玻璃毛细管 | World Precision Instruments | 504949 | |
| 山羊抗兔 AF594 二抗 | Invitrogen | A-11012 | |
| 山羊抗大鼠 AF488 二抗 | Invitrogen | A-11006 | |
| 脱毛膏 | Nair | 42016527 | |
| 加热台 - Rodent Warmer X1 | Stoelting | 53800M | |
| 高速旋转微型马达(钻机)及钻头 | Stoelting | 51449 | |
| 异氟烷 | Dechra | Isospire | |
| 微量注射器及控制器 | WPI | NANOLITER2020 | |
| 显微镜载玻片 | Premiere | 8348 | |
| 轻质矿物油 | Fisher Scientific Education | S25439 | |
| 含 DAPI 的封片剂 | Sigma-Aldrich | F6057 | |
| 指甲油 | Electron Microscopy Sciences | 72180 | |
| 天然小鼠补体 C1q 蛋白 | Creative Biolabs | CTP-463 | 其他厂商的产品可能含有抑制脑内 C1q 正常动态的分子污染物 |
| 疏水笔 - ImmEdge Pen | Vector Laboratories | H-4000 | |
| 多聚甲醛 - 16% | Electron Microscopy Sciences | 15710 | 稀释至 4% |
| 磷酸盐缓冲液(PBS) | Sigma-Aldrich | P3813 | |
| 聚维酮碘溶液,10% (w/v) | Ricca | 3955-16 | |
| 兔抗 C1q 一抗 | Abcam | ab182451 | |
| 大鼠抗 NeuN (RBFOX3) 一抗 | Biolegend | 608451 | |
| 皂苷 | Sigma-Aldrich | 47036 | |
| 手术刀片 - No. 10 | VWR | 76457-442 | |
| 蒸汽指示条 | Steris | 801010 | |
| Puritan 无菌棉签 | Puritan | 25-806 1WC | |
| 蔗糖 | Sigma-Aldrich | 84097 | |
| 手术巾 | McKesson | 16-6006-B | |
| 组织粘合剂 - Vetbond | 3M | 1469SB | |
| Tris 缓冲盐水 | Sigma-Aldrich | T5941, S7653 | |
| TrueBlack | BIOTIUM | 23007 |
参考文献
- Medawar PB. Immunity to homologous grafted skin; the fate of skin homografts transplanted to the brain, to subcutaneous tissue, and to the anterior chamber of the eye. Br J Exp Pathol. 1948;29(1):58-69.
- Medawar PB. Immunological tolerance. Nature. 1961;189:14-17.
- Guo X, et al. Neuro-immune crosstalk: molecular mechanisms, biological functions, diseases, and therapeutic targets. MedComm (2020). 2026;7(2):e70497.
- Castellani G, Croese T, Peralta Ramos JM, Schwartz M. Transforming the understanding of brain immunity. Science. 2023;380(6640):eabo7649.
- Di Pietro AA, et al. Microglia in systemic neuroimmune communication: functions beyond phagocytosis. Trends Immunol. 2026;47(6):495-510.
- Zhou L, Wang Y, Xu Y, Zhang Y, Zhu C. A comprehensive review of AAV-mediated strategies targeting microglia for therapeutic intervention of neurodegenerative diseases. J Neuroinflammation. 2024;21(1):232.
- Yue W, Shen J. Local delivery strategies for peptides and proteins into the CNS: status quo, challenges, and future perspectives. Pharmaceuticals (Basel). 2023;16(6):810.
- Scott-Hewitt N, et al. Microglial-derived C1q integrates into neuronal ribonucleoprotein complexes and impacts protein homeostasis in the aging brain. Cell. 2024;187(16):4193-4212.e4124.
- Fonseca MI, et al. Cell-specific deletion of C1qa identifies microglia as the dominant source of C1q in mouse brain. J Neuroinflammation. 2017;14(1):48.
- Stevens B, et al. The classical complement cascade mediates CNS synapse elimination. Cell. 2007;131(6):1164-78.
- Schafer DP, et al. Microglia sculpt postnatal neural circuits in an activity and complement-dependent manner. Neuron. 2012;74(4):691-705.
- Hong S, et al. Complement and microglia mediate early synapse loss in Alzheimer mouse models. Science. 2016;352(6286):712-6.
- Wang C, et al. Microglia mediate forgetting via complement-dependent synaptic elimination. Science. 2020;367(6478):688-94.
- Stevens B, Johnson MB. The complement cascade repurposed in the brain. Nat Rev Immunol. 2021;21(10):624-5.
- Stephan AH, et al. A dramatic increase of C1q protein in the CNS during normal aging. J Neurosci. 2013;33(33):13460-74.
- Datta D, et al. Classical complement cascade initiating C1q protein within neurons in the aged rhesus macaque dorsolateral prefrontal cortex. J Neuroinflammation. 2020;17(1):8.
- Ling GS, et al. C1q restrains autoimmunity and viral infection by regulating CD8. Science. 2018;360(6388):558-63.
- Zubler RH, Lange G, Lambert PH, Miescher PA. Detection of immune complexes in unheated sera by modified 125I-C1q binding test: effect of heating on the binding of C1q by immune complexes and application of the test to systemic lupus erythematosus. J Immunol. 1976;116(1):232-5.
- Obermaier C, Griebel A, Westermeier R. Principles of protein labeling techniques. Methods Mol Biol. 2015;1295:153-65.
重印与许可
本文已发表
视频即将推出