我们介绍了一种技术上易于实现且经济高效的成像方案,用于观察线虫早期发育过程,专为新进入该领域的研究人员编写。
本文内容
摘要
摘要
根据2025年第25届国际线虫会议公布的秀丽隐杆线虫遗传学中心(Caenorhabditis Genetics Center, CGC)菌株分布记录,全球80个国家约8,000个实验室在其研究中使用这些动物。建立可持续的培养与维持平台对于获取线虫行为的一手数据至关重要,特别是在经验或资源有限的实验室中。本文采用 秀丽隐杆线虫 作为一个示例,我们提供了一份实用的操作方案,供新研究人员建立基础的线虫操作与成像工作流程。随后,我们描述了采集正常及扰动条件下线虫样本的实验步骤 C. elegans 在选定的早期发育阶段对样品进行显微成像。成像目标包括生殖细胞发育(有丝分裂和减数分裂)、受精前的卵母细胞、卵母细胞与精子原核的迁移与融合、假分裂以及产生生物体的胚胎发育(有丝分裂)。尽管胚胎及整体生物体的成像较为直接,本文仍提供优化的指导方案与技术要点,以促进生殖系与胚胎的精确解剖、快速样品采集、制片、延时成像及基础图像分析。
引言
线虫是生物医学研究中最强大的模式生物之一1,2,这得益于其高度可重复的发育程序以及通过基因扰动所揭示的多样性3,4,5,6,以及相关物种的研究成果7,8,9,10。自20世纪60年代Sydney Brenner引入以来,秀丽隐杆线虫(Caenorhabditis elegans,简称 C. elegans)已成为代表性模式生物,以其个体微小、通体透明、三天即可完成生命周期、细胞谱系完全明确、基因组已测序并完成注释,以及拥有先进的遗传工具包以调控基因功能而著称11,12,13,14,15,16。这些研究的核心在于能够通过显微镜观察动态的生物学事件,尤其是在生殖系和胚胎中——即从减数分裂和有丝分裂到完整生物体形成的整个发育过程17。在整个发育过程中,快速的减数分裂和连续的有丝分裂,以及多细胞重排均以极高的时空精确性进行17。
与通常被监测的胚胎相比 体外,生殖系 体内 是研究单一组织内减数分裂和有丝分裂的理想系统,尤其适合新进入该领域的研究人员,因其减数分裂区和有丝分裂区在空间上相互分隔,可实现对这两种不同细胞分裂模式的同步观察(图1)18. 在 秀丽隐杆线虫 生殖系以合胞体形式组织,生殖细胞通过共享的细胞质核心——轴丝——相互连接18 (图1)。原始生殖细胞(PGC)通过不完全且不对称的分裂方式,在远端性腺臂中经有丝分裂实现生殖细胞增殖。在晚期幼虫4(L4)阶段,合胞体粗线期精母细胞逐渐从rachis脱离,并进入近端性腺臂进行减数分裂。19可以直接成像 体内 在固定/麻醉的动物中 体外 在分离的初级精母细胞中20,21.
生殖系和胚胎中的生物学现象极为丰富,并广泛涉及多个科学研究领域。减数成熟后,生殖细胞来源的卵母细胞进入受精囊,与精子结合受精,从而启动胚胎发育22,23。由于其卓越的发育稳健性,秀丽线虫(C. elegans)胚胎成为研究细胞极性、细胞分裂、细胞周期以及细胞运动等分子机制的理想模型系统24,25。通过解剖年轻成虫可获得新近受精的胚胎,随后可用于活体延时成像,以观察关键发育事件,包括但不限于卵母细胞与精子原核的迁移与融合、拟分裂、不对称细胞分裂 、原肠胚形成、器官发生等。
尽管原则上始终可以实现对生殖系和胚胎中完整及部分结构的光学观察,但对于初学者而言,获得高质量且达到发表水平的显微图像仍然极具挑战性。文献中“标准”的书面实验方案通常将复杂的操作流程浓缩为简略而模糊的描述,无法传达技术操作中细微的“手感”要点,例如麻醉剂的确切用量、解剖过程中避免损伤性腺所需的轻柔操作,以及显微镜下焦平面的精确选择。因此,新手研究者往往需要经历数月令人沮丧的反复尝试,必须依赖持续的导师指导、反复练习和大量故障排查,才能获得稳定且令人满意的图像。这种低效的知识传递方式延缓了科研进展,并引入了不必要的技术变异性,可能影响不同实验室间数据的可比性与解释。
例如,在生殖系中,性腺的解剖结构复杂,且受到其他组织(如肠道)的遮挡,使得细胞形态或分裂动态的观察变得困难 体内此外,生殖系因其精细的管状结构以及对封片压力的高度敏感性而带来额外的挑战。 体外 因此,成像技术不仅适用于一般的种系和胚胎观察,也适用于高分辨率的细胞水平观察。例如,从性腺中分离出的单个近端初级精母细胞可连续完成两次减数分裂,最终形成四个单倍体的精子细胞;由于不存在组织结构的阴影干扰,更易于获取高质量的图像。这些观察方法还可拓展至其他组织或整体生物体。26,27,28,29,30,31,32. 便捷的是,每项操作均可在1 h内完成,便于进行延时成像。
本文提供了一种实用的、分步的延时成像方案,涵盖从生殖细胞发育到胚胎发育的多个选定阶段,不仅包括成像操作,还包含准备步骤(例如线虫解剖),以降低刚接触线虫成像的研究人员面临的技术门槛33。本方案重点展示了对生殖系和胚胎进行显微成像的实时可视化过程——从优化的样品固定方法以维持样品在数小时记录期间的活性,到显微镜参数的设置,以在信噪比与光毒性/光漂白最小化之间取得平衡,以及基本的图像采集流程。
方案
注意:成功长期维持 C. elegans 种群是后续实验工作的基础,需要持续制备高质量的线虫生长培养基(NGM),可靠地扩增细菌食物来源,提供适合菌株生长与繁殖的环境条件,并采取有效策略防止污染导致的培养物丢失。
1. 线虫培养与保种
注意:此处仅提供一些建议;详细步骤可参见 线虫书34使用NGM预混粉末以减少称量和配制步骤。
- 在接种有食物的 NGM 琼脂平板上培养所有线虫 E. coli OP50 在 20 °C 野生型(WT)和 16 °C 或 25 °C 用于温度敏感型突变体(ts 突变体)。
注意:新生收到CGC突变菌株后应验证培养温度。
注意:野生型动物在较高温度下生长更快;温度敏感型突变体在较高温度下可产生胚胎 16 °C (允许温度下)但不在 25 °C (限制性温度,在该温度下特定基因或蛋白表现出功能丧失效应)35,36,37,38菌株和培养基可从CGC [https://cgc.umn.edu]购买,或由附近实验室馈赠获得。 - 在饥饿处理前,将动物转移至新的培养板中(新板中的数量应显著减少) 大肠杆菌 (大肠杆菌(E. coli) 在显微镜下观察OP50)以维持其健康状态,用于后续实验(约2–3天)。
- 将动物样本置于冷冻缓冲液(S缓冲液中添加甘油至终浓度为15%)中,于-80 °C保存。80 °C 过夜后转移至冻存盒或液氮中长期保存34.
注意:在冷冻前,使用油性防水记号笔标记所有冻存管。水性墨水不适用于超低温储存。
2. 琼脂糖垫制备
- 称取 3 g 琼脂糖,转移至 250 mL 锥形瓶中,加入 100 mL M9 缓冲液,充分混匀后在微波炉中加热 2–3 分钟,直至琼脂糖完全溶解(下文简称琼脂糖缓冲液)。
注意:用封口膜覆盖锥形瓶口,以防止缓冲液蒸发并减少渗透浓度误差。总体积可根据实验需求进行调整。 - 将充分混匀的琼脂糖缓冲液转移至 1.5 mL 离心管中,可在室温下保存长达 1 个月。使用时将储存的琼脂糖置于 90–100 °C 的加热金属块中熔化(若使用新配制的琼脂糖,则跳过此步骤)。
- 剪去 200 µL 吸头的尖端以扩大开口,防止因凝固导致堵塞,并在载玻片(尺寸:75 x 25 mm;厚度:0.9–1.10 mm;类型:钠钙玻璃)上滴加一滴熔化的琼脂糖缓冲液。
- 立即用另一张载玻片覆盖液滴。在盖玻片(尺寸:22 x 22 mm;厚度:0.25 mm)边缘周围补充少量琼脂糖缓冲液,并轻轻按压使其延展成一个完整包围盖玻片的薄而圆形的密封圈,确保无气泡残留。
注意:此操作可形成一个封闭的微室,用于固定生物样本并防止脱水。可同时制备多个载玻片,以满足高通量实验需求。 - 让琼脂冷却至少 3 分钟,直至完全凝固后方可使用。
注意:琼脂糖垫一旦凝固应立即用于成像,以避免生物样本受到应激。固化的琼脂会从中心逐渐吸收水分,最终导致样本死亡。
3. 在体 雌雄同体或雄性蠕虫精子发生过程的观察 (图1) 和 补充视频 S1
- 按照上述第2节所述方法制备琼脂糖垫。
- 迅速将10–20只NMY-2::GFP标记的线虫20(晚L4期)转移至盖玻片上含5–10 µL 0.5%盐酸四咪唑(用M9缓冲液稀释)的液滴中。
注意:为防止线虫移动和脱水,应避免加入过多或过少缓冲液。选择已爬离或位于细菌菌苔边界之外的线虫(在显微镜下可观察到呈模糊半透明区域的E. coli菌团),以避免无意中将E. coli随线虫一同转移,从而干扰成像。 - 孵育1分钟,直至线虫完全麻醉。
- 轻轻移除上层载玻片,保留琼脂糖垫在底层载玻片上。
- 将带有琼脂糖垫的载玻片翻转,轻触并缓慢放下琼脂糖垫至缓冲液中的线虫上方,避免产生气泡。再将载玻片翻转,使盖玻片朝上。
注意:避免快速移动盖玻片,以免损伤线虫体壁。 - 使用200 µL移液枪头吸取已加热的液体石蜡(与固体琼脂一同预热),迅速沿盖玻片边缘移动枪头,使石蜡冷却固化,从而将盖玻片密封固定于载玻片上。
- 将载玻片置于显微镜载物台上,用于成像观察生殖细胞发育过程。
- 对于单张图像,可提高激光功率和曝光时间以优化荧光信号(根据不同品系荧光表达强度调整),可根据需要 适当增加,以获得更佳的荧光可视化效果。
- 对于延时成像/Z轴层扫,应使用较低的激发光强度和较短的曝光时间,以最小化光毒性/光漂白效应。
注意:目标是在对线虫生长影响最小的前提下,获取 空间和时间上的成像数据。
4. 在体 观察原始生殖细胞的分裂 (图1) 和 补充视频 S1
- 按照上述第2节所述方法制备琼脂糖垫。
- 将10只NMY-2::GFP标记的线虫39,40(晚期L1至年轻成虫阶段)转移至载玻片上含有5–10 µL 0.5%盐酸四咪唑(用M9缓冲液稀释)的液滴中。
- 孵育1分钟,直至线虫完全 immobilized(固定)。
- 移除上层载玻片,保留底部载玻片上的琼脂糖垫。
- 将带有琼脂糖垫的载玻片翻转,轻轻接触含有线虫的缓冲液,以避免产生气泡。再将载玻片翻回,使盖玻片朝上。
- 使用200 µL移液器吸头,按照步骤3.6所述方法,用凡士林密封盖玻片边缘。
- 将载玻片转移至显微镜载物台上进行成像。
5. 生殖系的解剖分离 体外 雄性精子发生过程的观察 (补充图 S1) 和 补充视频 S2
注意:注射器的尺寸可根据个人偏好进行调整。雄性具有一套完整且单一的生殖系,包含一个性腺,而雌雄同体则具有两个性腺(两者均在晚期L4至年轻成虫阶段产生精子,在后续阶段产生卵细胞)41。
- 制备新鲜的 体外 培养缓冲液(含15% FBS的Leibovitz’s L-15培养基)
注意:缓冲液应保存在 4 °C 冰箱中保存不超过一周。血清可分装至不同管中,于-80℃长期保存。20 °C. - 将约10条N2或荧光标记(NMY-2::GFP;mCherry::Histone)的雄虫(晚期L4阶段)放入一个含有1.5 mL离心管中 500 µL 培养缓冲液
- 离心试管,转速为 1,000 × g 2分钟。轻轻移除上层 400 µL 缓冲液。
- 添加 400 µL 加入培养缓冲液,重复步骤 5.2–5.3。
- 将剩余缓冲液(含动物)转移至盖玻片上。加入适量体积的盐酸四咪唑(终浓度0.1%)或左旋咪唑(终浓度0.1 mM),通过激动烟碱型乙酰胆碱受体使线虫 immobilize。41 以及局部麻醉活性42轻轻晃动盖玻片,直至线虫停止移动。
注意:为了降低成本,可使用 M9 缓冲液进行初始洗涤以去除碎片 E. coli仅在最终洗涤步骤或载玻片制备前添加培养缓冲液。若出于特殊需求需加快流程,或缓冲液非常洁净时,可省略步骤5.2–5.3。 - 将两支28 G针头分别连接至注射器,双手各持一支。将盖玻片置于解剖显微镜下,将针头置于30–45° 在蠕虫上方成一定角度。在近端性腺臂附近做切口,以释放性腺组织。对所有动物重复此操作。
注意:此操作将释放体腔碎片。对于初学者,建议进行更多练习。在麻痹缓冲液中,最长的完整解剖时间可维持 <5 分钟。根据实验目标调整时间。 - 轻轻搅动盖玻片并收集碎片。用移液器小心吸去较大的碎片,尽量减少缓冲液残留,同时确保小的初级精母细胞仍留在盖玻片上。
注意:盖玻片中避免残留过多缓冲液;过量会导致封片过程中产生移动。 - 取一干净载玻片,将解剖得到的初级精母细胞轻轻覆盖上盖玻片。参照步骤3.6,用加热的液体石蜡密封盖玻片边缘。
注意:封片前,在盖玻片的四个角涂抹少量液体石蜡,以防止机械损伤精母细胞。 - 转移至显微镜进行成像。
注意:避免使用琼脂糖垫片。液体培养基可提供更透明的背景,从而获得更佳的光学清晰度,以区分初级精母细胞。
6. 蠕虫的解剖与 体外 荧光下受精与胚胎发生过程的观察(补充图S2,补充图S3,补充视频S3, 和 补充视频 S4)和明场(图 2 和 补充视频 S5
注意:通过将两根28 G针头斜面对向交叉放置在近受精囊处获取早期胚胎 。将腔室密封以防止液体蒸发,并立即转移至显微镜下观察。
- 使用钻头在35 mm培养皿中央加工一个10 mm的通孔。将22 mm显微镜盖玻片密封于培养皿底部,以制备可重复使用的倒置共聚焦显微镜观察腔室,从而消除盖玻片和琼脂糖垫对胚胎施加的压力。
- 加入约 30 µL 加入M9缓冲液至小室中。
注意:此体积足以支持每轮 4 小时的延时成像。缓冲液体积可支持持续成像 卵母细胞-精子原核迁移与融合至孵化前胚胎肌肉抽动。 - 挑选雌雄同体。将约20只年轻成虫转移至成像室的M9缓冲液中。
注意:雄性个体只产生精子,不产生胚胎。 - 用注射器针头在受精囊上横向切割两次,以释放更多早期胚胎。用睫毛挑针去除动物体部。
注意:实际上,铂金挑针太硬,难以清除液体中的组织碎屑。我们还推荐使用假睫毛挑针(多头型),其功能类似于叉子,清除碎屑的效果优于标准的真睫毛挑针。 - 用培养皿盖盖住培养皿,以防止液体蒸发。
7. 显微镜下的延时成像
- 将载玻片/培养皿置于显微镜上(例如,配备60倍物镜的倒置转盘共聚焦显微镜)×/1.4 数值孔径物镜和EMCCD相机)下以最低放大倍数(10×)区域,寻找处于目标阶段的动物、初级精母细胞或新受精的胚胎。
- 对于非荧光标记的线虫,通过细胞核的位置、融合状态以及卵裂沟的形态来确定早期胚胎的发育阶段 (图2 和 补充视频 S5.
- 对于 体外 分离的初级精母细胞,寻找那些正准备分裂、从残余体脱离并在缓冲液中呈圆形分散的细胞 (补充图 S1) 和 补充视频 S2.
- 对于荧光标记的线虫,根据蛋白质分布和细胞形态确定其发育阶段。
注意:GFP 使用 488 nm 激发线和 525–550 nm 发射滤光片检测荧光,RFP/mCherry 使用 561 nm 激发线和 607–636 nm 发射滤光片检测荧光。
- 找到这些细胞或胚胎,然后切换至更高倍数的物镜(63× 或 100×).
注意:由于细胞和胚胎的制备与成像原理相同,本可视化实验教程以解剖后的胚胎为例,展示明场和荧光通道的成像过程。 - 开始Z轴扫描(通常使用≤1 µm 使用显微镜采集软件进行时间间隔视频录制或图像快照,扫描间隔可低至1 s,具体取决于Z层层数和研究需求。
注意:对于易发生光漂白/光毒性的荧光菌株,在长时间成像过程中应降低激光功率并缩短曝光时间,以减少光漂白/光毒性。 - 将所有图像以 .tiff 格式保存用于图像输出,并保留原始成像信息。
8. 图像分析
注意:可使用显微镜专用软件或通用分析软件(如 Fiji/ImageJ [https://imagej.net/software/fiji],一种用于生物图像分析的开源平台)对单个 .tiff 图像或延时成像序列进行旋转、裁剪、标注、测量和处理43。
- 在 Fiji/ImageJ 中打开获取的图像。检查单个荧光点或结构的荧光信号强度和分布情况。选择 图像 | 调整 | 亮度/对比度,以及 图像 | 超堆栈 | 堆栈转为超堆栈,以在单个 tiff 图像中分离通道、Z 层和时间点。选择 图像 | 颜色 | 通道工具,优化颜色平衡以用于展示。
- 使用 图像 | 变换 | 旋转 旋转每幅图像,使线虫呈水平方向,头部朝左。如有需要,使用 图像 | 裁剪 去除不必要的空白区域。
- 使用 图像 | 堆栈 | Z 投影,从具有足够信号的代表性帧生成 Z 投影图像。
注意:为获得最佳可视化效果,建议将高对比度的帧合并投影。然而,若需比较不同组间特定组织或细胞器内的相对差异,即使信号较弱,也可将包含完整信息的多个帧合并投影。 - 使用 文件 | 另存为 | Tiff 保存投影后的图像,用于后续分析。
- 根据所使用的共聚焦显微镜,校准图像比例尺,使像素转换为微米(µm)。校准后,使用 分析 | 工具 | 比例尺 添加比例尺。
注意:上述图像处理仅限于可视化和图像制备。当需要批量处理或自动化测量时,应使用 Fiji/ImageJ 或其他开源工具,如 CellProfiler44 和基于 Python 的分析流程45。
结果
在细胞水平上对C. elegans进行表型分析的传统方法通常需要投入大量资金购置光学设备,而如今借助现代消费类电子产品和创新的适配系统,可在显著降低费用的情况下实现令人满意的成像效果。为了通过共聚焦显微镜或其他 readily available 仪器对雌雄同体的生殖腺结构进行in vivo成像,我们使用了一种携带两种荧光标记的品系20,其中 NMY-2::GFP 标记了U形生殖腺的整体结构、初级精母细胞的轴丝及皮质区域,而 mCherry::Histone 则显示细胞核形态和发育阶段(图1和补充视频S1)。这两种蛋白已在多种研究中被广泛应用46,47,48。为了获取尽可能完整的三维结构信息,我们以1 µm的间隔从线虫生殖腺底部至顶部采集完整的Z轴层扫图像。根据染色体高度凝聚的团块状结构以及NMY-2在赤道区域的微弱富集,最靠近近端的初级精母细胞处于核团期,表明这些细胞正开始第一次分裂(图1 和补充视频S1)。此外,原始生殖细胞(PGCs)的有丝分裂发生在生殖腺的远端区域,也可通过本方案成功捕获。
对于 体外 观察精子发生过程时,我们首先制备培养缓冲液。将线虫解剖,使生殖系中的初级精母细胞释放到缓冲液中。关键是要迅速找到即将进入第一次分裂的初级精母细胞,这些细胞可通过细胞核形态(核膜开始解体)或整体细胞形态来识别。使用荧光标记品系可更方便地鉴定正确的发育阶段。图像以30秒间隔采集,以平衡光毒性/光漂白与成像效率。 关键词:精子发生,培养缓冲液,线虫,初级精母细胞,核膜解体,荧光品系,光毒性,光漂白,成像间隔 (补充图 S1) 和 补充视频 S2.
为了获取早期胚胎发育的更多信息,我们首先在明场通道下定位新受精的胚胎,其中父本和母本细胞核位于胚胎长轴的相对两端,并相互靠近以进行融合。对于使用标准载玻片的胚胎观察, 我们使用了一种表达 GFP::组蛋白的菌株49 和 mCherry::PH50 以分别标记细胞核和细胞膜的动态变化。这些图像在不同的Z层采集,以展示完整的细胞分裂过程补充图 S2 和 补充视频 S3)。需要注意的是,准确识别胚胎所处的正确发育阶段至关重要。我们选取了早期胚胎,并采用连续记录的方式,以在无物理干扰的情况下捕捉完整的发育过程。该方法能够 >涵盖从受精到肌肉抽动全过程的500分钟延时录像(图2 和 补充视频 S5)。除了野生型外,还可获得突变体用于比较成像研究。例如,HUM-2 是人类肌球蛋白 V 的同源蛋白,在细胞器、囊泡和 mRNA 的分布中发挥关键作用,对动物生理和细胞功能具有重要意义51作为示例,该方案还被用于捕获细胞沟道动态变化 hum-2 (ok596)突变体用于视觉比较(补充图 S3 和 补充视频 S4最后,使用 ImageJ/Fiji 对 .tiff 图像进行处理和裁剪,并在图像编辑软件中对齐,以进行直接的视觉比较52.
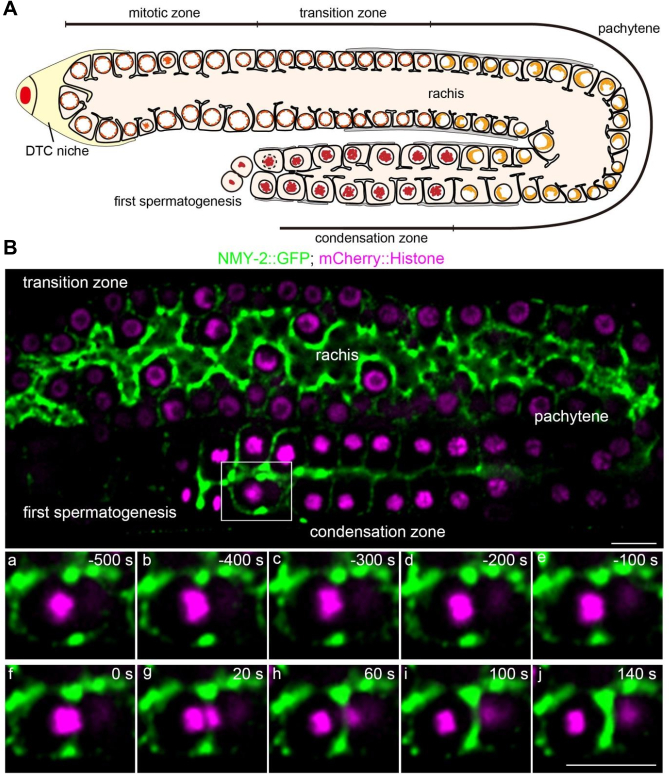
图1:晚期L4阶段线虫性腺区域分布的示意图与荧光图像。(A)晚期L4阶段线虫性腺结构的示意图。DTC = 远端顶端细胞。(B)荧光图像显示NMY-2::GFP标记近端精子细胞的连接丝和皮质区域,mCherry::组蛋白标记不同发育阶段的细胞核形态。比例尺 = 10 µm。请点击此处查看该图的放大版本。
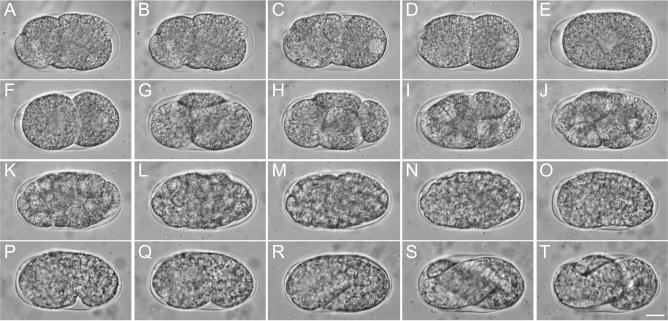
图2:C. elegans 胚胎发育过程。(A-E)合子融合阶段至单细胞阶段,包括卵细胞与精子原核的迁移与融合、假性分裂以及单细胞阶段的建立。(F-J)双细胞阶段至多细胞阶段。(K-O)原肠胚形成阶段。(P-T)逗号期至肌肉抽动期。比例尺 = 10 µm。请点击此处查看该图的放大版本。
补充图 S1:完整精子发生过程成像的代表性展示。(A)核膜开始解体。(B)第一次减数分裂的前中期。(C)收缩环形成并启动缢缩;(D)第一次减数分裂完成;(E)第二次减数分裂开始。(F)两个次级精母细胞的沟槽缢缩。(G)第二次减数分裂的末期。(H)第二次减数分裂完成,形成四个精子细胞及一个位于中央的残余体。比例尺 = 10 µm。请点击此处下载该文件。
补充图 S2:利用 GFP::组蛋白标记细胞核和 mCherry::PH 标记细胞膜对早期胚胎发生过程进行成像的代表性示例。(A)假性卵裂。(B)卵裂沟回归至正常状态。(C)第一次细胞分裂的中期。(D)第一次细胞分裂的后期。(E)二细胞期。(F)AB 细胞分裂的后期和 P1 细胞分裂的前期。(G)P1 细胞分裂的后期。(H)四细胞期。比例尺 = 10 µm。 请点击此处下载该文件。
补充图 S3: N2 与 hum-2 (ok596) 突变体早期胚胎中分裂沟的代表性比较。 放大图显示了分裂沟随时间变化的动力学过程,便于直观比较。数字表示从后期开始后的时间,以染色体分离为定义标准。比例尺 = 2 µm。 请点击此处下载该文件。
补充视频 S1。 使用 NMY-2::GFP 和 mCherry::Histone 对晚期 L4 阶段性腺进行的代表性荧光延时成像;每帧间隔 30 秒。 请点击此处下载该文件。
补充视频 S2。 him-5 (e1490) 突变体中完整精子发生过程的代表性明场延时成像,每帧间隔 30 秒。 请点击此处下载该文件。
补充视频 S3. 使用 GFP::Histone 和 mCherry::PH 对早期胚胎发生过程进行代表性荧光延时成像;每帧 30 秒。 请点击此处下载该文件。
补充视频 S4。N2 及 hum-2 (ok596) 突变体早期胚胎中分裂沟的代表性荧光延时成像;每帧 15 秒。 请点击此处下载该文件。
补充视频 S5. 从卵细胞与精子原核融合至产生生物体的有丝分裂阶段,N2 C. elegans 胚胎发育的代表性明场延时成像。 请点击此处下载该文件。
讨论
为制备和成像线虫,我们分别基于培养室和载玻片优化了两种工作流程。基于培养室的方法已用于 高分辨率活体成像,可实现对发育过程的长期观察,同时将光毒性/光漂白效应降至最低53基于载玻片的方法改编自标准的琼脂糖垫固定技术,该技术常用于神经元活动和亚细胞结构的短期观察。54. 我们对选定对象应用了两种方案(第3、4、5和6节)进行长期观察 C. elegans 早期发育阶段。关于 体内 观察性腺结构、原始生殖细胞分裂或精子发生过程时,我们遵循了以往 established 方法的主要步骤,并进行了某些修改,以便新研究人员能够快速、简便地开展操作55关于 体外 观察精子发生过程时,我们强调快速识别进入由前期向中期转变阶段的细胞,此时核膜正在解体56. 尽管琼脂糖垫可缓冲并部分稳定胚胎或线虫以 体内 成像时,它们会降低初级精母细胞与载玻片之间的对比度,因此不建议使用琼脂糖垫 体外 观察解剖后的精母细胞;推荐使用液体培养基。同样,应重视快速识别特定的发育阶段。 体外 胚胎发育的观察
结合上述方法,可对从生殖系到胚胎的特定发育事件进行成像。这些方法还可与温度控制设备(如用于活细胞成像的快速温度转换系统)联用,从而更方便地研究温度敏感型突变体57。类似地,基于降温的固定方法可实现对培养皿中秀丽线虫(C. elegans)群体的高通量、亚微米分辨率成像,在保持生理活性的同时,减少对化学麻醉剂或单条线虫操作的需求58。此外,可将人工干预手段,如RNA干扰14和激光消融59,60,61,62,63,64,65,与显微成像相结合,以研究发育过程中的响应及其潜在的生物学或物理机制。未来,通过优化硬件、软件及用户特定操作,显微成像工作流程有望进一步改进33,66。尽管具体操作细节需根据实际情况调整,本实验方案中的部分原则可能适用于其他小型运动性动物模型,如果蝇和斑马鱼幼虫,尤其适用于需要固定进行的活体(in vivo)观察,以及需要解剖进行的体外(in vitro)观察67,68。
采用此类方案获取的图像数据集,若使用足够的样本数量和标准化的采集设置,也可支持后续的计算分析或定量分析69,70。例如,秀丽隐杆线虫(C. elegans)胚胎发育已被用于细胞谱系追踪研究71,72以及细胞形态分割分析73,74,75,这两类研究均依赖于时空成像数据。从机制角度而言,对细胞核、细胞膜、极性相关蛋白76,77,78以及细胞骨架相关蛋白79,80,81的成像可支持细胞分裂和形态发生过程的分析。定量系统生物学可将此类成像数据整合至分子、细胞和个体等多个尺度82,83,84,85。在本实验方案中,上述更广泛的应用应被视为潜在的拓展方向,而非代表性结果所直接展示的成果。
披露
作者声明无利益冲突。
致谢
我们感谢东北大学的 Samuel H. Chung 教授、Erin J. Cram 教授、Javier Apfeld 教授、Noa William Franklin Grooms 博士,以及北京师范大学的董川甫教授在技术方面提供的支持。本工作由国家自然科学基金青年项目(资助号 22407016)和国家自然科学基金项目(资助号 22477010)对张沛博士提供的经费支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 28 规格 U-100 胰岛素注射器 | EasyTouch | B08589MG8D | 线虫解剖 |
| 35 mm 培养皿 | Celltreat | 229638 | 成像室 |
| 60 mm 培养皿 | Fisherbrand | AS4050 | 线虫培养 |
| 琼脂糖 | Bio-Rad | 1613100 | 琼脂糖垫制备 |
| 秀丽隐杆线虫 RNAi 饲喂文库(Ahringer) | Source BioScience Ltd. | N/A | RNAi 实验 |
| C. elegans 品系:GFP::组蛋白;mCherry::PH | 秀丽线虫遗传学中心 | YC0154 | 本研究中使用的菌株 |
| C. elegans 品系:GFP::HUM-2 | Sunybiotech | YC0381 | 本研究中使用的菌株 |
| C. elegans 菌株: him-5 (e1490) | 秀丽隐杆线虫遗传学中心 | CB4088 | 本研究中使用的菌株 |
| C. elegans 品系:N2,野生型 | 秀丽隐杆线虫遗传学中心 | N2(Bristol) | 本研究中使用的菌株 |
| C. elegans 品系:NMY-2::GFP; mCherry::组蛋白 | 秀丽隐杆线虫遗传学中心 | YC0032 | 本研究中使用的菌株 |
| 秀丽线虫 品系:PH::GFP; mCherry::组蛋白 | 秀丽隐杆线虫遗传学中心 | YC0029 | 本研究中使用的菌株 |
| 微分干涉差显微镜 | Olympus | BX53 | 线虫成像 |
| 解剖体视显微镜 | 尼康 | SMZ745 | 线虫观察 |
| E. coli OP50 | 秀丽隐杆线虫遗传学中心 | OP50 | 细菌食物来源 |
| 胎牛血清(FBS) | N/A | N/A | 培养缓冲液 |
| 冻存缓冲液(S缓冲液/甘油) | N/A | N/A | 长期保存 |
| 杂交盖玻片 | Invitrogen(Thermo Fisher Scientific) | H18200 | 琼脂糖垫/腔室制备 |
| 异丙基 β-D-1-硫代半乳糖吡喃糖苷(IPTG) | Invitrogen(Thermo Fisher Scientific) | 15529019 | 线虫培养 |
| Leibovitz's L-15 培养基 | N/A | N/A | 培养缓冲液 |
| 盐酸左旋咪唑 | N/A | N/A | 线虫固定 |
| M9 缓冲液 | N/A | N/A | 线虫培养与制片 |
| 显微镜盖玻片 | Fisherbrand | 12541016 | 成像载玻片 |
| 迷你数码培养箱 | Benchmark Scientific | BMS-H2200-HC-E | 线虫培养 |
| NGM 预混粉末 | N/A | N/A | 线虫培养 |
| 尼康Eclipse Ti2-E倒置显微镜 | 尼康 | Ti2-E | 线虫成像 |
| 普通显微镜载玻片 | Fisherbrand | 12550A3 | 成像载玻片 |
| 普通载玻片 | Corning | 2947-75X25 | 琼脂糖垫制备 |
| 转盘共聚焦显微镜 | Olympus | SpinSR10 | 线虫成像 |
| 转盘共聚焦成像系统 | Yokogawa | CSU-X1 | 延时成像 |
| Tetramisole | Sigma-Aldrich | L9756 | 线虫麻醉 |
| Vaseline | Sangon Biotech | A510146-0500 | 成像载玻片 |
参考文献
- Corsi AK, Wightman B, Chalfie M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 2015;200(2):387-407.
- Ambros VR, et al. From nematode to Nobel: how community-shared resources fueled the rise of Caenorhabditis elegans as a research organism. Proc Natl Acad Sci U S A. 2025;122(48):e2522808122.
- Du Z, et al. De novo inference of systems-level mechanistic models of development from live-imaging-based phenotype analysis. Cell. 2014;156(1):359-72.
- Xiao L, et al. Defect-buffering cellular plasticity increases robustness of metazoan embryogenesis. Cell Syst. 2022;13(8):615-30.e9.
- Green RA, et al. Automated profiling of gene function during embryonic development. Cell. 2024;187(12):3141-60.e23.
- Yang M, Bai Y, Wang Z, Du Z. Intracellular buffering enables developmental robustness after genome doubling in C. elegans embryos. Cell Rep. 2026;45(3):117005.
- Laugsch M, Schierenberg E. Differences in maternal supply and early development of closely related nematode species. Int J Dev Biol. 2004;48(7):655-62.
- Guan G, Luo C, Tang HL, Tang C. Modulating cell proliferation by asymmetric division: a conserved pattern in the early embryogenesis of nematode species. MicroPubl Biol. 2024;10.17912/micropub.biology.001006.
- Large CRL, et al. Lineage-resolved analysis of embryonic gene expression evolution in C. elegans and C. briggsae. Science. 2025;388(6753):eadu8249.
- Zhang P, et al. Biosynthesis of modular signaling molecules requires functional diversification of carboxylesterases in Pristionchus pacificus. Commun Biol. 2025;8(1):1213.
- Brenner S. The genetics of Caenorhabditis elegans. Genetics. 1974;77(1):71-94.
- Sulston JE, Schierenberg E, White JG, Thomson JN. The embryonic cell lineage of the nematode Caenorhabditis elegans. Dev Biol. 1983;100(1):64-119.
- C. elegans Sequencing Consortium. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 1998;282(5396):2012-8.
- Chung SH, et al. Femtosecond laser ablation reveals antagonistic sensory and neuroendocrine signaling that underlie C. elegans behavior and development. Cell Rep. 2013;4(2):316-26.
- Zhang H, Abraham N, Khan LA, Gobel V. RNAi-based biosynthetic pathway screens to identify in vivo functions of non-nucleic acid-based metabolites such as lipids. Nat Protoc. 2015;10(5):681-700.
- Huang X, et al. PIWI-interacting RNA expression regulates pathogenesis in a Caenorhabditis elegans model of Lewy body disease. Nat Commun. 2023;14(1):6137.
- Schnabel R, Hutter H, Moerman D, Schnabel H. Assessing normal embryogenesis in Caenorhabditis elegans using a 4D microscope: variability of development and regional specification. Dev Biol. 1997;184(2):234-65.
- Wang X, Hu B, Zhao Z, Tse YC. From primordial germ cells to spermatids in Caenorhabditis elegans. Semin Cell Dev Biol. 2022;127:110-20.
- L’Hernault SW. Spermatogenesis. In: Riddle DL, Blumenthal T, Meyer BJ, Priess JR, editors. C. elegans II. 2nd edition. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY; 1997.
- Wang X, et al. Cortical recruitment of centralspindlin and RhoA effectors during meiosis I of Caenorhabditis elegans primary spermatocytes. J Cell Sci. 2021;134(3):jcs238543.
- Hu J, et al. Distinct roles of two myosins in C. elegans spermatid differentiation. PLoS Biol. 2019;17(4):e3000211.
- Kovacevic I, Orozco JM, Cram EJ. Filamin and phospholipase C-ε are required for calcium signaling in the Caenorhabditis elegans spermatheca. PLoS Genet. 2013;9(5):e1003510.
- Sadeghian F, Grooms NWF, Chung SH, Cram EJ. Tensions on the actin cytoskeleton and apical cell junctions in the C. elegans spermatheca are influenced by spermathecal anatomy, ovulation state and activation of myosin. Front Cell Dev Biol. 2024;12:1490803.
- Hoege C, Hyman AA. Principles of PAR polarity in Caenorhabditis elegans embryos. Nat Rev Mol Cell Biol. 2013;14(5):315-22.
- Simske JS, Hardin J. Getting into shape: epidermal morphogenesis in Caenorhabditis elegans embryos. Bioessays. 2001;23(1):12-23.
- Zhang H, Emmons SW. Regulation of the Caenorhabditis elegans posterior hox gene egl-5 by microRNA and the polycomb-like gene sop-2. Dev Dyn. 2009;238(3):595-603.
- Zhang N, et al. The C. elegans intestine as a model for intercellular lumen morphogenesis and in vivo polarized membrane biogenesis at the single-cell level: labeling by antibody staining, RNAi loss-of-function analysis and imaging. J Vis Exp. 2017;(128):e56100.
- Zhang N, et al. The C. elegans excretory canal as a model for intracellular lumen morphogenesis and in vivo polarized membrane biogenesis in a single cell: labeling by GFP-fusions, RNAi interaction screen and imaging. J Vis Exp. 2017;(128):e56101.
- Cui M, et al. A model of hereditary sensory and autonomic neuropathy type 1 reveals a role of glycosphingolipids in neuronal polarity. J Neurosci. 2019;39(29):5816-34.
- Li Z, et al. A collection of toolkit strains reveals distinct localization and dynamics of membrane-associated transcripts in epithelia. Cell Rep. 2021;35(5):109072.
- Cheng X, et al. Proteotoxic stress disrupts epithelial integrity by inducing MTOR sequestration and autophagy overactivation. Autophagy. 2022;19(1):241-55.
- Zhang P, et al. The centralspindlin complex regulates cytokinesis and morphogenesis in the C. elegans spermatheca. Development. 2023;150(2):dev200840.
- Wang YL, Grooms NWF, Civale SC, Chung SH. Confocal imaging capacity on a widefield microscope using a spatial light modulator. PLoS One. 2021;16(2):e0244034.
- Stiernagle T. Maintenance of C. elegans. WormBook. 2006;1-11.
- Hirsh D, Vanderslice R. Temperature-sensitive developmental mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):220-35.
- Davies T, et al. Using fast-acting temperature-sensitive mutants to study cell division in Caenorhabditis elegans. Methods Cell Biol. 2017;137:283-306.
- Ward S, Miwa J. Characterization of temperature-sensitive, fertilization-defective mutants of the nematode Caenorhabditis elegans. Genetics. 1978;88(2):285-303.
- Vanderslice R, Hirsh D. Temperature-sensitive zygote defective mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):236-49.
- Fujita M, Onami S. Cell-to-cell heterogeneity in cortical tension specifies curvature of contact surfaces in Caenorhabditis elegans embryos. PLoS One. 2012;7(1):e30224.
- Nishikawa M, Naganathan SR, Jülicher F, Grill SW. Controlling contractile instabilities in the actomyosin cortex. eLife. 2017;6:e19595.
- Kimble J, Hirsh D. The postembryonic cell lineages of the hermaphrodite and male gonads in Caenorhabditis elegans. Dev Biol. 1979;70(2):396-417.
- Onuaguluchi G, Igbo IN. Comparative local anaesthetic and antiarrhythmic actions of levamisole hydrochloride and lignocaine hydrochloride. Arch Int Pharmacodyn Ther. 1987;289(2):278-89.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Weisbart E, et al. CellProfiler plugins - an easy image analysis platform integration for containers and Python tools. J Microsc. 2024;296(3):227-34.
- Rueckl M, et al. SamuROI, a Python-based software tool for visualization and analysis of dynamic time series imaging at multiple spatial scales. Front Neuroinform. 2017;11:44.
- Kachur TM, Audhya A, Pilgrim DB. UNC-45 is required for NMY-2 contractile function in early embryonic polarity establishment and germline cellularization in C. elegans. Dev Biol. 2008;314(2):287-99.
- Schmutz C, Stevens J, Spang A. Functions of the novel RhoGAP proteins RGA-3 and RGA-4 in the germ line and in the early embryo of C. elegans. Development. 2007;134(19):3495-505.
- Chartier NT, et al. PAR-4/LKB1 mobilizes nonmuscle myosin through anillin to regulate C. elegans embryonic polarization and cytokinesis. Curr Biol. 2011;21(4):259-69.
- Knight AJ, Johnson NM, Behm CA. VHA-19 is essential in Caenorhabditis elegans oocytes for embryogenesis and is involved in trafficking in oocytes. PLoS One. 2012;7(7):e40317.
- Murata D, et al. GPI-anchor synthesis is indispensable for the germline development of the nematode Caenorhabditis elegans. Mol Biol Cell. 2012;23(6):982-95.
- Wong S, Weisman LS. Roles and regulation of myosin V interaction with cargo. Adv Biol Regul. 2021;79:100787.
- McLean D. Adobe Photoshop and Illustrator techniques. J Audiov Media Med. 2002;25(2):79-81.
- Gabel CV, et al. Neural circuits mediate electrosensory behavior in Caenorhabditis elegans. J Neurosci. 2007;27(28):7586-96.
- Chung SH, Sun L, Gabel CV. In vivo neuronal calcium imaging in C. elegans. J Vis Exp. 2013;(74):50357.
- McCarter J, Bartlett B, Dang T, Schedl T. On the control of oocyte meiotic maturation and ovulation in Caenorhabditis elegans. Dev Biol. 1999;205(1):111-28.
- L’Hernault SW. Spermatogenesis. WormBook. 2006;1-14.
- Pitayu-Nugroho L, et al. Kinetochore component function in C. elegans oocytes revealed by 4D tracking of holocentric chromosomes. Nat Commun. 2023;14(1):4032.
- Wang YL, et al. High-throughput submicron-resolution microscopy of Caenorhabditis elegans populations under strong immobilization by cooling cultivation plates. iScience. 2023;26(2):105999.
- Chung SH, et al. The role of the AFD neuron in C. elegans thermotaxis analyzed using femtosecond laser ablation. BMC Neurosci. 2006;7(1):30.
- Chung S, Maxwell I, Mazur E. Subcellular surgery and nanoneurosurgery [conference paper]. Presented at: Conference on Lasers and Electro-Optics; Baltimore, MD; 2007. p. 1-2.
- Chung SH, Mazur E. Femtosecond laser ablation of neurons in C. elegans for behavioral studies. Appl Phys A Mater Sci Process. 2009;96(2):335-41.
- Chung SH, Mazur E. Surgical applications of femtosecond lasers. J Biophotonics. 2009;2(10):557-72.
- Cai H, et al. Wedge prism approach for simultaneous multichannel microscopy. Sci Rep. 2019;9(1):17795.
- Chung SH, et al. Novel DLK-independent neuronal regeneration in Caenorhabditis elegans shares links with activity-dependent ectopic outgrowth. Proc Natl Acad Sci U S A. 2016;113(20):E2852-60.
- Grooms NWF, et al. Expression of thioredoxin-1 in the ASJ neuron corresponds with and enhances intrinsic regenerative capacity under lesion conditioning in C. elegans. FEBS Lett. 2023;597(14):1880-93.
- Wang YL, et al. Widefield targeted illumination microscopy enables optically-sectioned, motion-resilient imaging of neuronal fibers and their dynamics. Laser Photon Rev. 2025;19(24):e01980.
- Ghaemi R, Rezai P, Nejad FR, Selvaganapathy PR. Characterization of microfluidic clamps for immobilizing and imaging of Drosophila melanogaster larva’s central nervous system. Biomicrofluidics. 2017;11(3):034113.
- Bauer B, Mally A, Liedtke D. Zebrafish embryos and larvae as alternative animal models for toxicity testing. Int J Mol Sci. 2021;22(24):13417.
- Ho VWS, et al. Systems-level quantification of division timing reveals a common genetic architecture controlling asynchrony and fate asymmetry. Mol Syst Biol. 2015;11(6):MSB145857.
- Packer JS, et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 2019;365(6459):eaax1971.
- Bao Z, et al. Automated cell lineage tracing in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 2006;103(8):2707-12.
- Katzman B, Tang D, Santella A, Bao Z. AceTree: a major update and case study in the long term maintenance of open-source scientific software. BMC Bioinform. 2018;19(1):121.
- Cao J, et al. Establishment of a morphological atlas of the Caenorhabditis elegans embryo using deep-learning-based 4D segmentation. Nat Commun. 2020;11(1):6254.
- Guan G, et al. Cell lineage-resolved embryonic morphological map reveals signaling associated with cell fate and size asymmetry. Nat Commun. 2025;16(1):3700.
- Guan G, et al. EmbSAM: cell boundary localization and Segment Anything Model for fast images of developing embryos. Commun Biol. 2026;9(1):8.
- Goehring NW, et al. Polarization of PAR proteins by advective triggering of a pattern-forming system. Science. 2011;334(6059):1137-41.
- Zhang H, et al. Vesicular sorting controls the polarity of expanding membranes in the C. elegans intestine. Worm. 2013;2(1):e23702.
- Zhang H, et al. Clathrin and AP-1 regulate apical polarity and lumen formation during C. elegans tubulogenesis. Development. 2012;139(11):2071-83.
- Kajita A, Yamamura M, Kohara Y. Computer simulation of the cellular arrangement using physical model in early cleavage of the nematode Caenorhabditis elegans. Bioinformatics. 2003;19(6):704-16.
- Zhang H, et al. Apicobasal domain identities of expanding tubular membranes depend on glycosphingolipid biosynthesis. Nat Cell Biol. 2011;13(10):1189-201.
- Pimpale LG, Middelkoop TC, Mietke A, Grill SW. Cell lineage-dependent chiral actomyosin flows drive cellular rearrangements in early Caenorhabditis elegans development. eLife. 2020;9:e54930.
- Hench J, Henriksson J, Lüppert M, Bürglin TR. Spatio-temporal reference model of Caenorhabditis elegans embryogenesis with cell contact maps. Dev Biol. 2009;333(1):1-13.
- Richards JL, et al. A quantitative model of normal Caenorhabditis elegans embryogenesis and its disruption after stress. Dev Biol. 2013;374(1):12-23.
- Moore JL, Du Z, Bao Z. Systematic quantification of developmental phenotypes at single-cell resolution during embryogenesis. Development. 2013;140(15):3266-74.
- Wong MK, et al. Timing of tissue-specific cell division requires a differential onset of zygotic transcription during metazoan embryogenesis. J Biol Chem. 2016;291(24):12501-13.
重印与许可
本文已发表
视频即将推出