本文描述了两种无接触共培养方法,用于定性和定量评估真菌在种间相互作用过程中的形态学反应。该实验方案以念珠菌属种间相互作用检测为例,展示了内在因素如何影响菌丝生长。这些方法可轻松适用于研究多种生物之间的微生物种间通讯。
本文内容
摘要
摘要
微生物群落中,细胞行为和形态通常受到多种细胞内和细胞外因素的影响。目前可用于研究微生物间通讯的方法可能较为繁琐,且/或需要专门的设备与专业技术。 本文介绍了两种互补的非接触共培养方法:膜插件培养板共培养实验和基于无细胞上清液(CFS)的实验方法,二者均以形态学转变作为可测量的响应指标,用于探究特定种间相互作用中各类因素的作用。膜插件培养板系统可在允许细胞外分子扩散的同时,实现物理分离的物种之间的实时相互作用。相比之下,基于CFS的实验方法则为评估对条件培养基的响应提供了一种简化且可扩展的途径。本文提供的实验方案包括培养物制备、条件上清液制备、实验设置、显微观察、图像采集、使用Fiji进行定量形态计量分析以及统计学评估等标准化操作流程。本方案以真菌对内在和外在因素的形态学响应为例进行了验证。本文所述方法为研究微生物群落中新型相互作用提供了易于获取且可灵活调整的替代工具,并可进一步拓展用于探究群落中多物种共存的潜在机制。
引言
在自然和临床生态系统中,微生物通常存在于结构化的多微生物群落中,其内部和 种间 通信由复杂的网络所调控1。这些微生物群落利用多种化学信号(包括群体感应分子、挥发性有机物以及分泌型肽和蛋白质)来协调群体水平的行为2。解析这些通信动态至关重要,因为协同、竞争或捕食性的生态位相互作用会显著改变微生物的代谢、空间结构和应激适应能力3。在临床层面,相较于单一种群培养,这些多微生物网络(如双物种细菌-真菌或种间真菌-真菌群落)常表现出协同致病性、加速组织定植以及更高的抗微生物耐药性4,5。因此,阐明微生物通信的分子决定因素对于突破传统模型、开发可破坏群落稳定性的新型抗感染策略具有重要意义6。
为了剖析微生物相互作用的不同模式,研究人员采用多种实验体系,这些体系主要源自哺乳动物细胞生物学、免疫学和肿瘤学研究7,8,9。例如,直接接触共培养模型是研究 juxtacrine 信号传导及细胞间物理接触的标准方法10。类似的实验装置经适当改进后,也被用于研究微生物之间的物理相互作用,以理解种间抑制效应或对药物的响应9,11,12。然而,由于接触依赖性信号和可扩散信号均可能参与所观察到的反应,因此很难区分其潜在机制。尽管传统的基于接触的检测方法可提供空间信息,但其实验过程繁琐,且通常需要对菌株进行特异性标记,这对于非模式生物而言尤为耗时。相比之下,Transwell(膜插入式培养板)实验体系主要用于哺乳动物细胞研究,可有效区分接触依赖性信号与可扩散信号的贡献13,14,15,16。当细胞间通讯由分泌分子介导时,该方法尤为有效,能够实时分析细胞群体间的信号动态17。此外,无接触实验具有膜分离的优势,还可与计算模型相结合,动态追踪传统方法难以检测的微生物行为18。该策略偶尔也被用于同时研究不同细菌物种的发育动力学19。
相较于膜插件培养板检测,一种成本更低且通量更高的替代方法是基于无细胞上清液(CFS)或条件培养基的检测。该方法已知可用于再生医学和血管生物学领域,以分离分泌组,从而研究干细胞介导的组织修复和/或肿瘤诱导的血管生成20。类似地,在微生物研究中,CFS体系已被用于解析多微生物间的竞争关系。例如,细菌滤液(如 Pseudomonas aeruginosa 的酰基高丝氨酸内酯或 Lactobacillus 的代谢产物)已被用于调控真菌生物膜的成熟过程21,22。 近年来,微流控平台通过“器官芯片”技术实现了高保真的生理模拟23,24。尽管微流控系统已被用于同时检测微生物群落对其分泌物的响应,但其需要专用仪器和专业技术,可能无法在所有实验条件下广泛应用25,26,27。因此,在大多数情况下,膜插件培养板检测和基于CFS的检测仍是首选方法。选择其中哪一种方法取决于分泌分子的性质:若分泌分子不稳定(即半衰期短)且需要实时测定其活性,则膜插件培养板检测更为合适;反之,若分泌分子稳定且实验规模较大,则基于CFS的检测更具经济性。
本实验方案的主要目标是介绍一种逐步定性和定量追踪方法,用于评估形态学特征,使用膜插件培养板和CFS平台(图1)。本文以Candida albicans与Candida glabrata之间由分泌因子驱动的通讯为例进行了演示。此外,这些工具还可用于量化内在遗传变量(倍性及交配型位点状态)在暴露于分泌信号分子时对 C. albicans 菌丝绝对几何发育(长度、体积和直径)的影响。该已建立的实验方案提供了一个简单且经济的非接触式平台,适用于研究物种间信号动态。
方案
C. albicans 和 C. glabrata 均被归类为生物安全二级(BSL-2)的人类机会性病原体。所有实验操作必须在经过认证的生物安全柜内进行,并严格遵守良好的微生物操作规范(GMP)以及机构规定的 containment 程序。全程必须穿戴个人防护装备(PPE),包括实验服、双层手套和护目用具。所有被污染的耗材、塑料制品和液体培养物在最终处理前,必须经过验证的高压灭菌(121 °C,15 psi,20 分钟)或使用新配制的 10% 次氯酸钠溶液进行化学消毒(推荐参考:美国国立卫生研究院(NIH)2022 年废弃物处理指南)。本方法中使用的所有标准试剂、分析纯级化学品和设备均列于材料表中。表 1详细列出了真菌菌株的特性及其背景基因型。本研究中所用培养基及其成分列表见补充文件 1。
1. 细胞游离上清液(CFS)的制备
- 培养物的建立与孵育
- 使用无菌塑料接种环挑取一个孤立的单菌落 C. glabrata CBS138 新鲜培养于 葡萄糖最低培养基(GMM)琼脂平板28将菌落接种至含有10 mL标准酵母胨葡萄糖(YPD)液体培养基(1% w/v 酵母提取物,2% w/v 蛋白胨,2% w/v D-葡萄糖)的无菌玻璃试管中29.
- 将试管固定于轨道摇床培养箱中,在恒定温度下培养菌液 37 °C 在200 rpm条件下持续振荡18小时。
- 通过检测光密度(OD600)处于12.0至14.0的稳定范围内。在显微镜下观察细胞,确认细胞呈酵母形态且无污染。此发育窗口期对于确保稳定的胞外分泌组分充分积累至关重要。
- 细胞分离与过滤
- 无菌转移18 h C. glabrata 将液体培养物转移至无菌的15 mL锥形聚丙烯离心管中。
- 平衡试管,并在5,000 x g 在严格控制的室温下持续 5 分钟 25 °C 将生物质压缩成紧密的颗粒。
- 将粗制液体上清液倾析至一个洁净无菌的20 mL塑料注射器中。小心地将注射器连接至无菌 0.22 µm 聚醚砜(PES)低蛋白吸附膜滤器
- 对液体施加稳定的机械压力,使其通过聚醚砜(PES)滤膜,收集至无菌的15 mL离心管中,制备工作用无细胞上清液(CFS)。若过滤过程中感到阻力,切勿施加过大的压力,以免导致滤膜破裂;此时应更换新的滤膜进行过滤。
注意:不要将 freshly harvested CFS 置于快速冻融循环中,或低于指定温度的储存条件下 4 °C 在建立检测体系之前,由于低温沉淀可能使低丰度蛋白质因子失稳。 - 若直接进行配套的膜插件培养板共培养实验(步骤 4),请将目标压缩细胞沉淀保留在初始收集管中。
2. 准备 白色念珠菌 用于菌丝诱导实验的接种物
- 接种物的制备与维持
- 直接从保存于 -80 °C 的长期甘油主培养物中取出目标 C. albicans 菌株(基因型参见 表1),在固体 GMM 平板(0.67% w/v 无氨基酸酵母氮源基础培养基,2% w/v D-葡萄糖,2% w/v 琼脂)上划线接种,以获得工作用菌落。
- 对于二倍体菌株(SC5314、RBY1132、RBY1133):挑取单个菌落接种至 5 mL 液体 GMM 培养基中。在 37 °C、200 rpm 持续振荡条件下培养 12 小时。
注意:使用最小培养基(GMM)进行二倍体细胞的过夜培养,对于抑制在营养丰富培养基中常见的自发性自丝状化至关重要。 - 对于单倍体菌株(GZY896、GZY803):挑取单个分离菌落接种至 5 mL 添加了 0.1 mg/mL 尿苷的液体 YPD 培养基(YPDU)中。在 37 °C、200 rpm 持续振荡条件下培养 12 小时。
- 为保持形态稳定性并确保实验一致性,液体传代次数应限制在连续不超过三次。若起始对照菌群中自丝状化或假菌丝聚集现象超过 2%,则应弃用该菌株,并从主冻存菌种中重新复苏新鲜细胞。
- 标准化处理
- 将过夜培养的液体培养物 1 mL 转移至无菌比色皿中。使用校准的紫外-可见分光光度计,在 600 nm 处精确测定吸光度(OD600),以新鲜 GMM 或 YPDU 培养基作为空白对照。
注意:过夜液体培养物的 OD600(细胞密度),尤其是 YPDU 中培养的样品,可能超出分光光度计的检测线性范围。在此情况下,应在测定前对培养物进行适当稀释(10–20 倍)。 - 计算生成标准化目标悬液所需的浓菌液体积。在无菌离心管中,用预热至 37 °C 的液体 GMM 稀释菌液,制备 1 mL 工作用接种液,调整其最终绝对 OD600 至 0.1。
- 将过夜培养的液体培养物 1 mL 转移至无菌比色皿中。使用校准的紫外-可见分光光度计,在 600 nm 处精确测定吸光度(OD600),以新鲜 GMM 或 YPDU 培养基作为空白对照。
基于CFS的菌丝诱导实验(96孔板格式)
- 实验设置
- 取一个无菌、光学透明、平底的96孔聚苯乙烯微孔板。
- 检测孔设置:将新近过滤的 C. glabrata CFS(来自步骤1.2.4)45 µL 直接加入指定的检测孔中。再加入45 µL无菌GMM培养基(若检测单倍体目标菌株,则使用YPDU培养基)。
- 阴性培养基对照:在对照孔中加入90 µL GMM培养基。另外,在另一个单独的孔中,将45 µL无菌GMM培养基与45 µL未接种的空白YPD培养基混合,以监测基础背景培养基成分。
- 阳性诱导对照:在孔中加入80 µL GMM培养基和10 µL胎牛血清(FBS;终浓度为10% v/v)。
- 接种:将标准化的 C. albicans 工作接种液(来自步骤2.2.2,OD600 = 0.1)准确吸取10 µL,加入所有实验组和对照组孔中含90 µL适当培养基的溶液中。
- 培养与数据采集
- 用配套的塑料盖盖好96孔板,以减少蒸发。将板置于37 °C恒温静置培养箱中,精确培养3小时。在此期间避免移动或振荡板,以确保菌丝稳定形成。
- 培养结束后,将多孔板垂直放置于配备明场光学系统和集成数字CCD相机模块的倒置光学显微镜载物台上。
- 对每个孔至少五个不同的视野,系统性地采集自动或手动图像。
- 每种条件需设置明确的技术重复(双份),并在不同日期至少进行三次完全独立的生物学重复实验。
4. 膜插件培养板共培养实验
- 基底侧(下部)区室设置
- 取一个无菌的24孔组织培养载体板。
- 将经标准化处理、OD600 = 0.1 的 C. albicans 细胞悬液(来自步骤2.2.2)准确加入1.0 mL至下部基底侧区室中。
- 管腔侧(上部)区室设置
- 取出在步骤1.2.5中保留的 C. glabrata 细胞沉淀。将沉淀重悬于1 mL无菌GMM培养基中,以5000 × g 离心3分钟,弃去上清液。重复该洗涤步骤两次,以去除残留的营养成分或旧培养基组分。
- 将最终洗涤后的沉淀重悬于新鲜GMM培养基中,并调节其最终光密度至高浓度值OD600 = 5.0。
- 使用无菌镊子夹取一个带有核孔径为0.4 µm的聚碳酸酯膜的无菌膜插件,平稳地将其插入已装有液体的24孔板孔中,并将插件上部的凸缘固定在孔板中间的卡槽位置。
- 准确向顶部管腔侧插件区室中加入750 µL浓度为OD600 = 5.0 的浓缩 C. glabrata 培养物。
注意:在整个膜屏障两侧维持约1:50(C. albicans 与 C. glabrata)的初始细胞比例,可在避免局部反馈伪影的同时,确保信号配体的充分积累。
- 孵育与成像
- 将组装好的带膜插件的24孔板盖好,在37 °C条件下静置孵育 或以30 rpm轻微振荡孵育,精确孵育3小时。
- 孵育结束后,使用无菌镊子小心提起并取出每个孔中的上部管腔侧插件,将插件丢弃至生物危害废物容器中。
注意:成像前必须完全移除上部插件膜,以消除高分辨率显微镜检测过程中可能出现的折射阴影、光散射模式及背景网格伪影。 - 将24孔板置于倒置显微镜载物台上进行形态学评估。本研究中使用的倒置显微镜配备有10x/0.30NA、20x/0.50NA或超长工作距离40x/0.60NA物镜,并配有微分干涉(DIC)滤光片组。
5. 高分辨率显微镜与数字图像分析
- 数字图像采集
- 使用10倍低倍物镜扫描孔板底部,以验证细胞分布的均匀性,并标记任何局部追踪错误或异常的细胞聚集现象。
- 使用校准的20倍物镜至少采集10个不同的视野图像。这些图像构成追踪标准丝状结构数量和种群分布的核心数据集。
- 使用40倍超长工作距离物镜配置拍摄显微照片,用于精细的表型分析及细胞边界的详细测量。保存所有原始图像文件。
- 定量表型分析流程(Fiji)
- 启动 Fiji (版本 1.54p 或更高)处理软件。通过导航至目标显微照片以打开该图像 文件 > 打开 或直接将文件拖入 Fiji 控制面板
- 菌丝长度追踪(L):在主界面中右键单击线条选择图标 Fiji 工具栏并选择 分段线工具 从下拉菜单中选择。将光标准确定位在运动的菌丝从母体酵母细胞壁边界伸出的交界处。
- 左键连续点击,沿菌丝的中央纵轴进行描迹,通过放置锚点来调整任何弯曲或转折,并将线条终止于其最顶端的尖端处。点击 测量 记录长度,单位为微米(µm)µm)。按压 Ctrl+M (Windows)或 Cmd+M (Mac OS)记录总长度(L),单位为微米(µm)µm结果窗口内
- 为避免对同一纤丝重复测量,可使用内置的“画笔工具”标记每个已完成的细胞。
- 母体酵母细胞分析:定位与先前追踪的菌丝状菌丝相对应的附着母体酵母细胞体。使用 分段线工具 沿细胞体的最长轴画一条直线,测量其最大长轴(定义为变量‘a’),并执行 测量 命令
- 沿细胞体最宽的横向跨度画一条严格垂直于主轴的次级线,以测量其相应的垂直横轴(即短轴,定义为变量‘b’),并执行后续操作 测量 命令
- 计算母体酵母细胞的总体积(CV,单位为立方微米, µm3) 通过使用变量“a”和“b”的对数值,并应用长椭球体的标准几何模型计算:CV = 4/3 π ab2.
- 菌丝结构厚度(d):选择 分段线工具测量外壁之间的距离 即垂直于长度轴的直线。沿菌丝长度方向选取三个等距点进行测量,以考虑自然结构变异,并记录每次测量值。 通过 的 测量 命令
- 计算这三个不同数据点的算术平均值,以确定准确的平均厚度值(d)。将计算得到的平均直径值除以二,以确定结构变量半径(r = d/2)。
- 计算菌丝细丝的总体积(HV,以 µm3)通过将菌丝视为无分支的规则几何圆柱体进行处理。将追踪得到的菌丝长度(L)和推导出的结构半径(r)应用于以下计算模型:HV = π r2 L.
6. 统计学设计
- 生物学重复
- 在至少三次独立的生物学重复实验中,使用新鲜制备的独立起始培养物进行所有单个测试布局。
- 每次生物学重复实验中,每种条件至少设置两个相同的重复技术孔,以消除孔边缘效应或加样误差的影响。
- 定义实验单位:为确保统计学有效性并避免人为误差,每个实验至少应包含三次技术重复。在同一孔内测量的单个细胞属于技术性子样本;同理,三个这样的孔即对应三次技术重复。同样,建议每个样本进行三次生物学重复(独立实验)(N = 3)。
- 在一次生物学实验的每个不同条件下,于多个视野中随机选取50至100个单个细胞进行测量。针对每个生物学重复,计算这些细胞测量值的平均值或中位数。所有后续的比较性统计检验均应使用来自生物学重复的平均值或中位数值。
- 分布分析与假设检验
- 在采用参数检验方法(例如均值比较)之前,使用Shapiro-Wilk检验或D’Agostino-Pearson正态性检验对生物学重复数据集进行正态性评估。
- 双组比较:当将一个实验组直接与一个对照背景组(例如,野生型)进行比较时 C. albicans 纯培养基中的生长与分离培养中的生长 C. glabrata 慢性疲劳综合征(CFS),采用非配对双尾 t 检验 t检验,前提是数据集符合正态分布。
- 如果数据显著偏离正态分布,则应改用非参数检验方法,例如 Mann-Whitney U 检验(Wilcoxon 秩和检验),该方法通过比较排序后数据的中位数进行分析,不依赖于数据的绝对数值。非参数检验还具有对异常值不敏感的优点。
- 多组评估:在同时评估三个或更多遗传品系或处理组合时(例如,追踪不同遗传背景下的形态学变异) MATa/a, MATα/α,以及 MATa/α 菌株),进行标准的单因素方差分析(One-Way ANOVA),随后采用Tukey事后检验进行多组两两比较。若正态性检验不满足,则改用非参数的Kruskal-Wallis检验,并随后进行Dunn's事后多重比较分析。
- 图形表示与数据可视化:使用统计与绘图软件完成所有统计分析及图形绘制。
注意:可使用功能相当的软件进行统计分析并绘制图形。膜插件培养板和CFS检测的数据可用柱状散点图、抖动小提琴图或抖动箱线图表示,这些图形可展示中位数(中央线)和95%置信区间(本研究所用方法),或中位数(中央线)以及第一和第三四分位数(分别为底部线和顶部线)。 - 将正式统计显著性的阈值设定为 α 水平 p < 0.05。所有生成的数据图和表中均应保持常规的符号标注方式。例如:ns: p > 0.05; *: p < 0.05; **: p < 0.01; ***: p < 0.001; ****: p < 0.0001.
结果
用于研究物种间相互作用的无接触共培养实验
可溶性、低丰度的胞外信号分子通常在多种微生物共存期间介导关键的通讯事件。本研究采用两种无接触的基于细胞的实验装置,用于评估白色念珠菌(C. albicans)与近平滑念珠菌(C. glabrata)之间的相互作用模式,同时避免细胞间直接的物理接触。第一种配置使用集成膜插件培养板系统,两种菌群被一层惰性的、孔径为0.4 µm的多孔聚碳酸酯膜物理分隔,允许分泌分子在屏障两侧自由双向扩散。第二种装置则监测白色念珠菌(C. albicans)酵母细胞在微孔板中的生长情况,微孔板中所含培养基为取自对数后期近平滑念珠菌(C. glabrata)培养物的无细胞上清液(CgCFS)。
与之前的筛选结果一致30野生型杂合二倍体 C. albicans 细胞(SC5314)在响应任一刺激时均 readily 形成真正的菌丝 C. glabrata 由膜插件屏障分离的细胞或经过滤的 CgCFS。而保持在纯阴性对照培养基(GMM 或 YPD)中的细胞则主要维持在出芽酵母和假菌丝形态图 2A)。比较分析表明两种检测方法的设置具有一致性。在所有结构参数(包括纤维长度、体积和厚度)方面,两种检测均得到可比的结果。图2)。如果形态学参数的差异满足以下条件,则认为具有显著性: p来自相应统计检验的 p 值,经多重比较的事后检验校正后,均以 0.05 为检验水准。这些结果表明 C. albicans 细胞在由诱导产生的真菌丝长度上无显著差异, C. glabrata 膜插件培养板装置中的细胞(39.66 µm ± 6.81 µm)或暴露于过滤后的 Cg慢性疲劳综合征(CFS)37.13 µm ± 6.50 µm; 图2B)。类似地,在膜插件培养板系统中,这些诱导形成的丝状结构的体积(112.10 µm3± 22.59 µm3)与那些在 CgCFS 条件培养基(109.78 µm3± 34.69 µm3; 图2C)。此外,菌丝直径的测量结果证实,两种实验条件下菌丝平均厚度保持一致,数值为1.89 ± 0.10 µm 用于膜插件式培养板的构型 1.92 µm ± 0.23 µm 对于 CgCFS 治疗(图 2D).
倍性状态和交配型构型的变化 体外 形态学维度
在不同的真菌模式系统中,已确立了倍性水平和交配型位点结构在调控二型性转换中的作用。在此,应用分析追踪流程对一组单倍体(MATa 或 MATα)和二倍体(MATa/a、MATα/α 或 MATa/α)白色念珠菌(C. albicans)菌株的菌丝化指标进行了定量分析,具体包括菌丝长度、结构体积、菌丝厚度以及相应母体酵母细胞的体积。
结构分析显示,与纯合二倍体 MATa/a 菌株相比,纯合二倍体 alpha 菌株(MATα/α)在暴露于诱导性 CgCFS 分泌组或阳性血清对照后,形成的菌丝具有显著更长的轴长(分别为 45.56 µm ± 9.24 µm 和 46.62 µm ± 9.07 µm)和更大的体积(分别为 125.24 µm3 ± 39.94 µm3 和 119.45 µm3 ± 37.32 µm3)(图 3A,C)。尽管白色念珠菌(C. albicans)的标准临床分离株主要以杂合二倍体形式存在,但在诱导后(尤其是经血清诱导),参考菌株 MATa/α 的菌丝长度和体积仍大于 MATa/a 菌株。然而,其菌丝长度和体积显著小于纯合 MATα/α 菌株(图 3B,D)。
同时,单倍体菌株表现出相反的模式,其中单倍体 MATa 与单倍体相比,该菌株的菌丝长度显著增加 MATα 在两种诱导条件下均表现出菌株Cg慢性疲劳综合征: 22.06 µm ± 5.41 µm 与 17.58 µm ± 4.12 µm;血清: 23.71 µm ± 6.59 µm 与 21.00 µm ± 5.29 µm; 图 4A)。有趣的是,在单倍体背景下,长度的增加也转化为菌丝体积的增加(38.84 µm3 ± 19.58 µm3 与 34.25 µm3 ± 19.62 µm3仅在响应时 Cg慢性疲劳综合征(CFS)图4B)。这些初始 体外 检测结果表明,倍性状态与交配型位点构型之间存在复杂的相互作用,提示二者可能 MATa 和 MATα 不同位点对菌丝形成动态的贡献可能各异。
为了研究这些结构指标在合并数据集间的统计学关系,对所有检测的倍性及交配型变异体进行了Spearman秩相关(ρ)和Pearson线性回归(R2)分析。在所有分析的配对中均观察到正相关关系:菌丝长度与菌丝体积、菌丝长度与菌丝厚度、菌丝长度与母细胞体积、总菌丝体积与母酵母细胞体积之间的关系(图5、补充表1和补充表2)。
菌丝长度与计算得到的菌丝体积之间表现出最强的相关性(ρ = 0.91;图 5A)。相反,母体酵母细胞的起始体积与新生菌丝体积之间的相关性最弱(ρ = 0.63;图 5C)。此外,菌丝厚度与菌丝长度的相关性不如菌丝体积与菌丝长度的相关性强(图 5A,D)。母细胞体积、菌丝长度和菌丝厚度在相关性上无统计学上的显著差异(图 5B,D)。这些几何分布特征表明,较大的初始母体酵母细胞体积未必会导致更长的菌丝或更高的菌丝体积。
综上所述,这些结果表明,膜插件培养板和基于无细胞上清液(CFS)的检测方法均能用于在无任何物理接触的条件下可视化并量化白色念珠菌(C. albicans)的形态发生变异。本实验方案所产生的数据揭示了不同倍性背景和交配型构型下存在的多种形态学特征。这些非接触式检测系统提供了一种灵活且可扩展的方法,可适用于研究多种微生物组合之间的种间信号传导动态。
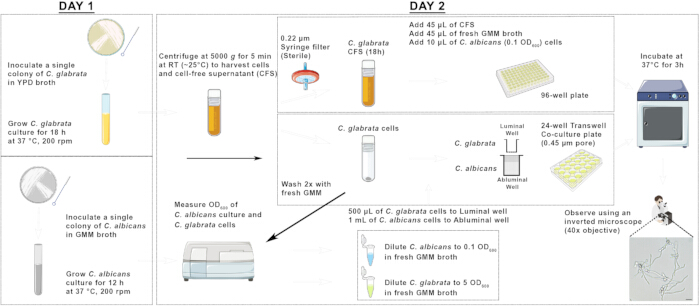
图 1: Candida 物种中基于膜插件培养板共培养及无细胞上清液(CFS)的菌丝诱导实验示意图。 请点击此处查看该图的放大版本。
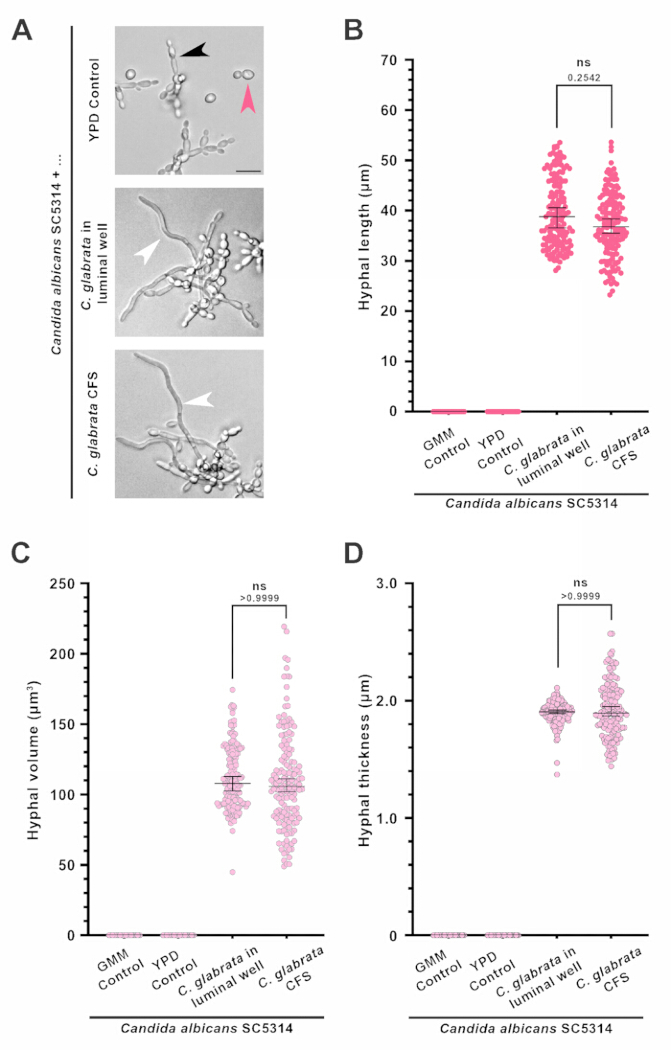
图2膜插件培养板与基于CFS的非接触式检测中观察到的菌丝形态比较 (A代表性明场显微图像,展示形态学反应 C. albicans YPD(对照) C. glabrata 在膜插片培养板装置中,或加入经条件培养基处理的培养基中 C. glabrata 无细胞上清液(CFS)。粉色、黑色和白色箭头分别指示酵母形态、假菌丝和真菌丝。比例尺, 10 µm菌丝长度(B),菌丝体积(C)以及菌丝厚度(D) 杂合二倍体 白色念珠菌 菌株(SC5314)在响应中观察到的现象 C. glabrata 膜插件培养板中的细胞或 C. glabrata 慢性疲劳综合征。数据来自三次独立的生物学实验,每组 n = 50 个细胞,表示为中位数 ± 95% 置信区间。ns,无显著性差异: p > 0.05. 请点击此处以查看此图的放大版本。
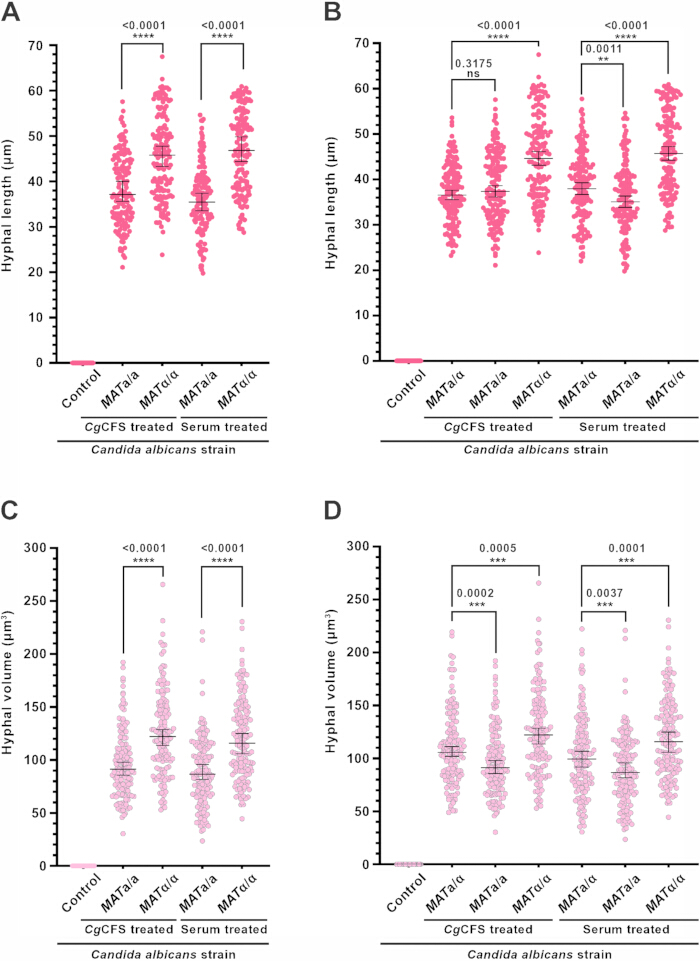
图 3:交配型和杂合性对二倍体 C. albicans 菌丝形态具有显著影响。 图中显示了在指定诱导分子作用下,C. albicans 纯合二倍体之间(A)以及杂合与纯合二倍体之间(B)的菌丝长度比较。同样地,图中还展示了在上述诱导分子作用下,纯合二倍体之间(C)以及杂合与纯合二倍体之间(D)的菌丝体积比较。对照组:YPD,非诱导菌丝形成的培养基对照。数据来自三次独立的生物学实验,每组 n = 50 个细胞,表示为中位数 ± 95% 置信区间。图顶部标注的数值为通过 Wilcoxon 秩和检验比较得出的 p 值。**:p < 0.01,***:p < 0.001,****:p < 0.0001,具有统计学显著性;ns,无显著性:p > 0.05。 请点击此处查看该图的放大版本。
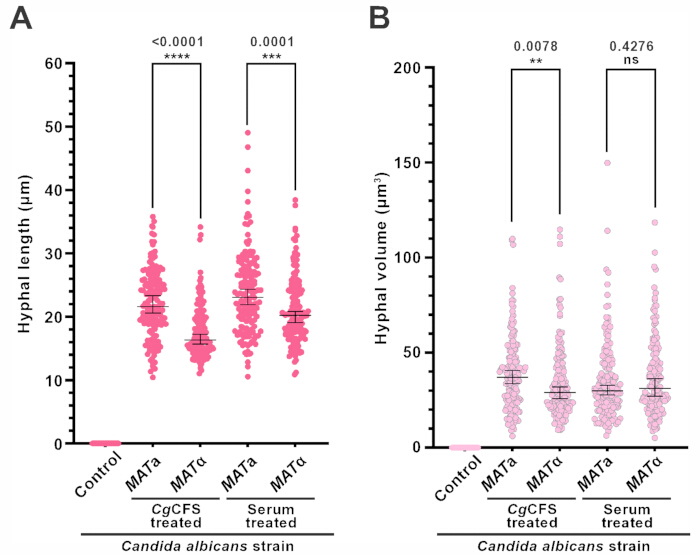
图4单倍体中的菌丝特征 C. albicans 响应不同的分子诱导剂。 图中显示了菌丝长度(A)以及菌丝体积(B单倍体中的) C. albicans 菌株在指定诱导剂作用下的反应。对照:YPD,非菌丝诱导培养基对照。数据代表三次独立生物学实验的中位数 ± 95% 置信区间,每次实验 n = 50 个细胞。标示数字表示 p由Wilcoxon秩和检验确定的p值。**: p < 0.01, ***: p < 0.001, ****: p < 0.0001,具有统计学显著性;ns,无显著性差异: p > 0.05. 请点击此处以查看此图的放大版本。
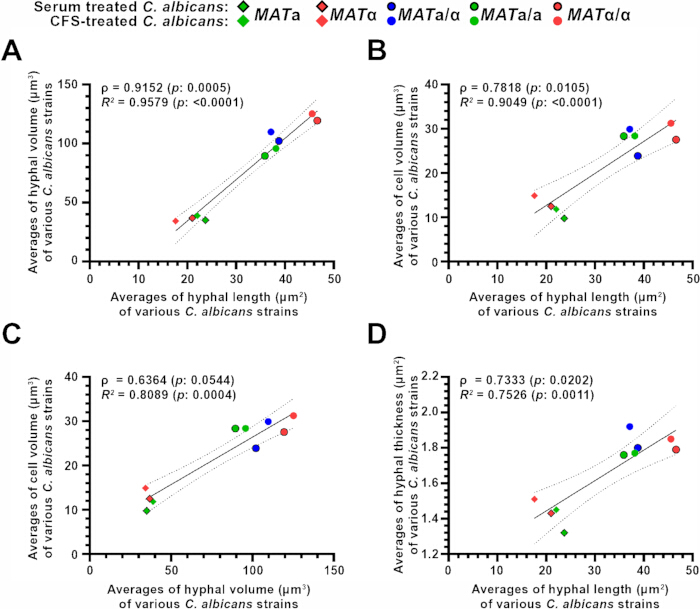
图 5:白色念珠菌(C. albicans)倍性与形态参数之间的相关性。 图中显示了本研究中所用形态参数之间的Spearman相关性及线性回归分析结果,分别为菌丝体积与菌丝长度(A)、细胞体积与菌丝长度(B)、细胞体积与菌丝体积(C),以及菌丝厚度与菌丝长度(D)。ρ:Spearman相关系数;R2:线性回归分析的决定系数;p:p值。 请点击此处查看该图的高清版本。
| 菌株 | 物种 | 倍性 | 基因型 | 来源 |
| CBS138 | Candida glabrata | 单倍体 (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | 二倍体 (2n) | 杂合型 (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | 二倍体 (2n) | 纯合型 (MATa/a);arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007)。 |
| RBY1133 | Candida albicans | 二倍体 (2n) | 纯合型 (MATα/α);arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | 单倍体 (1n) | 纯合型 (MATa);ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013)。 |
| GZY803 | Candida albicans | 单倍体 (1n) | 纯合型 (MATα);his4 ura3Δ::HIS4 |
表1:菌株 白色念珠菌 和 白色念珠菌 本研究中使用。 该表格列出了在无接触膜插件培养板共培养和基于无细胞上清液(CFS)检测中所评估的真菌菌株的编号、明确基因型、倍性状态以及交配型纯合性。
补充表1: 各种统计分析所得到的数据 白色念珠菌 形态学参数. 请点击此处下载此文件。
补充表2: 各种生物学重复的原始数值 白色念珠菌 本研究中评估的形态学参数.请点击此处下载此文件。
补充文件 1: 本研究中所用培养基及其成分列表。请点击此处下载该文件。
讨论
先前的研究利用膜插件培养板和基于无细胞上清液(CFS)的检测方法表明,C. albicans 会对 C. glabrata 细胞或其无细胞上清液(CFS)产生菌丝。然而,其他酵母菌(如 Saccharomyces cerevisiae 和 Candida dubliniensis)则不会诱导该反应30。此外,这种菌丝形成反应不仅限于 C. albicans SC5314 实验室参考菌株,也在其他基因组背景(包括临床分离株 WUM5A)中出现30。在本实验方案中,基于上述发现建立了一套标准化的工作流程,用于定量三种形态学指标:菌丝长度、菌丝体积和菌丝厚度。此外,利用这些形态学参数评估了倍性变化以及交配型位点状态对 C. albicans 在响应分泌型诱导分子时形态特征的影响。
本文所述的非接触式方法为可视化和分析可溶性跨物种信号因子的形态计量学结果提供了一个简单的实验框架。膜插件培养板允许活性培养物之间双向扩散,而基于无细胞上清液(CFS)的检测方法则具有可扩展性,因为所需的诱导成分可独立于下游靶标培养物进行收集。在膜插件培养板实验体系中,需维持约1:50(C. albicans 与 C. glabrata 的比例)以确保检测的一致性。该浓度梯度可确保可溶性诱导分子在膜屏障间有足够通量,同时避免内源性群体感应抑制剂(如法尼醇)积累超过阈值,后者可能抑制 C. albicans 的菌丝化动力学31,32。类似地,在基于CFS的检测中,一个关键步骤是 C. glabrata 源培养物需经过18小时的孵育,以使其均匀达到后期静止生长期。若 C. glabrata 培养物的孵育时间少于12小时或多于24小时,则所收集的CFS中本研究所关注的特定诱导分子浓度可能未达最佳水平,导致菌丝诱导效果不理想。对于任何新的实验目标和/或新的微生物物种组合,收集CFS的合适生长阶段或培养物比例均需进行标准化。
为最大限度地提高不同实验室条件下检测的可重复性,建议采用以下关键实验步骤优化措施。建议使用葡萄糖最低培养基(Glucose Minimal Medium, GMM)对所有二倍体白色念珠菌(C. albicans)菌株进行过夜培养。使用GMM可抑制在营养丰富的YPD培养基中常观察到的背景性自发菌丝形成。其他研究中也观察到此类自发菌丝化现象,但其潜在机制尚不明确33。此外,建议在图像采集前将聚碳酸酯膜插入物完全物理移除,以消除光散射和光学畸变,避免其对高倍明场显微镜观察造成干扰。
尽管这些无接触式共培养装置有助于区分可溶性信号组分的作用,但其存在特定的实验挑战。例如,无接触式实验可能因操作不当导致膜破裂,从而带来微生物交叉污染的微小风险。因此,在定位移液器吸头时应格外注意,取样过程中应确保吸头接触插入室的腔壁,而非直接接触膜表面。此外,若使用孔径过大(不合适的)的插入膜,也可能导致不同腔室间的物理交叉污染,这一问题可通过选用具有合适膜孔径的插入装置轻松解决。真菌过度生长或大量生物膜沉积可能覆盖多孔膜表面,可通过将初始接种浓度限制在 OD600 = 0.1 并避免培养超过 12 小时来避免。另外,微生物在装置孔内的分布可能不均匀,常聚集或附着在膜附近,这可能导致光密度测量结果出现意外偏差。此外,由于这些系统在物理上分隔了两个菌群,因此无法模拟或评估依赖于细胞间直接物理接触的相互作用,例如多物种生物膜的成熟过程、机械性共聚集,或由细胞壁锚定黏附素介导的信号传导。尽管基于培养板的实验能够有效提供早期菌丝形成动力学的终点快照(在 3 小时时),但其无法捕捉长期的生长动态或空间行为特征。对于需要长时间连续实时监测的研究人员而言,专用的微流控灌注通道或自动化活细胞成像腔室可能是更合适的替代方案。
细胞几何形态与代谢效率密切相关,其中表面积与体积之比(SA/V)是影响营养物质获取和细胞内运输的关键因素。在双相性及丝状真菌中,转变为细长的菌丝形态是一种结构上的适应机制,用以维持优化的SA/V比值。这使得营养物质能够沿延伸的菌丝壁进行分布式吸收,同时维持菌丝顶端定向的代谢过程34,35,36,37。然而,本研究表明,形态计量学上的缩放关系在不同倍性状态和交配型位点构型之间并非呈均匀的正比关系。
生成的形态测量数据集 通过 该追踪方案揭示了与倍性相关的明显结构比例变化趋势,单倍体品系在所有几何参数上的绝对值均持续低于相应的二倍体菌株(图5)。在二倍体背景下,纯合的 MATα/α 构型表现出比对照组更显著的菌丝化动力学(长度和体积)增强 MATa/a 或 MATa/α 这些条件下的菌株 体外 条件。鉴于菌丝增强通常与穿透能力提高相关,目前尚不清楚为何临床分离株的 C. albicans 主要以杂合二倍体形式分离获得(MATa/α)。在免疫功能健全的宿主中,杂合状态可能为长期共生定植提供更广泛的适应性优势。换句话说,其结构特征 MATa/α 形态型已优化以抵御宿主免疫监视。因此,未来的研究应利用这些标准化的共培养系统,在不同选择压力下系统评估不同交配型纯合子的相对适应性。
已有研究表明,液泡形态、分裂-融合动态以及结构扩张在调控延长中真菌菌丝的内部体积和膨压方面发挥着重要作用。例如,在水稻稻瘟病病原菌Magnaporthe oryzae中,细长的营养菌丝与膨大的侵入性结构之间的显著转变,与液泡组织方式的变化密切相关38,39,40。然而,本实验方案并未直接监测C. albicans菌丝形成过程中的液泡动态,将这些内部细胞器的变化与整体结构体积关联起来,是未来研究中一个具有重要意义的方向。此外,还需进一步研究以明确为何特定真菌来源的分泌组成分会比血清等宿主来源的化学诱导剂引发不同的形态扩展动力学。
本方案中详述的无接触共培养方法可适用于研究物种间及跨生物界相互作用,例如机会性细菌群体与双相真菌之间的信号传导动态。此外,由于该96孔和24孔体系具有可扩展性,这一定量平台可用于化学筛选,例如鉴定小分子抑制剂或新型抗真菌化合物,以选择性阻断分泌组刺激的菌丝化通路,同时不直接影响细胞的基础存活率。
披露
作者声明不存在任何竞争性或冲突性利益。
致谢
本工作由授予RNP的DBT-Wellcome Trust印度联盟中级研究员项目(IA/I/19/1/504294)资助。KBSS获得了艾哈迈达巴德大学特别研究资助(AU/SRG/SAS/20-21/07_KS_03.25)以及SERB核心研究资助(URBSASE23A6/SERB/23-24/KS_02.27)的支持。图1中使用的图标改编自Servier医学艺术(https://smart.servier.com/),根据知识共享署名4.0许可(https://creativecommons.org/licenses/by/4.0/)授权,以及来自美国国立卫生研究院(NIH)下属的美国国家过敏与传染病研究所(NIAID)BioArt资源库。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.22 μm PES 注射器滤器 | Millipore (Merck) | SLGPR33RS | |
| 琼脂 | HiMedia | GRM666 | |
| 葡萄糖 | HiMedia | GRM016 | |
| Nunc 24孔细胞培养插件载板(0.4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite 96孔多孔培养皿,细胞培养处理,平底 | Thermo Scientific | 130188 | |
| 蛋白胨 | HiMedia | RM005 | |
| 尿苷 | Sigma | U6381 | |
| 酵母提取物 | HiMedia | RM027 | |
| 酵母氮源基础,含硫酸铵,不含氨基酸 | HiMedia | M878 |
参考文献
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
重印与许可
本文已发表
视频即将推出