索拉非尼联合吉西他滨对 HepG2 细胞增殖具有初步的相加性抑制作用,并可引起 p-ERK 和 VEGF 表达的相应变化,同时抑制 NOD/SCID 小鼠肝肿瘤的生长。
研究文章
索拉非尼与吉西他滨联合治疗在HepG2细胞及NOD/SCID小鼠异种移植模型中的评估:一项初步研究
* These authors contributed equally
本文内容
摘要
摘要
由于药物耐药性和治疗选择有限,肝癌仍然是导致癌症相关死亡的主要原因。迫切需要探索新的治疗策略以改善患者预后。本初步研究提出了一项评估索拉非尼与吉西他滨联合用药在肝癌中潜在作用及其作用机制的实验方案。采用肝癌细胞系 HepG2,并建立非肥胖型糖尿病/重度联合免疫缺陷(NOD/SCID)小鼠异种移植模型。文中演示了关键实验步骤,包括:(1)HepG2 细胞培养及药物处理;(2)MTT 实验的设置、孵育与吸光度读数;(3)ERK 和 p-ERK 蛋白的提取、SDS-PAGE 电泳、转膜及免疫印迹分析;(4)在 NOD/SCID 小鼠中建立皮下异种移植瘤;(5)肿瘤测量与体积计算;以及(6)对肿瘤组织切片进行 VEGF 免疫组化染色。同时提供了关键操作要点、故障排除建议和仪器参数说明。在 72 小时条件下,索拉非尼(3 µmol/L)与吉西他滨(10 µmol/L)联合用药的抑制率达到 71.23% ± 6.76%,q 值为 1.35,提示在此特定剂量组合和实验条件下具有 协同效应 。与对照组相比,联合治疗组表现出 p-ERK 表达降低、肿瘤体积减小以及 VEGF 免疫染色强度在定性上更低。这些数据表明 p-ERK 表达下调与观察到的抗增殖效应之间存在相关性,但尚未确立因果关系。在 HepG2 细胞及 NOD/SCID 小鼠异种移植模型中,索拉非尼与吉西他滨联用显示出初步的抗增殖潜力,并伴随 VEGF 表达下降;然而,由于未进行微血管密度或功能性血管分析,该结果尚不能构成抗血管生成活性的直接证据。本可重复的实验方案为在肝细胞癌(HCC)模型中评估药物组合提供了实用框架,也可适用于其他靶向治疗与化疗方案的组合研究,但在得出任何临床意义之前,仍需进一步开展机制研究和剂量验证实验。
引言
肝癌是最常见且致死率最高的癌症之一,也是增长速度最快的恶性肿瘤之一1,2尽管肝癌的发病率已呈下降趋势,但其总体疾病负担仍在持续增加。2022年全球流行病学数据显示,根据全球癌症观察站(GLOBOCAN)2022年在线数据库,肝癌的年龄标化发病率为每10万人15.0例,而年龄标化死亡率为每10万人26.7例,使其成为癌症相关死亡的第二大原因3目前,由于肝癌缺乏有效的治疗方法,且其发病隐匿,大多数患者在确诊后一年内死亡。索拉非尼是首个获批用于临床的多靶点激酶抑制剂,其靶点包括受体酪氨酸激酶,如表皮生长因子受体(EGFR)、血小板衍生生长因子受体(PDGFR)以及丝氨酸/苏氨酸激酶。4,5索拉非尼是一种口服多激酶抑制剂,通过靶向多种生长因子通路,在肝癌中发挥抗增殖和抗血管生成作用。历史上,索拉非尼是首个被美国食品药品监督管理局(FDA)批准用于晚期或不可切除肝癌患者的首选用全身治疗药物。6. 然而,目前晚期肝细胞癌(HCC)的一线治疗格局已显著扩展。当前推荐的治疗方案包括免疫检查点抑制剂联合疗法阿替利珠单抗联合贝伐珠单抗、仑伐替尼,以及双重免疫治疗组合度伐利尤单抗联合曲美木单抗等。尽管如此,索拉非尼仍是一种重要的一线治疗选择,尤其是在免疫治疗组合不易获得或存在禁忌证的地区。鉴于索拉非尼在肝癌治疗中的广泛应用,药物相关不良事件一直受到关注7在2006年至2023年美国食品药品监督管理局不良事件报告系统(FAERS)数据库分析中,索拉非尼的不良事件主要涉及消化系统、皮肤和皮下组织,以及感染和损伤等非特异性身体不适7. 尽管部分晚期肝癌患者可能从索拉非尼治疗中获益,但大多数患者最终会产生耐药性或治疗失败,导致预后不良8,9,10. 尽管索拉非尼已被用于治疗,但仅有约30%的肝细胞癌患者从中获益;此外,多数应答者常在6个月内产生耐药性。11参与索拉非尼耐药的分子通路包括细胞外信号调节激酶(ERK)/磷酸化ERK(p-ERK)、蛋白激酶B(Akt)、磷脂酰肌醇3-激酶(PI3K)/AKT/雷帕霉素哺乳动物靶蛋白(mTOR)、缺氧诱导因子1α (HIF-1α)/HIF-2α以及自噬相关通路,其中ERK/p-ERK在本研究中被特别强调并选为研究对象11吉西他滨是一种胞苷类似物,进入体内后可生成二氟胞苷二磷酸和二氟胞苷三磷酸,二者对DNA合成具有不同的抑制作用12在肝胆系统恶性肿瘤中,吉西他滨已被评估作为联合化疗方案的组成部分。然而,临床报道显示吉西他滨也更容易产生耐药性,从而限制了其治疗效果12,13. 因此,有效且高效地确定最佳药物治疗方案极具挑战性。最近的研究表明,基于一种新型肿瘤干性生物标志物预测,吉西他滨联合索拉非尼可能具有增强的治疗效果。14然而,据我们所知,尚无研究采用 HepG2 细胞及非肥胖型糖尿病/重度联合免疫缺陷(NOD/SCID)小鼠肝细胞癌异种移植模型,专门探讨该组合在肝癌中的作用。因此,尚缺乏直接验证索拉非尼与吉西他滨在肝癌中具有协同效应的实验依据。
本文所述实验方法虽被广泛使用,但极少以适合初入科研领域的研究人员进行重复操作的详细可视化逐步形式呈现。我们假设索拉非尼与吉西他滨联用可协同抑制肝癌细胞增殖及肿瘤生长,且该效应与ERK/p-ERK通路的下调以及血管内皮生长因子(VEGF)介导的血管生成减少相关。本研究旨在初步探讨索拉非尼联合吉西他滨对HepG2肝癌细胞系增殖的抑制作用 体外 和 体内 及其机制(补充图1本研究的新颖性体现在三个方面:(1)首次在肝癌中使用广泛采用的 HepG2 细胞系及相应的 NOD/SCID 小鼠模型,专门测试索拉非尼与吉西他滨的联合疗效;(2)探究了目前研究尚少的 ERK/p-ERK 通路作为潜在作用机制;(3)为该联合方案在肝癌中的相加效应提供了直接的实验依据,而非计算预测结果。这些特点使本研究区别于以往在其他肿瘤类型或采用不同实验模型(尤其是基于索拉非尼的治疗方案)所开展的联合疗法研究。
方案
本研究获得浙江大学实验动物福利与伦理审查委员会的伦理批准(批准号:ZJU20250049)。
动物与分组
共购买了40只4至5周龄、体重为18–20 g的雌性NOD/SCID小鼠,购自持有许可证的商业供应商(许可证号:SCXK(上海)2013-0006),并饲养在特定病原体阴性(SPF)级别的动物房中。所有动物实验方案均遵循标准指南。实验期间,动物可自由进食和饮水,以每笼5只进行群养,饲养环境为温湿度和光照严格控制的SPF动物房,室温维持在22 ± 2 °C,相对湿度为50%–60%,光照/黑暗循环为12/12小时。动物可自由摄取食物和水,每2周监测一次体重。当小鼠出现持续性疼痛、恶病质、肿瘤溃烂、肿瘤尺寸达到最大直径2 cm,或其他不可逆的健康问题时,根据动物伦理委员会批准的人道终点标准,实施安乐死:腹腔注射≥150 mg/kg体重的0.45%戊巴比妥钠,随后通过呼吸和心跳停止、角膜反射消失等指标确认死亡;必要时辅以二次物理方法。样本量(每组n = 10)基于功效分析确定,假设效应量为1.2(来自预实验数据),α = 0.05,β = 0.20(80%功效),并额外预留20%的损耗率。肿瘤接种操作在分组给药前进行(异种移植建立详见下文)。
在肿瘤接种并确认成瘤后,采用随机数字表法将小鼠随机分为4组:对照组、索拉非尼组、吉西他滨组以及索拉非尼联合吉西他滨组,每组10只小鼠(每笼5只),用于构建NOD/SCID小鼠移植瘤模型。由于建模过程中肿瘤组织可能导致NOD/SCID小鼠一般状况不佳甚至死亡,且考虑到统计分析通常需要足够的有效样本量,因此每组至少纳入10只小鼠。随机分组由独立的技术人员完成,并对笼具进行标记;在给药和肿瘤测量过程中未实施盲法,这是本研究的一个重要局限性。其余组织取样、生化检测及病理学评估均由经设盲的实验人员完成。统计分析也由仅能访问编码文件的统计学家在设盲状态下进行,直至统计完成并解盲数据。所有动物均被纳入最终分析。两种药物均选择腹腔注射途径,以确保全身吸收和稳定的生物利用度;每日一次给药方案基于既往药代动力学研究结果,表明该方案可维持持续的血浆药物浓度。对照组小鼠腹腔注射0.2 mL无菌生理盐水。索拉非尼组小鼠腹腔注射0.2 mL含40 mg/kg索拉非尼的溶液。吉西他滨组小鼠腹腔注射0.2 mL含100 mg/kg吉西他滨的溶液。联合治疗组小鼠腹腔注射0.2 mL含40 mg/kg索拉非尼和0.2 mL含100 mg/kg吉西他滨的溶液。各组均每日给药一次,连续给药20天。所有动物均被纳入最终分析,无小鼠被排除出研究。在20天的治疗期间,各组均未观察到死亡情况。给药方案和剂量的选择依据已发表的肝胆系统肿瘤模型研究。需注意的是,每日腹腔注射吉西他滨可能引起毒性反应。每日测量移植瘤的长径和短径,并计算移植瘤体积。20天后,在深度麻醉下通过颈椎脱位处死动物,移植瘤组织用甲醛固定。在整个实验期间,每2天测量一次体重。每日观察小鼠的毒性临床表现,包括竖毛、蜷缩姿势、活动减少、腹泻和嗜睡。然而,未进行血清生化检测(如丙氨酸氨基转移酶、天冬氨酸氨基转移酶和肌酐)以及主要器官的组织病理学检查。因此,不能排除亚临床毒性的存在。
药物与试剂
索拉非尼溶于10%二甲基亚砜(DMSO)中,储存于-20 °C。使用前将溶液解冻并稀释,使DMSO终浓度低于0.5%,该浓度对细胞生长无影响。吉西他滨购自商业来源。放射免疫沉淀分析(RIPA)裂解缓冲液、噻唑蓝、抗甘油醛-3-磷酸脱氢酶(GAPDH)、ERK、p-ERK和VEGF的一抗、二抗、高糖 Dulbecco 改良 Eagle 培养基(DMEM)、胎牛血清及 HepG2 细胞系均购自商业来源。
索拉非尼和吉西他滨是细胞毒性药物。所有药物的配制和操作步骤均应在指定的生物安全柜中进行,同时穿戴适当的个人防护装备(实验服、腈类手套和护目镜)。本实验方案中使用的二甲基亚砜、甲醇、二甲苯及其他有机溶剂均具有危害性,应在通风橱中操作以避免吸入或皮肤接触。使用所有试剂前应查阅其材料安全数据表(MSDS)。
细胞培养
复苏 HepG2 细胞系并接种至细胞培养瓶中,培养瓶内含 10 mL 高糖 DMEM 培养基(添加 10% 胎牛血清、100 U/mL 青霉素-链霉素和 4 mmol/L 谷氨酰胺)。细胞置于 37 °C、含 5% CO₂ 的湿润化培养箱中培养。每 2 天更换一次培养基,每 4 天传代一次,以维持细胞的对数生长。HepG2 细胞系购自商业来源;但本研究未进行独立的细胞系鉴定(如短串联重复序列分析)及支原体检测。
检测增殖抑制率的MTT方法
采用3-(4,5-二甲基噻唑-2-基)-2,5-二苯基四氮唑溴盐(MTT)法测定索拉非尼与吉西他滨对HepG2细胞系的增殖抑制率。取对数生长期细胞,加入0.25%胰蛋白酶消化2 min,按等体积加入完全培养基终止消化,1000 ×g离心 × g 孵育10分钟后,将细胞重悬于完全培养基中。调整细胞密度至1 × 10⁵ 细胞/毫升,以及 200 µL 将细胞悬液接种至96孔板的每个孔中。该接种密度是基于初步优化实验确定的,实验中测试的细胞密度范围为5 × 10³ 至 5 × 10⁴ 细胞/孔被测试。2 的密度 × 104 每孔细胞数确保在96小时内吸光度呈线性增长,且在实验终点时汇合度保持在80%以下,经倒置显微镜目视观察确认。为确保MTT检测值处于线性范围内,各时间点均进行了预实验,使用溶剂处理的对照孔进行测定。每48小时更换一次培养基,以防止营养耗竭及代谢副产物积累。每日使用倒置显微镜监测细胞汇合度。96小时时,对照孔细胞汇合度约为75%–80%,未见明显营养耗竭迹象。细胞贴壁后,弃去原培养基,加入含药物的培养基;未处理对照组则加入不含药物的培养基(溶剂对照) 体内 实验分为未处理对照组、索拉非尼组、吉西他滨组和联合治疗组。索拉非尼的剂量为 1.5 µmol/L, 3 µmol/L, 4.5 µmol/L,以及 6 µmol/L,吉西他滨的剂量为 5 µmol/L, 10 µmol/L, 15 µmol/L,以及 20 µmol/L索拉非尼与吉西他滨联合使用的剂量为 1.5 µmol/L + 5 µmol/L, 3 µmol/L + 10 µmol/L, 4.5 µmol/L + 15 µmol/L,以及 6 µmol/L + 20 µmol/L各组细胞分别培养 24 h、48 h、72 h 和 96 h。培养结束后 20 µL 每孔加入5 mg/mL的MTT溶液,细胞在细胞培养箱中孵育4小时。小心弃去上清液,然后 150 µL 加入DMSO至每孔,酶标板置于摇床上振荡10分钟,以充分溶解甲臜结晶,随后使用多功能酶标仪在490 nm波长下测定各孔的光密度(OD)值。实验重复三次,每组设五个复孔。数据以均值表示 ± 三个生物学重复的标准差。细胞生长抑制率(%)=(1 - OD 实验组 /OD 未处理组)× 100%。两种药物之间的相互作用通过以下方式判断: q-值,由以下公式计算得出: q = EAB / (EA + EB - EA × EB)。此处,EA 和 EB 分别表示药物 A 和药物 B 单独使用时的抑制率,EAB 表示两种药物联合使用时的抑制率。当 q 大于1.15表明两种药物之间具有协同作用;0.85–1.15表明为相加作用;而 q 小于 0.85 表示具有拮抗作用。 q-值法是一种简单的筛选工具,不能替代更严格的协同作用分析。仅测试了少数几个固定比例的剂量组合,这限制了协同作用结论的稳健性。因此,该术语 "协同作用" 本研究中指的是 q > 1.15 在特定的剂量组合和时间点,而非在整个剂量-反应矩阵中经过验证的相加相互作用。
ERK 和 p-ERK 蛋白表达的 Western 印迹分析
细胞培养和实验分组按上述方法进行。在通过蛋白质印迹法检测ERK和p-ERK时,索拉非尼的剂量为3 µmol/L;吉西他滨的剂量为10 µmol/L;联合用药剂量为3 µmol/L + 10 µmol/L。处理72小时后,使用RIPA裂解缓冲液裂解细胞,并从各实验组提取总蛋白。采用二喹啉甲酸(BCA)法测定蛋白浓度。每孔上样等量蛋白(30 µg),在120 V电压下进行10%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE),电泳时间为90分钟。随后在4 °C、300 mA条件下,将蛋白转移至聚偏二氟乙烯(PVDF)膜(孔径0.45 µm),转膜时间为90分钟。用含0.1% Tween-20的Tris缓冲盐水(TBST)配制5%脱脂牛奶,在室温下封闭膜1小时后,将膜置于4 °C、轻度振荡条件下与一抗孵育过夜。用TBST洗涤三次,每次10分钟,然后在室温下与二抗孵育1小时。使用增强型化学发光(ECL)底物显色,并通过数字凝胶成像系统获取图像。针对每种抗体优化曝光时间,以避免信号饱和。使用ImageJ软件中的凝胶分析工具进行密度定量。所有目标蛋白条带的强度均以GAPDH作为上样对照进行归一化,p-ERK的表达量进一步以总ERK表达量进行归一化。除5%脱脂牛奶封闭外,未进行其他额外封闭步骤。定量结果以相对于对照组的倍数变化表示,对照组设为1.0。每个实验均独立重复三次。图中显示为代表性免疫印迹结果。
在NOD/SCID小鼠中HepG2异种移植瘤VEGF表达的免疫组织化学检测
用于异种移植模型建立:将处于对数生长期的 HepG2 细胞通过胰蛋白酶消化收集,用无菌磷酸盐缓冲液(PBS)洗涤两次,然后重悬于无血清 DMEM 培养基中。使用 1 mL 注射器将 2 × 10⁶ 个细胞悬浮于 0.2 mL 无血清 DMEM(不含 Matrigel)中,皮下注射至每只 NOD/SCID 小鼠的右侧腋部区域(血供丰富的区域),以建立 HepG2 皮下异种移植模型。每 2 天监测一次成瘤情况。每两天测量一次肿瘤大小,当肿瘤直径达到 0.3–0.5 cm(约为注射后 7–10 天,定义为治疗起始点)时,将小鼠随机分为 4 组进行实验。使用数显卡尺每天测量皮下移植瘤的长度(L)和宽度(W),并根据公式 V = (L × W2) / 2 计算肿瘤体积。所有测量均由对分组情况设盲的研究人员完成。20 天后,在深度麻醉下通过颈椎脱位处死动物,异种移植组织在室温下用 10% 中性缓冲福尔马林固定 24 小时,随后进行石蜡包埋。使用旋转式切片机切取 5 µm 厚的组织切片,并将其贴附于多聚-L-赖氨酸包被的载玻片上。免疫组织化学染色时,切片经二甲苯脱蜡(更换三次,每次 5 分钟),并通过梯度乙醇(100%、95%、70%、50%;每次 3 分钟)逐级水化。抗原修复采用微波加热法,在 10 mM 枸橼酸钠缓冲液中加热 15 分钟,随后于室温冷却 20 分钟。室温下用含 3% 过氧化氢的甲醇溶液孵育 10 分钟以阻断内源性过氧化物酶活性。室温下用含 5% 正常山羊血清的 PBS 溶液封闭 1 小时以阻断非特异性结合。然后切片在湿盒中与抗 VEGF 一抗(稀释比例 1 : 200)于 4 °C 过夜孵育。用 PBS 洗涤(三次,每次 5 分钟)后,室温下加入辣根过氧化物酶(HRP)标记的山羊抗兔二抗(稀释比例 1 : 500)孵育 1 小时。使用 3,3′-二氨基联苯胺(DAB)底物显色。切片用苏木精复染 30 秒,脱水、透明并用中性树胶封片。使用倒置荧光显微镜在明场模式下以 ×100 放大倍数进行成像。展示的代表性图像仅用于定性说明。
所有受污染的枪头、试管和细胞培养废弃物均作为生物危害性废物收集,并在处理前进行高压灭菌。化学废物(包括含药物溶液、DMSO、二甲苯和甲醇)须收集于分开的、贴有标签的废物容器中,并按照当地机构关于危险化学废物的规定进行处置。
统计学分析
采用 SPSS 19.0 软件进行统计分析。实验数据以均值表示 ± 三次独立生物学重复的均方差 体外 实验,以及平均值 ± 每组 n = 10 只小鼠的标准差(SD) 体内 实验中,两组之间的比较采用双尾非配对 t 检验;多组之间的比较采用单因素方差分析(ANOVA),随后进行 Tukey 事后检验。 p < 0.05, p < 0.01,以及 p < 0.001 被报道。
结果
索拉非尼和吉西他滨对 HepG2 细胞增殖的抑制作用
索拉非尼和吉西他滨以剂量依赖性方式抑制 HepG2 细胞增殖,结果如表 1所示。与单药治疗相比,联合治疗在所有时间点的抑制率均显著更高。MTT 法检测的是细胞代谢活性,其结果与细胞数量相关,但并不直接测量细胞增殖或细胞毒性。因此,“增殖抑制”这一术语应理解为 MTT 转化能力的降低。值得注意的是,3 µmol/L 索拉非尼与 10 µmol/L 吉西他滨联合使用时表现出最显著的抑制效应,凸显其作为肝癌有效治疗方案的潜力。进一步研究显示索拉非尼与吉西他滨对 HepG2 细胞具有相加作用。表 2 列出了 q 值,该值提示两种药物之间可能存在协同作用。值得注意的是,3 µmol/L 索拉非尼联合 10 µmol/L 吉西他滨在多个时间点的 q 值均超过 1.15,提示 p-ERK 表达降低与观察到的抗增殖效应之间存在关联,但这些数据并未证明因果关系。这些结果表明,在得出有关治疗潜力的结论之前,有必要在更多肝癌模型中进一步研究。协同作用并非在所有剂量组合中均出现,而仅限于某一特定浓度组合。
图1显示,索拉非尼组和联合治疗组对细胞增殖的抑制率在72小时达到峰值。联合治疗,尤其是3 µmol/L索拉非尼与10 µmol/L吉西他滨的剂量组合,其抑制率显著高于单药治疗。
索拉非尼和吉西他滨对ERK及p-ERK表达的影响
图 2A 显示各组之间 ERK 蛋白表达水平无显著变化。然而,p-ERK 表达在索拉非尼组和联合治疗组中均显著降低,其中联合治疗组的降低幅度最大。这些数据表明 p-ERK 水平降低与联合治疗之间存在关联,但并未证实 p-ERK 的减少直接介导了抗增殖效应。未进行 p-ERK 相对于总 ERK 和 GAPDH 的密度计量分析、归一化处理、生物学重复信息统计及统计学比较。因此,所展示的免疫印迹结果仅为代表性示例,仅用于定性分析。
索拉非尼和吉西他滨对NOD/SCID小鼠移植性肝癌皮下异种移植瘤体积的影响
各组在治疗前的皮下异种移植瘤体积差异无统计学意义p = 0.367)。治疗后,与对照组相比,肿瘤体积显著减小,且联合治疗组的肿瘤体积显著小于索拉非尼组和吉西他滨组(p < 0.001),如图所示 图2B. 这些结果应谨慎解读,因为未收集毒性或药代动力学数据以确认所观察到的差异是否受到药物相关发病率或全身暴露水平差异的混杂影响。
索拉非尼与吉西他滨对NOD/SCID小鼠移植性肝癌中VEGF表达的影响
图2C 显示了肿瘤组织中VEGF表达的免疫组织化学分析结果。索拉非尼组和联合治疗组的棕黄色免疫染色减弱,VEGF表达水平在定性免疫组织化学上较弱,提示其血管生成潜力降低;但由于未进行内皮细胞标志物检测或微血管密度分析,尚不能直接证明血管生成情况。吉西他滨组和对照组在定性上显示出更强的VEGF表达。这些关于VEGF的定性发现仅具有相关性,可用于提出假设。在缺乏定量分析或直接血管标志物的情况下,无法对血管生成或血管生成的协同作用得出结论。
数据可用性
本研究中生成和分析的原始数据包含在补充材料中(补充文件 1)。
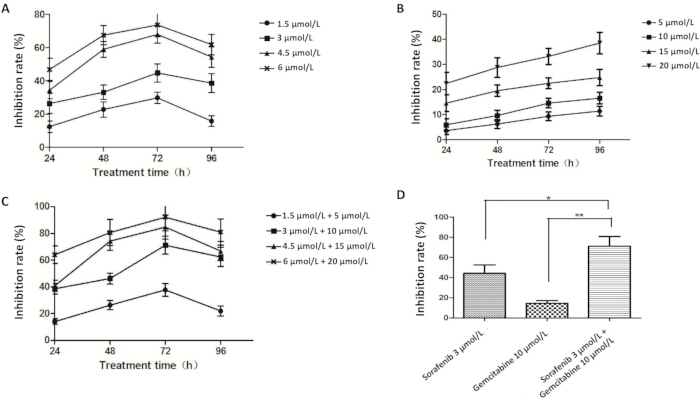
图 1: 不同干预措施对 HepG2 细胞增殖抑制率的影响。(A)索拉非尼在不同时间点对 HepG2 细胞的抑制率(%)。(B)吉西他滨在不同时间点对 HepG2 细胞的抑制率(%)。(C)索拉非尼联合吉西他滨对 HepG2 细胞的抑制率(%)。(D)索拉非尼(3 µmol/L)和吉西他滨(10 µmol/L)单独使用及联合使用处理 72 小时后对 HepG2 细胞的抑制率(%)。*p < 0.05,**p < 0.01 vs. 对照组。所有抑制率数据均通过本方案中所述的 MTT 法测定获得。请点击此处查看该图的放大版本。
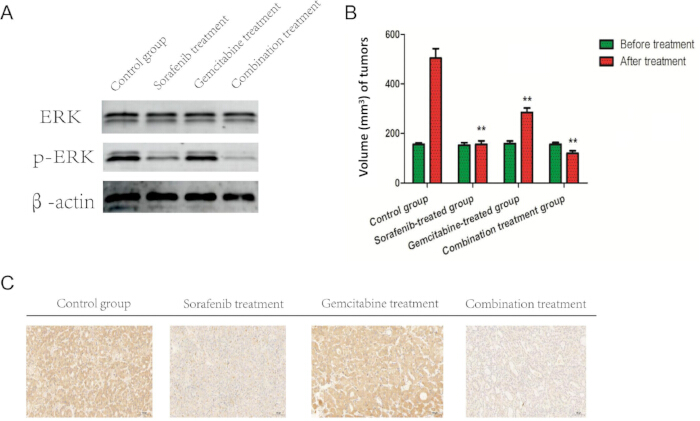
图2ERK/p-ERK 表达、肿瘤体积和 VEGF 表达在治疗组中的变化. (A) 不同处理下HepG2细胞中ERK和p-ERK的表达;(B) 体积(mm3) 四组治疗前后肿瘤体积(n = 10 每组)。**p < 0.01 与 治疗后的对照组。采用单因素方差分析对终点体积进行统计学比较。 (C代表性免疫组织化学图像(比例尺 = 100 µm各组肿瘤组织中VEGF表达的)(每组n = 10)。这些图像仅用于定性说明。 请点击此处以查看此图的放大版本。
| 分组(μmol/L) | 处理时间(h) | ||||
| 24 | 48 | 72 | 96 | ||
| 索拉非尼 | 1.5 | 12.41 ± 3.37 | 22.74 ± 4.57 | 29.76 ± 3.48 | 15.77 ± 3.18 |
| 3 | 26.37 ± 6.14 | 33.10 ± 4.39 | 44.71 ± 5.49 | 38.63 ± 5.68 | |
| 4.5 | 34.42 ± 5.26 | 58.91 ± 4.67 | 67.85 ± 5.20 | 54.26 ± 6.07 | |
| 6 | 46.88 ± 6.61 | 67.48 ± 5.70 | 73.57 ± 7.07 | 61.73 ± 6.10 | |
| 吉西他滨 | 5 | 3.56 ± 1.41 | 6.17 ± 1.73 | 9.31 ± 1.76 | 11.35 ± 1.95 |
| 10 | 5.89 ± 2.47 | 9.62 ± 2.15 | 14.57 ± 1.94 | 16.58 ± 2.31 | |
| 15 | 14.57 ± 3.38 | 19.53 ± 2.27 | 22.43 ± 2.13 | 24.75 ± 3.25 | |
| 20 | 22.36 ± 4.46 | 28.76 ± 3.92 | 33.18 ± 3.19 | 38.49 ± 4.28 | |
| 索拉非尼 + 吉西他滨 | 1.5 + 5 | 14.13 ± 2.16 | 26.41 ± 3.43 | 37.75 ± 4.75 | 22.04 ± 2.84 |
| 3 + 10 | 38.69 ± 3.94 | 46.26 ± 4.06 | 71.23 ± 6.76 | 62.47 ± 7.20 | |
| 4.5 + 15 | 40.89 ± 4.21 | 74.30 ± 6.98 | 84.82 ± 9.17 | 66.89 ± 7.16 | |
| 6 + 20 | 64.05 ± 6.54 | 80.67 ± 9.79 | 92.22 ± 10.24 | 81.05 ± 9.87 | |
表1:索拉非尼和吉西他滨对HepG2细胞的抑制率(%)。 数据来自三次独立实验,以均值±标准差表示。
| 分组(μmol/L) | 处理时间(h) | ||||
| 24 | 48 | 72 | 96 | ||
| 索拉非尼+吉西他滨 | 1.5 + 5 | 0.91 | 0.96 | 1.04 | 0.87 |
| 3 + 10 | 1.26 | 1.17 | 1.35 | 1.28 | |
| 4.5 + 15 | 0.93 | 1.11 | 1.13 | 1.02 | |
| 6 + 20 | 1.09 | 1.05 | 1.12 | 1.06 | |
表2: q-索拉非尼与吉西他滨对HepG2细胞协同作用的评估. q > 1.15 表示协同作用;0.85–1.15 表示相加作用 q < 0.85 表示拮抗作用。数据来源于三次独立实验。
补充图1: 本研究分为两个主要阶段:体外实验使用HepG2细胞系,体内实验采用NOD/SCID小鼠异种移植模型。 体外实验中,HepG2细胞分别用索拉非尼、吉西他滨或二者不同浓度的组合处理。采用MTT法检测细胞增殖,并通过Western blotting分析ERK和p-ERK的表达水平。体内实验中,通过皮下注射HepG2细胞建立异种移植模型。将小鼠分为四个治疗组,每日接受腹腔注射给药。在整个治疗期间定期测量肿瘤体积。处死小鼠后,取肿瘤组织进行VEGF免疫组化染色。所有数据均采用SPSS 19.0软件进行统计分析。请点击此处下载该文件。
补充文件 1:原始数据.rar。请点击此处下载该文件。
讨论
由于起病隐匿、进展迅速且有效治疗手段有限,肝癌的死亡率很高3,15。晚期肝癌常表现出对化疗和放疗的耐受性,目前包括手术切除和肝移植在内的治疗方案仍不充分15,16。联合使用两种或多种作用机制不同的化疗药物已有较成熟的发展,被认为可显著提高疗效,可能是治疗肝癌的一种替代策略15,16。肝癌研究中的靶向药物包括单克隆抗体(抗VEGF和抗EGFR)、酪氨酸激酶抑制剂以及mTOR抑制剂,而关键挑战在于如何优化现有药物的联合应用,以改善总体生存率和生活质量17。若能探索出高效且低毒的药物组合,可能有助于克服当前肝癌治疗的局限性。近期一项针对吉西他滨耐药的细胞模型研究表明,该模型可能被重新敏化于吉西他滨/索拉非尼(EGFR抑制剂)治疗14。这一发现引起了我们的极大兴趣,因其属于尚未深入探索的科学领域。通过部分因子设计法,已确定吉西他滨(1.4 mmol/L)、索拉非尼(0.03 mmol/L)和S-1(0.185 mmol/L)的三药联合为最优组合,该方案可通过抑制AKT/mTOR通路并诱导细胞凋亡,显著抑制胆管癌(CCA)的增殖和肿瘤生长18。Awasthi及其同事研究表明,索拉非尼可抑制胰腺导管腺癌(PDAC)细胞中丝裂原活化蛋白激酶(MEK)、ERK1/2、70 kDa核糖体蛋白S6激酶(p70S6K)以及4E结合蛋白1(4EBP-1)的磷酸化,并抑制细胞增殖;当与吉西他滨联用时,在多种细胞中表现出相加性的抗增殖和促凋亡效应,从而显著延长荷瘤动物的生存期19。吉西他滨与索拉非尼联合治疗可抑制上皮-间质转化过程,进一步抑制非小细胞肺癌(NSCLC)细胞的增殖、迁移和侵袭,并诱导细胞周期阻滞和细胞凋亡20。然而,据我们所知,本研究是首次在基于HepG2的体外(in vitro)及皮下异种移植型肝细胞癌模型中专门测试该药物组合的研究。
本研究旨在通过探讨多靶点激酶抑制剂索拉非尼与胞苷类似物吉西他滨联合使用对肝癌的影响,填补这一研究空白 体外 和 体内在本研究中,索拉非尼和吉西他滨单独使用均对HepG2细胞的增殖具有抑制作用,而两种药物联合使用的抑制效应显著强于单药,表现出相加作用。然而,MTT法本身无法区分细胞抑制(生长停滞)与细胞毒性(细胞死亡)效应,亦不能提供抗增殖机制的直接证据。其中, q-索拉非尼的值 3 µmol/L + 吉西他滨 10 µmol/L 联合组在各个时间点的联合指数均大于1.15,表明具有协同作用。索拉非尼和吉西他滨单用或联用对HepG2细胞中ERK的表达无明显影响,但索拉非尼单用及联合用药均显著抑制了p-ERK的表达。两种药物联用对HepG2细胞中ERK的磷酸化呈相加性抑制作用。这些数据提示p-ERK表达降低与药物联用的抗增殖效应之间存在关联,但尚未确立因果关系。该协同效应并非在所有测试条件下普遍成立,仅在某一特定浓度比例下观察到。NOD/SCID小鼠肝癌异种移植模型的免疫组化结果显示,索拉非尼与吉西他滨联用可显著降低VEGF的表达并减小肿瘤体积。然而,由于未系统收集毒性或体重变化数据,尚不能排除肿瘤体积缩小部分归因于药物引起的病态反应,而非特异性抗肿瘤效应。免疫组化结果还显示,索拉非尼与吉西他滨联用与肿瘤组织中VEGF表达降低相关。该现象提示可能存在抗血管生成作用,但缺乏血管化程度降低的直接证据(如微血管密度分析)。因此,VEGF下调对所观察到的抗增殖效应的贡献仍属相关性结论。该协同效应提示联合治疗可能克服单药治疗常导致的耐药性和治疗失败等局限性。确定索拉非尼与吉西他滨的最佳联合剂量是推动该治疗方案临床应用的关键步骤。
索拉非尼与吉西他滨联合用药的相加作用背后的分子机制可能与ERK通路的抑制有关,这由联合治疗组中p-ERK表达显著降低所提示。已知ERK通路在细胞增殖、存活和血管生成中发挥关键作用,因此是癌症治疗的重要靶点。结果表明,与单药治疗相比,联合治疗可能更有效地破坏ERK通路,这与p-ERK表达较单药治疗出现更大程度的降低相一致。体内研究在NOD/SCID小鼠模型中进一步支持了该联合治疗方案潜在的治疗益处。我们观察到联合治疗组的肿瘤体积显著减小,且VEGF表达降低。VEGF是肝细胞癌(HCC)中血管生成的关键驱动因子,其抑制与肿瘤生长和转移减少相关。联合治疗引起VEGF下调与该方案可能调节血管生成过程的假设一致;然而,本研究未评估抗血管生成活性的直接证据。观察到的p-ERK表达降低与联合治疗抗增殖效应之间的关联具有提示性,但并未确立因果机制。由于Western blot分析仅在长期药物暴露后的单一时间点进行,因此无法捕捉ERK磷酸化的早期动态变化。此外,缺乏密度测定定量、重复水平的统计分析以及对总ERK和上样对照的归一化处理,限制了结果的可解释性。因此,尽管p-ERK降低与联合治疗相关,但现有数据尚不足以证实ERK通路抑制是否直接介导了该相加效应。这一机制性认识与当前新兴的治疗策略一致,即靶向平行或代偿性通路以克服HCC中的耐药性。
尽管本研究为索拉非尼与吉西他滨在肝癌治疗中的潜在协同作用提供了有价值的见解,但仍需承认本研究存在若干局限性。首先,本研究的样本量相对较小,可能限制研究结果的普适性。未来需要开展更大样本的队列研究,以在更具多样性的患者群体中验证该联合治疗方案的有效性与安全性。其次,本研究采用了HepG2细胞系,该细胞系虽然是肝癌研究中广泛使用的模型,但可能无法完全反映患者体内肝癌的异质性。不同亚型的肝癌及不同的遗传背景可能对联合治疗产生不同的反应。因此,本文的研究结果可能不适用于所有类型的肝癌,在得出更广泛的结论之前,有必要使用其他细胞系(例如Huh7[人肝细胞癌细胞系]和PLC/PRF/5[人肝细胞癌细胞系,又称Alexander细胞])或患者来源的异种移植模型进行验证。第三,体内实验采用了缺乏免疫系统的NOD/SCID小鼠模型,因此无法充分模拟人类肝癌中复杂的肿瘤-免疫微环境。未来的研究应采用具有完整免疫功能的小鼠模型或人源化系统,以更深入地理解治疗的免疫学机制。第四,本研究未评估索拉非尼-吉西他滨联合用药的毒性或安全性特征。未收集NOD/SCID小鼠的体重变化、器官毒性(如肝、肾功能检测)或不良事件相关数据。因此,目前的数据无法对这种联合用药的安全性或耐受性做出任何结论。第五,关于抗血管生成作用的推论尚属初步,不应过度解读。尽管定性观察到VEGF表达减少,但我们并未进行定量免疫组织化学(IHC)分析(例如H评分、阳性区域百分比、染色强度,或对每例肿瘤多个视野进行盲法数字图像分析)。此外,我们未使用内皮细胞标志物(如分化簇31(CD31)或内粘蛋白)评估微血管密度,也未开展功能性血管检测。因此,当前的VEGF数据并不能直接证明血管生成减少,仅表明VEGF蛋白水平呈相关性降低。第六,统计分析存在若干局限性。肿瘤体积在20天内对同一只小鼠进行了多次测量,但我们仅对终点体积使用了单因素方差分析,而未采用可考虑时间相关性的重复测量方差分析或混合效应模型。未对正态性与方差齐性进行正式检验。此外,尽管本研究发现p-ERK表达降低与索拉非尼和吉西他滨的协同抗增殖效应之间存在关联,但这些数据无法推断因果关系。Western blot分析还存在其他若干局限性:(i)仅检测了一个晚期时间点(72 h),而ERK磷酸化是一种早期且短暂的信号事件;(ii)仅展示了代表性条带,未对独立生物学重复样本进行密度测定定量及统计分析;(iii)p-ERK未归一化至总ERK,且总ERK也未以定量方式一致地归一化至上样对照。因此,这些数据主要为定性结果,仅具假设生成意义。要获得明确的机制验证,需进行挽救实验(例如通过突变MEK实现ERK的持续激活,或使用ERK激活剂),以验证恢复p-ERK水平是否可减弱联合用药的抗增殖效应。一个主要局限是缺乏深入的分子验证。我们未检测p-VEGFR、p-AKT或凋亡标志物。ERK通路数据为定性结果,无法确立因果关系。在得出任何机制性结论之前,需要开展专门设计以阐明潜在机制的进一步研究。类似地,通过siRNA介导的ERK敲低或使用靶向上游调控因子的药理学抑制剂(例如MEK抑制剂),可帮助确定所观察到的效应是否确实依赖于ERK通路。这些验证实验超出了本初步研究的范围,但代表了未来研究的关键方向。其他参与肿瘤增殖与存活的关键通路,如PI3K/AKT通路或相关下游因子,在本研究中未被探讨,也可能参与介导所观察到的效应。本研究关于VEGF表达的发现尚属初步且具假设生成性质。VEGF免疫染色减弱为血管生成通路的潜在调控提供了重要线索,但尚不足以作为抗血管生成机制的确凿证据。我们明确提醒读者,仅凭VEGF免疫组织化学结果,尤其是缺乏定量分析或血管标志物佐证时,无法确立抗血管生成机制。缺乏对内皮细胞标志物和血管功能的分析是本研究的主要局限之一。因此,需对涉及的信号通路进行更全面的分析,包括其他激酶和血管生成因子的潜在作用,以充分阐明该联合治疗的作用机制。
本文所述实验步骤已针对 HepG2 细胞和 NOD/SCID 小鼠进行了优化。使用不同的细胞系或小鼠品系时,实验可重复性可能会有所不同。影响可重复性的关键因素包括:(1)细胞传代次数(建议使用低于20代的细胞);(2)MTT 培养时间(标准化为恰好4小时);(3)抗体批次号(每次实验均需记录);以及(4)游标卡尺操作人员的培训(建议全程由同一位不知分组情况的操作者完成)。我们建议使用者在测试药物组合前,先进行阳性对照实验(例如单独使用 6 µmol/L 的索拉非尼),以验证实验体系的可靠性。
本研究通过蛋白质印迹实验表明,索拉非尼与吉西他滨联合治疗可显著降低HepG2细胞中p-ERK的表达水平,提示ERK信号通路受到调控;然而,这些数据为定性结果,尚不能确立因果关系。p-ERK被广泛用作ERK通路激活的功能性标志物,其表达下调通常被解读为通路活性降低的指标(11)。尽管我们未通过RT-PCR进一步检测下游靶基因(如c-Fos、c-Myc)的转录变化,但观察到的p-ERK减少为ERK通路的参与提供了相关性支持,而非直接的机制性证据。未来研究可通过转录组分析或靶向qPCR进一步揭示ERK下游网络的调控细节,从而加深对联合治疗机制的理解。此外,本研究主要关注联合治疗的短期效应,尚需开展长期研究以评估治疗反应的持久性、潜在耐药性的产生以及治疗相关的迟发性毒性。最后,本研究未探讨索拉非尼与吉西他滨联合其他新兴治疗策略(如免疫治疗或其他靶向治疗)的可能性,而此类联合可能进一步增强治疗效果。未来研究应探索多药联合方案,以期为肝癌患者开发更有效的治疗策略。综上所述,尽管本研究提示索拉非尼与吉西他滨在肝癌治疗中具有潜在的协同作用,但这些发现需结合本研究的局限性加以解读。未来仍需进一步研究以验证这些结果,并将这些发现转化为改善肝癌患者的临床疗效及评估潜在不良反应的实际应用。
综上所述,本研究提供了初步证据,表明索拉非尼与吉西他滨联合用药在 HepG2 细胞及 NOD/SCID 小鼠异种移植模型中具有抗增殖活性,并与 VEGF 表达降低相关。然而,VEGF 数据为定性结果,无法直接证明其具有抗血管生成作用;因此,目前尚无充分依据支持该联合方案具有抗血管生成活性。尽管数据表明 p-ERK 表达降低与联合用药的抗增殖效应之间存在关联,但其因果机制仍有待阐明。鉴于本文所指出的 Western blot 实验局限性,ERK 信号通路在此联合治疗中的作用机制目前仍属推测。索拉非尼与吉西他滨的联合方案仍需进一步研究,包括通路挽救实验以及在其他肝癌模型中的验证,以明确 ERK 通路抑制是否确为所观察到的协同效应的关键中介因素。索拉非尼联合吉西他滨的临床相关性需在未来的临床前及临床研究中,依据现代诊疗标准进行评估,特别是在索拉非尼耐药肿瘤背景下,或索拉非尼仍为临床可选方案的情境中。
披露
作者无任何利益冲突需要披露。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 数字凝胶成像系统 | Bio-Rad Laboratories, Inc., USA | 1708280 | |
| DMEM高糖培养基 | HyClone, USA | SH30243.01 | |
| ERK兔单克隆抗体 | Santa Cruz, USA | sc-94 | |
| 胎牛血清 | 浙江天杭生物科技股份有限公司,中国 | 11011-8611/11011-8615 | |
| 荧光倒置显微镜 | Olympus, Japan | IX73 | |
| GAPDH兔多克隆抗体 | Santa Cruz, USA | sc-25778 | |
| 吉西他滨 | Eli Lilly and Company | 95058-81-4 | |
| 山羊抗兔二抗 | 上海生工生物工程有限公司,中国 | D111018 | |
| ImageJ软件 | 美国国立卫生研究院(NIH),贝塞斯达,马里兰州,美国 | Version 1.8.0_112 | |
| 酶标仪 | Thermo Fisher Scientific Inc., USA | MK3 | |
| p-ERK兔单克隆抗体 | Santa Cruz, USA | 9106 | |
| 冷冻离心机 | 长沙湘仪离心机有限公司 | DL-5M | |
| RIPA裂解缓冲液 | 碧云天生物技术研究所,中国 | P0013B | |
| 轮转式切片机 | Leica, Germany | CM3050 | |
| 索拉非尼 | Bayer Company, Germany | 284461-73-0 | |
| 噻唑蓝(MTT) | Sigma, USA | M5655 | |
| 三气培养箱 | Thermo Fisher Scientific Inc., USA | 51026402 | |
| VEGF兔单克隆抗体 | BioLegend, USA | B199116 |
参考文献
- Fujii T, Kuzuya T, Kondo N, Funasaka K, Ohno E, Hirooka Y, et al. Altered intestinal Streptococcus anginosus and 5α-reductase gene levels in patients with hepatocellular carcinoma and elevated Bacteroides stercoris in atezolizumab/bevacizumab non-responders. J Med Microbiol. 2024;73(9):001878.
- Gay MD, Drda JC, Chen W, Huang Y, Yassin AA, Duka T, et al. Implicating the cholecystokinin B receptor in liver stem cell oncogenesis. Am J Physiol Gastrointest Liver Physiol. 2024;326(3):G291-g309.
- Diao X, Guo C, Jin Y, Li B, Gao X, Du X, et al. Cancer situation in China: an analysis based on the global epidemiological data released in 2024. Cancer Commun (Lond). 2025;45(2):178-97.
- Yokota S, Yonezawa T, Momoi Y, Maeda S. Sorafenib inhibits tumor cell growth and angiogenesis in canine transitional cell carcinoma. J Vet Med Sci. 2022;84(5):666-74.
- Nassar-Reis JP, Umeta PF, Stefano JT, Longatto-Filho A, Carrilho FJ, Alves VAF, et al. P53 and VEGF are promising biomarkers for sorafenib efficacy in an experimental model of NASH-related HCC. J Mol Histol. 2023;54(5):473-88.
- Taha AM, Aboulwafa MM, Zedan H, Helmy OM. Ramucirumab combination with sorafenib enhances the inhibitory effect of sorafenib on HepG2 cancer cells. Sci Rep. 2022;12(1):17889.
- Ning L, Tian Y, Chen D, Han J, Xie G, Sun J. Sorafenib safety evaluation: Real-world analysis of adverse events from the FAERS database. Heliyon. 2024;10(18):e37348.
- Vij P, Hussain MS, Satapathy SK, Cobos E, Tripathi MK. The emerging role of long noncoding RNAs in sorafenib resistance within hepatocellular carcinoma. Cancers (Basel). 2024;16(23):3904.
- Lu X, Chen Z, Mi W, Zheng J, Liu Y. MARK1 suppress malignant progression of hepatocellular carcinoma and improves sorafenib resistance through negatively regulating POTEE. Open Med (Wars). 2024;19(1):20241060.
- Lee HJ, Lee JS, So H, Yoon JK, Choi JY, Lee HW, et al. Comparison between nivolumab and regorafenib as second-line systemic therapies after sorafenib failure in patients with hepatocellular carcinoma. Yonsei Med J. 2024;65(7):371-9.
- Tang W, Chen Z, Zhang W, Cheng Y, Zhang B, Wu F, et al. The mechanisms of sorafenib resistance in hepatocellular carcinoma: theoretical basis and therapeutic aspects. Signal Transduct Target Ther. 2020;5(1):87.
- Lin Q, Guan S, Peng M, Yu H. A mesoporous silica-based nano-drug co-delivery system with gemcitabine for targeted therapy of pancreatic cancer. J Coll Physicians Surg Pak. 2024;34(12):1456-63.
- Tang J, Liu Z, Xie G, Wang C, Jiang Y. POU4F1 enhances lung cancer gemcitabine resistance by regulating METTL3-dependent TWF1 mRNA N6 adenosine methylation. 3 Biotech. 2025;15(1):7.
- Cheng J, Zhu T, Liu S, Zhou J, Wang X, Liu G. Prediction of synergistic gemcitabine-based combination treatment through a novel tumor stemness biomarker NANOG in pancreatic cancer. RSC Med Chem. 2024;15(11):3853-61.
- Man S, Luo C, Yan M, Zhao G, Ma L, Gao W. Treatment for liver cancer: From sorafenib to natural products. Eur J Med Chem. 2021;224:113690.
- Llovet JM, Pinyol R, Kelley RK, El-Khoueiry A, Reeves HL, Wang XW, et al. Molecular pathogenesis and systemic therapies for hepatocellular carcinoma. Nat Cancer. 2022;3(4):386-401.
- Bronte F, Bronte G, Cusenza S, Fiorentino E, Rolfo C, Cicero G, et al. Targeted therapies in hepatocellular carcinoma. Curr Med Chem. 2014;21(8):966-74.
- Li H, Zhang Z, Zhou Z, Ding X, Zhou G. Optimal combination of gemcitabine, sorafenib, and S-1 shows increased efficacy in treating cholangiocarcinoma in vitro and in vivo. Anticancer Drugs. 2016;27(7):600-8.
- Awasthi N, Zhang C, Hinz S, Schwarz MA, Schwarz RE. Enhancing sorafenib-mediated sensitization to gemcitabine in experimental pancreatic cancer through EMAP II. J Exp Clin Cancer Res. 2013;32(1):12.
- Jiang S, Wang R, Zhang X, Wu F, Li S, Yuan Y. Combination treatment of gemcitabine and sorafenib exerts a synergistic inhibitory effect on non-small cell lung cancer in vitro and in vivo via the epithelial-to-mesenchymal transition process. Oncol Lett. 2020;20(1):346-56.