整合代谢组学、转录组学、单细胞及功能分析发现,SHMT2 是肺腺癌中丝氨酸-甘氨酸-一碳(SGOC)代谢重编程、侵袭性行为以及预测免疫治疗反应性降低的生物标志物。
本文内容
摘要
摘要
丝氨酸/甘氨酸-一碳(SGOC)代谢在肺腺癌(LUAD)中经常发生改变,但其与肿瘤行为及预测的免疫治疗反应性之间的关系尚未完全明确。采用内部萃取电喷雾电离质谱法对23对LUAD及相邻正常肺组织进行了代谢组学分析。分析了癌症基因组图谱LUAD队列(TCGA-LUAD)中的转录组和临床数据,以评估SHMT2的表达、预后、差异表达基因以及免疫相关特征。使用肿瘤免疫功能障碍与排除(TIDE)和癌症免疫组谱图(TCIA)评估对免疫检查点阻断的预测反应性,并利用oncoPredict推断药物敏感性。单细胞RNA测序数据用于分析SHMT2的细胞分布。实验验证包括定量逆转录PCR(RT-qPCR)、蛋白质印迹、人类蛋白质图谱(HPA)免疫组织化学分析,以及通过短发夹RNA(shRNA)介导的SHMT2敲低后进行增殖、伤口愈合和克隆形成实验。代谢组学分析发现甘氨酸、丝氨酸和苏氨酸代谢是LUAD中显著改变的通路。SHMT2在LUAD中上调,并与较差的总生存期及不良的临床病理特征相关。SHMT2高表达的肿瘤表现出细胞周期和SGOC相关转录程序的富集、较低的免疫和基质评分,以及降低的免疫治疗反应性预测值。单细胞分析显示SHMT2在B细胞群体中相对富集。体外实验表明,SHMT2在LUAD细胞中过表达,其敲低可抑制细胞增殖、迁移和克隆形成能力。综上所述,SHMT2与LUAD中的SGOC代谢重编程、侵袭性肿瘤表型以及免疫劣势状态相关,提示其作为生物标志物的潜在价值;而针对SHMT2的治疗靶向性尚需进一步的药理学和体内验证。
引言
肺腺癌(LUAD)仍是全球癌症相关死亡的主要原因,其特征是显著的分子异质性、早期易发生转移以及现有治疗策略疗效持续时间有限1,2。尽管免疫检查点抑制剂(ICIs)已重塑了肺腺癌的治疗格局,但持续的临床获益仅限于部分患者,且常观察到原发性与获得性耐药现象3,4。这种显著的患者间差异凸显了迫切需求:阐明塑造肿瘤免疫微环境并调控免疫治疗应答的生物学决定因素,同时识别可靶向的脆弱环节,以改进患者分层和治疗结局。
代谢重编程是恶性肿瘤进展的核心特征之一5。在各类代谢程序中,丝氨酸-甘氨酸-一碳(SGOC)代谢将糖酵解输入与氨基酸代谢及核苷酸合成相连接,为嘌呤/嘧啶的生成和甲基供体的产生提供一碳单位6。除了支持生物大分子合成外,SGOC代谢还参与氧化还原稳态的维持,并与甲硫氨酸循环相互作用,影响DNA、RNA和组蛋白的甲基化,使其处于细胞增殖与表观遗传调控的交汇点7,8。丝氨酸羟甲基转移酶2(SHMT2)是丝氨酸羟甲基转移酶的线粒体同工型,可将丝氨酸转化为甘氨酸,同时生成5,10-亚甲基四氢叶酸,是SGOC网络中线粒体一碳单位供应的主要入口之一9。SHMT2在多种恶性肿瘤中异常上调,与增强的增殖、侵袭、治疗耐药性以及氧化应激适应密切相关10,11,12,13。SHMT2还通过BRISC复合物与炎症信号通路相互作用,但SHMT2驱动的免疫机制在肺腺癌(LUAD)中的直接作用仍有待证实14,15。因此,SHMT2是否标志着LUAD中具有临床意义的代谢表型,以及其与肿瘤免疫微环境特征和预测性免疫治疗反应之间的关系,亟需进行系统性综合评估。
肿瘤代谢与抗肿瘤免疫之间的双向相互作用是当代癌症生物学的核心问题16。肿瘤细胞可通过竞争性消耗营养物质、积累免疫调节性代谢物以及代谢-表观遗传耦联等方式,干扰免疫细胞的功能,从而重编程免疫细胞的分化和效应功能7,16,17。增强的一碳代谢可能影响T细胞中依赖甲基化的生物学程序及其代谢适应性,但这些效应的方向和程度取决于细胞类型和营养环境17。适应性免疫调控不仅限于T细胞:B细胞、抗体应答、抗原呈递以及三级淋巴结构(TLS)均已被证实与免疫治疗疗效相关18。这些发现促使人们开展多层次分析,以在整体肿瘤、单细胞及功能层面综合评估代谢相关候选分子的作用,而不应仅凭跨平台结果的一致性就推断其因果关系。
与仅进行代谢组学研究的设计(该设计可识别出变化的代谢物,但无法确定其细胞来源或表型相关性)不同,也与仅进行整体转录组学研究的设计(该设计可能推断通路活性,却未直接观察代谢物的变化)不同,本实验流程整合了配对组织代谢组学、整体转录组学和单细胞转录组学,以及 体外 功能分析。这些层面之间的一致性有助于候选基因的优先排序,并减少对单一分析平台的依赖;然而,除非在免疫共培养实验中得到验证,否则所得证据仍仅限于与免疫调控相关的关联性证据。 体内 系统
通过配对组织代谢组学分析肺腺癌及相邻正常肺组织,首次鉴定出与甘氨酸相关的代谢紊乱。随后整合TCGA转录组及临床数据,评估SHMT2(一种线粒体丝氨酸-甘氨酸-一碳代谢通路酶),其重要性由通路相关性、肿瘤中表达上调、预后关联性及实验可操作性共同支持。进一步开展免疫微环境特征分析、单细胞图谱绘制及 体外 功能验证随后建立了一个多层次、可生成假设的框架,涵盖代谢改变、酶调控异常、细胞分布及肿瘤细胞表型。从实际应用角度而言,该工作流程需要新鲜冷冻的配对组织样本。通过质谱法进行的代谢物鉴定为半定量性质,候选代谢物应通过独立实验加以验证。免疫治疗预测(TIDE/TCIA)和药物敏感性推断(oncoPredict)均为基于转录组的计算估计值,不能替代在真实世界接受免疫检查点抑制剂治疗队列中的临床验证,应将其解读为用于生成假设的工具。
方案
本研究经南昌大学第二附属医院机构审查委员会批准(CDEFYYLK 3-05)。在样本采集前,所有患者均按照《赫尔辛基宣言》的规定签署知情同意书。原始数据通过材料表中所列的软件和网络资源进行导出与分析。
临床组织采集
收集了2024年1月至6月期间接受手术切除、并经病理学确诊为浸润性肺腺癌的患者的配对肿瘤组织及相应的远端正常肺组织。标本由手术医生切除后,在切除后5分钟内进行处理,立即在液氮中速冻,并储存至后续分析。去标识化的临床病理学特征见补充表1。
利用内部萃取电喷雾电离质谱法(iEESI-MS)区分肺腺癌与正常肺组织
采用混合线性离子阱-静电轨道阱质谱仪在正离子模式下,通过iEESI-MS分析组织样本(1 mm3)。甲醇提取溶剂(100%)以3.0 µL/min流速输送,并施加+5 kV电压。iEESI-MS1的扫描范围为m/z 50–2,000。iEESI-MS2采用碰撞诱导解离,归一化碰撞能量为25–35%,隔离窗口为m/z 2.0,动态排除时间为30 s。每日依据仪器标准程序进行外部校准,使质荷比误差保持在<5 ppm。经中位数归一化、log₂转换和自动缩放后,进行OPLS-DA分析并执行200次置换检验。代谢物注释采用HMDB数据库,通路富集分析则基于KEGG注释完成。
质谱数据处理与代谢物鉴定
原始质谱数据经中位数归一化处理,随后进行log₂转换和自动缩放(均值中心化并除以各变量的标准差)。采用正交偏最小二乘判别分析(OPLS-DA)识别具有区分性的质荷比(m/z)特征。当变量重要性投影(VIP)> 1.0、|log₂(FC)| > 0.58 且 p < 0.05 时,判定为差异特征。对差异特征进行MS2分析,并利用人类代谢组数据库(Human Metabolome Database)进行注释。随后基于KEGG通路富集分析,识别发生改变的代谢通路,并筛选与通路相关的关键酶。注释的差异代谢物详见补充表2。
基于TCGA的SHMT2表达、生存及临床病理学关联分析
于2025年12月18日从基因组数据共享平台(Genomic Data Commons)下载了TCGA-LUAD的RNA-seq表达谱及其相应的临床注释数据,包括肿瘤样本(n = 542)和正常样本(n = 59)。将每百万映射读段中每千碱基转录本的片段数(FPKM)值转换为log2(FPKM + 1)。预后分析仅纳入具有完整生存信息的样本。采用Wilcoxon秩和检验比较肿瘤与正常组织中SHMT2的表达水平。根据SHMT2中位表达值将患者分为SHMT2高表达组和低表达组。通过Kaplan-Meier法评估总生存期,并采用log-rank检验进行比较。根据数据类型选择卡方检验或Wilcoxon检验,评估SHMT2表达与肿瘤-淋巴结-转移(TNM)分期、年龄和性别之间的关联。绘制1年、3年和5年生存期的时间依赖性受试者工作特征(ROC)曲线。所有统计学检验均为双侧检验。
差异表达分析与功能富集(GO/KEGG)
通过错误发现率 < 0.05 且 |log₂(FC)| ≥ 1 的标准,鉴定出 SHMT2 高表达组与 SHMT2 低表达组之间的差异表达基因(DEGs)。结果以火山图和前 40 个差异表达基因的热图展示,热图采用行方向 z-score 标准化。基因本体(GO)和 KEGG 富集分析采用校正后 p < 0.05 作为阈值。人类基因注释信息来源于 2025 年 12 月的 Ensembl 数据库。
免疫细胞浸润、免疫治疗反应预测及药物敏感性推断
使用 ESTIMATE 计算肿瘤微环境评分,包括免疫评分(ImmuneScore)、基质评分(StromalScore)和 ESTIMATE 评分(ESTIMATEScore)。采用 CIBERSORT 结合 LM22 参考基因集(2025 年 12 月 5 日下载)、1,000 次置换检验,并保留去卷积 p < 0.05 的样本,推断免疫细胞组成。在 SHMT2 高表达与 SHMT2 低表达肿瘤之间进行组间比较。SHMT2 与免疫检查点相关基因之间的 Spearman 相关性以相关性矩阵形式展示。免疫表型评分(Immunophenoscores)来自 TCIA,TIDE 用于免疫治疗反应性的互补预测。使用基于 2023 年 12 月 GDSC 版本训练的 oncoPredict 模型推断药物敏感性,以估算 IC50 值。组间差异采用 Wilcoxon 检验,连续变量间的关联性采用 Spearman 相关分析。
肺腺癌的单细胞RNA测序分析
单细胞转录组数据19 于2025年12月20日从基因表达综合数据库下载并进行分析。筛选检测到200–6,000个特征的细胞,并 < 保留了10%的线粒体转录本。使用LogNormalize方法对计数进行标准化,标准化因子为10,000;筛选前2,000个高变基因,并对所有基因进行缩放。主成分分析采用前20个主成分,UMAP降维使用第1至第20个维度,聚类分析的分辨率为0.5。细胞类型注释参考Human Primary Cell Atlas数据库。比较肿瘤与正常样本间的细胞类型比例,并生成Spearman相关性矩阵。分析SHMT2在已注释细胞类型中的分布情况。使用cyclone推断细胞周期状态,并通过山脊图进行可视化展示。
细胞培养
BEAS-2B、H1299 和 A549 细胞在 37 °C、5% CO2 和相对湿度约为 95% 的湿化培养箱中培养,培养基及添加物详见 材料表。
定量实时反转录 PCR(RT-qPCR)
采用基于苯酚的RNA提取试剂提取总RNA。使用逆转录预混液将提取的RNA逆转录为cDNA。逆转录反应在20 µL体系中进行,反应条件包括:42 °C去除基因组DNA 2 min,50 °C逆转录15 min,85 °C终止反应5 s。使用基于DNA结合染料的qPCR预混液,在实时荧光定量PCR系统上进行定量PCR扩增,反应程序为:95 °C预变性3 min,随后进行40个循环(95 °C变性10 s,60 °C退火延伸30 s),最后进行熔解曲线分析(95 °C 15 s,60 °C 60 s,95 °C 15 s)。所有反应均设置三个重复。以GAPDH作为内参基因,采用2−ΔΔCt 法计算相对表达量。引物储备液用双蒸水配制成10 µM浓度,避光保存于-20 °C。引物序列见补充表3。
蛋白质印迹
在冰上使用放射免疫沉淀分析缓冲液裂解细胞30分钟以提取总细胞蛋白,随后在4 °C条件下以12,000 × g 离心15分钟。蛋白样品通过12%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳分离,并转移至0.22 µm聚偏氟乙烯膜。膜在含5%(w/v)脱脂奶粉的Tris缓冲盐水(含0.1% Tween 20,TBST)中室温封闭2小时,随后在4 °C下与抗SHMT2抗体(1:1,000)和抗GAPDH抗体(1:2,000)一抗孵育过夜,一抗使用5%脱脂奶粉-TBST稀释。用TBST(20 mM Tris-HCl,150 mM NaCl,0.1% Tween-20)洗涤膜三次,每次8分钟,然后室温下与辣根过氧化物酶标记的二抗(1:5,000)孵育1小时。通过将等体积的溶液A和溶液B混合制备增强型化学发光底物,与膜在室温避光条件下孵育2分钟后,使用化学发光成像系统检测信号。
HPA 免疫组织化学验证
使用人类蛋白质图谱(HPA)评估了正常肺组织和肺腺癌(LUAD)中SHMT2蛋白的表达模式。在HPA中检索“SHMT2”,下载具有代表性的免疫组织化学(IHC)图像及相关病理注释进行比较。为尽量减少因抗体特异性带来的偏差,优先选择HPA中验证水平较高的抗体。在数据可用的情况下,对多个抗体的IHC结果进行交叉验证(HPA020543和HPA020549)。
在LUAD细胞中敲低SHMT2
为研究SHMT2在肺腺癌(LUAD)中对肿瘤细胞的内在作用,使用shRNA在H1299和A549细胞中进行SHMT2基因敲低。shRNA由H1启动子驱动、嘌呤霉素筛选的慢病毒载体携带;在病毒制备过程中共转染包装质粒。sh-SHMT2靶向人SHMT2编码区,而sh-NC为随机序列的阴性对照。制备的病毒原液滴度≥ 1 × 10⁸ 转导单位/mL,并保存于-80 °C。细胞感染按照材料表中所述制备的sh-SHMT2或sh-NC慢病毒颗粒。感染48小时后,通过RT-qPCR和蛋白质印迹法检测基因敲低效率。仅使用经确认实现SHMT2沉默的细胞进行增殖、迁移和克隆形成实验。
细胞增殖实验
采用CCK-8法检测细胞增殖。将转染后的H1299和A549细胞以每孔5 × 10³个细胞的密度接种于96孔板中,每组设六个复孔。在第1、2、3、4和5天,向每孔加入10 µL CCK-8试剂(占培养基体积的10%),于37 °C孵育2小时。在450 nm波长下测定吸光度,并将其作为细胞活力的检测指标。
伤口愈合实验
采用划痕愈合实验评估细胞迁移能力。将转染的 H1299 和 A549 细胞接种至 6 孔板中,培养至细胞融合度达到 90–95%。使用无菌 200 µL 枪头产生线性划痕,并用磷酸盐缓冲液轻柔洗涤以去除脱落细胞。随后将细胞维持在无血清或低血清培养基中,在倒置显微镜下分别于 0 h 和 24 h 拍摄划痕区域图像。根据材料表中所列的图像分析软件,对划痕闭合程度进行定量分析,并以相对于初始划痕面积的百分比减少值表示。
集落形成实验
进行集落形成分析时,将转染的 H1299 和 A549 细胞以每孔 800 个细胞的密度接种至 6 孔板中,培养约 10–14 天,直至形成可见的细胞集落,并在培养期间进行显微镜下监测。集落于室温下用 4% 多聚甲醛固定 30 分钟,再于室温下用 0.1% 结晶紫染色 15 分钟。在光学显微镜下计数包含超过 50 个细胞的集落。
统计分析用于 体外 实验
全部 体外 实验均独立重复至少三次。数据以均值表示 ± 标准差。两组比较采用学生t检验, p < 0.05 被视为具有统计学显著性。
结果
组织代谢组学揭示肺腺癌中广泛的代谢重塑,其中甘氨酸相关通路显著富集
通过直接iEESI-MS对23例LUAD患者的配对肿瘤组织及相邻正常肺组织进行了代谢谱分析;患者特征及差异代谢物注释详见补充表1和补充表2。经log2归一化后,OPLS-DA模型显示肿瘤与正常组织的代谢谱之间存在明显分离(R2X = 0.824,R2Y = 0.968,Q2 = 0.757)(图1A)。模型可靠性进一步通过200次置换检验得到验证,R2和Q2的截距分别为0.789和−0.451(图1B)。根据预设筛选标准——投影变量重要性(VIP)> 1,|log2(FC)| > 0.58,且p < 0.05,共鉴定出45个差异m/z特征峰(图1C)。通过MS/MS采集及HMDB注释,共获得6种表达改变的内源性代谢物,包括甘氨酸、丝氨酸和丁酮(补充表2)。KEGG通路富集分析识别出11条显著富集通路,其中甘氨酸、丝氨酸和苏氨酸代谢通路最为显著(图1D),提示LUAD中存在与甘氨酸相关的代谢重塑。
TCGA-LUAD 验实 SHMT2 在肿瘤中表达上调,并将高表达水平与不良预后相关联
SHMT2 因满足以下四个标准而被优先选择:其在丝氨酸-甘氨酸-一碳(SGOC)代谢线粒体入口处的关键位置、在 TCGA-LUAD 数据集中显著的肿瘤相关性上调、与总体生存率的关联性,以及适用于实验干预。TCGA-LUAD 的 RNA-seq 数据显示,肿瘤组织中 SHMT2 的 log2(FPKM + 1) 表达水平显著高于正常肺组织图 2A)。使用中位数截断值进行的Kaplan-Meier分析显示,SHMT2高表达与较差的总生存率相关(图2B)。探索性临床病理学分析进一步提示其与肿瘤分期及淋巴结状态相关(图2C),而时间依赖性ROC分析得到的AUC值 > 1年、3年和5年时为0.70(图2D).
SHMT2高表达肿瘤表现出与细胞周期进展和SGOC代谢轴富集相关的转录程序
为了阐明与SHMT2相关的生物学程序,根据TCGA-LUAD肿瘤中SHMT2表达值的中位数将其分为SHMT2高表达组和SHMT2低表达组,随后进行差异表达分析(图3A)。前40个差异表达基因的热图显示了明显的组间表达模式差异(图3B)。基因本体(GO)富集分析发现细胞周期进程、染色体分离和有丝分裂过程显著富集(图3C),为描述SHMT2高表达所对应的增殖性转录表型提供了分析依据。KEGG通路富集分析同样揭示了甘氨酸、丝氨酸和苏氨酸代谢通路的富集(图3D),表明存在与丝氨酸-甘氨酸-一碳(SGOC)代谢相关联的协调性转录调控,而非仅SHMT2的孤立变化。
SHMT2 高表达与免疫劣势微环境、预测的免疫治疗获益降低以及独特的药物敏感性模式相关
使用 ESTIMATE 进行肿瘤微环境分析显示,SHMT2 高表达组的免疫评分(ImmuneScore)和基质评分(StromalScore)显著较低(p < 0.001)(图 4A)。CIBERSORT 反卷积分析提示,SHMT2 高表达组中记忆B细胞、静息记忆CD4 T细胞、单核细胞和静息肥大细胞的比例较低,而活化记忆CD4 T细胞和滤泡辅助T细胞的比例较高(图 4B)。相关性分析还发现,SHMT2 与 BTLA、TNFSF15 和 CD28 呈正相关,而与 CD160 和 TNFSF14 呈负相关(图 4C)。通过 TIDE 和 TCIA 来源的转录组免疫表型评分进行的补充性预测表明,SHMT2 高表达肿瘤的免疫治疗获益潜力较低(p < 0.05)(图 4D)。上述预测结果并非来源于经临床治疗的 LUAD 队列,因此不能证明 SHMT2 高表达肿瘤具有实际的治疗耐药性。
药物敏感性是通过计算推断而非实验测定获得的。SHMT2高表达肿瘤对糖原合成酶激酶-3抑制剂和塞鲁美替尼的预测IC50值较低,但对他拉唑帕利和PLK1抑制剂的预测敏感性较低(图4E–H)。另外九种药物(包括阿糖胞苷、伊立替康和帕博西尼)的预测敏感性降低见于补充图1A–I。这些发现属于候选假设,尚不能确立其临床或药理学疗效。
单细胞分析揭示肺腺癌中独特的细胞组成,并鉴定出B细胞是表达SHMT2的主要细胞群体
为研究SHMT2在肿瘤微环境中的细胞分布,对LUAD单细胞RNA测序数据进行了分析。UMAP聚类鉴定了B细胞、内皮细胞、上皮细胞、T细胞及其他主要细胞群(图 5A)。肿瘤组织与相邻正常组织之间的细胞类型比例存在差异(图 5B–C),B细胞和T细胞的比例呈正相关(p < 0.001) (图 5D)。SHMT2 的表达在 B 细胞区室中相对富集,但在上皮细胞中也可检测到(图5E)。由于仅检测转录本并不能确定细胞功能或恶性状态,这些结果被解读为一种定位假设。SHMT2 在肺腺癌(LUAD)细胞系中的肿瘤细胞内在作用被单独进行了研究。
通过计算不同细胞类型中标准化的 G1、S 和 G2/M 期评分,进行了单细胞周期分析。G1 期评分集中在零附近,而 S 期和 G2/M 期评分则呈现更广泛的分布(补充图 2),并显示出明显的细胞类型异质性(图 5F)。这些结果表明肺腺癌微环境内存在增殖状态的异质性,与在整体 GO/KEGG 分析中鉴定出的细胞周期和有丝分裂特征一致。
实验验证证实 SHMT2 过表达,并表明 SHMT2 沉默可抑制肺腺癌细胞的恶性表型
为验证生物信息学分析结果并评估SHMT2在肿瘤细胞内在功能中的作用,首先检测了正常支气管上皮细胞(BEAS-2B)和肺腺癌细胞系(H1299和A549)中SHMT2的表达水平,这与TCGA bulk数据及单细胞分析中在上皮细胞中检测到的结果一致(图5E)。RT-qPCR结果显示,H1299和A549细胞中的SHMT2 mRNA水平高于BEAS-2B细胞(图6A),Western blotting也证实了SHMT2蛋白表达水平更高(图6B–C)。HPA免疫组织化学代表性图像也显示,与正常肺组织相比,肺腺癌组织中SHMT2染色更强(图6D)。为进一步研究SHMT2在肺腺癌中的生物学功能,使用shRNA在H1299和A549细胞中沉默SHMT2表达。RT-qPCR分析证实,在两种细胞系中,sh-SHMT2组的SHMT2 mRNA表达水平较sh-NC组显著降低(图6E)。一致地,Western blotting结果表明,敲低后SHMT2蛋白表达有效下调(图6F–G)。
功能实验表明,SHMT2 沉默显著削弱了肺腺癌(LUAD)细胞的恶性表型。CCK-8 实验显示,沉默 SHMT2 显著抑制了 H1299 和 A549 细胞的增殖能力,且随着时间推移,差异愈加显著(图 6H)。划痕愈合实验进一步表明,与对照细胞相比,SHMT2 缺失显著降低了两种 LUAD 细胞系的迁移能力(图 6I)。类似地,克隆形成实验显示,SHMT2 沉默显著降低了 H1299 和 A549 细胞的克隆形成潜能(图 6J)。综上所述,这些结果表明 SHMT2 可促进 LUAD 细胞的增殖、迁移及克隆形成能力,支持其在 LUAD 中发挥促肿瘤作用。
数据可用性:
支持本研究发现的所有原始数据,包括图表所依据的数据,均已公开提供在 Zenodo 上,网址为 https://doi.org/10.5281/zenodo.20676134。
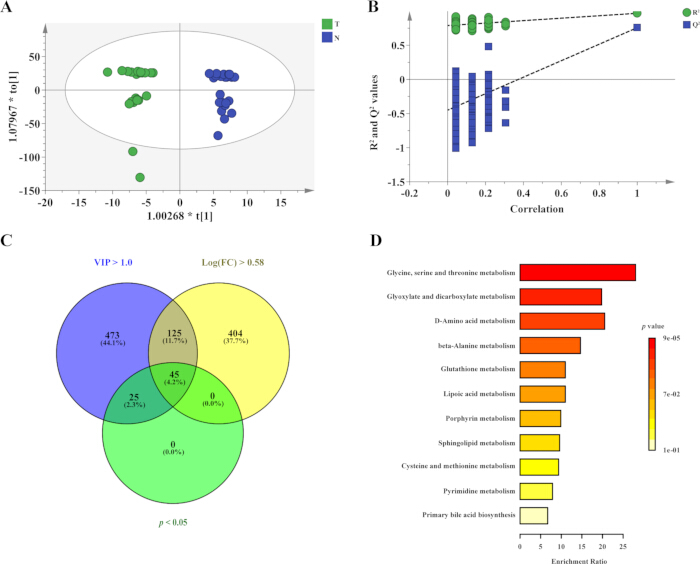
图 1:组织代谢组学揭示肺腺癌(LUAD)中与甘氨酸相关的代谢重编程。(A)OPLS-DA 得分图显示肺腺癌组织(T,绿色)与配对的相邻正常组织(N,蓝色)之间的分离情况。(B)基于 R2 和 Q2 值的置换检验,用于评估 OPLS-DA 模型的稳定性与预测性能。(C)维恩图展示通过 VIP 评分 > 1.0、|log2(FC)| > 0.58 和 p < 0.05 筛选出的差异特征的重叠部分,共保留 45 个特征。(D)基于 KEGG 的差异代谢物集合富集分析。条形长度表示富集比率,颜色深度表示 p 值。缩写:VIP = 投影中的变量重要性;FC = 倍数变化。请点击此处查看此图的放大版本。
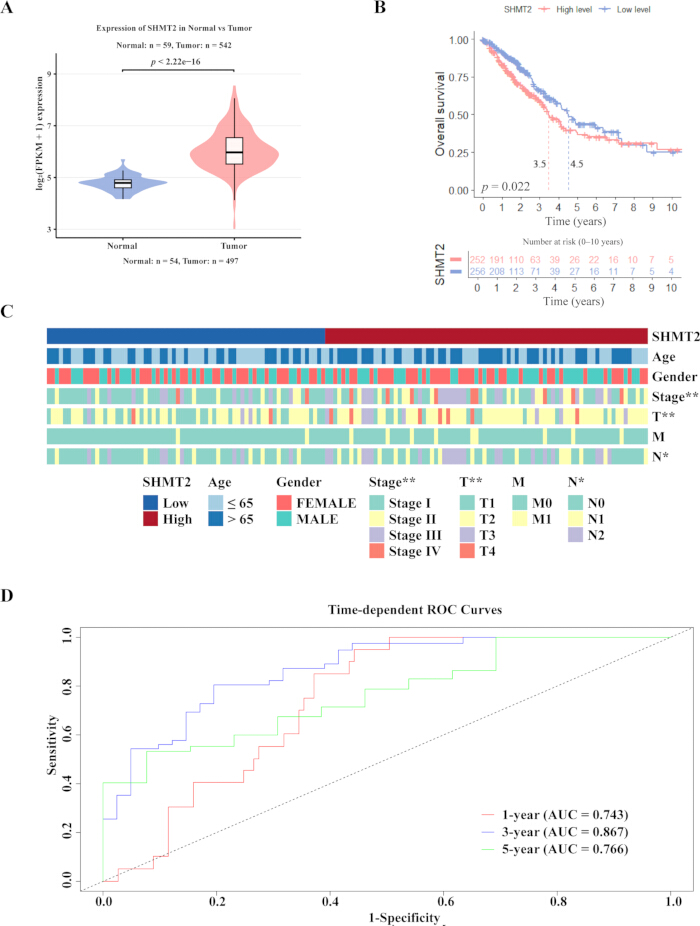
图2:SHMT2在LUAD中表达上调,并可预测TCGA-LUAD患者的不良预后。(A)利用TCGA-LUAD的RNA-seq数据,比较正常肺组织(n = 59)与LUAD肿瘤组织(n = 542)中SHMT2的表达水平的小提琴图。(B)根据SHMT2表达中位值将患者分为两组绘制的Kaplan-Meier总生存曲线。SHMT2高表达组以粉色表示,SHMT2低表达组以蓝色表示。(C)热图显示SHMT2表达水平与临床病理特征之间的关联,包括年龄、性别、总体病理分期(I–IV期)、原发肿瘤分期(T1–T4)、区域淋巴结分期(N0–N2)以及远处转移分期(M0–M1)。* 表示SHMT2高表达组与低表达组之间具有统计学显著性差异(*p < 0.05;**p < 0.01;卡方检验)。(D)时间依赖性ROC曲线评估SHMT2表达水平对LUAD患者1年、3年和5年总生存率的预测效能。图中显示了相应的AUC值。缩写:SHMT2 = serine hydroxymethyltransferase 2;FPKM = 每百万比对读段中每千碱基转录本的片段数;ROC = 受试者工作特征曲线;AUC = 曲线下面积。请点击此处查看此图的高清版本。
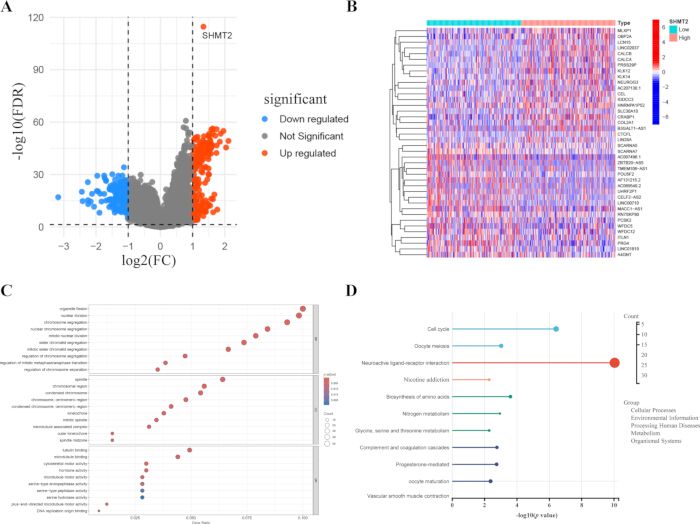
图3:SHMT2高表达与SHMT2低表达肿瘤的转录组分析揭示了SGOC/一碳代谢及增殖相关程序。(A)显示SHMT2高表达与SHMT2低表达肺腺癌(LUAD)肿瘤之间差异表达基因的火山图。上调基因以红色表示,下调基因以蓝色表示,无显著性差异的基因以灰色表示。(B)代表性差异表达基因(DEG)的热图,采用无监督层次聚类。(C)差异表达基因的基因本体(Gene Ontology)富集分析。气泡大小表示基因数量,颜色表示校正后的p值,横轴表示基因比率。(D)差异表达基因的KEGG通路富集分析。圆点大小表示基因数量,横轴表示−log₁₀(p值)。缩写:SHMT2 = serine hydroxymethyltransferase 2;FDR = false discovery rate;FC = fold change。请点击此处查看该图的放大版本。
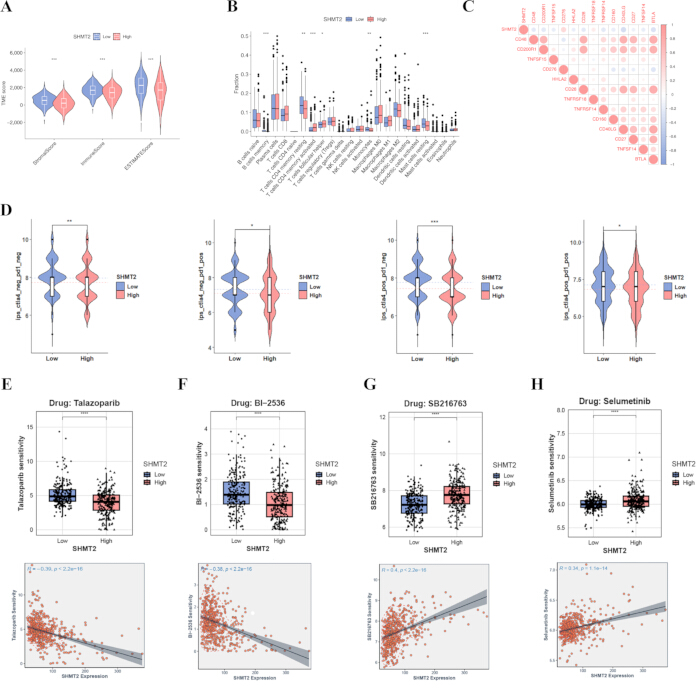
图4SHMT2 表达与肿瘤免疫微环境、预测的免疫治疗反应及药物敏感性相关。 (ASHMT2高表达组与SHMT2低表达组之间TME评分、ESTIMATE评分、基质评分、免疫评分及肿瘤纯度的比较。BSHMT2低表达与SHMT2高表达肿瘤之间由CIBERSORT估算的免疫细胞浸润比较。C) SHMT2 与免疫检查点相关基因之间的 Spearman 相关性矩阵。圆圈大小反映相关性强弱,颜色表示 Spearman’s ρ(从正到负)。(D四种免疫检查点阻断条件下的免疫表型评分比较(CTLA4-/PD-1-、CTLA4-/PD-1+、CTLA4+/PD-1-、CTLA4+/PD-1+),提示SHMT2高表达肿瘤的预测获益降低。E) SHMT2高表达组与SHMT2低表达组对Talazoparib的预测敏感性,以估计的IC₅₀值表示(上图),以及SHMT2表达水平与预测药物敏感性之间的相关性(下图)。F) SHMT2高表达组与SHMT2低表达组对BI-2536的预测敏感性,以上估算的IC₅₀值表示(上图),以及SHMT2表达水平与预测药物敏感性之间的相关性(下图)。GSHMT2高表达组与SHMT2低表达组对S63845的预测敏感性,以预测的IC₅₀值表示(上图),以及SHMT2表达水平与预测药物敏感性之间的相关性(下图)。HSHMT2高表达组与SHMT2低表达组对司美替尼的预测敏感性,以预测的IC₅₀值表示(上图),以及SHMT2表达水平与预测药物敏感性之间的相关性(下图)。缩写:SHMT2 = 丝氨酸羟甲基转移酶2;TME = 肿瘤微环境;ESTIMATE = 利用表达数据评估恶性肿瘤组织中的基质细胞和免疫细胞;IC₅₀ = 半数抑制浓度 请点击此处以查看此图的放大版本。
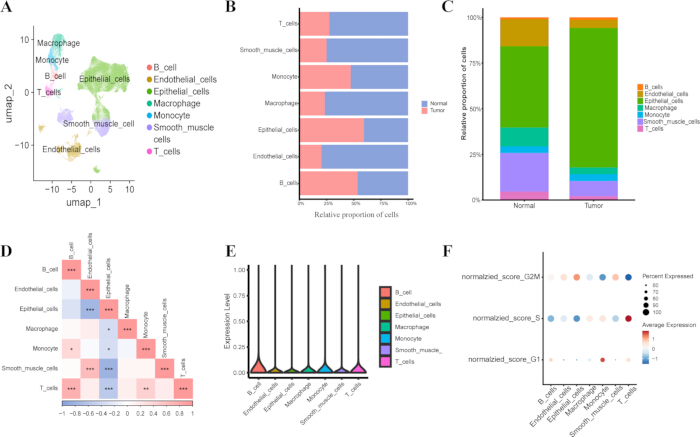
图5:单细胞图谱揭示LUAD中细胞组成改变、SHMT2表达偏倚及细胞周期异质性。(A)来自LUAD及相邻正常肺组织的公开单细胞转录组数据的UMAP可视化图,按注释的细胞类型着色。(B)正常与肿瘤样本中各细胞类型的相对比例,以水平堆叠柱状图表示。(C)总体细胞组成以垂直堆叠柱状图表示。(D)细胞类型比例的Spearman相关性热图;红色表示正相关,蓝色表示负相关(*p < 0.05,**p < 0.01,***p < 0.001)。(E)主要细胞类型中SHMT2表达的小提琴图。(F)点图显示各鉴定出的细胞类型中G1期、S期和G2/M期细胞周期评分;点的大小表示细胞百分比,颜色表示平均细胞周期评分。缩写:UMAP = Uniform Manifold Approximation and Projection。请点击此处查看该图的放大版本。
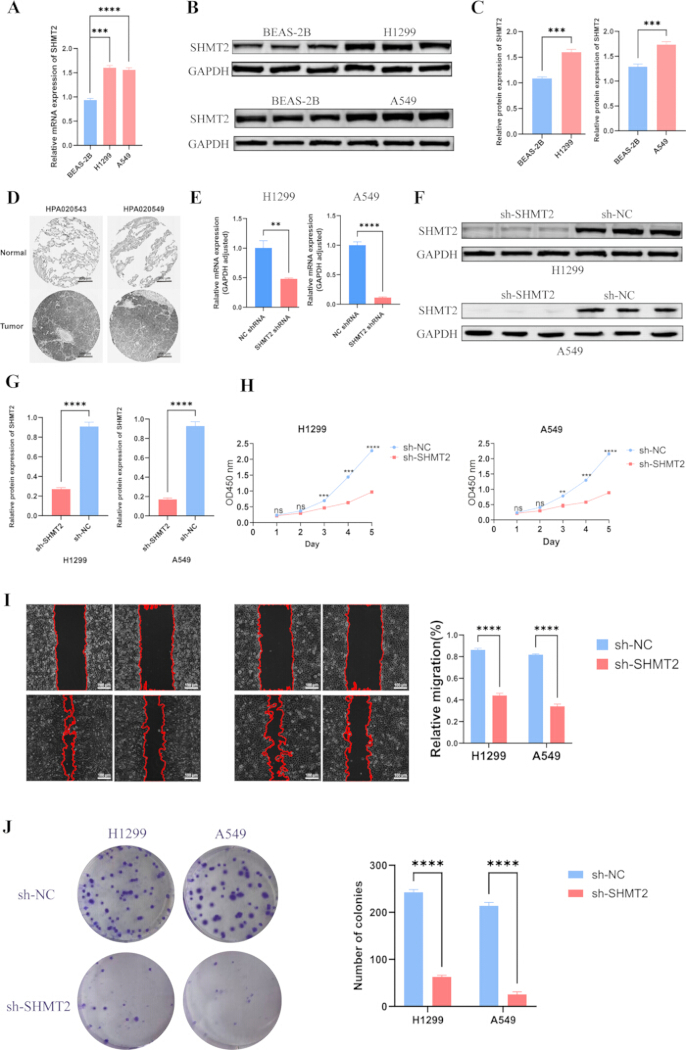
图6:SHMT2表达的实验与组织学验证,以及在LUAD细胞中敲低SHMT2的功能效应。(A) 正常支气管上皮细胞(BEAS-2B)和LUAD细胞系(H1299和A549)中SHMT2 mRNA表达的RT-qPCR分析。(B) BEAS-2B、H1299和A549细胞中SHMT2蛋白表达的Western印迹分析,GAPDH作为上样对照。(C) H1299和A549细胞中SHMT2蛋白表达水平相对于BEAS-2B的密度计量定量结果,以GAPDH归一化。(D) 利用人蛋白质图谱(HPA)中正常肺组织和LUAD组织的代表性免疫组化(IHC,×200)图像,使用抗体HPA020543和HPA020549检测SHMT2表达。(E) 转染sh-SHMT2或sh-NC的H1299和A549细胞中SHMT2敲低效率的RT-qPCR验证。(F) 在H1299和A549细胞中敲低SHMT2后SHMT2蛋白表达的Western印迹分析。(G) SHMT2敲低后SHMT2蛋白水平相对于GAPDH的密度计量定量结果。(H) CCK-8细胞增殖实验显示敲低SHMT2对H1299和A549细胞增殖的影响。(I) 划痕愈合实验(×200)显示H1299和A549细胞在SHMT2敲低后迁移能力降低;右侧面板显示相对迁移量的定量结果。(J) 克隆形成实验显示H1299和A549细胞在SHMT2敲低后克隆形成能力下降;右侧面板显示克隆数量的定量结果。数据表示为至少三次独立实验的均值±标准差。*p < 0.05,**p < 0.01,***p < 0.001,****p < 0.0001。缩写:sh-NC = 短发夹RNA阴性对照;sh-SHMT2 = 靶向SHMT2的短发夹RNA。 请点击此处查看该图的放大版本。
补充图1:SHMT2表达水平与TCGA-LUAD中预测的药物敏感性呈负相关。基于TCGA-LUAD样本预测药物反应,并通过中位值截断定义的SHMT2低表达与高表达肿瘤之间进行比较。对于每种化合物,上方图显示基于IC50 (半数抑制浓度)的反应评分在各组间的差异(数值越低表示预测敏感性越高),下方图显示连续的SHMT2表达水平与预测敏感性之间的关联,含拟合的线性回归线及95%置信区间带。组间比较采用双侧Wilcoxon秩和检验,相关性以Spearman's r表示,并提供相应的p 值(* p < 0.05,** p < 0.01,*** p < 0.001)。(A) 阿糖胞苷。( B) GDC0810。( C) P22077。( D) 伊立替康。( E) AZD4547。( F) 帕博西尼。( G) VE821。( H) I-BRD9。( I) 奥沙利铂。请点击此处下载该文件。
补充图 2:单细胞分辨率下不同细胞类型细胞周期各阶段评分分布的山脊图可视化。 山脊图展示了主要细胞类型(包括 B 细胞、T 细胞、上皮细胞、巨噬细胞、单核细胞、内皮细胞和血管平滑肌细胞)中归一化的细胞周期评分分布。(A) G1 期评分。(B) S 期评分。(C) G2/M 期评分。分布形态与峰值位置的差异表明,在肺腺癌微环境中,不同细胞群体的增殖状态具有异质性。请点击此处下载该文件。
补充表1:纳入配对组织代谢组学分析的23例LUAD患者的去标识化临床病理特征。 变量包括患者编号、性别、年龄、原发肿瘤分期(T)、区域淋巴结分期(N)以及总体病理分期。请点击此处下载该文件。
补充表 2:肺腺癌与配对相邻正常组织中鉴定出的差异代谢物。 该表格列出了每个差异代谢物的 HMDB 访问编号、代谢物名称、分子式、VIP 值、log₂(FC) 和 p 值。缩写:HMDB = Human Metabolome Database;VIP = 变量投影重要性;FC = 倍数变化。请点击此处下载该文件。
补充表 3:定量反转录 PCR(RT-qPCR)所用引物序列。 该表格列出了用于基因表达分析的靶基因、引物方向(正向或反向)以及引物序列(5′–3′)。请点击此处下载该文件。
讨论
本研究采用了一种顺序研究框架,包括代谢组学发现、酶的优先排序、转录组学解读、免疫微环境评估、单细胞定位以及肿瘤细胞功能验证。分析结果揭示了肺腺癌(LUAD)中与甘氨酸相关及一碳代谢(SGOC)的代谢重塑,并将SHMT2与不良预后及较低的计算预测免疫治疗获益相关联。该优先排序策略优于仅依赖单一组学层面的方法,但并未确立其免疫因果机制。
SHMT2 是丝氨酸转化为甘氨酸并生成一碳单位的主要线粒体入口。TCGA-LUAD 分析显示,肿瘤相关性 SHMT2 表达上调,并将高表达水平与较差的生存率及不利的临床病理特征相关联。这些发现与多项研究结果一致,后者表明 SHMT2 与癌细胞的存活、增殖、侵袭以及治疗耐药性相关20,21,22,23。其他研究还揭示了 SHMT2 在表观遗传调控中的作用,并推动了选择性一碳代谢酶抑制剂的研发24,25。差异表达与富集分析进一步表明,SHMT2 属于一个协调的丝氨酸-甘氨酸-一碳(SGOC)代谢与细胞周期程序的一部分,而非孤立的基因水平变化。因此,代谢物通路富集结果与 SHMT2 相关转录特征之间的一致性有助于增强候选分子的优先排序,但其在多组学层面的关系仍为相关性关联。
SHMT2高表达肿瘤与免疫劣势微环境之间的关联可通过三条非互斥途径加以解释。首先,肿瘤细胞对丝氨酸、甘氨酸、叶酸相关的一碳单位以及甲硫氨酸循环底物的需求增加,可能改变营养物质的分配,降低邻近淋巴细胞的代谢适应性。其次,SHMT2支持的NADPH、谷胱甘肽和核苷酸生成可能增强肿瘤细胞在氧化应激和营养压力条件下的存活能力,从而改变释放到微环境中的应激相关信号。第三,一碳代谢通量及S-腺苷甲硫氨酸的可利用性可影响恶性细胞和免疫细胞中依赖甲基化的调控程序。26,27,28,29这些机制在生物学上是合理的,但目前的批量分析和单细胞分析并未直接测量局部代谢物、细胞因子分泌或免疫细胞功能。因此,SHMT2高表达肿瘤中较低的TIDE/TCIA预测疗效应被解读为一种假说,即丝氨酸-甘氨酸-一碳代谢(SGOC)活性与免疫劣势相关,而非证明SHMT2导致临床免疫治疗耐药。
单细胞分析提供了更高的结构分辨率。对公开可用的单细胞RNA测序数据的分析显示,肿瘤组织与正常肺组织相比,细胞组成发生改变,且B细胞与T细胞比例之间呈正相关,提示适应性免疫的协同作用30。SHMT2的表达在B细胞中相对富集,但在上皮细胞中仍可检测到。这一发现具有重要意义,因为B细胞及三级淋巴样结构可支持抗原呈递、局部抗体反应以及对免疫检查点阻断治疗的响应18,31,32,33;然而,该结果并未鉴定出具体的B细胞亚型,也未明确B细胞中的SHMT2表达是有益还是有害。批量分析与单细胞分析结果均指向细胞周期活性:在SHMT2高表达的肿瘤中,有丝分裂和染色体分离相关基因术语富集,且不同细胞类型的S期和G2/M期评分存在差异。由于线粒体一碳代谢可提供核苷酸前体,这些发现支持SHMT2相关的丝氨酸-甘氨酸-一碳(SGOC)代谢活性与增殖需求之间存在合理的关联。
Xi 等人发现了一个 TP63-RAC2 信号程序,该程序可增强巨噬细胞的胞葬作用,促进 M2 样极化,并使食管癌向免疫抑制状态重塑34,为肿瘤-巨噬细胞间的通讯提供了直接例证。Jiang 等人将胰腺癌中的 SATB2 与肿瘤细胞增殖、迁移以及 T 细胞细胞毒性的改变联系起来35,展示了肿瘤内在效应与免疫效应的同时存在。相比之下,Liu 等人表明 TRIM29 通过降解 NEFL 并激活 PI3K/AKT 通路驱动胶质母细胞瘤的发生36;这一主要为肿瘤内在的机制警示我们,不应将所有不利的免疫关联都归因于细胞因子信号传导。Zhai 等人发现 WDR54 介导的 NF-κB 信号在肝细胞癌中被放大37,揭示了一个细胞因子响应性炎症节点,可将恶性行为与微环境信号相偶联。Yin 等人通过共培养和 in vivo 实验表明,在头颈部肿瘤中,PLAU 与神经生长因子相关的神经周围相互作用协同作用38,证明可溶性及细胞外因子能够调控非免疫性基质间的交互通讯。最后,Liu 等人总结了细胞因子驱动的 JAK/STAT 信号通路的双重、依赖于情境的作用:持续的 IL-6/STAT3 和干扰素相关信号可促进 PD-L1 表达、抑制性髓系状态以及 T 细胞耗竭;而适时的信号传导对于抗原呈递和抗肿瘤免疫同样必不可少39。综上所述,这些研究为探索 SGOC 重编程是否能够改变细胞因子、巨噬细胞、基质或淋巴细胞状态提供了生物学依据,但尚无研究确立 SHMT2 特异性的细胞因子调控回路在 LUAD 中的作用。因此,当前的 TIDE/TCIA 发现为后续机制研究定义了一个可验证的方向。
氧化还原调控提供了一个特别相关的机制背景。DeNicola 等人在非小细胞肺癌中证明,NRF2 通过 ATF4 调控 PHGDH、PSAT1 和 SHMT2,支持谷胱甘肽和核苷酸的生成,并将这一调控程序与不良预后相关联40。最近,Zhang 等人发现,在HER2抑制后存活的食管腺癌细胞中NRF2积累;NRF2敲低增强了拉帕替尼的细胞毒性,而NRF2的持续表达则降低了药物敏感性并导致对NRF2的依赖41。后一项研究未直接测试SHMT2抑制的作用,但这些发现共同提示,SHMT2可能作为NRF2支持的氧化还原与生物合成程序的一部分发挥作用。在肺腺癌(LUAD)中,应通过分层分析KEAP1/NFE2L2状态,并确定SHMT2扰动是否选择性增加活性氧水平或恢复NRF2激活模型的治疗敏感性,来验证这一假说。
与仅进行代谢组学或仅进行转录组学分析相比,整合性工作流程可将组织水平的代谢物信号与通路相关基因表达、细胞类型分布以及扰动表型关联起来。该设计可提高候选分子的优先级排序能力,并可通过替换公共转录组或单细胞数据集进行扩展;但每一层数据均会引入独特的变异性来源。快速且均匀的组织冷冻至关重要,因为切除后延迟可能导致小分子丰度发生变化。质谱信号漂移、总离子流信号不稳定或置换检验性能不佳时,应在进行代谢物解读前触发重新校准、信号质量审查及重新分析。批量分析需要预先设定的分组和过滤阈值,而单细胞分析的结论则应在合理的质量控制和聚类分辨率参数范围内进行验证。In vitro 验证需要匹配的细胞传代次数、相当的汇合度、一致的划痕宽度,以及在表型检测前确认SHMT2基因敲低效果。这些质控节点有助于提高可重复性,但并不能消除队列、平台或模型特异性带来的影响。
若干局限性制约了结果的解读。组织代谢组学队列规模有限,所鉴定的代谢物需通过靶向定量方法进一步验证。免疫治疗获益和药物敏感性系基于转录组模型推断得出,而非来自接受免疫检查点抑制剂治疗队列的实际测量或药理学实验数据。单细胞数据集提示SHMT2表达偏向B细胞,但未能解析B细胞亚型、空间分布特征或SHMT2依赖性的免疫功能。 体外 实验在基因敲低后建立了肿瘤细胞生长和迁移的表型,但未证实细胞因子介导的免疫机制或治疗安全性。未来的研究应根据KEAP1/NFE2L2状态对肿瘤进行分层,定量分析SGOC通量和细胞因子分泌,并将SHMT2扰动与免疫共培养、空间图谱分析、药物选择性研究相结合,并 体内 验证
总之,SHMT2 与 LUAD 中的丝氨酸-甘氨酸-一碳代谢重塑、不良预后、增殖性转录程序、免疫劣势的肿瘤微环境以及计算预测的较低免疫治疗响应率相关。单细胞分析表明,SHMT2 表达在 B 细胞群体中相对富集,而 体外 敲低抑制了LUAD细胞的增殖、迁移和克隆形成能力。这些发现支持SHMT2作为候选生物标志物进行进一步验证,并为研究代谢与免疫相互作用提供了可检验的框架。
披露
作者声明无竞争利益。
致谢
作者感谢参与本研究的患者及其家属。作者同时感谢癌症基因组图谱(TCGA)、基因表达综合数据库(GEO)和人类蛋白质图谱(HPA)数据库的贡献者公开共享其数据。本研究由江西省重点研发计划(项目编号:20223BBG71009)和国家自然科学基金(项目编号:81860379 和 82160410)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| A549 细胞 | CCL-185 | ATCC | |
| 抗 GAPDH 抗体 | M1310-2 | Huaan Biotechnology | |
| 抗 SHMT2 抗体 | D197021 | Sangon Biotech | |
| BEAS-2B 细胞 | CRL-9609 | ATCC | |
| 细胞计数试剂盒-8(CCK-8) | K1018 | APExBIO | |
| 数据库:TCGA / GDC | 访问日期 2025-12-18 | 美国国家癌症研究所(NCI) | |
| 数据库:GEO | 访问日期 2025-12-20 | NCBI | |
| 数据库:HMDB | 访问日期 2025-12-12 | 人类代谢组数据库(Human Metabolome Database) | |
| 数据库:KEGG | 访问日期 2025-12-11 | Kanehisa 实验室 | |
| 数据库:人类蛋白质图谱(Human Protein Atlas) | Protein Atlas | ||
| 数据库:GDSC | 2023-12 版本 | 桑格研究所(Sanger Institute) | |
| 数据库:Ensembl | 2025-12 | EMBL-EBI | |
| 数据库:TCIA | 访问日期 2025-12-10 | 癌症免疫组图谱(The Cancer Immunome Atlas) | |
| H1299 细胞(NCI-H1299) | CRL-5803 | ATCC | |
| HRP 标记二抗 | D110087 | Sangon Biotech | |
| HiScript II Q Select RT 超级混合液 | KR116 | Tiangen Biotech | |
| LightCycler 480 系统 | 5015278001 | Roche | |
| 脱脂牛奶 | 常见实验试剂 | BD(或实际使用品牌) | |
| PVDF 膜,0.22 µm | GVHP00010(或常见实验试剂) | MilliporeSigma(或实际使用品牌) | |
| R 软件包:pRoloc | 1.40.0 | Bioconductor | |
| R 软件包:TCGAbiolinks | 2.26.0 | Bioconductor | |
| R 软件包:survival | 3.4-0 | CRAN | |
| R 软件包:survminer | 0.4.9 | CRAN | |
| R 软件包:timeROC | 1.0.4 | CRAN | |
| R 软件包:DESeq2 | 1.38.1 | Bioconductor | |
| R 软件包:ggplot2 | 3.4.4 | CRAN | |
| R 软件包:pheatmap | 1.0.12 | CRAN | |
| R 软件包:clusterProfiler | 4.6.2 | Bioconductor | |
| R 软件包:org.Hs.eg.db | 3.16.0 | Bioconductor | |
| R 软件包:estimate | 1.0.13 | Bioconductor / GitHub | |
| R 软件包:CIBERSORT | 1 | (独立 R 脚本) | |
| R 软件包:corrplot | 0.92 | CRAN | |
| R 软件包:TIDE | 0.3.0 | R 软件包 | |
| R 软件包:oncoPredict | 1.1.1 | CRAN / GitHub | |
| R 软件包:GEOquery | 2.66.0 | Bioconductor | |
| R 软件包:Seurat | 4.3.0 | CRAN | |
| R 软件包:SingleR | 1.10.0 | Bioconductor | |
| R 软件包:scran | 1.26.0 | Bioconductor | |
| SYBR Green qPCR 通用主混合液 | HY-K0501A | MedChemExpress (MCE) | |
| TRIzol 通用试剂 | DP424 | Tiangen Biotech |
参考文献
- Siegel RL, et al. Cancer statistics, 2025. CA Cancer J Clin. 2025;75(1):10-45.
- Lim ZF, Ma PC. Emerging insights of tumor heterogeneity and drug resistance mechanisms in lung cancer targeted therapy. J Hematol Oncol. 2019;12(1):134.
- Wang M, Herbst RS, Boshoff C. Toward personalized treatment approaches for non-small-cell lung cancer. Nat Med. 2021;27:1331-1340.
- Passaro A, et al. Managing resistance to immune checkpoint inhibitors in lung cancer: treatment and novel strategies. J Clin Oncol. 2022;40:598-609.
- Faubert B, Solmonson A, DeBerardinis RJ. Metabolic reprogramming and cancer progression. Science. 2020;368:eaaw5473.
- Wei S, et al. Targeting serine-glycine-one-carbon metabolism as a vulnerability in cancers. Biomark Res. 2023;11:48.
- Kao KC, Vilbois S, Tsai CH, Ho PC. Metabolic communication in the tumour-immune microenvironment. Nat Cell Biol. 2022;24(11):1574-1583.
- Wong C, Qian Y, Yu J. Interplay between epigenetics and metabolism in oncogenesis: mechanisms and therapeutic approaches. Oncogene. 2017;36:3359-3374.
- Xu M, Pei DS. Serine hydroxymethyltransferase 2: a novel target for human cancer therapy. Invest New Drugs. 2021;39:1671-1681.
- Zeng Y, et al. Roles of mitochondrial serine hydroxymethyltransferase 2 (SHMT2) in human carcinogenesis. J Cancer. 2021;12(19):5888-5894.
- Liberati FR, et al. RNA-mediated inhibition of mitochondrial SHMT2 impairs cancer cell proliferation. Cell Death Discov. 2025;11:369.
- Fu R, et al. SHMT proteins: an emerging set of serine hydroxymethyltransferase in cancer. Cell Signal. 2025;135:111977.
- Zhang Y, et al. SHMT2 promotes cell viability and inhibits ROS-dependent, mitochondrial-mediated apoptosis via the intrinsic signaling pathway in bladder cancer cells. Cancer Gene Ther. 2022;29(10):1514-1527.
- Wens M, et al. Metabolic control of BRISC-SHMT2 assembly regulates immune signalling. Nature. 2019;570:460-464.
- Ivashkiv LB. IFNγ: signalling, epigenetics and roles in immunity, metabolism, disease and cancer immunotherapy. Nat Rev Immunol. 2018;18:545-558.
- De Martino M, Rathmell JC, Galluzzi L, Vanpouille-Box C. Cancer cell metabolism and antitumour immunity. Nat Rev Immunol. 2024;24:654-669.
- Qi Y, et al. One-carbon metabolism shapes T cell immunity in cancer. Trends Endocrinol Metab. 2024;35:961-974.
- Huang D, et al. The single-cell immunogenomic landscape of B and plasma cells in early-stage lung adenocarcinoma. Cancer Discov. 2022;12:2545-2563.
- Dolgalev I, et al. Inflammation in the tumor-adjacent lung as a predictor of clinical outcome in lung adenocarcinoma. Nat Commun. 2023;14:6479.
- Han T, et al. Phosphorylated SHMT2 regulates oncogenesis through m6A modification in lung adenocarcinoma. Adv Sci (Weinh). 2024;11:e2307834.
- Lee GY, et al. Comparative oncogenomics identifies PSMB4 and SHMT2 as potential cancer driver genes. Cancer Res. 2014;74:3114-3126.
- Bernhardt S, et al. Proteomic profiling of breast cancer metabolism identifies SHMT2 and ASCT2 as prognostic factors. Breast Cancer Res. 2017;19:112.
- Yang G, Tan J, Guo J, Wu Z, Zhan Q. Exosome-mediated transfer of circ_0063526 enhances cisplatin resistance in gastric cancer cells via regulating the miR-449a/SHMT2 axis. Anticancer Drugs. 2022;33(10):1047-1057.
- Parsa S, et al. The serine hydroxymethyltransferase-2 (SHMT2) initiates lymphoma development through epigenetic tumor suppressor silencing. Nat Cancer. 2020;1:653-664.
- Cuthbertson CR, et al. A review of small-molecule inhibitors of one-carbon enzymes: SHMT2 and MTHFD2 in the spotlight. ACS Pharmacol Transl Sci. 2021;4:624-646.
- Reina-Campos M, Scharping NE, Goldrath AW. CD8+ T cell metabolism in infection and cancer. Nat Rev Immunol. 2021;21:718-738.
- Bacigalupa ZA, Landis MD, Rathmell JC. Nutrient inputs and social metabolic control of T cell fate. Cell Metab. 2024;36:10-20.
- Li S, et al. Metabolic regulation of immunity in the tumor microenvironment. Cell Rep. 2025;44(11):116463.
- Ouyang Y, et al. S-adenosylmethionine: a metabolite critical to the regulation of autophagy. Cell Prolif. 2020;53(11):e12891.
- Wang R, et al. The interaction of innate immune and adaptive immune system. MedComm. 2024;5(10):e714.
- Teillaud JL, et al. Tertiary lymphoid structures in anticancer immunity. Nat Rev Cancer. 2024;24:629-646.
- Fridman WH, et al. B cells and tertiary lymphoid structures as determinants of tumour immune contexture and clinical outcome. Nat Rev Clin Oncol. 2022;19:441-457.
- Lauss M, Donia M, Svane IM, Jönsson G. B cells and tertiary lymphoid structures: friends or foes in cancer immunotherapy? Clin Cancer Res. 2022;28(9):1751-1758.
- Xi Y, et al. Macrophage efferocytosis mediated by the TP63-RAC2 pathway promotes immunosuppressive remodeling in esophageal cancer. Cell Rep Med. 2026;7(1):102529.
- Jiang G, et al. SATB2 plays a critical role in pancreatic cancer cell proliferation, migration and T cell cytotoxicity. Cancer Genet. 2025;296-297:53-64.
- Liu Y, et al. TRIM29 promotes glioblastoma progression via ubiquitinating NEFL and activating the PI3K/AKT signaling pathway. Cancer Genet. 2025;296-297:88-99.
- Zhai H, et al. WDR54 enhances NF-κB signaling to promote progression of hepatocellular carcinoma. Cancer Genet. 2025;298-299:302-314.
- Yin H, et al. PLAU serves as a prognostic biomarker correlated with perineural invasion in HNSCC. Cancer Genet. 2025;294-295:145-155.
- Liu Z, et al. JAK inhibition in PD-1 immunotherapy and tumor microenvironment. Front Immunol. 2026;17:1790936.
- DeNicola GM, et al. NRF2 regulates serine biosynthesis in non-small cell lung cancer. Nat Genet. 2015;47(12):1475-1481.
- Zhang W, et al. NRF2-mediated persistent adaptation of oesophageal adenocarcinoma cells to HER2 inhibition. Oncogene. 2025;44(33):2929-2941.