我们描述了一种灵敏的、基于时间分辨定量分析的平台,利用基于微孔板的发光系统来检测人诱导性多能干细胞(iPSC)来源的小胶质细胞对外源性tau蛋白的清除能力。该方法可在微孔板中灵敏地检测tau蛋白的降解动力学,从而在多种实验条件下对tau蛋白的处理过程进行高通量分析。
本文内容
摘要
摘要
作为中枢神经系统中的常驻免疫细胞,小胶质细胞是脑内稳态的核心调控者,也是神经退行性疾病的关键介导者。这些细胞持续监测神经微环境,在识别、内化和降解细胞外底物(包括错误折叠和聚集的蛋白质,如病理性tau蛋白)过程中发挥重要作用。尽管越来越多的证据表明小胶质细胞参与tau蛋白的清除,但目前用于测量tau摄取与降解的方法在时间分辨率和灵敏度方面仍存在不足,难以全面捕捉这些动态过程。本文中,我们开发了一种基于发光的检测方法,用于定量监测人诱导性多能干细胞(iPSC)来源的小胶质细胞中tau蛋白的清除。该平台利用基于分裂荧光素酶的互补系统,实现对活细胞中tau蛋白的高灵敏度、实时检测,从而精确追踪其细胞内加工过程。该检测方法具有可扩展性和跨多种细胞类型的适应性,为研究神经退行性疾病(包括阿尔茨海默病)中调控tau蛋白处理的内体-溶酶体通路及细胞机制提供了多功能工具。
引言
包括阿尔茨海默病(AD)在内的tau蛋白病,其特征是微管相关蛋白tau在神经回路中发生聚集和扩散1,2。胶质细胞在调节tau蛋白病动态过程中的作用日益受到重视,包括对tau蛋白的摄取、降解和传播等环节3,4,5,6,7,8,9,10,11,12。明确胶质细胞在tau蛋白病中的作用,对于阐明神经炎症和tau蛋白传播等关键疾病机制具有迫切的重要性。在各类胶质细胞中,小胶质细胞——大脑的常驻吞噬细胞——在介导tau蛋白清除方面具有独特的优势。
尽管迫切需要阐明小胶质细胞中 tau 蛋白的处理机制,但目前可用的检测方法在分辨率和通量方面仍存在局限。关于 tau 蛋白的内吞、细胞内转运和细胞清除等关键问题仍未解决。这些步骤各自代表了机制上不同的过程:摄取是指在细胞膜上对外源性 tau 蛋白的内化;转运是指内化后的 tau 蛋白在内体、溶酶体及其他细胞内区室之间的分选与运输;而降解则主要通过溶酶体和蛋白酶体途径对 tau 蛋白进行蛋白水解。尽管对于外源性 tau 蛋白的处理而言,这些步骤在时序上是连续的——因为内化的 tau 必须经过细胞内区室的转运才能到达降解系统——但它们受到独立调控,某一实验干预可能只影响其中一个步骤而不影响其他步骤。例如,细胞内 tau 信号的减少可能反映了摄取受损、偏离降解区室的错误转运,或降解增强。要解析这些过程,需要新的检测平台,能够检测蛋白的存在,并可与现有方法结合,以确定蛋白随时间推移的命运变化。
目前用于解析tau蛋白内化和降解的方法依赖于免疫细胞化学、流式细胞术、蛋白质印迹以及荧光标记技术,以定量检测tau蛋白的摄取、亚细胞定位及其在细胞内的加工过程13,14,15,16,17,18。然而,当这些方法应用于蛋白质清除动力学研究时,均存在根本性局限。免疫细胞化学和蛋白质印迹技术难以检测低丰度的tau蛋白,且操作繁琐耗时。流式细胞术和基于荧光的检测方法则因荧光基团在偶联蛋白降解后仍可能持续存在而无法真实反映蛋白质的清除情况19,从而导致荧光信号与目标蛋白的实际命运脱节。上述局限共同造成一个关键空白:尚无现有方法能够同时提供定量追踪tau蛋白清除动力学所需的灵敏度、时间分辨率和可扩展性。因此,阻碍小胶质细胞中tau蛋白处理机制研究进展的主要障碍,一直在于缺乏可用于活细胞中定量、时间分辨且高通量的tau蛋白清除检测方法。
为解决缺乏定量监测活体tau蛋白动态平台的问题,我们开发了一种基于发光的高灵敏度检测方法,可用于检测细胞内tau蛋白的动态变化。该方法采用基于分裂荧光素酶的互补系统,将一个小肽标签(高亲和力二元技术,HiBiT)与tau蛋白融合,从而实现在活细胞中进行动力学检测。当该标记蛋白与其互补结合伴侣(大二元技术,LgBiT)相互作用时,可重建具有活性的荧光素酶,产生定量的生物发光信号20,21,22。该发光信号可直接、灵敏地反映蛋白丰度,实现对细胞内蛋白水平随时间变化的动态追踪。因此,发光信号可作为蛋白存在或降解的可靠报告指标,例如用于监测细胞内蛋白的降解过程。综上,该平台能够精确、实时地测量tau蛋白的代谢过程,并为研究蛋白周转提供了一种广泛适用的策略。
方案
所有细胞实验均在经马萨诸塞大学阿默斯特分校环境与健康服务部门批准的相应生物安全二级实验室中进行。
1. Tau-SLP 蛋白的表达、纯化及内毒素去除
- 使用吉布森组装等标准克隆方法,将分裂荧光素酶肽(split-luciferase peptide)或 SLP 标签(VSGWRLFKKIS)连接至 Tau 构建体上,以生成带标签的构建体(Tau-SLP)23。
注意:当 SLP 标签被置于 2N4R Tau 的 C 末端、N 末端或内部结构域时,分裂荧光素酶肽标签的互补可产生强健的信号24。 - 采用先前描述的方法表达并纯化 Tau-SLP25,26,并通过 SDS-PAGE 和免疫印迹法确认其纯度。
- 若用于小胶质细胞实验,请遵循已发表的方案,在 Tau-SLP 纯化后去除细菌内毒素,以减少干扰性反应27。
- 使用标准的二辛可宁酸法(BCA)或 Bradford 法测定 Tau-SLP 蛋白浓度28,29。
- 如需要,可按照先前描述的方案诱导 Tau-SLP 聚集24。
- 通过商用荧光素酶底物和互补试剂,按照制造商说明生成标准曲线,以验证 Tau-SLP 的功能性发光活性(参见 材料表)。
2. 诱导多能干细胞来源的小胶质细胞(iTF-小胶质细胞)培养
- 在适当的培养基中,于含5% CO2的环境中37 °C培养小胶质细胞。
- 使用已验证的方案30(见材料表),将携带六种强力霉素诱导型转录因子的诱导多能干细胞(iPSC)系分化为类小胶质细胞(诱导型转录因子类小胶质细胞,iTF-Microglia)。
注意:本实验不限于iTF-Microglia,也可用于任何贴壁细胞系。当使用其他细胞系时,可能需要优化清除时间。
3. Tau 蛋白清除实验
- 在24孔板中,以每孔1 × 10⁵个细胞的密度接种细胞,每种条件设三个重复孔,每孔加入250 µL培养基,并在37 °C、5% CO2条件下过夜培养(图1A)。
- 移除培养基,用PBS(250 µL)洗涤细胞一次,然后更换为250 µL新鲜培养基。
- 为实现Tau-SLP清除过程的时间动态测量,需分阶段加入Tau-SLP,使所有孔在同一时间点终止实验,仅清除时间不同。例如,对于0 h、2 h和4 h清除组,首先向4 h组加入含100 nM Tau-SLP的培养基,1小时后加入2 h组,再过1小时后加入0 h组(参见图1B中的时间安排建议)。当最终的内化阶段完成后,所有孔经历的Tau-SLP暴露时间相同,仅清除持续时间不同(图1B)。
- 设置未接受Tau-SLP处理的孔作为背景扣除对照(图1C)。
- 内化阶段结束后,移除含Tau-SLP的培养基,用PBS洗涤细胞三次以去除细胞外Tau-SLP,然后更换为不含Tau-SLP的新鲜培养基。
- 将细胞在指定的清除时间内继续孵育(图1A)。0 h清除组在内化结束后立即收集,代表清除阶段开始时细胞内吞入的Tau-SLP总量。
- 完成所有清除时间点后,移除各孔中的培养基,并用250 µL PBS洗涤一次。
- 每孔加入250 µL 0.25%胰蛋白酶-EDTA,在37 °C处理5分钟。此步骤可去除细胞表面结合的tau蛋白,确保发光信号仅反映细胞内化的Tau-SLP。随后每孔加入250 µL胰蛋白酶抑制剂(5 mg/mL)中和反应。
- 将每孔细胞收集至适当标记的1.5 mL微量离心管中,通过离心(500 × g,5分钟)形成细胞沉淀。
- 配制适量裂解缓冲液,其中包含荧光素酶底物及互补组分(参见材料表;用量为50 µL × 孔数 + 10%)。
- 用移液器吸除各上清液,将细胞沉淀重悬于50 µL含荧光素酶底物及互补组分的裂解缓冲液中。该步骤将形成分裂型荧光素酶互补复合物并产生发光信号(图1D)。
- 将裂解后的细胞转移至白色半体积96孔板中。
- 使用酶标仪读取发光值,读数前在室温(约23 °C)下以轨道振荡方式混匀10秒,以确保细胞沉淀完全裂解。
- 首先减去未暴露于Tau-SLP的孔所测得的平均发光值,进行背景校正;然后将每个值归一化至0 h清除组经背景校正后的平均信号值,从而确定归一化的Tau-SLP含量。
- 以归一化的Tau-SLP含量对清除时间作图。发光信号随时间逐步降低表明细胞内Tau-SLP含量减少,解释为Tau-SLP被清除;而发光信号保持稳定则提示清除功能受损或延迟。清除率按以下公式计算:% 清除率 = [1 − (RLUt / RLUt = 0)] × 100。
结果
利用这种灵敏的基于发光的检测方法,可在人iPSC来源的小胶质细胞中同步摄取后,实时监测细胞内Tau-SLP的丰度变化。在洗脱Tau-SLP后,发光信号持续下降,表明细胞内Tau-SLP被逐步清除。该平台具有足够的灵敏度,可检测小胶质细胞对单体与纤维状Tau-SLP亚型处理能力的差异。在iTF-小胶质细胞中,单体Tau-SLP在60分钟内被完全清除,而纤维状Tau-SLP在超过240分钟的时间内仍持续存在(图2A)。此外,我们还使用突变型tau蛋白(如N279K)进行了检测,以评估其清除动力学,结果发现TauN279K-SLP仅在较短的清除时间点(15分钟)表现出显著降低的清除速率(图2B)。这些结果提示,所观察到的降解现象可能仅因该检测方法的高度灵敏性而得以显现。我们使用小分子L-亮氨酰-L-亮氨酸甲酯(LLOMe)进行Tau-SLP降解实验,以验证溶酶体的参与作用。LLOMe是组织蛋白酶C的底物,可破坏溶酶体膜通透性,从而抑制溶酶体功能31。在LLOMe处理条件下,我们观察到t=0时Tau-SLP的稳态水平显著升高(图3A),且降解速率显著降低(图3B),在60分钟清除时间后,残留的Tau-SLP增加了4倍。最后,我们在iPSC来源的神经元中进行了Tau-SLP清除检测,以验证该方法在不同细胞类型中的适用性。结果表明,iPSC来源的神经元对单体(图4A)和纤维状(图4B)Tau-SLP的清除动力学均较弱。尤为显著的是,Tau-SLP纤维在240分钟清除期间水平保持在约100%不变,而在相同时间内,iTF-小胶质细胞中的Tau-SLP纤维水平已降至50%以下。这些结果表明,我们基于分裂荧光素酶互补的检测平台能够稳健、可靠地检测细胞内吞溶酶体途径对Tau-SLP的清除,并展现出高度可适配的检测设计,可广泛应用于多种其他蛋白或细胞类型。
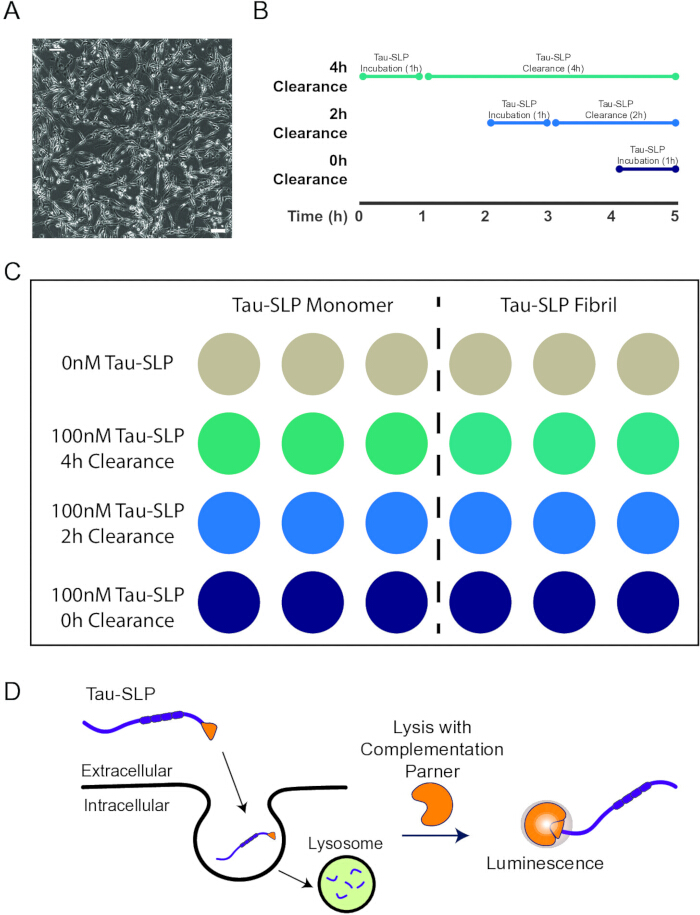
图 1: Tau-SLP 清除实验的代表性实验设计。(A)本实验所用 iTF-小胶质细胞的代表性明场图像(比例尺 = 100µm)。(B)人源小胶质细胞(iTF-小胶质细胞)以交错方式暴露于重组 2N4R-SLP,从而实现基于发光的稳健检测。孵育 1 小时后,通过更换培养基去除细胞外 tau,并用 PBS 洗涤细胞。在各自清除期(0 h、2 h、4 h)内,细胞维持在基础培养基中,随后进行收获。实验终点时,裂解细胞并测定发光信号。(C)用于比较单体与纤维状 Tau-SLP 降解的 Tau-SLP 清除检测的推荐板设计。(D)Tau-SLP 蛋白被细胞内化后被靶向至溶酶体进行降解。加入 LgBiT 后,可通过互补反应产生发光信号,定量检测细胞内残留的 Tau-SLP 量。请点击此处查看该图的放大版本。
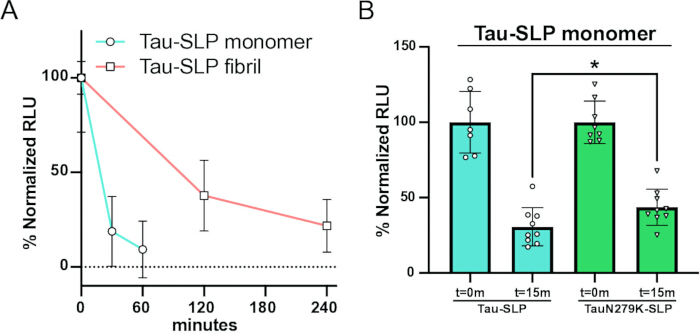
图2:iTF-小胶质细胞清除细胞外Tau-SLP。(A)将iTF-小胶质细胞暴露于单体Tau-SLP(100 nM)或纤维状Tau-SLP(50 nM),样品根据各自的初始摄取量(t = 0;100%)以及未暴露于Tau-SLP的细胞(0%)进行归一化处理(均值 ± 标准差;n = 9,来自三次独立分化实验)。(B)iTF-小胶质细胞与单体Tau-SLP或TauN279K-SLP(100 nM)共孵育,样品根据各自的初始摄取量(t = 0;100%)以及未暴露于Tau-SLP的细胞(0%)进行归一化处理(均值 ± 标准差;n ≥ 7,来自三次独立分化实验;∗p < 0.05,采用非配对Welch t检验)。数据转载自Shultz等,202524,根据知识共享署名许可(CC BY 4.0)使用。请点击此处查看本图的放大版本。
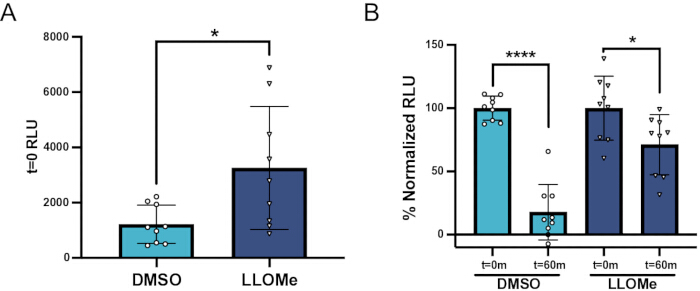
图 3:溶酶体抑制损害 Tau-SLP 的清除。 (A) 使用 1 mM 溶酶体抑制剂 L-亮氨酰-L-亮氨酸甲酯(LLOMe)处理 H4 神经胶质瘤细胞 24 小时,增加了 Tau-SLP 的初始摄取量(t = 0)(均值 ± 标准差;n = 9 次独立培养;∗ p < 0.05,采用非配对 Welch t 检验)。(B) 使用 LLOMe(1 mM)处理 24 小时后,在 60 分钟清除时间(t = 60 min)时,归一化的 Tau-SLP 相对发光单位(RLU)百分比高于对照溶剂(DMSO)。发光信号相对于各自的初始摄取水平(100%)以及未暴露于 Tau-SLP 的细胞(0%)进行归一化(均值 ± 标准差;n = 9 次独立培养;∗∗∗∗ p < 0.0001,∗ p < 0.05,采用非配对 Welch t 检验)。数据转载自 Shultz 等,202524,根据知识共享署名许可(CC BY 4.0)使用。请点击此处查看此图的放大版本。
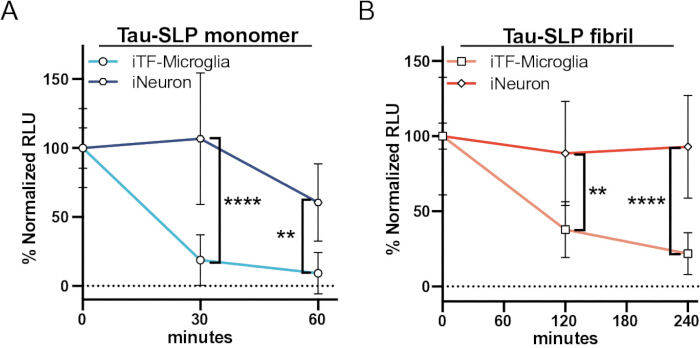
图 4:iTF-小胶质细胞和iNeurons在Tau-SLP清除方面表现出差异。(A)将iTF-小胶质细胞或iNeurons与单体Tau-SLP(100 nM)共孵育,样品根据各自的初始摄取量(t=0;100%)以及未暴露于Tau-SLP的细胞(0%)进行归一化处理(均值±标准差;n ≥ 6,来自两次至三次独立分化实验;∗∗p < 0.01,∗∗∗∗p < 0.0001,采用双因素方差分析;时间:F(1, 28) = 7.489,p = 0.0107;细胞类型:F(1, 28) = 46.61,p < 0.0001;交互作用:F(1, 28) = 3.229,p = 0.0831;Sidak多重比较检验,p值在图中标注,t=0的数值仅作参考,未纳入统计分析)。(B)将iTF-小胶质细胞或iNeurons与纤维状Tau-SLP(50 nM)共孵育,样品根据各自的初始摄取量(t=0;100%)以及未暴露于Tau-SLP的细胞(0%)进行归一化处理(均值±标准差;n ≥ 6,来自两至三次独立分化实验;∗∗p < 0.01,∗∗∗∗p < 0.0001,采用双因素方差分析;时间:F(1, 26) = 0.3888,p = 0.5384;细胞类型:F(1, 26) = 43.09,p < 0.0001;交互作用:F(1, 26) = 1.209,p = 0.2816;Sidak多重比较检验,p值在图中标注,t=0的数值仅作参考,未纳入统计分析)。数据重印自Shultz等,202524,根据知识共享署名(CC BY 4.0)许可使用。请点击此处查看此图的放大版本。
讨论
该检测方法提供了一个可扩展且定量的平台,能够以高灵敏度和高时间分辨率测量小胶质细胞对细胞外 Tau-SLP 的清除能力。与传统的基于成像的方法相比,后者通常需要繁琐的样品处理,且通量和时间采样能力有限,而这种基于发光的系统能够在微孔板体系中直接对 Tau 蛋白处理情况进行群体水平的定量分析。所得信号可定量反映细胞暴露于细胞外 Tau 后 Tau-SLP 的清除情况。由于可在多个时间点重复获取数据并进行较长时间的孵育,该检测方法实现了高通量、动力学解析的 Tau 摄取与清除动态分析。此外,随时间变化的发光信号与细胞内 Tau-SLP 含量的变化一致,但在缺乏辅助方法的情况下,无法区分 Tau-SLP 的转运、降解或分泌过程。尽管在我们的配套研究中24,Tau-SLP 标记并未显著改变 Tau 的摄取或聚集行为,但外源性标签可能影响其他蛋白质的功能。因此,应结合正交方法验证检测结果,并在可能的情况下与未标记 Tau 制剂的结果进行比较。另一项局限性在于,该检测使用的是重组 Tau-SLP 分子,而非内源性 Tau 或患者来源的病理性 Tau 聚集体。虽然重组 2N4R Tau 可提供可重复的实验底物,但无法完全模拟从人类患者脑组织中分离出的 Tau 分子所具有的内源性异质性(例如翻译后修饰)。目前已有多种体外磷酸化重组 Tau 蛋白的方案,可轻松整合到本实验流程中。该平台也可被改造用于研究内源性 Tau,但这需要通过基因工程技术在 Tau(MAPT)基因位点插入 SLP 标签序列。
重要的是,将信号降低解释为降解的前提是有效去除细胞外和细胞表面结合的tau蛋白,例如通过胰蛋白酶消化或类似的剥离步骤。如果未能有效去除,可能会导致假阴性结果。此外,也可能出现被误判为tau蛋白降解的假阳性信号降低。这种情况可能源于细胞脱落或死亡、Tau-SLP的分泌,或蛋白水解切割导致SLP与tau蛋白分离但并未降解该蛋白。因此,发光信号的降低应被解读为细胞内Tau-SLP丰度的减少,而非对溶酶体降解的直接测量。为了更明确地将信号变化归因于溶酶体降解,建议采用正交验证策略。这些策略可包括使用药物干预溶酶体功能,例如使用巴佛洛霉素A1(bafilomycin A1)或LLOMe处理(图3),以及采用脉冲-追踪(pulse–chase)实验设计,以区分摄取与降解的动力学过程。
该检测方法的灵活性使其非常适合研究调控tau蛋白摄取、细胞内运输和降解的机制,也适用于在人类细胞系统中筛选影响tau清除的药理学或遗传学调节因子。尽管本文在iPSC来源的微胶质细胞中进行了验证,但该平台可轻松适配于其他细胞类型(图4),从而广泛应用于tau生物学及神经退行性疾病模型,包括阿尔茨海默病及其他原发性和继发性tau蛋白病。由于该检测依赖于Tau-SLP的胞外暴露及基于发光信号的检测,因此可便捷地拓展至星形胶质细胞、少突胶质细胞或常用细胞系,尽管可能需要对摄取条件进行优化。总体而言,该方法为解析参与蛋白质稳态的细胞通路以及深入理解神经退行性疾病的机制提供了强有力的工具。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了美国国立卫生研究院(AG064116,AG077672)资助项目的资助
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Accutase | Thermo Scientific | A1110501 | |
| 锥形无菌聚丙烯离心管 | Fisher Scientific | 12-565-268 | |
| Corning Matrigel 生长因子减少型(GFR)基底膜基质,无酚红,无LDEV | Corning | 356231 | |
| DMEM/F-12 培养基,含 HEPES | Thermo Scientific | 11330057 | |
| 多西环素 | Clontech | 631311 | |
| DPBS | Thermo Scientific | 14-190-250 | |
| GlutaMAX | Thermo Scientific | 35050061 | |
| 绘图软件 | GraphPad Prism(或类似软件) | n/a | |
| 人 GM-CSF | Thermo Scientific | 300-03 | |
| KnockOut DMEM | Thermo Scientific | 10829018 | |
| 发光酶标仪 | SpectraMax i3x(或类似仪器) - Molecular Devices | n/a | |
| 微量离心管 | Fisher Scientific | 02-682-002 | |
| 96孔微孔板,聚苯乙烯,半面积,白色 | Greiner | 675075 | |
| mTeSR Plus | STEMCELL Technologies | 100-0276 | |
| Nano-Glo HiBiT 裂解检测试剂盒 | Promega | N3030 | |
| Poly-L-Lysine 氢溴酸盐 | Fisher Scientific | ICN15017750 | |
| 重组人 IL-34 | Thermo Scientific | 200-34 | |
| 重组人 M-CSF | Thermo Scientific | 300-25 | |
| 重组人 TGF-β1 | Thermo Scientific | 100-21C | |
| 表面处理无菌组织培养板 | Fisher Scientific | FB012927 | |
| Tau-HiBiT 蛋白 | 本实验室制备 | n/a | 带有 VSGWRLFKKIS 肽标签的 Tau 蛋白 |
| 胰蛋白酶抑制剂 | Sigma Aldrich | T9128 | |
| 胰蛋白酶-EDTA | Thermo Scientific | 5-200-072 | |
| Y-27632 二盐酸盐 | Bio-techne | 1254 |
参考文献
- Vogel, J. W. et al. Spread of pathological tau proteins through communicating neurons in human Alzheimer’s disease. Nat Commun 11, 2612 (2020).
- Weber, A. J. et al. Tau seeds induce neurofibrillary tangle formation across brain regions via individual-specific connectivity. Neuron S0896627326001649 doi:10.1016/j.neuron.2026.03.001 (2026).
- Luo, W. et al. Microglial internalization and degradation of pathological tau is enhanced by an anti-tau monoclonal antibody. Sci Rep 5, 11161 (2015).
- Bolós, M. et al. Direct Evidence of Internalization of Tau by Microglia In Vitro and In Vivo. JAD 50, 77-87 (2016).
- Bolós, M. et al. Absence of CX3CR1 impairs the internalization of Tau by microglia. Mol Neurodegeneration 12, 59 (2017).
- Perea, J. R. et al. Extracellular Monomeric Tau Is Internalized by Astrocytes. Front. Neurosci. 13, 442 (2019).
- Fleeman, R. M., & Proctor, E. A. Astrocytic Propagation of Tau in the Context of Alzheimer’s Disease. Front. Cell. Neurosci. 15, 645233 (2021).
- Mothes, T. et al. Astrocytic uptake of neuronal corpses promotes cell-to-cell spreading of tau pathology. acta neuropathol commun 11, 97 (2023).
- Eltom, K., Mothes, T., Libard, S., Ingelsson, M., & Erlandsson, A. Astrocytic accumulation of tau fibrils isolated from Alzheimer’s disease brains induces inflammation, cell-to-cell propagation and neuronal impairment. acta neuropathol commun. 12, 34 (2024).
- Ferrer, I. et al. Involvement of Oligodendrocytes in Tau Seeding and Spreading in Tauopathies. Front. Aging Neurosci. 11, 112 (2019).
- Hopp, S. C. et al. The role of microglia in processing and spreading of bioactive tau seeds in Alzheimer’s disease. J Neuroinflammation 15, 269 (2018).
- Asai, H. et al. Depletion of microglia and inhibition of exosome synthesis halt tau propagation. Nat Neurosci 18, 1584-1593 (2015).
- Dickson, J. R. et al. Alzheimer disease-associated tau post-translational modification mimics impact tau propagation and uptake. Journal of Neuropathology & Experimental Neurology 84, 459-470 (2025).
- Weisová, P. et al. Therapeutic antibody targeting microtubule-binding domain prevents neuronal internalization of extracellular tau via masking neuron surface proteoglycans. acta neuropathol commun 7, 129 (2019).
- Shamir, D. B., Rosenqvist, N., Rasool, S., Pedersen, J. T., & Sigurdsson, E. M. Internalization of tau antibody and pathological tau protein detected with a flow cytometry multiplexing approach. Alzheimer’s & Dementia. 12, 1098-1107 (2016).
- Evans, L. D. et al. Extracellular Monomeric and Aggregated Tau Efficiently Enter Human Neurons through Overlapping but Distinct Pathways. Cell Reports 22, 3612-3624 (2018).
- Holmes, B. B. et al. Heparan sulfate proteoglycans mediate internalization and propagation of specific proteopathic seeds. Proc. Natl. Acad. Sci. U.S.A. 110, (2013).
- Boland, B. et al. Autophagy induction and autophagosome clearance in neurons: relationship to autophagic pathology in Alzheimer’s disease. J Neurosci 28, 6926-6937 (2008).
- Mandrekar, S. et al. Microglia Mediate the Clearance of Soluble Aβ through Fluid Phase Macropinocytosis. J. Neurosci. 29, 4252-4262 (2009).
- Oh-hashi, K., Furuta, E., Fujimura, K., & Hirata, Y. Application of a novel HiBiT peptide tag for monitoring ATF4 protein expression in Neuro2a cells. Biochemistry and Biophysics Reports. 12, 40-45 (2017).
- Schwinn, M. K. et al. CRISPR-Mediated Tagging of Endogenous Proteins with a Luminescent Peptide. ACS Chem. Biol. 13, 467-474 (2018).
- Boursier, M. E. et al. The luminescent HiBiT peptide enables selective quantitation of G protein–coupled receptor ligand engagement and internalization in living cells. Journal of Biological Chemistry 295, 5124-5135 (2020).
- Gibson, D. G. et al. Enzymatic assembly of DNA molecules up to several hundred kilobases. Nat Methods 6, 343-345 (2009).
- Shultz, A. et al. Extracellular tau clearance is governed by its aggregation state and independent of microglial activation by LPS and IFN-γ. Neurobiology of Disease 215, 107058 (2025).
- Rauch, J. N. et al. LRP1 is a master regulator of tau uptake and spread. Nature 580, 381-385 (2020).
- Rauch, J. N. et al. Tau Internalization is Regulated by 6-O Sulfation on Heparan Sulfate Proteoglycans (HSPGs). Sci Rep 8, 6382 (2018).
- Shultz, A., Mena, D., Roy, J. L., Nulman, J., & Rauch, J. N. Protocol for the removal of bound endotoxin from tau protein produced in Escherichia coli. STAR Protocols. 6, 104177 (2025).
- Smith, P. K. et al. Measurement of protein using bicinchoninic acid. Analytical Biochemistry 150, 76-85 (1985).
- Bradford, M. M. A rapid and sensitive method for the quantitation of microgram quantities of protein utilizing the principle of protein-dye binding. Analytical Biochemistry. 72, 248–254 (1976).
- Dräger, N. M. et al. A CRISPRi/a platform in human iPSC-derived microglia uncovers regulators of disease states. Nat Neurosci 25, 1149-1162 (2022).
- Elias, R. D. et al. Cathepsin C–Catalyzed Ligation Generates Intralysosomal Amyloid Fibrils from Dipeptide Esters. Preprint at https://doi.org/10.64898/2025.12.23.696283 (2025).
重印与许可
