异种移植模型——细胞系来源(CDX)、患者来源(PDX)、人源化及自体移植模型——仍是主要的 体内 癌症药物开发平台;标准化报告、合理选择平台以及人工智能驱动的转化定义了当前的最佳实践。
本文内容
摘要
摘要
异种移植模型是肿瘤学临床前研究的主要体内平台,也是连接细胞培养与临床研究最成熟的实验桥梁。从20世纪初的致癌物暴露兔模型,到当前的人源化患者来源异种移植(PDX)系统,这些平台随着转化癌症研究需求的发展而不断演进。本文系统评述了当前主要异种移植平台的生物学原理、方法学标准及其转化应用。细胞系来源异种移植(CDX)模型仍是临床前药效评价中应用最广泛、成本效益最高的模型,其可重复性、可扩展性和易获取性使其在数十年来始终在肿瘤药物研发流程中占据重要地位。PDX模型已成为共临床试验设计、预测性生物标志物发现及个体化肿瘤学应用的首选平台,能够在连续传代过程中保留供体肿瘤的基因组特征、瘤内异质性及组织学结构。本文综述了PDX系统的移植生物学,包括免疫缺陷宿主品系选择、移植部位、肿瘤来源及传代生物学特性,同时涵盖人源化及自体人源化构建模式,这些模式使该平台可应用于免疫检查点抑制剂、双特异性T细胞衔接分子以及嵌合抗原受体T(CAR-T)细胞治疗的评估。本文还探讨了从临床前到临床转化过程中存在的免疫学差异、肿瘤微环境重建不完全以及标准化等关键问题。同时分析了若干规范化框架,包括PDX模型最小信息标准(PDX-MI)和人源化小鼠标准化最小信息(MISHUM),并讨论了全球生物样本库基础设施以及新兴的人工智能驱动转化建模方法。
引言
癌症仍然是全球主要的死亡原因之一,预计到2040年每年将新增约2840万例癌症病例1尽管在分子靶向药物、免疫检查点抑制剂、嵌合抗原受体T细胞(CAR-T)疗法以及抗体-药物偶联物等治疗手段方面取得了显著进展,但大多数晚期恶性肿瘤患者仍会出现耐药或对初始治疗无反应,许多实体瘤的总体五年生存率依然不理想2癌症药物研发仍面临严峻的转化瓶颈。大量在临床前研究中表现出良好活性的肿瘤药物在临床试验阶段失败,表明许多实验体系仍未能充分反映患者应答的生物学决定因素3,4。对 体内 能够忠实地重现人类癌症基因组、组织病理学和药理学特性的临床前研究系统已得到广泛认可。异种移植模型在此问题的研究及其潜在解决方案中始终处于核心地位,因为它们是目前最为成熟的 在体 在细胞培养与临床应用之间架起桥梁。异种移植模型通过将人类肿瘤组织植入免疫许可的宿主体内而建立,最常见的是植入免疫缺陷小鼠。5主要有两种形式主导该领域:一种是来源于已建立的癌细胞系的细胞系来源异种移植模型(CDX),另一种是通过将新鲜手术或活检组织直接移植、且不经过长期体外培养步骤而建立的患者来源异种移植模型(PDX)。6,7原位、播散性、肾包膜下、类器官来源及人源化模型通过改变移植部位、来源材料或宿主免疫状态,进一步拓展了该研究体系。8,9,10.
人类恶性肿瘤是由体细胞突变、表观遗传重编程、肿瘤内异质性以及肿瘤细胞与基质细胞群体之间持续的协同进化相互作用所塑造的动态系统6,11。尽管癌细胞系在历史上被认为对临床反应的预测效果较差3,4,但这一观点此后已得到修正10,12,13。虽然细胞系确实存在基因组漂移、基质和免疫成分缺失以及与原发肿瘤异质性偏离等问题,但其明显的预测能力不足在很大程度上反映了研究设计的局限性(如样本量小、组织学类型不匹配以及缺乏分子分层),而非模型本身的固有缺陷14。PDX模型通过将患者新鲜肿瘤组织片段直接移植到免疫缺陷小鼠体内,在一定程度上克服了细胞系模型的主要局限性(包括基因组漂移、异质性丢失和基质缺失),在早期传代中保留了供体的组织学特征、基因组结构以及部分基质组织特征 ,而原位移植、弥散性移植、肾包膜下移植、类器官来源移植及人源化等不同变体进一步拓展了该模型在移植部位、来源材料和宿主免疫状态方面的应用范围10。大规模群体PDX试验能够在适应症层面重现临床治疗反应12,且配对的患者–PDX模型与个体患者的治疗结果一致性约为87%,尽管该分析中的特异性为70%13。
异种移植模型体系进一步扩展至人源化平台,其中将PDX肿瘤移植于经人免疫系统组分重建的宿主体内9,同时包括在解剖学对应原发部位建立的原位模型及转移性变体模型14。与此同时,本综述聚焦于小鼠异种移植模型;其他互补性系统,如鸡胚绒毛尿囊膜(CAM)实验15、斑马鱼胚胎异种移植16以及患者来源类器官17,可在速度、通量和可扩展性方面提供正交优势,因而适用于整合型多平台临床前研究流程。过去十年间,国际PDX生物样本库基础设施已显著扩展18,且已建立正式的标准化框架——PDX模型最小信息标准(PDX-MI)19和人源化小鼠标准化最小信息(MISHUM)20;然而,在已发表文献中这些标准的采纳仍不充分,构成向临床转化的结构性障碍。目前已建立正式的标准化框架,以统一临床注释、移植方法、传代历史、质量控制以及免疫重建参数的报告内容。尽管取得上述进展,单一异种移植平台仍不足以回答所有转化医学问题。PDX模型本身具有周期长、资源消耗大以及移植成功率存在变异等局限性;而人源化异种移植系统虽部分弥补了传统PDX宿主免疫缺陷的问题,却也因免疫重建不完全9、供体间异质性21以及移植物抗宿主限制22引入了额外的变异性。此外,标准化程度仍不均衡:不同机构和出版物在模型建立方案、传代编号规范、鉴定方法、肿瘤生长量化、免疫监测、终点定义以及整体报告质量等方面存在显著差异23。本综述从标准化与实际模型选择两个角度审视异种移植模型。将CDX定位为关键的早期in vivo研究工具,PDX则作为保真度更高但资源需求更大的平台,我们系统整合了当前关于模型分类学、宿主品系生物学、移植决定因素、生物样本保存、基因组稳定性、定量实验设计及报告框架的研究证据,并将异种移植系统置于与同源移植模型、类器官、基因工程小鼠模型(GEMM)以及快速替代检测方法并列的背景下进行讨论。本文核心观点是:标准化不应被理解为将研究统一归并至单一模型类别,而应视为一个框架,用以界定每种平台如何被构建、验证、报告,并在整合型临床前研究流程中进行合理定位(图1)。
综述与观点
历史发展与分类学
山极和市川于1915年在兔子中成功诱导出化学致癌物引发的皮肤癌,首次建立了实验性肿瘤模型的概念24。同基因型肿瘤模型于20世纪中叶出现,其代表性细胞系包括Lewis肺癌、4T1乳腺癌、CT26结肠直肠癌和B16黑色素瘤,这些模型在当前的免疫肿瘤学研究中仍具有重要应用价值25。Flanagan于1966年发现无胸腺裸鼠,这是首个能够耐受异种组织移植的免疫缺陷动物宿主26,从而使得Rygaard和Povlsen在1969年首次成功实现了人源结肠直肠肿瘤的移植27。随后,通过SCID、NOD/SCID以及IL-2受体共同γ链(Il2rg)基因敲除等遗传背景的不断优化,T细胞、B细胞和NK细胞的排斥屏障被逐步消除28,最终形成了现今的移植模型分类体系:CDX、PDX、原位和弥散型变异模型、类器官来源的异种移植模型以及人源化异种移植模型6。
NCI-60细胞系,于20世纪80年代后期建立,作为 体外 涵盖9种组织类型的60种人类癌细胞系的筛选,数十年来系统化地推进了药物评价,并建立了基于细胞系的临床前药理学研究体系;筛选出的活性化合物进一步在裸鼠皮下CDX模型中开展研究,采用标准化终点指标(如T/C%(治疗组与对照组肿瘤体积百分比)、肿瘤生长延迟和药物相关死亡率),以实现不同研究间的可比性29. CDX模型仍是临床前药效测试中应用最广泛且最具成本效益的平台;皮下CDX研究通常在5至7周内即可获得结果图1)并在药物开发工作流程中占据核心地位,用于剂量优化、药代动力学/药效学(PK/PD)表征、肿瘤生长抑制(TGI)定量以及生存终点评估(图2).
从实践角度来看,异种移植模型的分类由三个变量定义:肿瘤来源、移植部位和宿主背景。CDX 模型依赖于已建立的癌细胞系,这些细胞系供应稳定,并通过癌症细胞系百科全书等资源获得了广泛的分子和药理学注释30。PDX 模型则使用新鲜移植的患者肿瘤组织碎片,以保留供体的组织学特征、基因组结构以及瘤内异质性,尽管在连续传代过程中,人类间质会逐渐被小鼠间质所取代10。移植部位决定了生物学背景:皮下移植优先考虑技术简便性、可重复性以及连续使用游标卡尺进行测量;原位移植可恢复器官特异性的微环境,并支持临床上相关的自发转移模式;血管内注射(尾静脉、心内、脾内)可建立实验性转移模型,用于研究转移级联反应的后期步骤,如外渗和定植14;而肾包膜下移植则利用高度血管化的环境,显著提高难移植肿瘤的成瘤率31。
CDX 与 PDX:在临床前肿瘤学中的互补作用
越来越多的证据表明,CDX 模型在预测临床药物反应方面能力有限,这促使人们重新评估临床前肿瘤学研究方法。已建立的癌细胞系在人工培养环境中长期传代,会经历持续的克隆选择、转录组分化,并逐渐丧失原始肿瘤所具有的间质和免疫微环境。PDX 模型在连续传代过程中能够保留供体肿瘤的组织学特征、基因组结构以及瘤内异质性10。2006年,胰腺癌PDX平台首次实现了基于生物标志物的药物反应预测32。2011年,“异种移植患者”(xenopatient)平台整合了85个分子特征明确的结直肠癌PDX模型,成功再现了西妥昔单抗的临床反应模式,并鉴定出HER2扩增是一种可靶向的耐药机制——该发现随后在HERACLES临床试验中得到验证33,34。一项具有里程碑意义的2015年研究采用1×1×1设计的PDX临床试验(PCT)方案,在约1,000个模型和62种治疗方案中应用,重现了基因型与治疗反应之间的关联,并提出了新的耐药机制,从而确立了大规模PDX药理学作为连接临床前研究与临床试验设计的可信桥梁12。
尽管取得了这些进展,CDX 模型仍然是候选治疗药物早期临床前 in vivo 评价的金标准,因其快速、实验条件干净且成本效益高:经过验证的细胞系可进行遗传操作,大规模扩增,并植入到大量匹配的队列中,生物学噪声相对较小,从而能够在PDX或人源化系统难以实现的时间框架内获得可解释的疗效、药效动力学和耐受性读数。HCT116、A549 和 U8735 等经典细胞系与数十年的机制研究文献及公开的组学资源紧密关联,而原位或弥散性 CDX 变体则进一步将其应用拓展至组织趋向性、转移定植及部位特异性治疗,同时不牺牲其操作上的优势10。对于围绕靶点依赖性、剂量-时间表优化、比较疗效或作用机制验证等假设驱动型问题,CDX 仍是合适的首个 in vivo 研究平台。其公认的局限性包括克隆漂移、缺乏人类间质和免疫组分,以及在人群水平上的预测价值有限,这些决定了它应被恰当地用作快速筛选和机制研究平台,而非临床结果的替代指标。
人源肿瘤异种移植模型建立:肿瘤来源、移植与植入生物学
可行的肿瘤组织材料最常来源于手术切除,也可来自穿刺活检、恶性积液或血液系统恶性肿瘤的骨髓穿刺抽吸物31根治性切除可提供更大体积的、结构完整的活性组织;然而,当针对转移性或无法切除的病灶进行活检时,也能获得足够的组织材料。31,36组织必须在冷的缓冲液中运输,并在约24小时内处理;热缺血时间不得超过2小时,且 离体 超过8–10小时的时间间隔会逐步降低移植效率。必须获得机构审查委员会批准及书面知情同意。
将肿瘤组织处理成1–3 mm3的组织片段,以保留细胞外基质结构和空间异质性,或解离为单细胞悬液用于分选和剂量标准化接种。Matrigel共移植常用于支持早期血管化,但其作用具有变异性,应予以报告,因其会改变微环境背景31。激素补充可提高激素依赖性恶性肿瘤的移植成功率,例如对雌激素受体阳性乳腺肿瘤使用雌二醇缓释颗粒,对前列腺肿瘤使用二氢睾酮。皮下背部侧翼移植便于使用游标卡尺监测且操作简便;原位移植可重建器官特异性微环境;而肾包膜下移植则可最大限度提高难移植肿瘤类型的成瘤率,包括非小细胞肺癌(NSCLC)和前列腺癌31。
移植成功率高度依赖于肿瘤类型。侵袭性强、分化程度低、耐药或转移性肿瘤的移植成功率明显高于惰性或分化良好的肿瘤;三阴性乳腺癌、胰腺导管腺癌、高级别浆液性卵巢癌和急性白血病的移植效果 consistently 优于管腔A型乳腺肿瘤及其他移植率较低的肿瘤类型,且在三阴性乳腺癌和胰胆管恶性肿瘤中,移植成功本身即提示患者预后不良10。宿主小鼠品系是第二个主要决定因素:对于较难移植或血液系统肿瘤模型,由于免疫缺陷程度更高、宿主接受度更广,NSG和NOG等重度免疫缺陷小鼠品系已取代裸鼠和SCID小鼠成为首选9。
按照惯例,最初的患者移植代次记为 F0(或 P0),后续传代依次标记为 F1、F2,依此类推。生长动力学通常在早期传代后趋于稳定,大多数研究项目会保留正式的药理学实验至 F2 或 F3 代材料,以减少个体小鼠间的变异性,尽管目前尚无统一的标准阈值;多数项目将早期传代定义为 F2–F4,而超过 F5 代的材料则存在亚克隆优势生长和转录漂移的风险,其发生速率与肿瘤类型相关。由于传代次数会影响实验的可重复性及生物学特性漂移,因此应根据 PDX-MI 报告标准19,记录每一项研究的传代历史、宿主品系、移植部位和来源信息。
免疫缺陷宿主品系
裸鼠(Foxn1nu)缺乏成熟的T细胞,但保留B细胞、NK细胞和天然免疫功能。携带Prkdc基因功能缺失突变的CB-17 scid小鼠由于V(D)J重排缺陷而缺乏T细胞和B细胞,但仍保留NK细胞,并随着年龄增长会逐渐出现"渗漏"性淋巴细胞9。将scid突变导入NOD/ShiLtJ背景(NOD/SCID)后,进一步增加了天然免疫系统的缺陷,包括补体缺乏、巨噬细胞和树突状细胞功能受损以及NK细胞活性降低。在IL-2受体共有γ链(Il2rg)上引入无效突变可阻断IL-2、IL-4、IL-7、IL-9、IL-15和IL-21的信号传导,从而消除功能性NK细胞并严重削弱残余的天然免疫,由此产生了NSG(NOD.Cg-Prkdcscid Il2rgtm1wjI/SzJ)和NOG(NODShi.Cg-Prkdcscid Il2rgtm1sug)小鼠;NSG携带完全的Il2rg基因敲除,而NOG表达一种可结合配体但无法传导信号的截短型受体。NSG和NOG能够支持实体瘤和血液系统恶性肿瘤的移植,是PDX研究的默认宿主。NRG品系(NOD.Cg-Rag1tm1Mom Il2rgtm1wjI)以Rag1基因敲除替代Prkdc突变,保留了DNA修复能力。BRG品系(BALB/c-Rag2null Il2rgnull)提供了基于BALB/c背景、耐受辐射的替代选择,避免了NOD特异性的Sirpa等位基因影响。SRG大鼠(Sprague-Dawley Rag2/Il2rg双基因敲除)可支持在NSG小鼠中生长不良的细胞系和PDX模型的移植,包括VCaP前列腺癌,其成瘤率超过>90%,并允许进行连续的血液和组织取样、原位手术操作以及具有生理相关性的药代动力学研究37。
人源化异种移植系统在肿瘤移植前或同时,将人类免疫组分重建于严重免疫缺陷的小鼠体内38。主要的三种模型为hu-PBMC(注射成人外周血单个核细胞)、hu-CD34(经亚致死剂量照射或白消安预处理后静脉注射人CD34⁺造血干细胞(HSCs))和BLT(联合移植胎儿 肝脏、胸腺及CD34⁺细胞,可实现最完整的淋巴系统发育)。这些模型可用于评估免疫检查点抑制剂、双特异性抗体、细胞治疗以及免疫介导的耐药机制38。自体或HLA匹配的设计可使肿瘤与免疫系统来自同一供体。重建效率取决于供体来源、宿主品系、预处理方案及研究持续时间;通常髓系、基质和淋巴系统重建不完全或失衡:hu-PBMC模型尽管T细胞植入 robust,但自然杀伤(NK)细胞、B细胞及髓系谱系存在缺陷;hu-CD34模型支持多谱系分化,但传统树突状细胞和组织巨噬细胞代表性不足;BLT模型可实现更优的胸腺T细胞教育,但髓系重建仍不理想。hu-PBMC小鼠T细胞重建迅速,但因人T细胞识别小鼠MHC,通常在3至6周内发生异种移植物抗宿主病(GvHD);NSG-MHC-I/II-null品系可在一定程度上缓解该问题22。hu-CD34小鼠适用于更长期的研究,但需要较长的重建时间,且无法完全再现人类髓系、NK细胞或基质细胞的生物学特性。
原位移植与转移模型
皮下异种移植虽然是默认的首选临床前研究平台,但将人类肿瘤组织置于与原生器官微环境不同的生物学背景中。背部皮下空间的细胞外基质成分、血管结构、氧张力、基质细胞群体以及旁分泌信号均不同于乳腺、胰腺、腹膜、结肠或肺组织10。原位移植可恢复器官特异性的微环境,通常支持更强的血管生成和更接近自然癌症进展过程的自发性转移,但其代价是手术操作更为复杂,并需要基于影像学的监测手段39。
原位PDX技术已扩展至多种肿瘤类型。乳腺癌PDX模型建立于乳腺脂肪垫中,可支持自发性肺转移和淋巴结转移40。将结直肠癌PDX植入盲肠或结肠壁可重现局部浸润和肝转移特征39。通过腹腔内注射卵巢癌PDX可复制高级别浆液性肿瘤典型的腹膜播散模式41。将胰腺导管腺癌PDX植入胰腺可重现其特征性的促纤维增生性间质反应及早期局部浸润32。目前主要有两种转移建模策略:实验性转移模型,即通过血管内接种肿瘤细胞,用于评估转移级联过程的后期步骤,如外渗和定植;以及自发性转移模型,即原位原发肿瘤通过完整的转移级联过程进行播散14。
标准化、验证与研究设计
四种报告和研究设计框架定义了异种移植实验。PDX-MI 规定了患者来源模型所需的最低限度元数据,包括供体信息、肿瘤来源、宿主品系、移植部位、传代次数、移植成功率以及组织学和分子特征;短串联重复序列(STR)鉴定被纳入模型质量控制,以确认模型来源并检测交叉污染19。MISHUM 将类似要求扩展至人源化系统,涵盖人造血干细胞或外周血单个核细胞(PBMC)来源、预处理方案、宿主品系、通过流式细胞术验证的重建效率,以及移植物抗宿主病(GvHD)监测20。OBSERVE(肿瘤学最佳实践:In Vivo 实验中的体征、终点与优化措施),是 2024 年 EurOPDX/INFRAFRONTIER 达成的共识,针对啮齿类动物癌症模型提供了具体的实验优化与动物福利指导,补充了更广泛的 PREPARE 和 ARRIVE 2.0 框架23,42。2024 年美国国家癌症研究所(NCI)PDXNet 共识建议则针对 PDX 药理学实验的研究设计、肿瘤生长分析和反应分类提出规范,并提供了一套公开的分析工具43。
这些框架尚未完全统一,现代的异种移植研究可能需要同时满足PDX-MI、MISHUM、OBSERVE和PDXNet的各项建议要求。在实际操作中,传代次数、肿瘤测量公式、宿主来源、鉴定方法以及预设的分析策略常常被省略43。目前仍缺乏一个覆盖CDX、PDX及人源化系统的统一报告规范。公开可访问的PDX资源库包括美国国家癌症研究所患者来源模型库(NCI Patient-Derived Models Repository, PDMR)、EurOPDX数据门户(EurOPDX Data Portal)和PDX Finder,这些数据库共同收录了数千个模型,并提供相应的基因组学、组织病理学和药理学数据,以支持模型的识别与获取18。CDX研究需要常规进行短串联重复序列(STR)分析和污染控制,而PDX研究则需与供体病例相关联,在可行的情况下对驱动分子特征进行分子学验证,并记录各传代过程中人源与鼠源细胞成分的比例19。肿瘤体积估算在不同研究之间仍存在不一致性,多种计算公式在未明确说明的情况下被使用,这会影响治疗效应的评估结果,并增加跨研究比较的难度;因此,生长指标、响应阈值、删失规则和可视化格式的标准化,与移植方法的标准化同样重要43。
基因组保真性、克隆进化与转化解读
与CDX相比,PDX在早期传代过程中更真实地保留了驱动突变和拷贝数变异特征,因此更适用于生物标志物开发、耐药性研究以及共临床建模44。然而,在传代过程中可能发生小鼠特异性的肿瘤进化、基质成分替代以及表观遗传重编程,某些表观上的差异实际上反映了对空间异质性肿瘤的亚克隆取样,而非模型诱导的漂变45。尽管早期传代材料比长期传代材料具有更高的生物学一致性,但两者均受到移植部位、宿主免疫状态及既往治疗等选择压力的影响45。由此可得出两条实用原则:PDX模型应进行纵向表征而非假定其保持静态,当模型选择可能对后续研究产生重大影响时,建议整合测序、组织病理学、转录谱分析及治疗反应数据进行综合评估44。
人源化小鼠模型及其在肿瘤免疫学中的应用
通过人源外周血单个核细胞(PBMC)、CD34⁺造血干细胞(HSC)或BLT组织重建的人源化系统,解决了传统PDX宿主无法模拟完整人源免疫微环境的局限性。hu-PBMC模型可实现T细胞的快速重建,但受限于3至6周内发生的异种移植物抗宿主病(GvHD);hu-CD34模型需要8–16周完成多谱系重建,但支持更长期的研究9。引入人源细胞因子转基因进一步改善了特定免疫谱系的重建效果。NSG-SGM3小鼠(转染人IL-3、GM-CSF和SCF)支持髓系细胞和肥大细胞的发育46。MISTRG小鼠(在Rag2⁻/⁻ Il2rg⁻/⁻背景下人源化M-CSF、IL-3、GM-CSF、SIRPα和血小板生成素)以及MISTRG6小鼠(额外人源化IL-6)可实现目前最全面的人源髓系细胞、自然杀伤(NK)细胞和组织巨噬细胞的重建,并支持成人骨髓来源的造血干细胞和祖细胞的植入,而其他品系无法实现这一效果47。NOG-EXL小鼠(在NOG背景下转染人IL-3和GM-CSF)在较NSG-SGM3更低的细胞因子水平下即可支持髓系和肥大细胞的重建,从而实现更长的长期存活率和更轻的巨噬细胞活化综合征,使其更适用于长期人源化及肿瘤研究。植入人源T细胞的人源化小鼠可用于模拟细胞因子释放综合征(CRS),从而在临床前评估双特异性T细胞衔接分子、靶向CD3的抗体及相关T细胞激活生物制剂的安全性特征。目前尚无一种品系在所有应用中均占绝对优势;品系的选择应根据所关注的免疫谱系及研究持续时间而定。
保真度最高的构型是自体人源化PDX模型,其中将患者匹配的造血细胞与肿瘤组织共同移植,从而消除免疫系统与肿瘤组织之间的MHC不匹配问题47Chiorazzi 及其同事在2023年证明,自体MISTRG6 PDX模型可生成浸润肿瘤微环境的人源先天性和适应性免疫细胞群体,重现CD8⁺ T细胞的活化与耗竭程序,并产生由VEGF-A驱动的促肿瘤髓系特征,抑制该特征可消除肿瘤生长的增强效应,从而验证了该模型作为免疫治疗评估平台的有效性47Phoon 及其同事将该方法拓展至黑色素瘤研究,证明自体PBMC人源化PDX模型能够捕捉患者间对检查点阻断疗法和工程化IL-2细胞因子治疗反应的个体差异。48,49. 一种平行的自体方法,即过继性转移 离体 将扩增的患者来源肿瘤浸润性淋巴细胞(TILs)移植至荷有匹配的PDX肿瘤的小鼠体内,已被用于模拟TIL疗法在黑色素瘤及其他实体瘤中的治疗效果50. 然而,在人源化系统中解读免疫治疗研究时仍需谨慎:多种免疫检查点抗体(如抗CTLA4、抗PD1)具有物种限制性的交叉反应性,大多数人源化小鼠品系中树突状细胞功能和抗原呈递能力仍不完善,且三级淋巴样器官和完全功能性的生发中心等结构极少能被成功重建51.
CAR-T 细胞疗法与异种移植模型
CAR-T细胞疗法已获得多项针对血液系统恶性肿瘤的监管批准,而在携带CDX或PDX肿瘤的免疫缺陷小鼠中进行异种移植评估,是人源CAR-T产品在进入临床转化前的标准临床前研究平台52。NSG类宿主的免疫缺陷特性使得巨噬细胞活化、树突状细胞交叉呈递以及调节性T细胞介导的抑制作用无法在实验体系中体现,因此小鼠异种移植模型未能预测患者后续出现的细胞因子驱动的全身性毒性52。2025年一项涵盖422项临床试验和3,157项临床前研究的系统性综述与荟萃分析报告指出,CAR-T异种移植模型中的临床前疗效信号总体上具有高度均一性,且不依赖于抗原,无法区分后续在临床试验中成功或失败的CAR结构53。Fløe及其同事在2025年记录表明,物种水平上的细胞因子信号、抗原密度、T细胞受体库以及肿瘤-免疫相互作用的差异限制了CAR-T异种移植数据的可转化性,而同源性小鼠模型仅在约4%已发表的CAR-T临床前研究中被采用52,53。标准NSG异种移植模型无法再现细胞因子释放综合征(CRS)和免疫效应细胞相关神经毒性综合征(ICANS)。在NSG-SGM3宿主中的机制研究表明,CRS主要由单核细胞来源的IL-1和IL-6驱动,且IL-1与IL-6在CRS与神经毒性中的需求存在差异。此外,中和GM-CSF可减轻CRS和神经炎症,同时保留CAR-T细胞的抗肿瘤活性。这些通路仅在细胞因子转基因或自体人源化模型中得以体现,而无法在传统的基于NSG的异种移植模型中再现。同源性小鼠CAR-T模型提供了一个互补的研究平台,允许在完整的宿主免疫系统背景下评估CAR-T细胞的相互作用,但其局限性在于依赖小鼠而非人类的靶点生物学特性。基于异种移植的评估支持了靶向CD19的CAR-T疗法的临床转化,其中在NSG宿主中针对B-ALL和B-NHL模型所观察到的疗效与持久的临床反应相对应54。
药物开发、生物标志物发现与人工智能驱动的转化研究
PDX 模型旨在比 CDX 或 GEMMs 更准确地预测临床药物反应。Gao 及其同事在 2015 年开展的诺华 PDX 临床试验(PCT)在约 1,000 个 PDX 模型、62 种治疗方案和六种适应症中应用了 1 × 1 × 1 设计,识别出基因型-反应关联以及已知和新的耐药机制12。将 1 × 1 × 1 概念扩展至个体患者层面受到 3 至 6 个月建模周期的限制,这通常使 PDX 指导的治疗决策应用于二线或三线治疗10。PDX 研究已促成多个经验证的临床生物标志物,包括 KRAS 突变作为结直肠癌中抗 EGFR 耐药的预测因子、EGFR 激活突变和 T790M 突变用于非小细胞肺癌酪氨酸激酶抑制剂的选择、HER2 扩增在乳腺癌和胃癌中的应用,以及卵巢癌中的铂类耐药10。
大规模PDX药物反应数据集推动了机器学习在药物反应预测中的应用。Yang及其同事于2025年提出了TRANSPIRE-DRP,这是一种基于无监督领域自适应的深度学习框架,可将PDX转录组数据转化为患者水平的药物反应预测,并在西妥昔单抗、紫杉醇和吉西他滨的反应预测中进行了评估55。Tosca及其同事于2024年发表了一种转化建模框架,该框架通过异速生长缩放法将PDX肿瘤生长率标准化,用于预测11种实体瘤未治疗患者群体中的肿瘤体积倍增时间及无进展生存期,其中91%预测的肿瘤体积倍增时间中位数与临床观察值的偏差在1.5倍以内56。目前仍存在若干未解决的挑战:生物样本库对可移植肿瘤的选择偏倚、前瞻性临床验证的缺乏,以及人工智能衍生的临床前证据尚无明确的监管审批路径33,55。
异种移植平台在不同研发阶段可回答不同的转化医学问题,而非局限于单一角色。CDX模型在早期机制研究和高通量筛选中仍居核心地位;PDX模型具备基因组保真度和患者间异质性,适用于生物标志物验证和临床反应建模;人源化及自体人源化模型则可解决传统异种移植模型无法涉及的免疫治疗特异性问题;类器官相关平台进一步拓展 离体 当组织样本有限时提高通量;这些平台共同支持对新型、已有及替代性癌症治疗药物的临床前评估57,58,59. 人工智能与机器学习框架(如 TRANSPIRE-DRP 和转化性药代动力学/药效动力学模型)现已能够将 PDX 药物反应数据与患者水平的疗效预测相连接,但其临床应用价值取决于基础模型注释的质量与标准化程度。当前尚未解决的核心问题包括预测有效性、报告可重复性、生物样本库的代表性,以及由人工智能生成的临床前证据的监管地位。未来进展将更多依赖于对现有模型的规范化使用,而非引入新的模型类别,同时需依托于协调统一的元数据标准、纵向数据保真度评估以及透明的跨平台整合。
结论
异种移植模型已从最初简单的皮下植入已建立的细胞系,发展为包含CDX和PDX模型、原位及转移变体模型,以及人源化免疫重建系统(包括自体同源构型)在内的多层面实验体系。这一演变源于人们逐步认识到,对人类癌症生物学特征的还原程度——包括基因组特征、肿瘤内异质性以及肿瘤微环境——是决定临床前研究预测价值的关键因素。
CDX模型作为最广泛使用且最具成本效益的方法,仍然是临床前肿瘤学研究的核心 体内 用于早期药物评价的平台,可提供可重复、可扩展的数据,用于剂量优化、药代动力学/药效动力学(PK/PD)表征、肿瘤生长抑制评估及生存终点评价。PDX模型保留了供体基因组和组织学特征,满足生物标志物发现、共临床试验设计以及药理学应用所需的保真度。免疫缺陷等级——从裸鼠和SCID小鼠,到NSG、NOG、NRG及BRG小鼠,以及新兴的SRG大鼠,反映了移植接受能力的逐步优化。人源化和自体化构建进一步拓展了这些平台的应用,可用于免疫检查点抑制剂、双特异性抗体及CAR-T细胞治疗的评价,但跨物种水平的免疫学局限性仍然存在。
提高临床前研究的转化效率需要严谨的研究设计和标准化的报告规范。PDX-MI、MISHUM、OBSERVE 以及 NCI PDXNet 达成的共识建议提供了必要的报告框架;其能否被研究人员、期刊和资助机构持续采纳,仍是决定其影响力的关键因素。异种移植研究的发展方向聚焦于四个优先领域:在所有平台中实施标准化报告、根据转化研究问题合理选择实验平台、持续优化人源化模型的构建技术,以及开发由人工智能驱动的转化框架,将大规模的 PDX 数据集转化为具有临床可操作性的疗效预测结果。
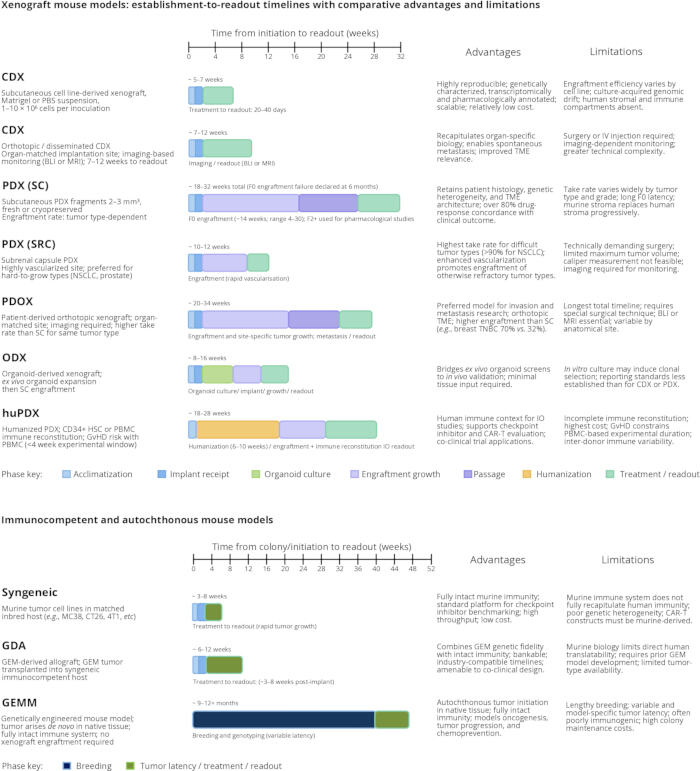
图1:异种移植小鼠模型:从建立到检测的时间线及其比较优势与局限性。图中展示了肿瘤药物开发中常用的各类主要临床前模型从启动到实验检测的全过程时间线,按宿主免疫状态分组。上半部分涵盖免疫缺陷宿主中的异种移植模型:皮下及原位或弥散性细胞系来源异种移植模型(CDX)、皮下患者来源异种移植模型(PDX)、肾包膜下PDX(PDX-SRC)、患者来源原位异种移植模型(PDOX)、类器官来源异种移植模型(ODX)以及人源化PDX(huPDX)。下半部分涵盖免疫健全和同源模型:同系移植模型、基因工程小鼠模型来源异种移植模型(GDA)以及基因工程小鼠模型(GEMM)。每种模型的实验阶段以不同颜色标注(适应期、细胞植入接收、类器官培养、移植与生长、传代、人源化及治疗/检测;同源模型则包括繁育、肿瘤潜伏期/治疗/检测),并以周为单位标示大致总时长。各模型特有的优势与局限性汇总于右侧图示。时间线反映了Altogen Labs实施的标准操作流程,与领域内已发表的范围一致(https://altogenlabs.com/xenograft-models);实际时长因肿瘤类型、宿主品系、实验设计及移植动力学而异。BLI,生物发光成像;GvHD,移植物抗宿主病;HSC,造血干细胞;IO,免疫肿瘤学;MRI,磁共振成像;NSCLC,非小细胞肺癌;PBMC,外周血单个核细胞;SC,皮下;TME,肿瘤微环境;TNBC,三阴性乳腺癌。请点击此处查看该图的放大版本。
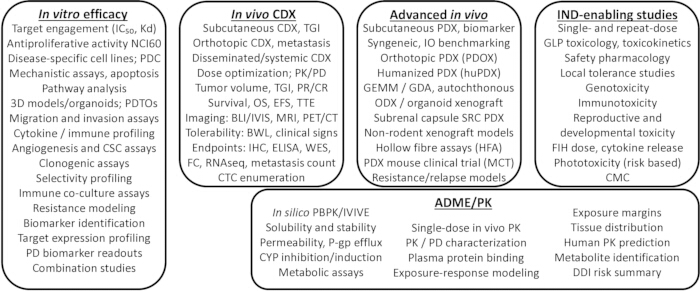
图2:整合的临床前肿瘤学工作流程:从 体外 通过新药临床试验申请(IND)支持性研究评估疗效分阶段的临床前药物研发流程示意图,按四个连续阶段组织。 体外 功效包含靶点结合(IC50,KD),在包括NCI-60和疾病特异性细胞系在内的多种细胞系面板、患者来源细胞(PDC)、作用机制与信号通路检测、三维模型以及患者来源肿瘤类器官(PDTO)中进行的抗增殖活性检测,迁移与侵袭实验,细胞因子与免疫谱型分析,血管生成与肿瘤干细胞检测,克隆形成实验,选择性谱型分析,免疫共培养实验,耐药性建模,生物标志物鉴定,靶点表达谱型分析,药效学生物标志物读数,以及联合用药研究。 在体 CDX 涵盖皮下、原位及播散性或系统性 CDX 模型,用于剂量优化、药代动力学/药效动力学(PK/PD)表征、肿瘤体积与肿瘤生长抑制率(TGI)评估、部分缓解与完全缓解分类(PR/CR)、生存终点指标(总生存期 OS、无事件生存期 EFS、至事件发生时间 TTE)、多模态成像(生物发光成像 BLI/IVIS、磁共振成像 MRI、正电子发射断层扫描/计算机断层扫描 PET/CT)、耐受性读数(包括体重减轻 BWL 和临床症状)、分子终点指标(免疫组化 IHC、酶联免疫吸附测定 ELISA、全外显子组测序 WES、流式细胞术、RNA 测序 RNA-seq、转移灶计数)以及循环肿瘤细胞(CTC)计数。高级 体内 平台包括皮下和原位患者来源的异种移植模型(PDX)、肾包膜下PDX(SRC PDX)、人源化PDX、用于肿瘤免疫治疗评估的同源性模型、基因工程小鼠模型(GEMM)和基因驱动激活模型(GDA)、器官来源的异种移植模型(ODX)、非啮齿类异种移植模型、中空纤维测定(HFA)、PDX小鼠临床试验(MCT)以及耐药/复发模型。IND申报支持研究涵盖单次和重复剂量的GLP毒理学、毒代动力学、安全药理学、局部耐受性、遗传毒性、免疫毒性、生殖与发育毒性、首次人体(FIH)剂量预测、细胞因子释放评估以及基于风险的光毒性评估。并行的化学、制造和控制(CMC)以及吸收、分布、代谢和排泄/药代动力学(ADME/PK)表征包括计算机PBPK和IVIVE建模、溶解度与稳定性、通透性及P-糖蛋白(P-gp)外排、细胞色素P450(CYP)抑制与诱导、代谢测定 体内 PK、血浆蛋白结合、暴露-反应关系建模、组织分布、人源PK预测、代谢产物鉴定以及药物-药物相互作用(DDI)风险评估 请点击此处以查看此图的放大版本。
披露
作者受雇于Altogen Labs(美国德克萨斯州奥斯汀市),这是一家提供临床前肿瘤学研究服务的合同研究组织。图1 和 图2 为作者原创的示意图。这些图中包含的时间线和工作流程源自Altogen Labs的标准操作程序。未声明利益冲突。
参考文献
- Sung H, Ferlay J, Siegel RL, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-249.
- Islami F, Wiese D, Schafer EJ, Sung H, Jemal A. Stage-specific cancer survival in Black and White persons by urbanicity of county of residence, United States, 2015-2021. Cancer. 2025:e70073.
- Johnson JI, Decker S, Zaharevitz D, et al. Relationships between drug activity in NCI preclinical in vitro and in vivo models and early clinical trials. Br J Cancer. 2001;84(10):1424-1431.
- Voskoglou-Nomikos T, Pater JL, Seymour L. Clinical predictive value of the in vitro cell line, human xenograft, and mouse allograft preclinical cancer models. Clin Cancer Res. 2003;9(11):4227-4239.
- Jung J. Human tumor xenograft models for preclinical assessment of anticancer drug development. Toxicol Res. 2014;30(1):1-5.
- Liu Y, Wu W, Cai C, et al. Patient-derived xenograft models in cancer therapy: technologies and applications. Signal Transduct Target Ther. 2023;8:160.
- Okada S, Vaeteewoottacharn K, Kariya R. Application of highly immunocompromised mice for the establishment of patient-derived xenograft (PDX) models. Cells. 2019;8(8):889.
- Blanchard Z, Brown EA, Ghazaryan A, et al. PDX models for functional precision oncology and discovery science. Nat Rev Cancer. 2025;25(3):153-166.
- Shultz LD, Brehm MA, Garcia-Martinez JV, et al. Humanized mice for immune system investigation: progress, promise and challenges. Nat Rev Immunol. 2012;12(11):786-798.
- Hidalgo M, Amant F, Biankin AV, et al. Patient-derived xenograft models: an emerging platform for translational cancer research. Cancer Discov. 2014;4(9):998-1013.
- Dobrolecki LE, Airhart SD, Alferez DG, et al. Patient-derived xenograft (PDX) models in basic and translational breast cancer research. Cancer Metastasis Rev. 2016;35(4):547-573.
- Gao H, Korn JM, Ferretti S, et al. High-throughput screening using patient-derived tumor xenografts to predict clinical trial drug response. Nat Med. 2015;21(11):1318-1325.
- Izumchenko E, Paz K, Ciznadija D, Sloma I, Katz A, Vasquez-Dunddel D, et al. Patient-derived xenografts effectively capture responses to oncology therapy in a heterogeneous cohort of patients with solid tumors. Ann Oncol. 2017;28(10):2595-2605.
- Khanna C, Hunter K. Modeling metastasis in vivo. Carcinogenesis. 2005;26(3):513-523.
- Ribatti D. The chick embryo chorioallantoic membrane (CAM) assay. Reprod Toxicol. 2017;70:97-101.
- Fazio M, Ablain J, Chuan Y, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Drost J, Clevers H. Organoids in cancer research. Nat Rev Cancer. 2018;18(7):407-418.
- Conte N, Mason JC, Halmagyi C, et al. PDX Finder: a portal for patient-derived tumor xenograft model discovery. Nucleic Acids Res. 2019;47(D1):D1073-D1079.
- Meehan TF, Conte N, Goldstein T, et al. PDX-MI: minimal information for patient-derived tumor xenograft models. Cancer Res. 2017;77(21):e62-e66.
- Stripecke R, Münz C, Schuringa JJ, et al. Innovations, challenges, and minimal information for standardization of humanized mice. EMBO Mol Med. 2020;12(7):e8662.
- Brehm MA, Wiles MV, Greiner DL, et al. Generation of improved humanized mouse models for human infectious diseases. J Immunol Methods. 2014;410:3-17.
- King MA, Covassin L, Brehm MA, et al. Human peripheral blood leucocyte non-obese diabetic-severe combined immunodeficiency interleukin-2 receptor gamma chain gene mouse model of xenogeneic graft-versus-host-like disease and the role of host major histocompatibility complex. Clin Exp Immunol. 2009;157(1):104-118.
- Percie du Sert N, Hurst V, Ahluwalia A, et al. The ARRIVE guidelines 2.0: updated guidelines for reporting animal research. Br J Pharmacol. 2020;177(16):3617-3624.
- Sajjad H, Imtiaz S, Noor T, et al. Cancer models in preclinical research: a chronicle review of advancement in effective cancer research. Anim Models Exp Med. 2021;4(2):87-103.
- Mosely SI, Prime JE, Sainson RC, et al. Rational selection of syngeneic preclinical tumor models for immunotherapeutic drug discovery. Cancer Immunol Res. 2017;5(1):29-41.
- Flanagan SP. "Nude", a new hairless gene with pleiotropic effects in the mouse. Genet Res. 1966;8(3):295-309.
- Rygaard J, Povlsen CO. Heterotransplantation of a human malignant tumour to "Nude" mice. Acta Pathol Microbiol Scand. 1969;77(4):758-760.
- Chen J, Liao S, Xiao Z, et al. The development and improvement of immunodeficient mice and humanized immune system mouse models. Front Immunol. 2022;13:1007579.
- Shoemaker RH. The NCI60 human tumour cell line anticancer drug screen. Nat Rev Cancer. 2006;6(10):813-823.
- Barretina J, Caponigro G, Stransky N, et al. The Cancer Cell Line Encyclopedia enables predictive modelling of anticancer drug sensitivity. Nature. 2012;483(7391):603-607.
- Liu M, Yang X. Patient-derived xenograft models: current status, challenges, and innovations in cancer research. Genes Dis. 2025;12(5):101520.
- Rubio-Viqueira B, Jimeno A, Cusatis G, et al. An in vivo platform for translational drug development in pancreatic cancer. Clin Cancer Res. 2006;12(15):4652-61.
- Bertotti A, Migliardi G, Galimi F, et al. A molecularly annotated platform of patient-derived xenografts ("xenopatients") identifies HER2 as an effective therapeutic target in cetuximab-resistant colorectal cancer. Cancer Discov. 2011;1(6):508-23.
- Sartore-Bianchi A, Lonardi S, Martino C, et al. Pertuzumab and trastuzumab emtansine in patients with HER2-amplified metastatic colorectal cancer: the phase II HERACLES-B trial. ESMO Open. 2020;5(5):e000911.
- Ovcharenko D, Chitjian C, Kashkin A, et al. Two dichloric compounds inhibit in vivo U87 xenograft tumor growth. Cancer Biol Ther. 2019;20(9):1281-1289.
- Hernandez MC, Bergquist JR, Leiting JL, et al. Patient-derived xenografts can be reliably generated from patient clinical biopsy specimens. J Gastrointest Surg. 2019;23(4):818-824.
- Noto FK, Sangodkar J, Adedeji BT, et al. The SRG rat, a Sprague-Dawley Rag2/Il2rg double-knockout validated for human tumor oncology studies. PLoS One. 2020;15(10):e0240169.
- De La Rochere P, Guil-Luna S, Decaudin D, et al. Humanized mice for the study of immuno-oncology. Trends Immunol. 2018;39(9):748-763.
- Hoffman RM. Patient-derived orthotopic xenografts: better mimic of metastasis than subcutaneous xenografts. Nat Rev Cancer. 2015;15(8):451-2.
- Okano M, Oshi M, Butash A, et al. Orthotopic implantation achieves better engraftment and faster growth than subcutaneous implantation in breast cancer patient-derived xenografts. J Mammary Gland Biol Neoplasia. 2020;25(1):27-36.
- Scott CL, Becker MA, Haluska P, et al. Patient-derived xenograft models to improve targeted therapy in epithelial ovarian cancer treatment. Front Oncol. 2013;3:295.
- De Vleeschauwer SI, van de Ven M, Oudin A, et al. OBSERVE: guidelines for the refinement of rodent cancer models. Nat Protoc. 2024;19(9):2571-2596.
- Meric-Bernstam F, Lloyd MW, Koc S, et al. Assessment of patient-derived xenograft growth and antitumor activity: the NCI PDXNet consensus recommendations. Mol Cancer Ther. 2024;23(7):924-938.
- Woo XY, Giordano J, Srivastava A, et al.; PDXNET Consortium; EurOPDX Consortium. Conservation of copy number profiles during engraftment and passaging of patient-derived cancer xenografts. Nat Genet. 2021;53(1):86-99.
- Hynds RE, Huebner A, Pearce DR, et al. Representation of genomic intratumor heterogeneity in multi-region non-small cell lung cancer patient-derived xenograft models. Nat Commun. 2024;15(1):4653.
- Wunderlich M, Chou FS, Sexton C, et al. Improved multilineage human hematopoietic reconstitution and function in NSGS mice. PLoS One. 2018;13(12):e0209034.
- Chiorazzi M, Martinek J, Krasnick B, et al. Autologous humanized PDX modeling for immuno-oncology recapitulates features of the human tumor microenvironment. J Immunother Cancer. 2023;11(7):e006921.
- Phoon YP, Lopes JE, Pfannenstiel LW, et al. Autologous human preclinical modeling of melanoma interpatient clinical responses to immunotherapeutics. J Immunother Cancer. 2024;12(4):e008066.
- Tsimafeyeu I, Makhov P, Ovcharenko D, et al. A novel anti-FGFR1 monoclonal antibody OM-RCA-01 exhibits potent antitumor activity and enhances the efficacy of immune checkpoint inhibitors in lung cancer models. Immunooncol Technol. 2024;23:100725.
- Jespersen H, Lindberg MF, Donia M, et al. Clinical responses to adoptive T-cell transfer can be modeled in an autologous immune-humanized mouse model. Nat Commun. 2017;8(1):707.
- Morton JJ, Bird G, Refaeli Y, et al. Humanized mouse xenograft models: narrowing the tumor-microenvironment gap. Cancer Res. 2016;76(21):6153-6158.
- Fløe LVB, Pedersen MG, Møller BK. Animal models in preclinical evaluation of CAR-T cell therapy: advantages and limitations. Biochim Biophys Acta Rev Cancer. 2025;1880(6):189455.
- Andreu-Sanz D, Gregor L, Carlini E, et al. Predictive value of preclinical models for CAR-T cell therapy clinical trials: a systematic review and meta-analysis. J Immunother Cancer. 2025;13(6):e011698.
- Duncan BB, Dunbar CE, Ishii K. Applying a clinical lens to animal models of CAR-T cell therapies. Mol Ther Methods Clin Dev. 2022;27:17-31.
- Yang J, Wu T, Xue F, et al. TRANSPIRE-DRP: a deep learning framework for translating patient-derived xenograft drug response to clinical patients via domain adaptation. J Transl Med. 2025;23(1):1340.
- Tosca EM, Ronchi D, Rocchetti M, et al. Predicting tumor volume doubling time and progression-free survival in untreated patients from patient-derived-xenograft (PDX) models: a translational model-based approach. AAPS J. 2024;26(5):92.
- Ovcharenko D, Mukhin D, Ovcharenko G. Alternative cancer therapeutics: unpatentable compounds and their potential in oncology. Pharmaceutics. 2024;16(9):1237.
- Altogen Labs. Xenograft models in oncology: CDX, PDX, organoids, and humanized immuno-oncology platforms. Austin (TX): Altogen Labs; https://altogenlabs.com/xenograft-models/
- Sirotkin AV, Ovcharenko D, Mlyncek M. Identification of protein kinases that control ovarian hormone release by selective siRNAs. J Mol Endocrinol. 2010;44(1):45-53.