本文介绍一种可保留松果体的解剖方案,该结构在脑组织从颅腔取出时常被遗漏。本方案可确保在胚胎期及出生后早期小鼠脑组织样本中完整保留松果体,适用于免疫组织化学等后续实验操作。 原位 杂交和空间转录组学。
方法文章
在围产期小鼠脑组织制备中保留松果体
198 次观看
⸱
2026年9月11日
本文内容
摘要
摘要
松果体是一种分泌褪黑激素的神经内分泌结构,起源于胚胎前脑背侧中线的原基。在小鼠胚胎第14.5天(E14.5),可见松果体憩室从前脑泡之间的间脑顶壁向外突出。该憩室与表面的软骨、脑膜及血管组织紧密接触。在晚期胚胎或早期出生后阶段打开颅腔以取出脑组织时,此结构极易丢失。尽管松果体具有重要的神经内分泌功能,但其早期发育过程及调控该过程的信号机制仍知之甚少,部分原因在于小鼠脑发育的胚胎阶段难以完整保存这一结构。
本文介绍了一种创新的解剖方法,可在从胚胎期至出生后第7天(P7)的脑组织分离过程中,完整保留松果体及其结构完整性,并维持其与间脑顶壁的连接。该方法以E18.5小鼠脑组织为例进行演示,因此适用于需要保留组织结构完整性的下游应用,包括 原位 杂交、免疫组织化学和空间转录组学。该方案也可用于分离发育中的松果体,从而提高转录组和蛋白质组分析中松果体特异性信号的代表性,否则由于其体积微小而难以实现。
引言
松果体是位于脊椎动物脑背侧中线的一个小型神经内分泌结构,通过节律性分泌褪黑激素在调节昼夜生理节律中发挥核心作用1,2。在哺乳动物胚胎发育过程中,松果体起源于正在发育的前脑背侧中线。在小鼠中,松果体发育始于间脑背侧神经上皮的特化区域形成松果体原基/松果体隐窝,随后在胚胎第14.5天(E14.5)外凸形成松果体憩室3,4,5。该憩室附着于间脑顶壁,位于成对的端脑泡之间。随着发育进行,此憩室与脑背侧中线的上方结构紧密关联,特别是与沿前脑背侧走行的上矢状窦(SSS)和横窦(TS)等静脉通道密切相关6。发育中的松果体紧邻上矢状窦与横窦的交汇处下方,其与背侧间脑的细弱连接在移除覆盖的血管-脑膜结构以取出颅腔内脑组织时尤为脆弱7。这使得松果体极易受到损伤,因为在打开颅腔进行脑组织提取时,它可能被撕脱。因此,在常规解剖过程中松果体经常丢失,从而限制了对完整样本中其结构和分子组成的分析。
本文介绍了一种在保留松果体及其与间脑顶板连接的前提下,逐步解剖小鼠脑组织的实验方案。该方法适用于胚胎期 E16.5 至早期出生后阶段(P7),可用于松果体发育研究 原位 杂交、免疫组织化学和空间转录组学。作为下游应用的示例, 原位 展示了松果体富集标志物CRX的杂交与免疫组织化学结果。
该方法的关键创新在于,通过仔细去除可能在脑组织从颅腔取出时导致松果体被剪切脱落的物理连接,从而最大限度地减少对中线结构的牵拉损伤。这一改进优于标准操作流程。
该解剖方法仅限于出生后7天(P7)之前的阶段,因为在早期出生后发育过程中,颅骨穹窿逐渐骨化,导致颅骨刚性增加,并加强了其与脑膜和血管结构的连接。尽管已有若干研究描述了成年啮齿类动物松果体的解剖步骤8,但极少有研究关注在胚胎期和出生后早期阶段保留松果体的完整性,因为在这些时期松果体特别脆弱,在脑组织分离过程中极易受损。
方案
所有实验程序均经塔塔基础研究院机构动物伦理委员会批准,并依照其规定进行。
1. 材料准备
- 在开始操作前,确保准备好显微解剖所需的所有仪器(参见材料表)。使用70%乙醇对所有仪器进行灭菌。若需收集样本用于后续的空间转录组学/原位杂交等应用,请用RNase去污染溶液擦拭仪器。
- 用RNase去污染溶液清洁解剖显微镜载物台,并在解剖工作台附近备好一瓶冰上预冷的1× PBS。
- 在开始本操作前,准备好以下仪器和塑料耗材:
- 用于动物处理的物品:钝头镊子2对、手术剪1对、10 cm培养皿2个、6 cm培养皿若干(根据需要准备,每个头样使用一个)。
- 用于脑组织分离的物品:#5镊子1对、#55镊子1对、显微解剖剪1对,以及适用于后续应用的收集管或收集皿。
- 注意:如果后续应用涉及原位杂交或空间转录组学,在使用前需用RNase去污染溶液清洁解剖仪器。
2. 动物准备
- 对 E14.5–P0 时期的动物执行步骤 (2.1.1–2.1.6)
- 根据机构动物伦理委员会指南对怀孕母鼠实施安乐死。在本示例中,采用颈椎脱位法对母鼠实施安乐死。
- 在怀孕母鼠腹腔做正中切口以暴露子宫。使用钝头镊子轻轻取出子宫角,并将其置于含有冰上预冷的 1× PBS 的无菌 10 cm 培养皿中。
- 小心地将各个胎鼠从周围的羊膜囊和胎盘组织中分离出来,以单独获取胎鼠。
- 将胎鼠转移至另一含有冰上预冷的 1× PBS 的新鲜 10 cm 培养皿中,并在冰上保存,直至逐个取出进行脑组织分离。将单个胎鼠转移至含有冰上预冷 PBS 的 6 cm 培养皿中。
- 对于出生后至 P7 阶段的动物,根据机构动物伦理委员会指南对幼鼠实施安乐死,随后从步骤 2.1.6 开始继续操作。
- 使用手术剪将头部与身体分离,确保后脑保留在头部一侧,以防止前脑在操作过程中受到意外损伤。
- 用冷 PBS 清洗头部以去除血液。将头部转移至另一含有冰上预冷的 1× PBS 的 6 cm 培养皿中。保持头部完全浸没在 PBS 中,以便在后续解剖步骤中持续清除血液和碎片。
3. 分离完整松果体的脑组织解剖操作步骤
注意:以下所有步骤均需使用解剖显微镜进行。将放大倍数调整至至少2倍× (或根据需要)在解剖全程中清晰观察脑组织及周围结构。整个解剖过程应在冰冻 PBS 中进行,以最大限度减少 RNA 和蛋白质的降解。在执行步骤 3.1–3.10 时,使用非优势手牢固握住头部,并在整个操作过程中按照步骤 3.1 的说明保持稳定。步骤 3.2–3.9 应在非优势手固定头部的同时,由优势手执行精细操作,起始使用 #5 镊子,随后根据各步骤的具体要求更换为 #55 镊子或显微解剖剪刀。
- 非优势手使用5号镊子。将镊子的两个尖端用力向下插入眼眶。保持向下的压力,将脑组织固定在培养皿底部,直至完成步骤3.9。
注意:脑组织位于眼眶上方,镊子插入眼眶不会对其造成影响。持续施加向下的稳定压力,可在整个解剖过程中固定脑组织。 - 用优势手持5号镊子,夹住并移除覆盖头部的皮肤。
注意:此时可见光滑的软骨颅骨覆盖在脑组织表面。 - 按以下步骤移除覆盖中脑-后脑区域的软骨颅骨部分:
- 使用5号镊子在中脑两侧的软骨颅骨上做两个穿透性切口,位置位于中脑与端脑交界处。
- 将5号镊子的一个尖端沿端脑与中脑之间假想的切线方向,水平滑入软骨颅骨下方。牢固夹持后撕开软骨颅骨。
- 继续移除软骨颅骨,直至中脑和后脑完全暴露。
- 更换为55号镊子。将一个尖端轻轻插入覆盖端脑的软骨颅骨尾侧边缘下方,小心分离软骨颅骨与血管及脑膜组织之间的任何连接。
- 使用显微解剖剪沿端脑背侧中线向嗅球方向剪开。用闭合的55号镊子轻轻清除软骨颅骨与脑组织之间的任何附着物。使用5号镊子分离覆盖在端脑半球上的两片软骨颅骨。
注意:此时可在脑组织中观察到,硬脑膜窦(SSS)表现为沿软骨颅骨上缘走行的一条暗红色静脉,横窦(TS)则与SSS呈垂直走向。 - 松果体位于SSS正下方。使用显微解剖剪在SSS的头端进行剪切。
- 使用55号镊子,将软骨颅骨的背侧部分从两侧完全移除,以更好地暴露松果体、SSS和TS。
- 使用显微解剖剪在松果体两侧的TS上各做一切口。用55号镊子分离TS的侧方附着结构。
- 用闭合的5号镊子轻轻将脑组织的头端从颅腔腹侧分离。将闭合的镊子滑入脑组织腹面下方,完全将其松解。
- 根据后续实验需求,妥善保存带有完整松果体的脑组织。
4. 实验方案中的关键步骤
注意:该解剖方案的成功取决于谨慎处理松果体周围血管连接。以下要点对于在整个解剖过程中保持松果体完整至关重要:
- 使用5号镊子的镊齿插入两侧眼眶以固定头部,并在步骤3.1–3.9期间始终保持向下的稳固压力。这可提供稳定的支撑,同时避免对脑组织施加直接压力。
- 在去除软骨颅(步骤3.3)时,避免过度牵拉或剥离操作,因为这些操作可能导致松果体从间脑背侧脱离。
- 在清除脑膜和血管附着物(步骤3.4)以及打开端脑背侧软骨颅(步骤3.5)时,仅使用55号镊子的尖端。镊子深入穿透可能会损伤位于端脑后部背侧板下方的松果体。
- 在取出脑组织之前,先完成上矢状窦的横断(步骤3.6)以及横窦的双侧横断(步骤3.8)。这些切口可缓解背侧静脉网络内的张力,防止在取出脑组织时松果体受到剪切损伤。
- 在步骤3.9中,使用闭合的镊子轻轻松动脑组织,同时避免扰动背侧中线。一旦所有脑膜和血管附着物均已被松解,脑组织应可自由地与颅腔分离。
结果
该解剖方案可从 E16.5 至 P7 期的胚胎及早期出生后小鼠中稳定分离脑组织,并使松果体保持在其天然解剖位置(图 1)。
逐步去除软骨颅,并结合仔细清除脑膜和血管附着物,可防止松果体受到意外的剪切应力。此外,在上矢状窦(SSS)的头端进行可控性切断,同时在横窦(TS)处实施双侧切割,可有效释放背侧血管网络的张力。这能保护松果体在后续脑组织取出过程中不被撕脱。因此,在将脑组织从颅腔分离后,松果体仍保持完整并附着于间脑中线。图 2A).
为检验保存的松果体的完整性及其是否适用于后续实验应用, 原位 松果体标志物的杂交 Crx,以及对CRX蛋白进行免疫组织化学检测9,10(图 2B–D)。这证实了松果体的身份及其结构完整性。
该解剖方案已在多个发育阶段得到验证,在大多数实验中松果体均被完整保留:E16.5(N = 10)、E18.5(N = 15)、P0(N = 10)和 P7(N = 6)。这表明,该方法在胚胎期及出生后早期脑组织分离过程中对松果体的保存具有高度稳定性和可重复性(图 2E)。
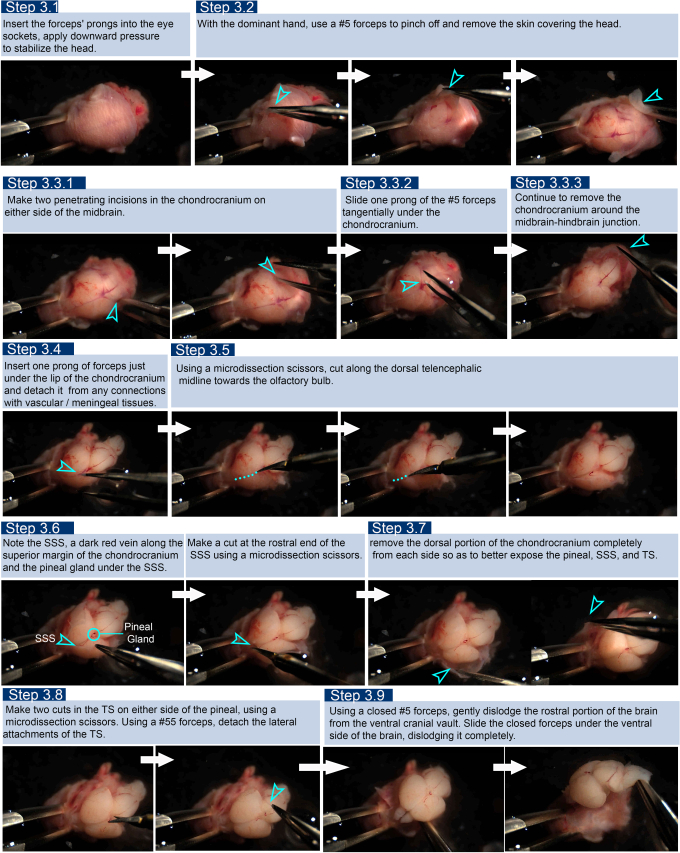
图1: 视频截图,展示分离E18.5小鼠脑组织的逐步操作过程,同时保持松果体完整。 请点击此处查看该图的放大版本。
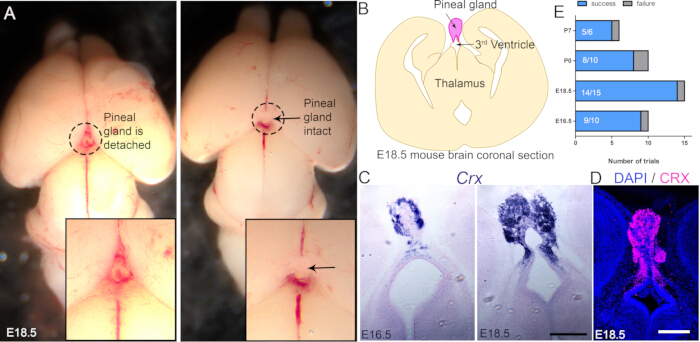
图2代表性结果。 (A) 两个E18.5小鼠脑组织的代表性示例,左侧为采用标准解剖步骤时松果体已脱落的情况,右侧为采用所述方法后松果体保持完整的脑组织。 (B) E18.5 冠状切面示意图,显示松果体为粉红色。 (C) 原位 杂交用于 Crx 在 E16.5 和 E18.5 时期,显示出松果体特异性表达。 (D) E18.5 时期 CRX 的免疫染色。E柱状图显示在胚胎期(E16.5 和 E18.5)及出生后(P0 和 P7)不同发育阶段,该实验方案成功(脑组织完整分离且松果体保留)与失败(松果体受损或丢失)的比例。比例尺: 100 µmN = 6 个生物学重复,适用于 A、C 和 D。 请点击此处以查看此图的放大版本。
讨论
已针对人类胎儿/婴儿脑部开发出标准化的松果体解剖方法,有助于法医病理学家理解婴儿猝死综合征的病因11。既往方案展示了连同表面血管、脑膜和脉络丛一并切除松果体的操作12;然而,在小鼠或其他啮齿类动物松果体早期发育阶段,尚无可靠方法能够稳定保留与间脑顶壁相连的完整松果体。
许多描述松果体切除术及相关分析的经典解剖学与方法学文献均基于大鼠模型13,因为在大鼠中该腺体更大且更易于识别。相比之下,小鼠的松果体明显更小且更为脆弱,在常规脑组织提取过程中极易丢失或受损。一些研究尝试通过将整个头部固定来解决这一问题。然而,这种方法在组织切片前处理过程中会引入额外的技术限制。例如,在4%多聚甲醛固定后进行30%蔗糖冷冻保护时,颅骨可能对下方脑组织施加压力,导致前脑背侧结构受压或变形。此类人为假象会破坏脑形态,影响依赖精确解剖结构的分析结果。此外,组织固定并不适用于所有实验需求。因此,亟需建立一种既能保留松果体并维持其与间脑顶壁连接、又不损害整体脑组织完整性的方法,以促进小鼠松果体的发育与分子研究。
完整脑组织样本中松果体的可靠保存对于多种实验应用至关重要。组织学和分子生物学方法,如免疫组织化学和 原位 杂交等技术需要保持组织结构的完整性,以检测腺体内基因表达和细胞排列。近年来,空间转录组学及其他具有空间分辨能力的分子谱型分析技术也依赖于完整的组织形态,以在特定解剖背景下绘制基因表达图谱。迄今为止,尚未见关于小鼠胚胎松果体的空间转录组图谱的报道。这可能部分归因于在常规脑组织解剖过程中难以完整保留松果体的技术挑战。因此,能够可靠维持松果体完整性的方法,有望促进新兴空间转录组学技术在松果体生物学研究中的应用。此外,由于松果体仅占全脑组织的极小部分,完整保留松果体进行脑组织分离,可为进一步特异性采集松果体提供可能;通过汇集多次采集的松果体样本,将显著提高在转录组学和蛋白质组学批量分析中松果体特异性信号的富集程度。
使用非惯用手持5号镊子充分固定头部。在整个解剖过程中均需保持这一操作,因此惯用手必须根据需要更换器械。调整照明条件,以更清楚地观察松果体与覆盖其上的血管-脑膜组织之间的附着关系,这些组织需要被去除。
披露
所有作者均声明无竞争利益。
致谢
感谢Shital Suryavanshi博士以及印度塔塔基础研究院动物房工作人员提供的出色支持。感谢Sundar Naganathan博士慷慨允许在其实验室使用奥林巴斯MVX10体视宏观变焦显微镜录制本操作视频。本研究由印度政府原子能部(DAE)资助,项目编号RTI4003和RTI4015(ST);同时获得印度医学研究理事会-卫生研究发展司(ICMR-DHR)专项资助(GAP00303)以及印度国家科学基金会PM ECR资助(ANRF PMECRG,项目编号GAP00313)(AP)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 明场显微镜 | Olympus | IX73 | 任何配备彩色相机的明场显微镜均适用。 |
| 共聚焦显微镜 | Olympus | FV3000 | 根据所需分辨率,任何共聚焦显微镜或落射荧光显微镜均适用。 |
| CRX 抗体 | Invitrogen | PA5-32182 | 免疫染色方案见 Parichha 等人9。 |
| CRX 探针 | 定制 | 定制 | 原位杂交方案见 Parichha 等人10。 |
| 精细镊子 # 5 | F.S.T | 11251-23 | 可用任何公司生产的类似工具替代。 |
| 精细镊子 # 55 | F.S.T | 11255-20 | 可用任何公司生产的类似工具替代。 |
| PBS,pH 7.4 | Gibco | 10010023 | 可用任何公司生产的类似产品替代。 |
| 培养皿 | Corning | CLS351029 | 可用任何公司生产的类似产品替代。 |
| RNA酶清除剂(RNaseZap) | Invitrogen | AM9782 | RNaseZap RNase 去污染溶液是一种表面去污染溶液,接触后即可破坏RNA酶 |
| 弹簧剪(显微解剖剪) | F.S.T | 15020-15 | 可用任何公司生产的类似工具替代。 |
| 体视变倍显微镜 | Nikon | SMZ745 | 任何解剖显微镜均适用 |
参考文献
- Nakahara D, Nakamura M, Iigo M, Okamura H. Bimodal circadian secretion of melatonin from the pineal gland in a living CBA mouse. Proc Natl Acad Sci U S A. 2003;100(16):9584-9.
- Christ E, Pfeffer M, Korf HW, von Gall C. Pineal melatonin synthesis is altered in Period1-deficient mice. Neuroscience. 2010;171(2):398-406.
- Rath MF. Homeobox gene-encoded transcription factors in development and mature circadian function of the rodent pineal gland. J Pineal Res. 2024;76(3):e12950.
- Rath MF, Rohde K, Klein DC, Møller M. Homeobox genes in the rodent pineal gland: roles in development and phenotype maintenance. Neurochem Res. 2013;38(6):1100-12.
- Estivill-Torrús G, Vitalis T, Fernández-Llebrez P, Price DJ. The transcription factor Pax6 is required for development of the diencephalic dorsal midline secretory radial glia that form the subcommissural organ. Eur J Neurosci. 2001;14(6):1011-22.
- Dias M, et al. Transection of the superior sagittal sinus enables bilateral access to the rodent midline brain structures. eNeuro. 2021;8(4):ENEURO.0146-21.2021.
- Matsunaga MM, et al. Morphologic analysis of mice's pineal gland. J Morphol Sci. 2011;28(3):157-60.
- Boeckmann D. Morphological investigation of the deep pineal of the rat. Cell Tissue Res. 1980;210(2):283-94.
- Parichha A, et al. Constitutive activation of canonical Wnt signaling disrupts choroid plexus epithelial fate. Nat Commun. 2022;13:633.
- Parichha A, et al. Dentate gyrus morphogenesis is regulated by β-catenin function in hem-derived fimbrial glia. Development. 2022;149(21):dev200953.
- Sparks DL, Coyne CM, Sparks LM, Hunsaker JC 3rd. Recommended technique for brain removal to retain anatomic integrity of the pineal gland in order to determine its size in sudden infant death syndrome. J Forensic Sci. 1997;42(1):100-2.
- Bowyer JF, et al. A visual description of the dissection of the cerebral surface vasculature and associated meninges and the choroid plexus from rat brain. J Vis Exp. 2012;69:e4285.
- Calvo J, Boya J. Embryonic development of the rat pineal gland. Anat Rec. 1981;200(4):491-500.
重印与许可
