本文综述了精子发生各阶段线粒体质量调控(生物合成、动态变化及线粒体自噬)的相关证据,将代谢转变与结构重塑与男性不育相联系,并指出了方法学上的不足,以指导未来的研究方向。
本文内容
摘要
摘要
全球范围内,男性不育症的发病率正在上升。精子发生过程能量需求高,且与线粒体质量控制(MQC)紧密相关,包括线粒体生物合成、融合-分裂动态以及线粒体自噬。本文综合了生殖细胞不同发育阶段的现有证据,重点阐述了从糖酵解支持的ATP生成向以氧化磷酸化(OXPHOS)为主的代谢方式转变的阶段特异性变化,以及线粒体结构重塑为中段鞘的过程。我们总结了遗传学和功能研究数据,指出OPA1/MFN1-2在内膜/外膜融合中的作用,DRP1/FIS1/MFF在分裂及中段鞘组织中的功能,以及PINK1–Parkin依赖性和非依赖性线粒体自噬在线粒体质量控制中的角色;同时指出,在精子形成过程中,细胞质的清除和顶体的维持可能涉及广义自噬,而非特异性线粒体自噬。线粒体功能障碍——如过量活性氧(ROS)产生、线粒体膜电位(MMP)崩溃、动力学失调或线粒体自噬缺陷——会损害精子发生过程及精子功能。我们还指出了限制研究转化的方法学空白,特别是缺乏标准化的表型分析和人类遗传学证据。阐明MQC的因果关系及其药物靶向潜力,可能为未来男性不育症的诊断和治疗研究提供支持。
引言
全球精子质量正在下降,由精子质量异常导致的男性不育发病率也在上升1。最近的一项荟萃分析显示,1973年至2011年间,来自北美、欧洲、澳大利亚和新西兰男性的精子数量下降了50–60%2,且自2000年以来这一下降趋势有所加快3。全球范围内均已报道精子质量下降加速的现象2,3,4,5,6。这一下降的原因仍需进一步研究,并需采取针对性措施以保护男性生育力。
精子发生发生在睾丸的生精小管中。这是一个沿生精小管长轴呈波浪式进行的过程,涉及特定组合的生精细胞,最终促使精原干细胞(SSCs)增殖并分化为精子7。哺乳动物的精子发生是生物学中最复杂且持续时间最长的分化过程之一。在人类中,一个完整的精子发生周期持续64–74天,每个生精上皮周期为16天。这一复杂过程伴随着线粒体在形态、数量和分布上的显著变化8。
线粒体质量控制(mitochondrial quality control, MQC)——包括线粒体生物合成、融合、分裂以及选择性线粒体自噬等一系列协调过程——在不同生物能量需求条件下维持细胞器的完整性8,9。在睾丸中,MQC具有阶段特异性,支持精原细胞从增殖状态向减数分裂及精子形成阶段的转变,最终在精子中段组装成致密排列的线粒体鞘9。图1展示了精子发生过程中MQC的作用机制。MQC组分的破坏可导致模式生物及人类出现精子发生缺陷和生育力下降。本综述整合了当前的机制研究进展,并概述了潜在的转化应用前景。
综述与观点
精子发生与线粒体能量代谢
精子发生包含三个连续阶段:有丝分裂增殖、减数分裂和精子形成,涉及精原细胞的增殖、分化为初级精母细胞、减数分裂、精子细胞的成熟以及精子释放进入曲细精管腔。精原细胞可分为静止型和更新型两类。部分精原细胞作为干细胞被保留下来,而另一些则通过分化参与精子发生过程。此外,部分精原细胞会经历程序性细胞死亡,例如凋亡。二倍体的初级精母细胞经过两次减数分裂,最终分化为单倍体的精子细胞。在精子形成过程中,圆形的精子细胞不再分裂,而是转变为高度伸长的精子细胞,并最终发育为成熟的精子。
精子发生过程需要生殖细胞(包括精原细胞、初级精母细胞、精子细胞和精子)与支持细胞之间的协调相互作用,同时需要维持血-睾屏障的完整性10,11。血-睾屏障由相邻支持细胞之间的紧密连接构成,将生精上皮分为基底室和近腔室,从而建立并维持一个对生殖细胞发育至关重要的特殊微环境11,12。因此,从精原干细胞到成熟精子的整个精子发生过程均发生于这一独特的睾丸微环境中。精子生成过程高度依赖于线粒体功能13。作为真核细胞能量代谢的中心,线粒体被认为是精子生成所必需的结构。精子的形成高度依赖线粒体提供的能量供应及其信号传导功能。在发育中的生殖细胞中,线粒体不仅为精子发生提供必需的ATP,还通过参与细胞内信号转导、细胞周期调控以及程序性细胞死亡来影响该过程13。在Leydig细胞中,线粒体在类固醇激素的合成中发挥关键作用,且这些睾丸间质细胞合成睾酮的过程依赖于线粒体ATP的生成14。此外,作为唯一具有独立DNA的细胞器,线粒体DNA与精子质量密切相关。因此,了解线粒体状态及其调控机制对于揭示精子发生过程及维持雄性生育力具有重要意义。
能量代谢对于需要大量ATP的精子发生过程至关重要。ATP生成的两条主要途径是线粒体氧化磷酸化(OXPHOS)和糖酵解。ATP的供应具有阶段依赖性;在减数分裂和中段形成过程中,OXPHOS的作用逐渐增强,而糖酵解则在成熟精子中对ATP生成有显著贡献。此外,糖酵解通过提供灵活且快速的能量供应,支持精子的成熟、运动能力以及在雌性生殖道中的迁移。
然而,在精原细胞和早期初级精母细胞中,线粒体相对较小,且氧化磷酸化(OXPHOS)活性有限。随着精子发生过程进入后期阶段,如初级精母细胞、精子细胞和精子,线粒体会经历重塑,其OXPHOS活性在空间上更加集中且效率更高。此外,由于血-睾屏障的存在,不同发育阶段可利用的底物也有所不同。精原细胞位于生精上皮的基底室,能够获取循环中的葡萄糖,并通过糖酵解产生能量。相比之下,位于近腔室的初级精母细胞和精子细胞被血-睾屏障与血液及间质隔开,依赖支持细胞通过葡萄糖转运蛋白(GLUTs)吸收葡萄糖,并经糖酵解将其转化为丙酮酸。随后,乳酸脱氢酶(LDH)将丙酮酸转化为乳酸。乳酸通过单羧酸转运蛋白(MCTs)被转运至初级精母细胞,在细胞内由LDH重新转化为丙酮酸,后者再由丙酮酸脱氢酶(PDH)转化为乙酰辅酶A(acetyl-CoA),进入三羧酸(TCA)循环。最后,丙酮酸通过线粒体丙酮酸载体被转运至线粒体内,以促进氧化磷酸化(OXPHOS)。
线粒体功能障碍对精子发生过程的损害
在精子释放过程中,成熟的精子从支持细胞释放到生精小管的管腔中,随后被运输至附睾。该过程需要线粒体提供大量能量。当线粒体功能受损时,精子发生会受到阻碍。线粒体功能障碍的主要表现包括活性氧(ROS)的过度产生、线粒体膜电位(MMP)的改变、线粒体分裂与融合动态失衡、线粒体生物合成受损、有缺陷的线粒体自噬以及钙离子稳态的破坏。
线粒体通过氧化磷酸化(OXPHOS)产生ATP的过程同时伴随着活性氧(ROS)的生成。线粒体是活性氧的主要来源,ROS主要在线粒体电子传递链(ETC)的呼吸复合物I和III处产生15。在正常的生理条件下,适量的ROS参与调控精子发生的信号通路。然而,过量的ROS可导致氧化还原失衡,引发氧化应激,从而损害精子发生过程。因此,线粒体能量代谢与ROS生成之间的平衡是确保精子发生正常进行的关键因素。
高效的线粒体氧化磷酸化(OXPHOS)需要呼吸碳底物(如丙酮酸、脂肪酸)穿过线粒体外膜进入膜间隙。这些底物随后通过位于线粒体内膜上的载体被转运至基质,在基质中参与三羧酸循环(TCA循环)。在TCA循环中,这些碳底物发生氧化分解,生成烟酰胺腺嘌呤二核苷酸(NADH)和黄素腺嘌呤二核苷酸(FADH2)。这些产物将电子传递给电子传递链(ETC),驱动ADP与无机磷酸(Pi)合成ATP,实现氧化磷酸化。TCA循环或ETC通路的中断可能损害精子生成16线粒体膜电位(MMP)作为细胞能量状态和线粒体功能的指标,已被证实与精子运动能力相关。17 整体受精能力18.
在线粒体应激条件下,分裂可将受损的线粒体片段分离开来,而融合则能促进内容物的混合和功能互补。随后,受损或多余的线粒体可通过线粒体自噬(mitophagy)被降解并回收利用。线粒体生物合成、分裂、融合和线粒体自噬共同构成了线粒体质量控制(mitochondrial quality control, MQC),以维持线粒体功能并支持其动态重塑19。
精子发生过程涉及精原细胞分化为精子,这不仅导致细胞形态发生显著变化,还需要能量代谢的支持与调控。作为细胞的能量工厂,线粒体在精子发生的多个关键环节中发挥重要作用,包括能量供应、信号转导以及程序性细胞死亡。在精子发生过程中,生殖细胞在不同发育阶段对代谢的需求各不相同。线粒体的数量和形态在精子发生过程中也经历显著变化。在精子形成期间,大量线粒体会被丢弃,而保留下来的线粒体则有序排列于精子中段,围绕轴丝及相关的鞭毛结构形成线粒体鞘。因此,在精子发生过程中,睾丸中各类细胞的线粒体持续经历融合与分裂,需要一套高效且精确的线粒体质量控制(MQC)机制,以维持其正常功能,并满足精子发生过程中较高的能量需求。随着精子的生成,线粒体的形态和数量均发生显著改变,而线粒体质量控制在此过程中发挥着关键作用。参与线粒体质量控制的关键靶蛋白列于表1中。
精子形成与线粒体动力学
线粒体是高度动态的细胞器,其形态、大小和亚细胞分布通过协调的融合与分裂过程不断重塑,这一过程统称为线粒体动力学。在正常的生理条件下,融合与分裂处于动态平衡状态,维持线粒体稳态,促进功能互补,并确保细胞分裂过程中线粒体的正常遗传。这种平衡一旦被打破——无论是由于基因缺失、翻译后修饰缺陷还是病理应激——都会损害线粒体功能,影响能量生成,最终阻碍精子发生。线粒体动力学的精确调控在生殖细胞中尤为重要,因为精子发生过程伴随着剧烈的代谢转变和广泛的形态重塑,需要线粒体结构与活性在特定阶段进行适应性调整。
线粒体融合由位于线粒体外膜的MFN1和MFN2以及位于内膜的OPA1介导,有助于线粒体内容物的混合、功能互补以及线粒体DNA完整性的维持。融合不仅仅是一种防御性反应,而是一种依赖于环境的机制,支持生殖细胞分化过程中的线粒体遗传和代谢适应。在精原细胞分化过程中,MFN的表达水平升高,而MFN1或MFN2的缺失会导致精原细胞和初级精母细胞中DNA氧化和细胞凋亡,从而引起雄性不育20,21。MFN1突变可导致小鼠睾丸萎缩,表现为精母细胞显著减少且精子生成失败,而未分化的精原细胞则不受影响,提示MFN1是减数分裂进程所必需的20。相比之下,MFN2调控线粒体和内质网的双重功能,在精子发生过程中发挥独特作用21。
线粒体分裂由DRP1介导,DRP1通过包括FIS1、MFF、MID49和MID51在内的接头蛋白被招募到线粒体外膜。一旦被招募,DRP1会组装成环状寡聚体,以GTP依赖的方式收缩并分裂线粒体。该过程包括三个主要步骤:DRP1通过磷酸化被激活,通过与FIS1、MFF、MID49和MID51的相互作用被招募至外膜,以及组装成环绕线粒体的环状结构,消耗GTP,最终产生两个独立的细胞器。分裂不仅仅是一种清除去极化线粒体或满足能量需求增加的机制;相反,它是一个协调过程,调控线粒体的分布、受损组分的分离、细胞分裂期间的遗传以及线粒体结构的重塑。缺乏DRP1的小鼠在胚胎期即致死22,23;MFF缺陷型小鼠表现出生育力下降和精子数量减少,为研究线粒体分裂在雄性生殖细胞发育中的作用提供了有价值的模型24。在线粒体精子形成过程中,线粒体分裂对于线粒体鞘的正常形成至关重要。
精子发生过程能量需求较高,主要依赖精原细胞中的糖酵解以及初级精母细胞和精子细胞中的氧化磷酸化(OXPHOS)。在减数分裂期间,OXPHOS尤为关键,其效率依赖于完整的线粒体动力学25,26。减数分裂后,MFF及其他分裂蛋白调控线粒体分裂,并参与精子线粒体鞘的形成24。在精子形成过程中,部分线粒体被选择性保留并重塑为线粒体鞘,而多余的线粒体及细胞质成分则通过自噬途径被清除27。OPA1、DRP1和MFF等蛋白质可能是改善精子功能的潜在研究靶点,但其治疗相关性仍需进一步验证。对人类精子发生过程中线粒体质量控制(MQC)的深入研究,可能有助于未来男性不育症的诊断与治疗研究。
精子发生与线粒体自噬
线粒体自噬在精子发生过程中起着关键作用28。线粒体自噬主要涉及自噬体对受损线粒体的吞噬。含有受损线粒体的自噬体随后与溶酶体融合,线粒体通过溶酶体的作用被降解,从而清除受损线粒体并实现质量控制。经典的线粒体自噬通路是PINK1/Parkin通路,此外也已报道存在PINK1/Parkin非依赖性通路29。
自噬在精子发生过程中有助于维持顶体完整性、精子细胞极性以及细胞质成分的降解,尽管这些过程反映的是一般性自噬,而非选择性线粒体自噬,除非有明确证据表明发生了线粒体清除。研究发现,线粒体自噬与线粒体动力学密切相关,线粒体分裂可能促进线粒体自噬,以清除多余或受损的线粒体30。FIS1作为一种线粒体分裂蛋白,也在精子发生过程中的线粒体自噬中发挥作用31。RAB7A参与线粒体自噬体的形成及自噬体的成熟32。FIS1与线粒体GTP酶激活蛋白TBC1D15相互作用33,34。TBC1D15调控RAB7A的活性,而RAB7A参与囊泡与溶酶体的融合以及自噬体的成熟过程34,35。当FIS1失活时,RAB7A可在线粒体表面持续保持活性,导致自噬体膜的异常生长和管状结构形成;可通过光学显微镜观察到LC3的聚集35。线粒体自噬也可独立于DRP1介导的线粒体分裂而发生,因此不应将分裂视为线粒体清除的必要条件35。
在精子形成过程中,精子细胞会脱去多余的细胞组分,研究发现自噬体在精子细胞中最为丰富36。核心自噬基因Atg7已被证实与精子发生过程中的精子细胞极化及细胞质清除有关;然而,在此过程中早期生殖细胞类型似乎受影响较小27,36。此外,在受损的睾丸模型中,线粒体自噬作用增强,包括 Leydig 细胞29、精原干细胞/前体细胞37,38、支持细胞39,以及暴露于毒性物质的未成熟大鼠睾丸40。在精子发生过程中,线粒体自噬与凋亡及其他形式的程序性细胞死亡相关,从而影响睾丸中的精子生成41,42。
文献计量学背景
使用检索词“spermatogenesis”和“MQC”,对1970年至2023年期间的Web of Science核心合集进行了聚焦的文献计量分析;排除了非哺乳动物研究和无关记录,并使用VOSviewer 1.6.20进行可视化43。经筛选后,共保留来自66个国家的1,217个机构和5,705位作者发表的1,019篇文章。文献发表数量呈稳定增长趋势(图2A)。美国和中国发表的文章最多(分别为212篇和196篇),其中美国的总被引频次最高(12,295次;图2B)。机构与作者合作网络分别在图2C和2D中进行了总结。
关键词共现分析(频次 > 7)表明,研究重点集中在精子活力、氧化应激、凋亡/程序性细胞死亡、DNA损伤、脂质过氧化以及精子质量(图3)。这些文献计量学模式支持但不能替代机制性综述:该领域主要围绕氧化损伤和精子活力结局展开,而将特定阶段的线粒体质量控制通路与不孕症直接关联的人体证据仍然有限。
结论
随着生物技术的进步,男性生育力的研究已从形态描述和运动能力分析转向精子发生过程中的分子与细胞机制。线粒体在这一过程中处于核心地位:它们生成ATP,支持减数分裂和精子形成过程中的结构重塑,并且对氧化应激和环境损伤高度敏感44。为了在这些应激条件下维持正常功能,线粒体依赖线粒体质量控制(MQC),该系统整合了线粒体生物合成、融合-分裂动态以及线粒体自噬过程。这些通路的紊乱会损害生殖细胞发育、精子中段结构,最终影响生育能力。综上所述,现有证据支持一种阶段特异性的模型,即线粒体动力学和线粒体自噬在精子发生过程中协调能量生成、细胞器重塑以及受损组分的清除。然而,直接的人体证据仍然有限,表型分析也缺乏标准化,因此与MQC相关的蛋白质应被视为需要进一步验证的候选研究靶点,而非已确立的治疗靶点。
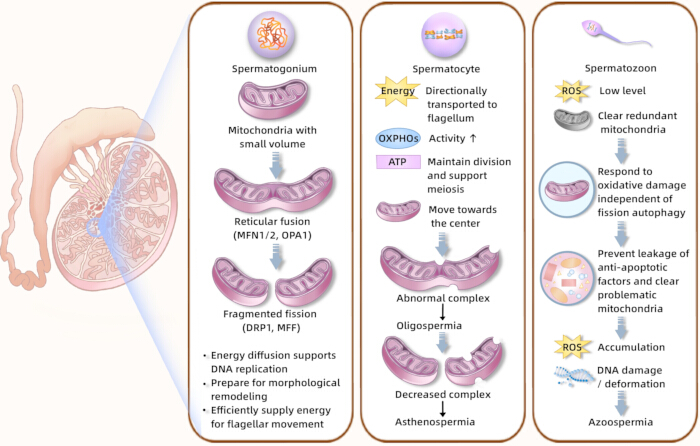
图1.精子发生过程中线粒体质量控制的机制。 精子发生过程中的阶段性能量代谢与线粒体重塑。示意图展示了支持细胞-生精细胞的代谢偶联、葡萄糖转运体、单羧酸转运体、ATP生成、减数分裂和精子形成过程中从糖酵解支持的代谢向氧化磷酸化的转变,以及与活性氧相关的线粒体损伤。缩写:ATP = adenosine triphosphate;OXPHOS = oxidative phosphorylation;ROS = reactive oxygen species。请点击此处查看此图的放大版本。
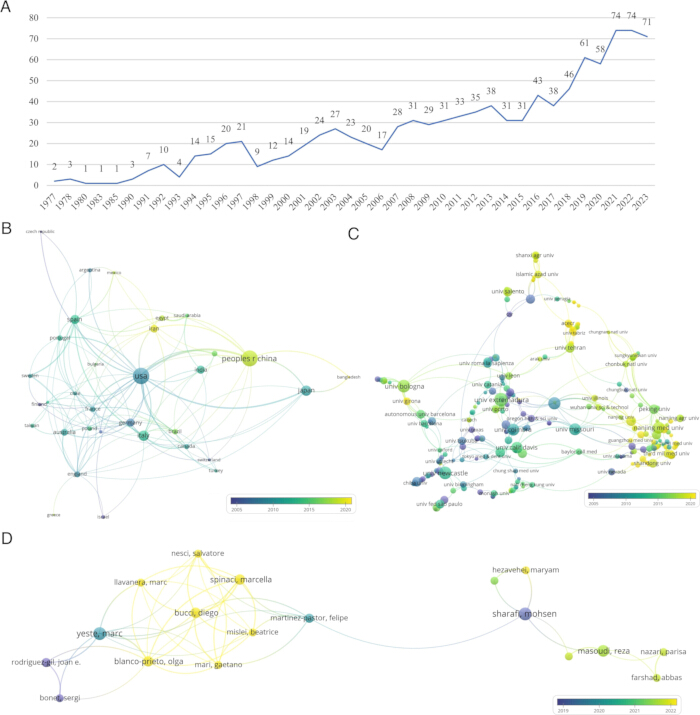
图2.国家、机构、作者发表情况及合作分析。(A)精子发生与线粒体质量控制(MQC)领域年度发表论文数量。(B)精子发生与MQC领域国际间合作发表论文的时间分布图。(C)精子发生与MQC领域机构间合作发表论文的时间分布图。(D)精子发生与MQC领域作者间发表论文的时间分布图。节点表示论文数量;节点颜色表示发表时间,由早至晚;连线表示合作关系,线越粗表示合作越密切。缩写:MQC = mitochondrial quality control。 请点击此处查看该图的放大版本。
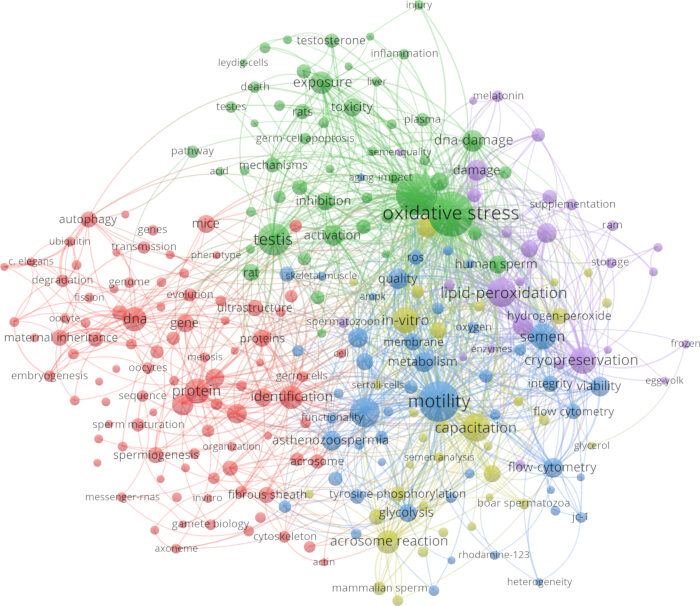
图3. 高频关键词共现图谱。 节点代表高频关键词;节点大小表示出现频率;节点颜色表示聚类情况,相同颜色表示主题关联更紧密;线条表示关键词之间的关系,线条越粗表示关系越密切。请点击此处查看该图的高清版本。
| 线粒体质量控制过程 | 靶蛋白 |
| 线粒体融合 | 视神经萎缩蛋白1 (OPA1) |
| 线粒体融合蛋白1 (MFN1) | |
| 线粒体融合蛋白2 (MFN2) | |
| 线粒体分裂 | 动力相关蛋白1 (DRP1) |
| 线粒体分裂蛋白1 (FIS1) | |
| 线粒体分裂因子 (MFF) | |
| 线粒体自噬 | PTEN诱导的假定激酶1 (PINK1) |
| 泛素蛋白连接酶Parkin (E3泛素蛋白连接酶Parkin) |
表1:线粒体质量控制中的关键靶蛋白。 该表格列出了在精子发生过程中参与线粒体融合、线粒体分裂和线粒体自噬的代表性蛋白。
披露
作者声明无利益冲突。
致谢
本工作得到宁夏自然科学基金项目(2025AAC030481,2024AAC03715)、国家自然科学基金(82560939,82505601)、宁夏重点研发计划(2025FRG05005,2025BEG2008)、北京市自然科学基金(7254520)、中国博士后科学基金(2025T181076)、中国科学技术协会青年人才托举工程(YESS20240193)、中华中医药学会青年人才托举工程(CACM-2024-QNRC2-B17)以及国家中医药管理局高水平中医药重点学科建设项目(zyyzdxk-2023238)的资助。
参考文献
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.