本方案提供了一种实用且可重复的实验流程,用于同步培养细胞,在24–72小时期间进行交错的时间序列取样(无需过夜收集),并分析昼夜节律钟基因的表达。
本文内容
摘要
摘要
昼夜节律是由机体内源驱动的大约24小时的振荡,可调控广泛的细胞和生理过程,包括基因表达、代谢和行为。这些节律源于相互关联的转录-翻译反馈环路,能够响应时间信号和环境线索。由于昼夜节律调控具有高度动态性,即使微小的实验差异也可能影响节律的相位、振幅和周期性,因此标准化的实验流程对于获得可靠且可重复的结果至关重要。本实验方案旨在提供一种实用且可重复的工作流程,用于在标准实验室条件下对培养细胞进行同步化、时间序列取样以及分析昼夜节律基因的表达。该方案详细描述了基于血清冲击的细胞同步化方法、在24–72小时内分阶段采集样本以避免夜间取样的操作、核糖核酸提取、互补脱氧核糖核酸合成、定量实时聚合酶链式反应,以及采用适当的统计方法进行昼夜节律分析。该工作流程还强调了若干关键实验注意事项,包括同步化条件、样本质量评估、参考基因选择和数据分析,以提高不同实验间的可重复性。本方法为研究分子水平的昼夜节律机制以及评估培养细胞中基因的节律性表达提供了便捷的途径,有助于在生理和疾病相关实验模型中开展昼夜节律调控的研究。
引言
昼夜节律是由机体内源性驱动的、周期约为24小时的生物节律,可调控广泛的生理、代谢及细胞过程1在哺乳动物系统中,这些节律由下丘脑视交叉上核(SCN)中的中枢生物钟以及细胞水平上的自持分子钟共同协调。这些生物钟由核心钟基因构成的相互关联的转录-翻译反馈环路组成,包括昼夜节律运动输出周期蛋白缺失基因(circadian locomotor output cycles protein kaput,时钟),碱性螺旋-环-螺旋芳香烃受体核转位酶样蛋白1(Bmal1),周期 (Per),以及隐花色素(cryptochrome)冷冻)2鉴于昼夜节律钟在多种生物过程中的核心作用, 体外 细胞模型已成为在受控实验条件下研究时间调控分子机制的重要工具。
本实验方案旨在提供一种可靠、实用且可重复的工作流程,用于通过血清冲击法同步培养细胞,进行交错的时间序列取样,并在避免夜间采集样本的情况下分析昼夜节律基因的表达。该工作流程在不降低数据质量的前提下提高了昼夜节律取样操作的可行性,旨在利用常规实验室技术促进对节律性生物过程的研究。
昼夜节律研究已在多种生物和系统中开展 体外 模型,包括人类癌细胞系3大鼠-1成纤维细胞4,SCN 外植体5和类器官6尽管大多数哺乳动物细胞都具有功能性的昼夜节律钟,但在缺乏光等同步化信号的情况下,体外培养中的细胞会迅速出现节律失同步,从而限制了对昼夜节律的研究。 体外7因此,同步化技术对于研究分子钟机制及其在健康与疾病中的意义至关重要。
已开发出多种用于培养的哺乳动物细胞的同步化策略。其中,基于糖皮质激素的同步化方法(使用地塞米松)是应用最广泛的方法之一,因为它能在多种细胞类型中有效重置昼夜节律,同时减少与血清刺激相关的一些变异性8。类似地,通过佛司可林介导的环磷酸腺苷信号通路激活,已在特定细胞模型中成功用于同步外周生物钟9。其他方法包括使用血液传播信号4、不同化学化合物8,10、培养基更换3、温度冲击11、氧气循环12以及机械刺激13。总体而言,这些方法极大地推动了昼夜节律研究的发展;然而,它们可能需要专用设备、特定实验条件或额外优化,因此针对每种生物模型和实验应用验证所选的同步化策略至关重要14。
血清冲击是最常用的细胞同步化方法之一,其原理是将培养的细胞暴露于短期的高浓度血清刺激中4由于刺激是瞬时的,因此可最大限度地减少对细胞信号通路的长期干扰4,从而减少对下游分析的潜在混杂影响。因此,血清冲击法特别适用于昼夜节律基因表达和分子钟功能的研究。此外,该实验操作简便,无需特殊设备,便于在不同实验室间推广并实现可重复性。然而,血清冲击实验的一个实际局限在于,为准确表征昼夜节律,需要密集的取样安排。可靠的节律分析通常要求在一次或多次昼夜周期(24–72 小时)内以固定时间间隔取样,一般每 2–6 小时采集一次样本。14,通常需要过夜收集。
本文所述的工作流程通过在多个培养板之间错开同步化启动时间,解决了这一操作上的难题,从而能够在标准工作时间内完成整个昼夜节律取样,避免了夜间取样。本方案并非引入新的同步化策略,而是对已建立的血清冲击法进行了详细且可重复的实施,并结合了实用的取样时间表和下游基因表达分析。该工作流程特别适用于利用广泛可用的实验室技术,在培养细胞中开展昼夜节律基因表达的研究。当将该方案应用于其他细胞模型时,应针对特定细胞类型优化并验证实验参数,包括细胞密度、同步化条件、取样间隔以及参考基因的选择,然后方可实施。
方案
以下方案描述了一种经过验证的mHypoE-42小鼠胚胎下丘脑细胞系的同步化方法。在将该同步化方案应用于其他培养细胞类型之前,需先对其进行独立验证和优化。工作流程概览见图1,每周取样时间安排见补充图1。本方案中使用的所有试剂、设备和仪器详见材料表。所有细胞培养操作均须在经过认证的生物安全柜中进行,并使用无菌试剂和设备。
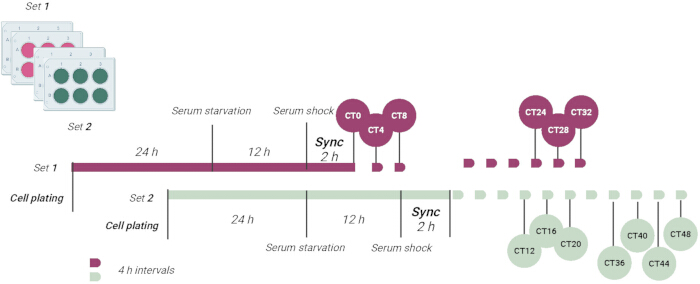
图1.错时血清冲击同步化方案的示意图。该示意图展示了通过错时血清冲击法对mHypoE-42细胞进行同步化的实验流程,共分为两组错时进行的实验。这种错时设计可在正常工作时间内完成昼夜节律样本的采集,避免了夜间取样。随后对采集的样本进行RNA提取、定量实时聚合酶链式反应(qRT-PCR)以及昼夜节律分析。图示由Biorender.com制作。请点击此处查看此图的放大版本。
1. 细胞培养
- 在添加了10% (v/v) 热灭活胎牛血清(FBS)、3.7 g/L 碳酸氢钠和1% 抗生素溶液的高糖(4500 mg/L)杜尔贝科改良伊格尔培养基(DMEM)中培养贴壁的mHypoE-42细胞。
- 将细胞置于含95%空气和5%二氧化碳(CO2)的湿润化培养箱中,于37°C条件下使用T75培养瓶进行培养,终体积为10 mL。
注意:实验开始前需对每一批新FBS进行测试,因为不同批次的血清可能存在差异。 - 当细胞融合度达到约80%–90%时进行传代。用无菌的1×磷酸盐缓冲液(PBS;pH 7.4)洗涤细胞,加入3 mL 0.5%胰蛋白酶溶液,孵育3–5分钟以使细胞脱落。
- 加入至少两倍于胰蛋白酶体积的含10% (v/v) FBS的完全培养基以中和胰蛋白酶活性。
- 用新鲜生长培养基按最高1:2的比例稀释细胞。
注意:避免使用过度传代的细胞(例如,mHypoE-42细胞传代次数超过40代)。使用前将所有溶液预热。定期检测细胞培养物中的支原体污染。 - 按每孔2.0 × 10⁵个细胞的密度接种细胞后24小时,开始进行同步化检测,具体操作如步骤2所述。传代前,常规细胞培养应维持在约80%–90%的融合度。
2. mHypoE-42 细胞系的同步化
- 细胞准备
- 消化后,将细胞在 700 × g 条件下离心 5 分钟。
- 弃去上清液,并将细胞沉淀重悬于 10 mL 新鲜培养基中。
- 按 1:1 比例将细胞悬液与台盼蓝染液混合(总体积 20 μL),使用血细胞计数板测定细胞浓度。
注意:含台盼蓝的溶液应根据机构的化学废弃物处理指南进行处置。切勿将未使用的染液倒入水槽中。
- 细胞接种与交错实验设计
- 在 6 孔板或 35 mm 培养皿中每孔接种 2.0 × 10⁵ 个细胞。将培养物在 37°C 下孵育 24 小时。
注意:在细胞接种后 24 小时开始血清同步化。因此,同步化前无需达到预设的细胞汇合度。相反,应在显微镜下检查培养物,确认细胞已完全贴壁并呈现正常形态后,再开始同步化操作。 - 将培养板随机分为两组实验样本。第一组用于生成昼夜节律时间点(CT)CT0、CT4、CT8、CT24、CT28 和 CT32。第二组用于生成 CT12、CT16、CT20、CT36、CT40、CT44 和 CT48(图 1;补充图 1)。
- 根据需要增加孔数或培养皿数量以包含技术重复。
注意:为减少变异性,所有培养板应使用同一细胞悬液制备,保持相同的接种密度和培养条件,并使用相同的试剂和实验设置进行同步化。根据其他细胞类型的需求调整培养容器规格和接种密度。使用 6 孔板时,可将同时采集的时间点合并,以优化板的使用效率。
- 在 6 孔板或 35 mm 培养皿中每孔接种 2.0 × 10⁵ 个细胞。将培养物在 37°C 下孵育 24 小时。
- 同步化
- 24 小时后,吸除第一组培养板中的培养基,并加入 1 mL 无血清 DMEM。孵育 12 小时以诱导血清饥饿。
- 在使用前立即用高糖 DMEM 配制 50%(v/v)马血清溶液。
- 吸除第一组的饥饿培养基,并用 1 mL 新鲜配制的 50% 马血清溶液处理细胞 2 小时。
- 同时吸除第二组培养板中的培养基,并更换为 1 mL 无血清 DMEM。孵育 12 小时。
- 2 小时血清刺激后,吸除培养基,并加入 1 mL 含 10%(v/v)热灭活 FBS 的高糖 DMEM。将此时间点定义为 CT0。
- 样品采集
- 将培养板置于冰上。吸除培养基,用 1 mL 冷的无菌 1× PBS 洗涤细胞两次,弃去洗涤液,然后使用最多 1 mL 裂解试剂机械裂解细胞。
警告:裂解试剂含有危险化学品。所有操作应在经认证的化学通风橱中进行,并佩戴适当的个人防护装备。废弃物应根据机构的化学品安全指南进行处置。 - 将每份裂解液转移至无菌管中,并将样品在 −80°C 下保存,直至进行 RNA 提取。
- 重复步骤 2.4.1 和 2.4.2,以在 CT4 和 CT8 时间点采集样品。
- 在 CT8 时,对第二组实验样本重复步骤 2.3.2,以同步化另一组细胞。
- 血清刺激 2 小时后,通过更换为 1 mL 含 10%(v/v)热灭活 FBS 的高糖 DMEM 来终止第二组实验样本的同步化。
- 交替从两组实验样本中采集样品,以获得 CT12、CT24、CT16、CT28、CT20 和 CT32。次日重复采样程序,以获得 CT36、CT40、CT44 和 CT48。
注意:血清饥饿和同步化是在细胞接种后按照实验时间线启动的,而非基于预设的细胞汇合度。在开始同步化前,应确认细胞已完全贴壁并呈现正常形态。尽管连续的 CT 时间点间隔为 4 小时,但采样并非每 4 小时进行一次。完整的每周采样时间表请参见 补充图 1。
- 将培养板置于冰上。吸除培养基,用 1 mL 冷的无菌 1× PBS 洗涤细胞两次,弃去洗涤液,然后使用最多 1 mL 裂解试剂机械裂解细胞。
3. 样品处理:RNA 提取
注意:实验方案可能因实验条件和应用而异。以下流程描述了一种有效的RNA提取、互补DNA(cDNA)合成以及定量实时聚合酶链式反应(qRT-PCR)的操作示例。采用基于苯酚的裂解与相位分离联合方法提取总RNA,随后使用二氧化硅离心柱进行纯化。
- 样品制备与相分离
- 解冻样品,重新混匀裂解液,并在室温下孵育5分钟。
- 每1 mL裂解试剂中加入200 μL氯仿。
警告:氯仿具有挥发性和毒性。所有涉及氯仿的操作均应在经认证的化学通风橱中进行,并佩戴适当的个人防护装备。 - 剧烈振荡离心管15秒,在室温下孵育3分钟。
- 在4°C条件下以12,000 × g离心15分钟。使样品分为三层:下层为含蛋白质的苯酚-氯仿相,中间白色层为含DNA的界面相,上层水相富含RNA。
- 小心将水相转移至新的无菌离心管中,避免扰动中间相。如果计划后续进行蛋白质或DNA的分离,请将有机相在4°C保存。
注意:若需从有机相中回收这些生物分子,请根据相应实验方案进行蛋白质或DNA的分离。
- RNA纯化
- 向水相中加入等体积的70%乙醇(用无RNase水配制),涡旋混匀两次,每次15秒,以促进RNA结合。
- 将样品加载至硅胶离心柱,并按照柱纯化流程进行RNA纯化。
- 在室温下用DNase消化污染的基因组DNA,孵育15分钟。
- 使用提供的洗涤缓冲液洗涤离心柱。
- 用100 μL洗涤缓冲液再进行一次洗涤,并在11,000 × g离心2分钟,以干燥硅胶膜。
- 将离心柱转移至干净的微量离心管中。通过将40–60 μL无RNase水直接加至硅胶膜中心,然后在11,000 × g离心1分钟,洗脱RNA。
注意:根据所需的RNA得率和浓度选择洗脱体积。通常,60 μL的洗脱体积可更完全地从硅胶膜上回收RNA,但所得RNA溶液较稀;而40 μL的洗脱体积可获得更高浓度的RNA,但总回收量可能降低。应根据制造商的建议和下游应用的需求优化洗脱体积。
- RNA质量评估
- 将RNA样品置于冰上,取每个样品5 μL转移至新的无菌微量离心管中用于质量评估。
- 使用1.5%琼脂糖凝胶电泳或毛细管电泳评估RNA完整性。确认存在清晰的28S和18S核糖体RNA条带。
- 通过分光光度计测定吸光度,确定RNA浓度和纯度。
注意:含苯酚的废液应按照机构的化学废弃物处理指南进行处置,切勿将危险化学废弃物倒入水槽。对于培养细胞样品,RNA浓度通常在200至1000 ng/μL之间,适用于cDNA合成和qRT-PCR。可接受的RNA样品其A260/230比值应在2.0至2.2之间,A260/280比值约为2.0(参见补充表1)。
- RNA储存
- 将纯化的RNA样品在−80°C保存,直至进行cDNA合成。
4. 样本处理:cDNA 合成
注意:使用第一链 cDNA 合成试剂盒,从 1 μg 总 RNA 中合成 cDNA。根据制造商说明书调整反应体积和孵育条件。
- 逆转录
- 将RNA样品置于冰上解冻。配制20 μL逆转录反应体系,包含1 μg总RNA、10 μL 2×主混合液(含有核糖核酸酶抑制剂、随机六聚体、寡聚脱氧胸苷酸引物、镁离子[Mg2+]和脱氧核苷三磷酸)、2 μL酶混合液(含有逆转录酶),并用焦碳酸二乙酯处理水补足至终体积20 μL。
- 将反应体系在热循环仪中于25°C孵育10分钟以退火引物,随后在50°C孵育30分钟以合成cDNA。再于85°C孵育5分钟以灭活逆转录酶。
- 加入1 μL RNase H,并在37°C孵育反应体系20分钟,以降解RNA–DNA杂合链中的RNA链。
- 根据检测优化需求,用无菌水将cDNA稀释至1:20,稀释后的cDNA储存于−20°C,直至进行定量实时聚合酶链式反应(qRT-PCR)分析。
5. 样品处理:实时定量聚合酶链式反应(qRT-PCR)
注意:使用 qRT-PCR 检测昼夜节律钟基因的表达。验证过的引物序列、退火温度和引物浓度详见补充表 2。
- 实验优化
- 在分析实验样本之前,使用混合的cDNA样本和标准曲线来验证并优化引物浓度、退火温度和cDNA上样量。按照先前所述方法进行实验优化和验证15,16。
- 反应体系配制
- 在96孔PCR板中,通过混合5 μL的2×主混合液、正向和反向引物各0.4 μL、0.2 μL焦碳酸二乙酯处理水以及4 μL cDNA模板,配制每个10 μL的qRT-PCR反应体系。
- 使用光学透明封膜或封板膜密封反应板。在4°C下以700 × g离心最多5分钟,以去除气泡并将反应液收集至各孔底部。
- 分析所有cDNA样本,以确定目标基因Bmal1和Per2的表达水平。
- 使用相同的cDNA稀释液分析所选的参考基因(B2m),以对各样本间的基因表达进行标准化。
- 热循环程序
- 采用以下循环条件进行qRT-PCR:95°C预变性并激活热启动DNA聚合酶2分钟,随后进行39个循环(95°C变性5秒,60°C退火延伸30秒)。
- 通过将反应体系加热至95°C保持5秒,随后以0.5°C递增升温至95°C,并在每个温度点保持5秒,进行熔解曲线分析。
注意:根据主混合液的推荐要求,必要时调整保持时间及熔解曲线设置。
- 参考基因验证
注意:在血清同步化实验中,应评估候选参考基因,因为血清处理可能改变管家基因的表达水平17。可采用BestKeeper18、geNorm19、NormFinder20或比较ΔCt法21等方法评估表达稳定性,并选择最稳定的基因用于标准化。本研究中,使用RefFinder软件22对β-actin (Actb)和β-2-microglobulin (B2m)进行了评估,该软件整合了多种参考基因验证算法。B2m在昼夜节律时间过程中表现出最高的表达稳定性,因此被选为标准化基因。 - 扩增产物验证
- 通过2%琼脂糖凝胶电泳分析PCR产物,以验证扩增特异性。
注意:通过测试多个退火温度(例如58°C、60°C和62°C)确定最佳退火温度。选择能够产生最低定量循环(Cq)值、同时保持单一熔解曲线峰且无引物二聚体形成迹象的温度。
注意:仅接受扩增效率在90%至110%之间、决定系数(R2)≥0.99的实验。确认技术重复之间的熔解温度差异不超过0.5°C。仅接受Cq值差异≤0.5的技术重复用于分析,并使用这些值计算平均表达水平。所有反应均需设置技术重复(例如三复孔),并同时包含无模板对照(NTC)和无逆转录对照(NRT)。
- 通过2%琼脂糖凝胶电泳分析PCR产物,以验证扩增特异性。
6. 数据分析
- 基因表达分析
- 在进行下游分析之前,对每个样本的技术重复进行取平均值处理。
- 使用以下公式计算每个样本和时间点的 ΔCq 值:
ΔCq = Cq目标基因 - Cq看家基因 - 使用以下公式计算每个样本和时间点的 ΔΔCq 值:
ΔΔCq = ΔCq样本 - ΔCq对照
注:在计算 ΔΔCq 时,ΔCq对照 定义为所有 CT 条件下所有对照样本 ΔCq 值的平均值。 - 使用 CircaCompare23 评估昼夜节律参数,包括节律中线估计统计量(MESOR)、振幅、峰值和相位。可通过在线应用程序或 R 软件包实现进行分析。
- 在线 CircaCompare 分析
注:在线版本仅在数据集满足节律性统计标准时报告完整的昼夜节律参数估计值。当节律性较弱或无统计学显著性时,应使用 R 版本以获得所有数据集的参数估计值。- 准备一个逗号分隔值(.csv)文件。
- 在第 1 列输入时间变量(数值型;小时)。
- 在第 2 列输入分组变量(仅限两个实验组)。
- 在第 3 列输入结果变量(数值型;ΔΔCq)。
- 将 .csv 文件上传至在线 CircaCompare 应用程序。
- 将时间、分组和结果变量分别分配到对应的列。
- 选择“运行”以执行分析。
- 准备一个逗号分隔值(.csv)文件。
- 在 R 中进行 CircaCompare 分析
- 使用 R 版本 4.5.1 和 CircaCompare 软件包版本 0.2.024 进行分析。
- 安装所需的 R 软件包。
- 安装 devtools 软件包(版本 2.5.2)。
- 安装 circacompare 软件包(版本 0.2.0)。
- 安装 ggplot2 软件包(版本 4.0.3)。
- 安装 svglite 软件包(版本 2.2.2)。
- 上传输入的 .csv 文件。
- 设置 alpha_threshold = 1 后执行 CircaCompare 分析。
注:将 alpha_threshold 设为 1 时,将报告所有拟合振荡的昼夜节律参数估计值,无论其统计学显著性如何。但仅当振荡的 p 值 < 0.05 时,才可解释为具有节律性且具有统计学显著性。 - 在执行脚本前自定义 补充文件 1。
- 将“XXX.csv”替换为输入数据文件名。
- 将“YYY.csv”替换为期望的结果文件名。
- 将“ZZZ.svg”替换为期望的绘图文件名。
- 根据数据集调整 y 轴范围(ylim)及其他绘图参数。
- 参见 补充表 3 获取示例输入文件。
结果
在对照条件下,若分析的钟基因表现出统计学上显著的昼夜节律性(p < 0.05),则表明同步成功。本研究共进行了三次独立的生物学实验,以0.1%二甲基亚砜作为阴性对照。Bmal1 和 Per2 被选为典型的昼夜节律标志物,因为它们是分子昼夜节律钟的核心组分,并表现出明确的反相表达模式。同步后获得的代表性节律性表达谱如图2所示。相应的昼夜节律参数,包括节律性、中值水平(MESOR)、振幅和峰值时间,总结于表1中,而Bmal1与Per2之间的成对比较结果则列于表2中。
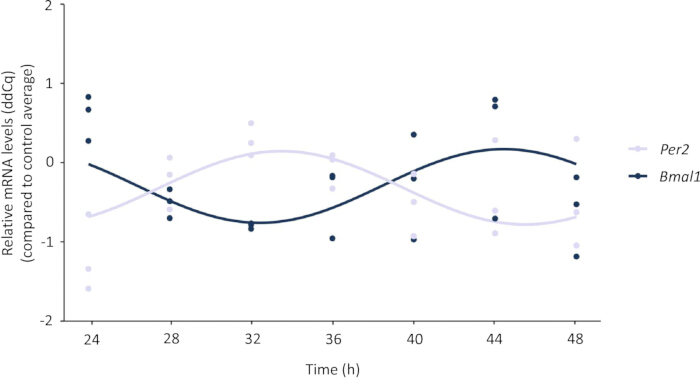
图2。血清冲击同步后Bmal1和Per2的昼夜节律振荡。 通过定量实时聚合酶链式反应(qRT-PCR)检测同步化mHypoE-42细胞中Bmal1(深蓝色)和Per2(浅蓝色)在同步化后24至48小时内的代表性昼夜节律表达谱。曲线表示使用CircaCompare生成的拟合昼夜节律模型。请点击此处查看该图的放大版本。
| 基因 | 节律性 (p值) | MESOR | 振幅 | 峰值时间 (h) |
| Bmal1 | 0.0205 | −0.2948 | 0.4648 | 20.4239 |
| Per2 | 0.0071 | −0.318 | 0.4629 | 9.4883 |
| Bmal1 + Compound A | 0.1068 | — | — | — |
表1:估计的昼夜节律参数 Bmal1 和 Per2 在基础条件下以及对于 Bmal1 经化合物A处理后。 使用 CircaCompare 评估昼夜节律性。该表格报告了 p- 显著性值(用于节律性判断)、节律中线估计统计量(MESOR)、振幅以及每种条件下的峰值时间。昼夜节律参数未对 Bmal1 给予化合物A处理后,由于节律性无统计学显著性(p = 0.1068).
| 中位数差异估计值 (p-值) | 振幅差异估计值 (p-值) | 相位差异估计值 (p-值) | 共同周期 (h) |
| −0.0232 (p = 0.8904) | −0.0019 (p = 0.9936) | −10.9356 (p = 2.3155 × 10⁻6) | 24 |
表2:Bmal1 与 Per2 之间昼夜节律参数的成对比较。 使用 CircaCompare 对 Bmal1 和 Per2 拟合的昼夜节律表达谱之间的节律中线估计统计量(MESOR)、振幅和相位进行成对比较。数值以参数差异及其对应的 p 值表示。在模型拟合过程中,共同周期固定为 24 h。
在基础条件下,Bmal1 和 Per2 均表现出具有统计学意义的节律性(Bmal1:p = 0.0205;Per2:p = 0.0071)。CircaCompare 分析进一步表明,这两个基因的振荡相位相反,相位差为 −10.9356 小时(p = 2.3155 × 10⁻6),这与它们在分子生物钟网络中预期的反相位关系一致。支持下游基因表达分析的 RNA 质量指标见补充表 1。
该方案也可用于比较不同实验条件下的昼夜节律,包括健康与疾病模型之间,或对照组与处理组之间的比较。作为一个代表性示例,一种新出现的环境污染物及内分泌干扰物(此前已在人下丘脑中被检测到)在此被称为化合物A。代表性结果如图3所示,相应的节律性分析总结于Table 1中。
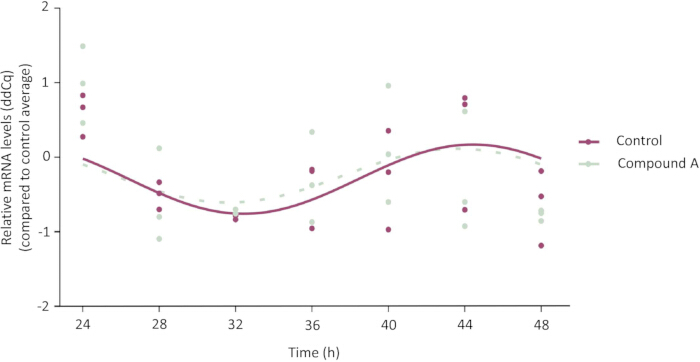
图3。化合物A对Bmal1表达昼夜节律性的影响。 经化合物A处理后,同步化的mHypoE-42细胞中代表性Bmal1表达谱,通过定量实时聚合酶链式反应(qRT-PCR)测定。曲线表示使用CircaCompare软件拟合生成的昼夜节律模型。请点击此处查看该图的放大版本。
暴露于化合物A后,Bmal1不再表现出具有统计学意义的节律性(p = 0.1068)。在此条件下,拟合的昼夜节律模型未满足节律性的统计学标准。因此,未报告中位水平(MESOR)、振幅和峰值时间等昼夜节律参数,因为在节律性无统计学意义时,这些参数被认为不具备生物学可解释性。本示例说明了该工作流程如何区分有节律与无节律的表达谱,并可用于评估不同实验条件下昼夜节律基因表达的潜在改变。为尽量减少与分阶段采样策略相关的潜在技术变异,所有培养板均来自同一细胞悬液,在相同的培养条件下维持,并采用相同的实验流程进行同步化处理,仅在同步化时间上有所不同。
补充图1. 分步同步化实验方案的周时间表。 代表性周时间线,展示了两组分步进行的实验组(第1组,紫色;第2组,绿色)中细胞接种、血清饥饿、血清冲击同步化、同步化阻滞以及昼夜节律样本采集的时间安排。该分步设计可在常规工作时间内完成昼夜节律时间点(CT)CT0–CT48的样本采集,避免了夜间取样。请点击此处下载该文件。
补充表1. 昼夜节律时间序列实验中所有生物样本的RNA质量指标。 使用吸光度比值 A260/A280 和 A260/A230 评估RNA纯度,并在合成互补DNA(cDNA)前通过分光光度法测定RNA浓度。样本根据采集时间、处理组别和生物学重复进行标识。这些测量结果用于在进行下游定量实时聚合酶链式反应(qRT-PCR)分析前验证RNA质量。请点击此处下载该文件。
补充表 2. 定量实时聚合酶链式反应(qRT-PCR)所用引物序列及扩增条件。 正向和反向寡核苷酸引物序列以 5′-3′ 方向列出,并附有相应的 NCBI 登录号、退火温度以及各目的基因扩增所用的引物浓度。请点击此处下载该文件。
补充表 3. 使用 CircaCompare 进行昼夜节律分析的示例输入数据集。 用于 CircaCompare 分析的逗号分隔值(CSV)格式示例数据集。该数据集包含三个必需变量:时间(h)、组别(Group)和结果(ΔΔCq),符合数据分析方案中描述的格式,并作为昼夜节律参数估计的示例输入文件。请点击此处下载该文件。
补充文件 1. 使用 CircaCompare 进行昼夜节律分析的示例 R 脚本。 该示例 R 脚本用于在 R(版本 4.5.1)中使用 CircaCompare 软件包(版本 0.2.0)分析昼夜节律基因表达数据。脚本导入输入数据集,以 24 小时为周期进行昼夜节律参数估计,导出统计摘要结果,并生成适合发表的图表。使用前,请将占位符文件名(XXX.csv、YYY.csv 和 ZZZ.svg)替换为所需的输入和输出文件名,并根据数据集情况适当调整绘图参数(例如 ylim)。请点击此处下载该文件。
讨论
昼夜节律是由保守的分子生物钟机制调控的内源性周期,周期约为24小时,可调节多种生理、代谢和细胞过程1,2。体外同步化模型为研究这些机制提供了可控的实验环境,已成为研究正常和病理条件下昼夜节律调控的有力工具,包括暴露于环境污染物及其他实验性干扰因素的情况25。本文所述方案介绍了一种通过血清冲击法同步培养细胞、采用交错取样策略收集时间序列样本,并通过qRT-PCR定量分析昼夜节律基因表达的实用工作流程。该工作流程特别适用于需要进行时间依赖性基因表达谱分析,同时尽量减少夜间连续取样带来的操作困难的研究。该方案的成功与可重复性取决于多个关键步骤。细胞汇合度、血清饥饿处理、血清冲击持续时间及同步化条件的适当控制至关重要,因为同步化不足可能导致节律性信号微弱甚至无法检测14。保持一致的细胞接种密度、使用同一细胞悬液制备所有实验培养板,以及在各组交错实验组中维持相同的培养条件,可进一步降低技术性变异。RNA质量、cDNA合成、引物验证以及稳定参考基因的选择,也是获得可靠qRT-PCR结果的重要因素。与所有昼夜节律同步化方案一样,在将该工作流程应用于不同细胞类型或实验条件时,可能需要对这些参数进行优化。
尽管血清冲击是昼夜节律生物学中最广泛使用的同步化方法之一4,26,但它并非在所有实验应用中都具有普适的最优性。其他同步化方法,包括地塞米松处理、佛司可林刺激、温度同步以及基于报告基因的系统,可能根据具体的生物模型和研究目标更为合适14。这些方法应被视为互补而非相互竞争的策略,因为每种方法都有其独特的优势和局限性。血清冲击在实验操作的简便性、可及性和可重复性之间提供了实用的平衡,且无需特殊仪器或基因编码的报告系统。然而,研究者应仔细评估同步化刺激对生物系统的潜在影响,并选择最符合其科学问题的方法。已有文献报道省略血清饥饿步骤的血清冲击方案,在特定实验条件下可能也是合适的替代方案27。本方案具有较高的灵活性,可进行多种修改并采用相应的故障排除策略。分段采样设计依赖于在不同时间点同步化的平行培养板,以生成互补的时相(CT),同时避免夜间采样。为最大限度减少板间差异,应使用同一细胞悬液制备所有培养板,以相同的密度接种,维持一致的培养条件,并采用相同的实验流程进行同步化,仅在同步化时间上有所差异。尽管该方法无法完全消除批次相关变异,但可在显著降低夜间采样带来的操作复杂性的同时,最小化技术性变异,并保留检测具有生物学意义的昼夜节律的能力。虽然分段采样策略的设计旨在通过在所有实验组中保持一致的培养条件来最小化技术性变异,但在本研究中并未将其与传统的连续采样设计直接比较。未来的研究可在更多实验模型中进一步评估这些方法的等效性。在将本实验流程应用于新的细胞类型或实验条件时,应优化同步化效率,并在方案验证过程中评估潜在的批次效应。根据实验目标,可通过调整同步化起始时间,或维持单个同步化培养体系并缩短采样窗口,来修改同步化时间安排。故障排除策略包括优化血清冲击持续时间、在同步化前验证细胞活力和汇合度、在下游分析前确认RNA质量,以及调整采样间隔以提高昼夜节律的检测效果。本方案已在mHypoE-42小鼠胚胎下丘脑细胞系中得到验证,因此在应用于其他细胞模型前,需独立进行优化和验证。尽管本研究未对此进行评估,但本方案基于本实验室先前在其他细胞系(如N2a细胞和人成纤维细胞)中的优化经验开发,提示其可能适用于多种细胞模型。同样,分段采样策略通过在常规工作时间内完成完整的昼夜节律采样,显著提高了实验的可行性;但使用者应在所有培养板中保持一致的实验条件,以最小化潜在的批次效应。在适当优化后,该实验流程为研究昼夜节律基因表达以及评估影响分子钟功能的实验干预措施,提供了一种易于实施且可重复的技术手段。
尽管该方法具有实际优势,但也存在若干局限性。交错采样策略提供的是离散时间点的测量结果,而非连续监测,因此与基于荧光或生物发光的报告基因检测相比,时间分辨率较低7。因此,周期估计的准确性以及对微小相位偏移或低振幅振荡的检测能力可能下降。此外,随着处理因素或实验条件数量的增加,基于多孔板的采样流程会变得愈发耗费人力,因为每种条件都需要额外的培养板。在现有方法中,该流程为报告基因系统(包括由E-box驱动的荧光素酶检测,例如 Bmal1-Luc 和 Per2-Luc)提供了一种实用的替代方案,后者可在活细胞中实时监测昼夜节律活动28,29。尽管基于荧光和生物发光的报告系统具有高时间分辨率,且特别适用于候选昼夜节律调节因子的高通量筛选,但其需要稳定的遗传修饰、专用检测设备以及严格控制的环境条件30,而这些条件并非所有实验室都具备。此外,报告系统通常局限于预定义的报告基因构建体,可能需要对组成型信号或细胞数量进行归一化处理,从而限制了对多个基因的同时评估或下游分子分析。相比之下,本文所述的工作流程可兼容多种下游应用,包括定量基因表达分析和基于蛋白质的检测,因此为研究分子水平昼夜节律调控的实验室提供了一种易于实施且用途广泛的策略。
在样本采集和后续分析完成后,适当的统计学评估对于确定观察到的振荡是否具有统计学显著性和生物学意义至关重要。本方案中,CircaCompare 提供了一个稳健的框架,通过基于余弦节律回归模型来估计并进行统计学比较节律参数(如中值水平(MESOR)、振幅和相位)23。与仅评估节律性的方法不同,CircaCompare 能够在实验组之间直接进行成对比较昼夜节律参数,有助于评估处理效应、基因扰动或与疾病相关的昼夜行为改变。该分析流程与同步化方案相辅相成,为解释昼夜节律基因表达变化提供了标准化的定量指标。如代表性结果所示,血清冲击后 Bmal1 和 Per2 信使 RNA(mRNA)呈现出预期的振荡表达模式,表明同步化成功(图 2)。相比之下,暴露于化合物 A 后,Bmal1 的节律性在统计学上显著消失(图 3),这说明该分析流程可用于评估影响昼夜节律基因表达的实验干预措施。在解读昼夜节律基因表达数据时,一个重要的考虑因素是不同独立实验之间的生物学变异性。本研究中的代表性结果来自不同日期和不同细胞传代次数的独立生物学重复实验。因此,一定程度的变异性是预期的,反映的是生物学差异而非技术性变异。基于此原因,同步化实验应包含独立的生物学重复,并在所研究细胞模型预期的生物学变异背景下进行解读。尽管存在这种变异性,具有统计学显著性的节律性以及 Bmal1 与 Per2 之间预期的反相位关系仍被持续观察到。此外,不同细胞模型之间的昼夜节律特征(包括振荡振幅、相位、周期长度和阻尼速率)存在差异。因此,应根据所研究的特定细胞类型来评估同步化效果,而不应通过与无关模型的直接比较来判断。
该工作流程对于研究昼夜节律在疾病机制及治疗反应中的作用尤为重要。昼夜节律调控的紊乱已被认为与多种病理状态相关,包括癌症、代谢性疾病和神经退行性疾病。31,32评估节律性基因表达或蛋白质丰度的能力 体外 为研究这些过程以及评估药物干预对分子生物钟的影响提供了一个实用框架,而分子生物钟正日益被视为潜在的治疗靶点14,33例如,在经过适当的优化和验证后,本方案可用于研究候选调节剂如何影响疾病相关细胞模型中的昼夜节律基因表达。需要强调的是,本研究的目的并非提倡血清冲击法取代其他同步化方法,也不暗示其优于其他替代方案。相反,本方案提供了一个详细且可重复的操作流程,用于实施一种广泛使用的同步化策略,通过交错取样设计在常规工作时间内采集昼夜节律样本,并利用易于获取的下游方法分析节律性基因表达。我们预期该框架将特别适用于正在建立昼夜节律实验的研究团队,或希望将时间维度分析整合到现有细胞模型中的实验室,为其提供一种实用、可重复且易于实施的工作流程。
披露
作者声明无利益冲突。
致谢
本工作由欧盟(EU)复苏与韧性基金以及葡萄牙国家基金通过FCT(科学技术基金会)资助,项目编号为LA/P/0058/2020(DOI: 10.54499/LA/P/0058/2020)、UID/04539/2025、UID/PRR/04539/2025(DOI: 10.54499/UID/PRR/04539/2025)和UID/PRR2/04539/2025(DOI: 10.54499/UID/PRR2/04539/2025);由欧洲区域发展基金(ERDF)通过Centro 2030区域运行计划项目CENTRO2030-FEDER-02360200资助;以及由葡萄牙国家基金通过FCT资助的以下项目:2023.17896.ICDT(DOI: 10.54499/2023.17896.ICDT)、2023.12355.PEX(DOI: 10.54499/2023.12355.PEX)、2021.02220.CEECIND/CP1656/CT0008(DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008)、2020.04850.BD(DOI: 10.54499/2020.04850.BD)和2021.05334.BD(DOI: 10.54499/2021.05334.BD)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 6孔细胞培养板 | Nest Biotechnology | 15140122 | 细胞培养板 |
| 琼脂糖 | NZYtech | MB02702 | RNA质量评估 |
| 抗生素混合液(青霉素/链霉素) | Gibco, Thermo Fisher Scientific | D5648 | 细胞培养添加剂 |
| cDNA合成试剂盒(第一链) | NZYtech | MB12502 | 逆转录 |
| 氯仿 | Sigma-Aldrich | A5256701 | 相分离试剂 |
| DMEM高糖培养基(4500 mg/L葡萄糖,L-谷氨酰胺) | Sigma-Aldrich | 26050088 | 细胞培养基 |
| Eppendorf微量离心管 | Eppendorf | 30120086 | 样品储存 |
| 乙醇(96%) | Fisher Bioreagents | 15552393 | RNA纯化 |
| 胎牛血清,热灭活 | Gibco, Thermo Fisher Scientific | J62692.K7 | 细胞培养添加剂 |
| 硬壳96孔PCR板 | Bio-Rad Laboratories | HSP9601 | qRT-PCR板 |
| 马血清,热灭活 | Gibco, Thermo Fisher Scientific | 15400054 | 血清冲击同步化 |
| mHypoE-42细胞系 (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | 小鼠胚胎下丘脑细胞系 |
| 寡核苷酸引物 | NZYtech | MB12501 | qRT-PCR引物 |
| 磷酸盐缓冲液 (PBS) | Thermo Fisher Scientific | MB18502 | 细胞洗涤 |
| qPCR Green Master Mix (2×) | NZYtech | MB22403 | qRT-PCR试剂 |
| 实时PCR检测系统 | Bio-Rad Laboratories | EP0030108116 | qRT-PCR仪器 |
| RNA提取试剂盒 | NZYtech | 288306 | 硅胶柱离心纯化 |
| RNA裂解试剂 | NZYtech | MB18502 | 酚类RNA提取试剂 |
| 碳酸氢钠 | Sigma-Aldrich | MB22401 | 细胞培养基添加剂 |
| 无菌35 mm培养皿 | Thermo Fisher Scientific | 121V | 细胞培养皿 |
| T100梯度PCR仪 | Bio-Rad Laboratories | 1861096 | cDNA合成 |
| T75组织培养瓶 | Corning | 430641U | 细胞培养容器 |
| 台盼蓝溶液 (0.4%) | Gibco, Thermo Fisher Scientific | 15250061 | 细胞计数 |
| 胰蛋白酶-EDTA (0.5%) | Gibco, Thermo Fisher Scientific | 15400054 | 细胞解离 |
参考文献
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
重印与许可
标签
本文已发表
视频即将推出