我们描述了应用于两种报告策略的共聚焦成像与追踪流程:用于解析单个细胞行为和命运的嵌合类器官,以及用于监测人和小鼠肠道类器官中细胞类型转变的命运报告类器官。
方法文章
活细胞成像与单细胞追踪用于监测人和小鼠肠道类器官中的克隆动态与命运转变
* These authors contributed equally
本文内容
摘要
摘要
肠道上皮通过干细胞分裂、细胞分化和迁移实现快速自我更新。要理解单个细胞如何决定其特定命运,以及克隆动态如何在该组织中产生,就需要能够在实时条件下以单细胞分辨率捕捉细胞行为的研究方法。肠道类器官能够重现上皮自组织和细胞类型多样性的关键特征,因此成为在可控环境中研究这些过程的有力体系。本文介绍了一种针对人和小鼠肠道类器官的长期共聚焦活细胞成像(长达72小时)及单细胞追踪的实验方案,该方案基于两种互补的报告系统策略。首先,我们描述了通过整合不同标记的细胞群体来构建嵌合类器官的方法,从而在密集的上皮层中实现对膜定位和细胞骨架报告分子的单细胞分辨率解析,而这些在常规情况下难以分配到单个细胞。其次,我们采用细胞类型特异性的命运报告系统(MUC2标记杯状细胞,DEFA5标记潘氏细胞),以实时监测分泌型细胞类型的转变过程。本方案涵盖了类器官培养、嵌合类器官构建、减少光毒性的样品制备策略、持续数天的图像采集,以及利用OrganoidTracker软件进行半自动化的单细胞追踪,后者可重建细胞的运动轨迹和谱系关系。尽管本方案以肠道类器官为例展示,但其框架可轻松拓展至其他上皮类器官系统,包括胃、胰腺和结肠模型,从而广泛适用于上皮生物学、稳态维持及疾病研究。
引言
肠道上皮是体内自我更新最快的组织之一,大多数细胞在三到五天内即被替换。这种持续的更新由位于肠隐窝基底部的富含亮氨酸重复序列的G蛋白偶联受体5(Lgr5)阳性干细胞维持,这些干细胞产生过渡扩增的祖细胞,后者在向绒毛顶端迁移的过程中分化为肠道内衬的各种特化细胞类型1。主要的分化谱系包括吸收性肠上皮细胞、分泌黏液的杯状细胞、产生激素的肠内分泌细胞以及具有抗菌功能的潘氏细胞2。单个细胞如何决定其特定命运、群体细胞行为如何从单个细胞动态中涌现,以及组织层面的协调如何实现,仍是肠道生物学中的基本科学问题。回答这些问题需要能够在单细胞分辨率下、实时地并在与细胞分化和迁移相关的时间尺度上捕捉细胞行为的实验方法3。
肠道类器官是由单个干细胞或组织碎片培养而成的三维(3D)自组织结构,能够重现上皮结构、自组织特性以及细胞类型多样性等关键特征4,5,6。自其发展以来,类器官已成为研究肠道生物学、疾病建模和药物反应不可或缺的工具。小鼠和人类的肠道类器官均可在体外长期培养,可通过基于成簇规律间隔短回文重复序列(CRISPR)的方法进行遗传修饰,并可在重新嵌入基底膜提取物前,通过混合不同基因型或报告基因背景的解离单细胞,将其组合成嵌合结构7,8,9。嵌合类器官在一个单一结构中整合了具有不同遗传背景或荧光标记的细胞,使这些细胞群体处于相同的微环境信号和力学环境中,从而可在内置内部对照的条件下进行比较。这种遗传可操作性使其特别适用于需要对特定细胞群体进行精确标记的活体成像研究6,10,11,12。那些随机标记细胞的报告系统,例如细胞类型特异的命运标记物,可产生孤立的荧光细胞,进而可通过单细胞追踪方法对其进行单独追踪和分析。然而,当在整个上皮层中对膜定位蛋白和细胞骨架蛋白(如细胞连接或皮层肌球蛋白II)进行均匀标记时,会持续出现技术挑战。由于邻近细胞在共聚焦显微镜的分辨率下共享边界,其信号无法被分配给单个细胞。嵌合类器官可克服这一限制:当表达荧光报告基因的细胞被未标记的邻近细胞包围时,其膜和细胞骨架信号可明确归属于该单个细胞,从而揭示该细胞在迁移、分裂或脱落过程中如何重塑其细胞骨架9,13。调节标记比例可反转观察视角,从而转而捕捉未标记细胞周围微环境的响应情况。组蛋白H2B核报告基因(如H2B-mCherry或H2B-iRFP)可作为工具用于识别嵌合模式,并定位可用于分析的信息性细胞构型。除了实现单细胞分辨率外,嵌合类器官还可实现不同基因型之间的直接适合度比较:由于两个细胞群体共享相同的微环境,其细胞寿命或脱落速率的差异可提供一种内部对照的竞争力适合度读数9,14,15。
然而,类器官的活细胞成像面临特定的技术挑战。其三维结构需要共聚焦显微镜或光片显微镜进行光学切片16,17,18,19。捕捉分化和迁移等缓慢过程需要持续24小时或更长时间的成像,同时必须仔细优化激光功率、曝光时间和成像间隔,以最大限度减少光毒性16,18。包埋基质和培养基必须在维持类器官健康的同时,与显微镜光学系统兼容。此外,从密集的三维延时成像数据集中提取定量的单细胞信息,需要专用的计算工具,以在数百个时间点上实现细胞的检测与追踪。除共聚焦显微镜和光片显微镜外,多光子显微镜和荧光寿命成像显微镜(FLIM)还提供了额外的功能,例如降低光毒性以及无需标记即可获取代谢信息20,21,但共聚焦显微镜仍是目前最易获取且用途最广泛的多色活体成像平台,适用于荧光标记的类器官成像。
已开发出多种用于类器官中细胞追踪的方法,从手动标注到半自动及完全基于深度学习的自动化流程不等22。OrganoidTracker 是一种半自动软件工具,利用神经网络在三维共聚焦图像序列中检测细胞核,并将不同时间点的检测结果进行关联,以重建细胞轨迹和谱系树3,23。该工具已在肠类器官中验证,可实现对数百个细胞持续数天的追踪,提供一个灵活的框架用于量化细胞分裂、迁移、分化和脱落事件。其对多通道成像的支持使其可直接适用于携带光谱上可区分的核报告基因的嵌合类器官,以及表达细胞类型特异性命运标记的类器官。
在本实验方案中,我们描述了一种模块化的流程,该流程将共聚焦活细胞成像与单细胞追踪技术相结合,并在人和小鼠肠道类器官中采用两种互补的报告系统。第一种策略利用嵌合的小鼠类器官,通过以特定比例混合携带不同H2B 核标记物(H2B-mCherry 和 H2B-iRFP)的两种细胞群体而生成(图1A)。其中一种细胞群体还额外携带一个共表达的目标报告分子,例如肌球蛋白II-mNeonGreen,当这些细胞被仅携带第二种核标记的邻近细胞包围时,其膜定位信号可明确归属于单个细胞。这使得研究者能够直接观察单个细胞在完整组织内迁移、分裂或脱落过程中细胞骨架的重塑动态。第二种策略在人类肠道类器官中使用细胞类型特异的命运报告系统,即利用黏蛋白2(MUC2)标记杯状细胞,防御素α5(DEFA5)标记潘氏细胞,从而实现对分泌型细胞类型转换的实时监测(图1B)。这两种系统共同展示了通过更换报告系统,即可将相同的成像与追踪流程灵活应用于多种生物学问题(图1C、D)。后续章节将详细介绍实施该流程所需的全部步骤,涵盖类器官培养、嵌合体构建、图像采集以及定量的单细胞分析。
方案
所有涉及动物的实验均按照荷兰政府中央动物实验委员会(CCD)以及荷兰皇家艺术与科学学院/Hubrecht研究所动物福利委员会(IvD)批准的机构指南进行。人源肠道类器官由乌得勒支大学医学中心(UMCU)患者经知情同意后提供的组织样本制备获得。本研究经乌得勒支大学医学中心伦理委员会(荷兰乌得勒支)批准,并依照《赫尔辛基宣言》及荷兰法律开展。
1. 类器官培养与维持
- 制备用于小鼠肠道类器官的表皮生长因子、Noggin 和 R-spondin(ENR)生长培养基表1).
- 配制扩增培养基(表2),图案化培养基(表3)和成熟培养基(表4用于人肠道类器官。
- 使用前,将一管生长因子减少型基底膜提取物(BME)置于冰上过夜解冻。
- 始终将BME置于冰上,以防止提前凝胶化。
- 在BME中使用ENR培养基培养小鼠肠道类器官,每7天通过机械解离进行传代,传代比例为1:4至1:84.
- 在基质胶中使用扩增培养基培养人肠道类器官,每7–10天传代一次5.
注意:在单细胞解离后对小鼠类器官进行扩增或复苏时,前2–3天需在添加了Wnt条件培养基(补充10 mM烟酰胺和10 µM Y-27632二盐酸盐)的ENR培养基中培养,以促进类器官的出芽生长和存活。 - 为了诱导人肠道类器官的分化,需先将类器官在模式形成培养基中连续培养14天,随后在成熟培养基中培养7–10天。6.
注意:有关类器官建立与培养的详细方案,请参阅 Sato 等人4 关于小鼠肠道类器官的部分,Sato 等人5 和 He 等人6 用于人肠道类器官。
2. 转基因肠道类器官的构建
- 传代类器官以确保电穿孔时处于活跃增殖状态:小鼠类器官在电穿孔前3天进行传代,人源类器官则在电穿孔前5至7天进行。每次电穿孔反应使用来自24孔板中4–8个孔的类器官(约含200–400 µL基底膜提取物(BME)的类器官悬液,可获得约500–1,000个类器官)。使用重组类胰蛋白酶解离试剂在37 °C条件下消化5–10分钟,将类器官解离为单细胞。
- 通过电穿孔系统,将基于转座子的表达载体(p2T-H2B-mCherry-IRES-BlastR 或 p2T-H2B-iRFP-IRES-PuroR;各5 µg)与转座酶载体(p2T-CAG-mT2TP;5 µg)共同导入已解离的细胞中,以构建核荧光报告类器官细胞系,具体操作遵循既定实验方案24。
注意:步骤2.2中指定的质粒DNA用量(每种构建体5 µg)适用于每次电穿孔反应约500–1,000个类器官。电穿孔过程中应确认电穿孔仪测得的阻抗值在25–55 Ω范围内。阻抗低于25 Ω提示细胞密度过高或缓冲液电导率异常;阻抗高于55 Ω提示细胞数量不足或细胞活力差。若阻抗超出该范围,应调整细胞浓度或更换电穿孔缓冲液。 - 电穿孔后,将细胞培养于添加10 µM Y-27632二盐酸盐的Wnt条件培养基中,持续3天,以促进细胞恢复及类器官重新形成。
- 电穿孔一周后开始对抗性筛选,针对过表达构建体使用抗生素筛选(H2B-iRFP细胞系使用2 µg/mL嘌呤霉素,H2B-mCherry细胞系使用10 µg/mL杀稻瘟菌素),以确保细胞在施加筛选压力前有足够恢复时间。
- 持续筛选两周。
- 在配备落射荧光装置的体视显微镜下,使用合适的滤光片组挑选发出荧光的类器官克隆。
- 使用重组类胰蛋白酶解离试剂将筛选出的克隆解离为单细胞,并在Wnt条件培养基中扩增培养两周,之后转换至ENR培养基。
- 通过验证荧光信号在细胞核内定位均一且在多次传代中表达稳定,确认报告细胞系的可靠性。
- 通过与未标记的亲本细胞系比较,验证引入报告基因未改变类器官的生长速率、形态特征或分化能力。
- 为实现对膜定位或细胞骨架蛋白的检测,可在同一类器官细胞系中与H2B核报告基因共表达感兴趣的荧光报告蛋白(例如,以mNeonGreen标记的肌球蛋白II)。
注意:已建立的H2B报告类器官细胞系可进行扩增并冷冻保存。这些细胞系可作为下游嵌合实验的通用基础平台:可在同一H2B标记背景下引入其他报告基因或遗传突变,从而构建一系列适用于第4节所述嵌合实验流程的细胞系。
3. 内源性命运报告基因人肠道类器官的生成
- 使用CRISPR介导的同源性不依赖性靶向整合(CRISPR-HOT)方法,在人肠道类器官中构建MUC2荧光敲入报告系统,具体操作参见Artegiani等人的研究7
- 通过同源定向修复(HDR)方法,在人肠道类器官中构建DEFA5荧光敲入报告系统,具体操作参见He等人的研究6
注:CRISPR-HOT(步骤3.1)和HDR(步骤3.2)均可产生内源性敲入报告系统。 - 通过验证荧光信号分别与MUC2和DEFA5抗体染色的共定位,确认两种报告系统的表达情况。
- 验证报告系统的引入不会改变类器官的生长、形态或分化能力。
注:CRISPR-HOT技术不仅适用于细胞命运标记物,还可广泛用于在人和小鼠类器官中生成定位于细胞膜或细胞骨架蛋白(如Myosin-II、E-cadherin或ZO-1)的内源性荧光报告系统。
4. 嵌合类器官的生成
- 在嵌合类器官生成前3天,将两类类器官均传代至含Wnt条件培养基中,以促进干细胞扩增,并在后续解离过程中最大限度地提高细胞活力。
- 在嵌合体生成当天,用20 µL含5% BME的DMEM溶液包被48孔板的每个孔,以提供一层薄的黏附层促进细胞贴附。于37 °C孵育1小时。
- 加入预冷的基础培养基溶解BME,并在4 °C下以300 × g离心5分钟,分别收集两类类器官。将类器官在37 °C水浴中用酶解细胞解离溶液孵育5–7分钟,以解离为单细胞。使用P1000移液器反复吹打悬液,辅助机械解离。在明场显微镜下观察解离情况,当观察到主要为单细胞或含2–10个细胞的小类器官片段时,加入过量预冷的基础培养基终止反应。
- 在4 °C下以300 × g离心5分钟收集细胞。可选:将每种细胞悬液通过40 µm细胞筛网过滤,以去除残留的细胞团块、细胞碎片及BME凝胶碎片。
注意:此步骤可确保获得洁净的细胞悬液,提高嵌合体的均一性,并降低由预先形成的细胞簇导致的大片克隆区域的风险。若希望在细胞群体间形成更大的边界,则不建议进行过滤。 - 使用台盼蓝染色法评估细胞活力并计数活细胞。将两种细胞群体按所需比例(例如1:1、1:3或1:9)混合,总细胞数为300,000,溶于500 µL含10 µM Y-27632二盐酸盐的Wnt条件培养基中。轻轻吹打充分混匀。
注意:混合比例决定分析类型:低报告基因标记细胞与未标记细胞比例(如1:9)可使单个标记细胞分散于未标记细胞之间,从而明确将膜和细胞骨架信号归因于单个细胞;而高比例的报告基因标记细胞(如9:1)则可反转观察视角,便于捕捉未标记细胞周围微环境的响应情况。 - 将细胞悬液接种至已包被的48孔板中。在室温下以200 × g离心5分钟,随后于37 °C孵育。
- 24小时后,使用P200移液器枪头刮除细胞层,并用预冷的基础培养基充分冲洗,或使用细胞刮刀进行机械解离。在4 °C下以300 × g离心3分钟收集解离的细胞聚集体,避免额外的机械剪切。将聚集体重悬于BME中,并接种至适用于成像的样品载体中。在ENR培养基中继续培养。
注意:无BME存在的二维聚集步骤对于生成两类细胞呈“马赛克”式均匀分布的嵌合类器官至关重要。 - 对于人源嵌合类器官,将Wnt条件培养基和ENR替换为人类扩增培养基(表2);其余所有步骤保持不变。
5. 共聚焦活细胞成像样品制备
- 使用玻璃底成像培养皿(例如,24孔玻璃底板,配备高性能#1.5硼硅酸盐盖玻片),以确保与高数值孔径(NA)共聚焦物镜的光学兼容性。
- 将类器官-BME悬液以薄穹顶状(每孔≤30 µL)接种于玻璃底中央附近。在转移至37 °C前,先将培养板置于4 °C孵育5–10分钟,使类器官在BME凝胶化前依靠重力沉降至玻璃底表面。
注意:此步骤可减小类器官与盖玻片之间的工作距离,从而在倒置显微镜下获得最佳图像质量。 - 转移至37 °C,使BME凝固20–30分钟,随后每24孔加入500 µL预热的生长培养基。接种后至少培养24小时,使类器官恢复并建立稳定形态,再开始活体成像。
- 为尽量减少长期成像过程中的蒸发,使用加湿的载台式培养箱。成像前1–2小时将样品置于显微镜载物台上,使其达到热平衡,从而减少采集过程中的Z轴漂移。
- 确保载台式培养箱在整个成像过程中维持37 °C和5% CO₂的环境。
- 选择靠近玻璃底表面(距盖玻片≤50 µm)且形态健康的类器官:小鼠类器官应具有清晰的隐窝出芽结构,人源类器官应呈现囊状或出芽结构。避免选择位于BME深层的类器官,因为成像深度增加会显著降低信号质量和细胞追踪准确性。
注意:本实验所用荧光报告基因(H2B-mCherry、H2B-iRFP、MUC2-mNeonGreen和DEFA5-dsRed)具有足够的信噪比,可实现可靠的核定位检测和单细胞追踪,因此BME和培养基中的酚红不会引起明显的自发荧光或成像伪影。然而,若实验中使用较弱的荧光报告基因或额外的荧光通道,改用无酚红的BME和培养基可能更为有利。
6. 共聚焦图像采集
- 使用配备台式培养箱(37 °C,5% CO₂)、电动Z轴驱动装置以及适用于所用荧光染料的激光线的激光扫描共聚焦显微镜。
- 根据实验需求选择物镜。使用数值孔径(NA)为1.10、工作距离为0.62 mm的40×水浸物镜,以实现对基底膜提取物(BME)更深层的成像。对于多类器官或大视野成像,使用数值孔径(NA)为0.75、工作距离为0.62 mm的20×空气物镜。
注意:较高的数值孔径(NA)可改善光收集效率、分辨率和光学切片能力,因此40×/1.10水浸物镜能在基底膜提取物(BME)内部更深层处分辨出精细结构,但其较高的放大倍数限制了视野范围,仅能观察一个或少数几个类器官。20×/0.75干镜物镜收集光的能力较弱,光学切片能力也较弱,但其更宽的视野可在单次成像中捕获多个类器官,因此更适合群体水平或多位点成像。 - 在开始采集之前(步骤5.8),让样品和浸没介质在显微镜载物台上热平衡至少1–2小时。
- 在最初的几个时间点期间,需在所有位置验证焦距,并在漂移累积之前手动校正出现漂移的任何位置。
注意:在长时间共聚焦成像过程中,失焦和图像漂移是常见问题,需积极加以管理。对于水浸物镜,应使用折射率与水相匹配(n = 1.333)的浸油,而非直接使用水,以消除蒸发问题,同时保持水浸物镜的光学特性。 - 为每种荧光染料配置激发和发射参数。为尽量减少串色干扰,应依次采集荧光通道而非同时采集,确保每次仅有一个激光谱线处于激活状态。采用双向顺序扫描模式,在保持通道分离的同时减少每个时间点的总采集时间。
注意:应包含仅表达一种报告基因的单色对照类器官,以量化残余的光谱渗漏,并在必要时进行光谱分离校正。 - 对于双色小鼠嵌合类器官,使用561 nm激发H2B-mCherry,638 nm激发H2B-iRFP670,并配合适当的发射滤光片以最小化光谱串扰。对于人类肠道类器官,使用488 nm激发MUC2-mNeonGreen,561 nm激发DEFA5-dsRed。
注意:活细胞核染料,如 Hoechst 33342 或 远红荧光DNA染料可替代遗传性核标记,因为检测流程依赖的是核信号而非特定的荧光染料。需注意,DNA结合染料在反复照射下可能产生光毒性并抑制细胞增殖,尤其是激发波长约400 nm的Hoechst染料。因此应保持低浓度,并在长时间活细胞成像中优先选用光毒性较低的远红染料。 - 将Z轴堆栈设置为25–35个光学切片,间隔为2 µm。小鼠肠道类器官的时间间隔设为5–10分钟,人类类器官设为15–30分钟。
注意:使用 OrganoidTracker 进行可靠的细胞核检测时,我们建议以下设置作为起点:40 倍水镜、扫描速度 600 Hz、缩放倍数 0.75×,在 XY 平面上获得 0.38 µm 的像素大小。这些设置可在单个细胞核分辨能力与多视野长时间成像中每层 z 堆栈的采集时间之间实现合理平衡。 - 将激光功率保持在尽可能低的水平,但需逐步增加直至细胞核清晰可辨。启动多点时间序列成像。确保每个时间点在所有位置的总成像时间不超过设定时间间隔的90%,以预留时间用于载物台移动和自动对焦调整。根据具体生物学问题,成像持续时间为12–72小时。
注意: 在开始长时间的类器官追踪(OrganoidTracker)实验之前,应先获取单个z轴层扫描图像并测试细胞识别效果。若识别结果可靠,且漏检或误检较少,则表明设置参数合适。否则,需在继续实验前调整激光功率、探测器增益或z轴步长。捕获分化事件(如MUC2阳性杯状细胞或DEFA5阳性潘氏细胞的出现)通常需要48–72小时。而细胞脱落等短期动态过程可在12–24小时内完成成像。光毒性是长期成像的主要限制因素,其表现包括细胞分裂减缓、凋亡、细胞核凝聚以及类器官结构崩塌。图2建议将未成像的对照类器官作为内部参照。若观察到光毒性现象,应降低激光功率或延长成像时间间隔。
7. 使用半自动类器官细胞追踪软件(如 OrganoidTracker)进行单细胞追踪和谱系重建
- 按照 https://github.com/jvzonlab/OrganoidTracker 上的说明安装 OrganoidTracker 。
注意:该软件需要 Python 3.8 或更高版本,并安装 numpy、scipy、matplotlib 和 tensorflow。 - 将延时成像数据集加载到 OrganoidTracker 中。支持的文件格式包括 TIFF 堆栈、ND2 和 LIF。在细胞核通道(小鼠类器官的 H2B-mCherry 或 H2B-iRFP)上运行基于神经网络的细胞核检测。
注意: 软件附带的预训练模型针对 H2B 标记的肠道类器官细胞核进行了优化,不能直接用于自动识别 MUC2-mNeonGreen 或 DEFA5-dsRed 阳性细胞。 - 审查并手动修正自动检测结果,重点关注假阳性(在碎片、自发荧光物质或有丝分裂图像被重复计数处的检测)、假阴性(在密集区域或类器官边缘遗漏的细胞核)以及身份交换(当两个细胞靠近移动时错误分配细胞身份)。
- 运行连接算法,将不同时相的检测结果关联起来,重建细胞轨迹。手动检查连接结果,特别关注细胞分裂事件(一条轨迹分裂为两条子代轨迹)和细胞脱落事件(细胞离开上皮层导致轨迹终止)。
注意:对于嵌合类器官,先在主要的细胞核通道上进行检测和追踪,然后根据两个细胞核通道之间的荧光强度比,将每个被追踪的细胞分类为群体 A 或群体 B。 - 在软件中使用“手动追踪”功能来追踪人类命运报告基因类器官。通过测量手动追踪过程中插入的细胞中心位置周围定义区域(ROI)内的平均信号强度,量化报告基因的荧光信号。当报告基因信号强度超过预设阈值时,即标志着细胞命运的确定。MUC2-mNeonGreen 信号的出现定义为杯状细胞命运的确定,而 DEFA5-dsRed 信号的出现定义为潘氏细胞命运的确定。
- 定期使用软件的增量保存功能保存追踪项目,以便可以暂停和继续校正过程。导出追踪数据(包括细胞位置、谱系树和细胞分类信息),用于在 Python 或 R 中进行后续分析。
8. 细胞命运转变与单细胞行为的定量分析
- 为了量化细胞类型转变,根据追踪过程中报告基因通道的荧光强度,确定每个DEFA5-dsRed阴性细胞首次转变为DEFA5-dsRed阳性的时间点(即潘氏细胞命运决定)。对每一个被追踪的细胞,提取MUC2-mNeonGreen和DEFA5-dsRed两个通道随时间变化的荧光强度,以监测两种报告基因在时间上的动态关系。绘制单个细胞的双通道强度轨迹图,以识别报告基因之间的相关动态变化。
注意:在单个被追踪细胞中同时监测两个通道对于区分杯状细胞命运决定(持续性MUC2-mNeonGreen激活)与潘氏细胞命运决定(短暂的MUC2-mNeonGreen激活后出现DEFA5-dsRed信号)至关重要。仅依赖单通道分析不足以捕捉该动态过程,可能导致将早期潘氏细胞前体错误归类为杯状细胞。 - 在嵌合类器官中,提取每个被追踪细胞的行为学参数,包括细胞寿命(从最后一次分裂至被挤出或成像结束的时间)、分裂速率和迁移速度。若存在共表达的兴趣报告基因,则量化其随时间变化的荧光强度,以捕捉在分裂、迁移或挤出等特定事件期间的动态变化。通过将标记细胞的行为与其邻近未标记细胞进行比较,将这些测量结果与其局部微环境背景相关联。
注意:当两种基因型混合在同一类器官中时,若在上述任一参数上观察到两群细胞之间的系统性差异,则可能表明其中一种基因型相对于另一种具有竞争性适应优势。 - 采用适当的统计方法进行统计分析。在比较两组之间命运决定的时间点或单细胞参数(如寿命、迁移速度和分裂速率)时,使用Mann-Whitney U检验。在比较报告基因强度随时间的动态变化时,采用线性混合效应模型,以校正同一细胞内重复测量的影响。
注意:所有定量分析必须基于经过人工校正的追踪数据进行。未经校正或部分校正的数据集会在命运决定时间、空间定位以及行为参数计算中引入系统性误差。在进入定量分析前,应预留充足时间完成人工校正(见第7节)。
结果
按照第4节所述方案,在接种后48小时内可形成包含H2B-mCherry和H2B-iRFP标记细胞群体的嵌合类器官。成功的嵌合结构表现为两种细胞群体之间呈“马赛克式”分布或具有明确边界,具体形态取决于解离程度。“马赛克式”分布指两种细胞群体在单细胞水平上随机混合,每一群体的细胞彼此分散,无明显的大范围克隆区域;而明确边界则导致在同一类器官内形成各自连续的细胞区域。细胞分散程度由解离步骤的持续时间及吹打强度控制:充分的单细胞解离可产生马赛克式嵌合结构,而轻柔的碎片化处理则保留较小的克隆簇(图3A)。
嵌合标记技术能够实现对在均匀标记组织中无法分辨的生物学过程进行单细胞水平的分析。当单个表达目标报告基因(例如荧光标记的肌球蛋白II报告基因)的细胞被未标记的邻近细胞包围时,可以明确地将该细胞在迁移、分裂或挤压过程中的细胞骨架动态归因于该细胞本身(图3B)。细胞核H2B报告基因有助于识别嵌合组织中有意义的细胞构型,并可从追踪数据中提取针对单个细胞的测量参数,例如细胞寿命、分裂速率以及报告基因信号强度的动态变化(图3C)。当混合两种基因型时,可通过比较不同细胞群体间的这些单细胞参数,评估其竞争性适合度差异。
在携带 MUC2-mNeonGreen 和 DEFA5-dsRed 命运报告基因的人肠道类器官中,分泌细胞命运的决定表现为报告基因荧光信号在数天内的逐渐增强。在第7天将培养于成熟培养基中的类器官转移至玻璃底培养皿,并通过共聚焦活细胞显微镜进行成像(图4A)。延时成像揭示了两种不同的报告基因动态:杯状细胞激活并持续维持高水平的 MUC2-mNeonGreen 表达,而潘氏细胞则首先出现 MUC2-mNeonGreen 的短暂激活,随后信号逐渐减弱,并继之以 DEFA5-dsRed 的激活6(图4A)。单细胞定量分析在单个细胞水平上证实了这一顺序性转变过程(图4B),提示潘氏细胞的命运决定并非直接来自未标记的前体细胞,而是经过一个短暂表达 MUC2 的中间状态。对多个追踪细胞的平均荧光强度曲线分析进一步证实,该模式在群体水平上具有一致性,潘氏细胞前体细胞表现出 MUC2-mNeonGreen 与 DEFA5-dsRed 信号之间典型的反向关系(图4C)。综上所述,这些数据表明双报告基因系统能够在单细胞分辨率下解析出不同的分泌细胞命运轨迹。
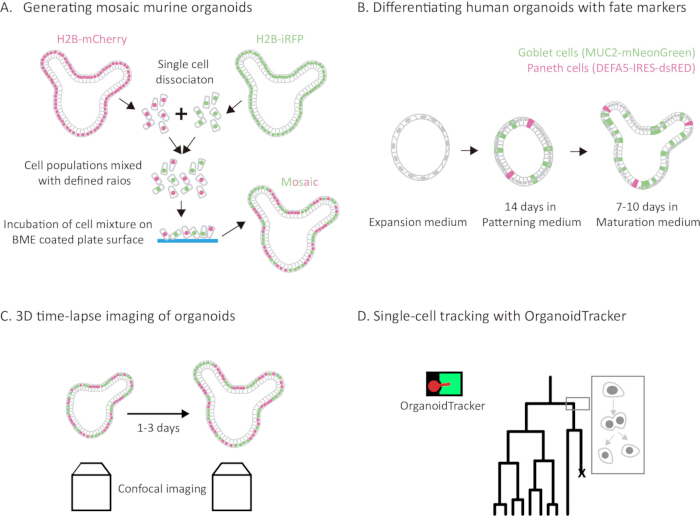
图1: 整合共聚焦活细胞成像与单细胞示踪技术,结合两种互补的报告系统,在人和小鼠肠道类器官中开展研究的工作流程。 (A) 嵌合类器官生成流程的示意图。表达 H2B-mCherry(品红色)或 H2B-iRFP(绿色)的小鼠肠道类器官被解离为单细胞,按预定比例混合后接种于基底膜提取物(BME)包被的培养板上,培养 24 小时以形成聚集体,随后重新包埋于 BME 中。B) 人肠道类器官分化的示意图。表达MUC2-mNeonGreen(杯状细胞,绿色)和DEFA5-dsRed(潘氏细胞,品红色)内源性敲入报告基因的人类类器官通过两步法进行分化。类器官首先在模式形成培养基中培养14天,随后在成熟培养基中培养7–10天。在分化过程中,类器官从囊状球形结构转变为具有广泛出芽的结构,其中包含主要的肠细胞类型,包括MUC2-mNeonGreen阳性的杯状细胞和DEFA5-dsRed阳性的潘氏细胞。C) 表达核报告基因的小鼠嵌合肠道类器官的三维延时共聚焦成像。D使用半自动类器官细胞追踪软件工具进行单细胞追踪和谱系重建。通过时间点之间的细胞核识别与连接,重建细胞运动轨迹和谱系树,从而实现对细胞分裂、迁移和脱落事件的定量分析。 请点击此处以查看此图的放大版本。
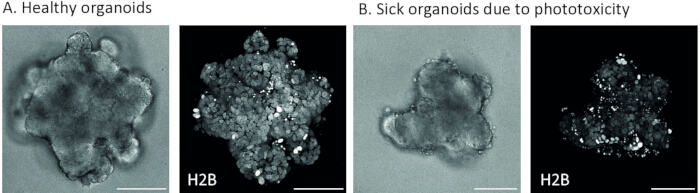
图 2:活体共聚焦成像过程中健康与光毒性人肠类器官的比较。 (A) 健康人肠类器官的代表性明场与荧光图像。健康的类器官呈现清晰的囊状或出芽形态,周围培养基中无细胞碎片。 (B) 显示光毒性损伤的人肠类器官的代表性明场与荧光图像。光毒性的迹象包括周围培养基中细胞碎片的积聚、细胞核凝聚以及细胞分裂停滞。H2B-mCherry 荧光图像显示为最大强度投影。比例尺,100 µm。 请点击此处查看该图的放大版本。
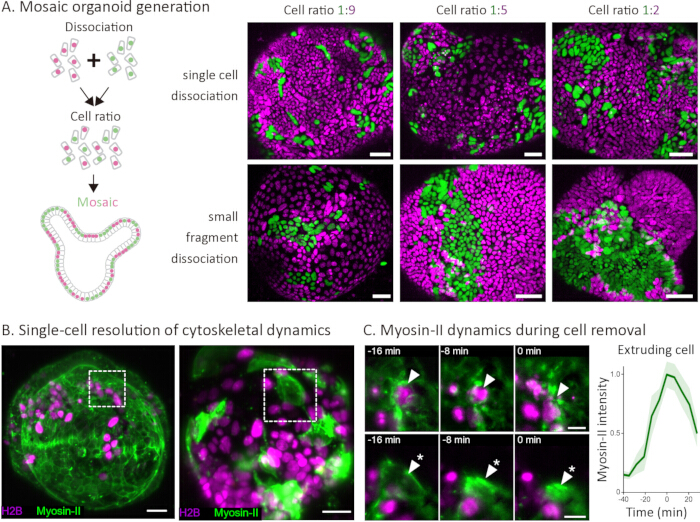
图3:小鼠肠道类器官中嵌合类器官的生成及细胞骨架动态的单细胞分辨率分析。(A)通过单细胞解离、按定义比例混合并重新聚集生成嵌合类器官的示意图。代表性共聚焦图像显示了以1:9、1:5和1:2细胞比例生成的嵌合类器官(H2B-mCherry,绿色;H2B-iRFP,品红色),采用单细胞解离(上排)或小片段解离(下排)。单细胞解离产生“椒盐状”混合模式,而小片段解离则形成较大的克隆斑块。比例尺,50 µm。(B)嵌合类器官的共聚焦图像,其中高密度(左)或低密度(右)细胞群体表达Myosin-II-mNeonGreen(绿色),另一群体仅表达H2B-iRFP(品红色)。虚线框表示在(C)中放大的区域。比例尺,20 µm。(C)时间推移序列,显示以8分钟间隔进行的细胞挤出过程,并对齐至细胞移除时刻(t = 0分钟)。上排(箭头):被表达Myosin-II-mNeonGreen的邻近细胞包围的未标记细胞的挤出,揭示了邻近区域的响应。下排(星号):被未标记邻近细胞包围的单个表达Myosin-II-mNeonGreen细胞的挤出,从而能够明确将皮层肌球蛋白动态归因于正在挤出的细胞。比例尺,10 µm。右侧:挤出细胞中Myosin-II-mNeonGreen荧光强度随时间变化的归一化曲线,对齐至细胞移除时刻(t = 0分钟)。肌球蛋白-II在挤出前数分钟内逐渐积累,并在移除时达到峰值。阴影区域表示标准差。请点击此处查看该图的放大版本。
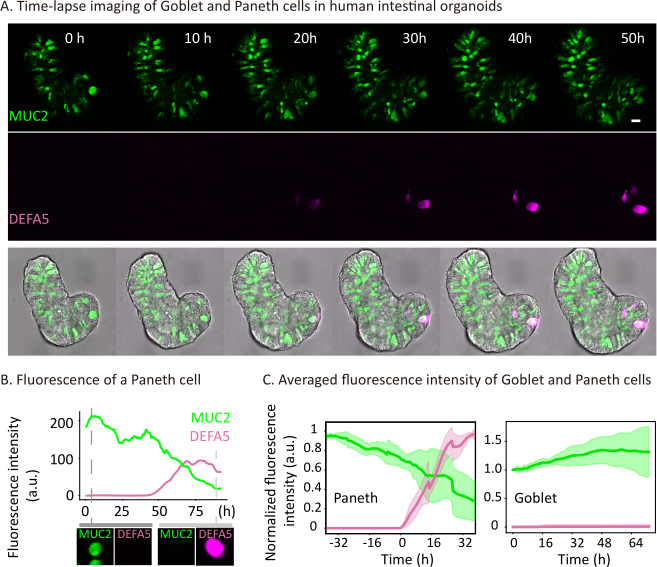
图4:利用MUC2-mNeonGreen和DEFA5-dsRed命运报告系统对人肠类器官中分泌细胞命运转变进行实时监测。 请点击此处查看该图的高清版本。
(A)人肠类器官在成熟培养基中培养并从成熟第7天开始进行延时共聚焦成像的代表性图像。MUC2-mNeonGreen(绿色)标记杯状细胞,DEFA5-dsRed(品红色)标记潘氏细胞。比例尺,20 µm。(B)一个代表性潘氏细胞随时间变化的MUC2-mNeonGreen(绿色)和DEFA5-dsRed(品红色)荧光强度的单细胞定量结果,显示MUC2-mNeonGreen最初被激活,随后信号逐渐减弱,接着出现DEFA5-dsRed信号。荧光强度以任意单位(a.u.)表示。(C)杯状细胞(n = 7 个细胞)和潘氏细胞前体(n = 8 个细胞)的平均荧光强度曲线,显示MUC2-mNeonGreen(绿色)和DEFA5-dsRed(品红色)信号随时间的动态变化6。对于潘氏细胞前体,时间以DEFA5-dsRed信号首次出现为基准(t = 0 h)。杯状细胞在随时间推移中维持稳定的高MUC2-mNeonGreen强度,而潘氏细胞前体则表现出MUC2-mNeonGreen与DEFA5-dsRed信号之间典型的负相关关系。阴影区域表示标准差。
| 组分 | 储存浓度 | 终浓度 |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | 基础培养基 | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| N2 supplement | 100x | 1x |
| B27 supplement | 50x | 1x |
| N-乙酰半胱氨酸 | 500mM | 1mM |
| 青霉素/链霉素 | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| 重组小鼠 EGF | 50ng/ml | |
| 重组小鼠 Noggin | 100ng/ml | |
| 重组人 R-spondin 1 | 500ng/ml |
表1:小鼠肠道类器官的培养基。
| 组分 | 储存浓度 | 终浓度 |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | 基础培养基 | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27 补充剂 | 50x | 1x |
| 青霉素/链霉素 | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| R-spondin 条件培养基 (U-Protein Express) | 2% | |
| Noggin 条件培养基 (U-Protein Express) | 2% | |
| N-乙酰半胱氨酸 | 500mM | 1mM |
| 烟酰胺 | 1M | 10mM |
| 人重组 EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| SB202190 (p38 抑制剂) | 30mM | 3uM |
| 前列腺素 E2 | 10mM | 1uM |
| Wnt 替代物 | 1000x |
表2:人肠道类器官的扩增培养基。
| 组分 | 储存浓度 | 终浓度 |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | 基础培养基 | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27 补充剂 | 50x | 1x |
| 青霉素/链霉素 | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocin | 50mg/ml | 100ug/ml |
| R-spondin 条件培养基 (U-Protein Express) | 2% | |
| Noggin 条件培养基 (U-Protein Express) | 2% | |
| N-乙酰半胱氨酸 | 500mM | 1mM |
| 人重组 EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt 替代物 | 1000x | |
| CHIR99021 | 3mM | 3uM |
| 重组人 IL-22 | 10 ug/ml | 2ng/ml |
表3:人肠道类器官的图案化培养基。
| 组分 | 储存浓度 | 终浓度 |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | 基础培养基 | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27 补充剂 | 50x | 1x |
| 青霉素/链霉素 | 10000U/ml, 10000U/ml | 100U/ml, 100U/ml |
| Primocin | 50mg/ml | 100μg/ml |
| R-spondin 条件培养基 (U-Protein Express) | 2% | |
| Noggin 条件培养基 (U-Protein Express) | 2% | |
| N-乙酰半胱氨酸 | 500mM | 1mM |
| 人重组 EGF | 500μg/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt 替代物 | 30000x | |
| 人重组 IL-22 | 10 μg/ml | 2ng/ml |
表4:人肠道类器官的成熟培养基。
讨论
本方案提供了针对人和小鼠肠道类器官的活细胞共聚焦成像及单细胞追踪的逐步操作流程,基于两个互补的实验系统构建:镶嵌型类器官可解析密集上皮内单个细胞的行为,谱系报告类器官则表达MUC2-mNeonGreen和DEFA5-dsRed,用于实时监测分泌细胞类型的转变。
与免疫荧光或单细胞RNA测序等固定时间点的方法相比,活体成像能够捕捉动态转变过程,而非静态图像。与基于Cre的谱系示踪相比,该方法具有更高的时间分辨率,可识别单个细胞的命运决定事件。嵌合方法在同一组织背景下提供内部对照的比较,避免了类器官之间变异带来的干扰。
该方案中有多个步骤对成功至关重要。对于呈现盐和胡椒样分布的嵌合体,类器官解离为单细胞的过程必须彻底且轻柔:解离不完全会产生较大的克隆斑块,而过度解离则会降低细胞活力(第4.3节)。在重新包埋于基底膜提取物(BME)之前,需在平面上进行24小时的聚集步骤,以确保两种细胞群体充分混合;若省略此步骤,将导致嵌合体整合不良(第4.6–4.8节)。成像过程中的光毒性控制需要仔细校准,应从保守的激光设置开始,仅在追踪软件产生过多假阴性结果时逐步增加强度(第6.8节)。
主要局限性与类器官系统和活体成像的固有约束有关。类器官缺乏可能影响体内细胞行为的间质、血管和免疫组分。对于共聚焦显微镜而言,成像深度仅限于盖玻片下方约100 µm范围内,超过此深度后,光散射会降低信号质量和追踪准确性。多光子显微镜和光片显微镜可在增加仪器成本和需要调整实验方案的前提下显著扩展该成像深度范围。半自动追踪方法虽然比手动标注高效得多,但在组织密度较高的情况下仍需要大量校正时间(第7.4节)。
两种策略均易于扩展。通过改变与核标记物共同表达的报告基因,可检测单细胞行为的不同方面,例如用于机械动力学研究的皮层Myosin-II,用于黏附重塑研究的连接处E-cadherin,钙离子生物传感器(如tq-Ca-FLITS和ColBD-Twitch),或代谢生物传感器(如用于检测细胞NAD+/NADH氧化还原状态的SoNar),从而能够在同一类器官中同时读取细胞身份、谱系及生理状态9,25,26,27调整标记细胞与非标记细胞的比例可优化分析效果:稀疏标记的细胞有助于将膜信号归因于单个细胞,而稀疏的非标记细胞则可揭示微环境中的邻近响应。该命运报告系统策略可扩展至任何可通过CRISPR-HOT或基于HDR的标记方法进行编辑的内源性基因座。在同一类器官中联合使用这两种方法,可实现谱系命运决定与单细胞动态的同步追踪。
更广泛而言,该成像与分析流程适用于源自其他上皮组织的类器官,包括胃、结肠、肝和胰腺模型。由诱导性多能干细胞(iPSC)衍生的类器官是一个有前景的拓展方向,因为基于H2B的细胞核标记以及通过细胞混合实现的嵌合体生成方法可直接沿用,该流程有望实现针对患者特异性细胞命运及竞争动态的研究。诸如原肠胚样体和干细胞来源的胚胎样体等合成胚胎模型同样适用于单细胞追踪,但其更复杂的几何结构和更高的细胞核密度可能需要重新训练半自动类器官细胞追踪软件工具的神经网络模型,并调整成像参数。脑类器官则带来额外挑战,因其体积较大且光学密度较高,限制了共聚焦显微镜的成像深度。此外,脑类器官需要数周至数月的分化时间才能开展有意义的成像实验,相较于肠类器官显著延长了实验周期。部分脑类器官培养方案还依赖悬浮培养而非基底膜提取物(BME)包埋,这与本文所述的样品制备方法不兼容,需先调整为基质包埋或表面附着的形式方可成像。光片显微镜具有光毒性低、成像深度大的优势,可能更适用于此类系统13。综上所述,这些拓展应用凸显了该流程在多种三维模型系统中的广泛潜力,远超本文所描述的上皮类器官范畴。
披露
H.C. 是与类器官技术相关专利的发明人。其余所有作者声明无竞争利益。
致谢
本研究由荷兰政府教育、文化和科学部通过荷兰科学研究组织(NWO)引力项目“材料驱动再生”(024.003.013 ZWK MDR)以及欧洲研究理事会通过ERC高级资助项目GutHormones(编号 101020405)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase 细胞解离液 | 创新细胞技术 | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27添加剂 | 赛默飞世尔科技 | 17504044 | |
| 杀稻瘟菌素 | InvivoGen | ant-bl-05 | |
| 细胞滤网(40 μm) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-基础 | |
| 共聚焦显微镜 | Leica | SP8 | 具有温度和 CO2 控制功能的气候控制装置 |
| Cultrex 基底膜提取物(BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | 开源 | 开源 https://imagej.net/software/fiji/ | |
| 玻璃底板 | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 补充剂 | 赛默飞世尔科技 | 17502048 | |
| N-乙酰半胱氨酸 | Sigma-Aldrich | A9165 | |
| NEPA电穿孔系统 | NEPAGENE | NEPA21 | |
| 烟酰胺 | Sigma-Aldrich | N0636 | |
| NucSpot Live | 远红活细胞核染料 | ||
| Noggin 条件培养基(U-Protein Express) | IPA Therapeutics | N002 | |
| 类器官追踪器 | 开源 | 开源 https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | 自制的 | 生成质粒的实验方案 DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | 自制的 | 生成质粒的实验方案 DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | 自制的 | 生成质粒的实验方案 DOI: 10.1126/science.adr8753 | |
| 青霉素/链霉素 | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| 前列腺素E2 | Tocris | 2296 | |
| 嘌呤霉素 | InvivoGen | 蚂蚁- | |
| 重组人EGF | Peprotech | AF-100-15 | |
| 重组人IL-22 | Peprotech | 200-22 | |
| 重组人R-spondin 1 | 赛默飞世尔科技 | 120-38-5UG | |
| 重组小鼠EGF | 赛默飞世尔科技 | 315-09-500UG | |
| 重组小鼠Noggin | 赛默飞世尔科技 | 250-38-100UG | |
| R-spondin 条件培养基(U-Protein Express) | IPA治疗学 | R001 | |
| SiR-DNA | 远红光活细胞DNA染料 | ||
| SB202190(p38抑制剂) | Sigma-Aldrich | S7076 | |
| 类器官培养用悬浮培养板 | 格雷纳 | 665102 | |
| 台盼蓝 | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt替代物 | U-Protein Express | 定制订单 | |
| Wnt3A 条件培养基 | 自制的 | Wnt3A 条件培养基的制备方法详见此处: https://doi.org/10.1002/cpim.106 | |
| Y-27632 二盐酸盐 | Abmole 生物科学 | M1817 |
重印与许可
本文已发表
视频即将推出