本研究探讨了氯吡格雷治疗在大鼠胃黏膜及胃上皮细胞中引起的损伤,重点揭示了其与内质网应激相关分子改变、细胞凋亡及全身性炎症的关联。
本文内容
摘要
摘要
氯吡格雷作为一种抗血小板药物,广泛用于动脉血栓性疾病的预防与治疗,但其临床应用可能受到包括胃黏膜损伤在内的胃肠道不良反应的限制。由于上皮细胞存活对维持胃黏膜完整性至关重要,我们推测氯吡格雷诱导的胃上皮细胞损伤将伴随内质网应激及凋亡相关标志物的改变。为验证该假设,采用不同浓度氯吡格雷处理GES-1人胃上皮细胞,并通过CCK-8细胞计数试剂盒检测细胞活力,流式细胞术分析细胞凋亡与细胞周期分布,以及采用定量实时聚合酶链反应(qRT-PCR)和蛋白质印迹法(Western blotting)检测分子水平的变化。同时,通过灌胃给予Sprague-Dawley大鼠氯吡格雷以建立动物模型 体内 胃损伤模型。采用苏木精-伊红染色评估胃黏膜病理变化,并通过酶联免疫吸附测定法(ELISA)检测血清炎症细胞因子水平。氯吡格雷降低了GES-1细胞活力,促进细胞凋亡,并改变细胞周期进程。在大鼠中,氯吡格雷引起胃黏膜糜烂、水肿及炎性细胞浸润,同时伴随血清白细胞介素(IL)-1水平升高。β, IL-6, 和肿瘤坏死因子-α (TNF-α) 水平。氯吡格雷还增加了胃组织和 GES-1 细胞中内质网应激标志物 C/EBP 同源蛋白(CHOP)和活化转录因子 5(ATF5)的表达,上调 Bcl-2 相关 X 蛋白(Bax)的表达,下调 B 细胞淋巴瘤 2(Bcl-2)的表达,并升高 Bax/Bcl-2 比值。这些结果提示,氯吡格雷诱导的胃黏膜损伤与内质网应激相关标志物表达增加及 Bax/Bcl-2 平衡失调有关,但本研究尚未确立内质网应激—线粒体凋亡通路的直接因果关系。
引言
胃黏膜的固有免疫和适应性免疫系统由上皮细胞、免疫细胞及信号分子组成,共同维持黏膜完整性,并作为抵御有害因素的关键生理屏障1,2。这一保护功能对胃肠道稳态至关重要,其功能紊乱可导致胃部疾病(包括胃炎)的发生3。临床上,药物诱导的胃黏膜损伤是一种常见并发症,其中非甾体抗炎药和抗血小板药物是最常见的诱因之一4。胃黏膜完整性依赖于细胞增殖与凋亡之间的动态平衡5。长期暴露于药物等环境因素可破坏该平衡,促进细胞凋亡,进而导致黏膜损伤6,7。内质网在维持细胞内稳态中发挥核心作用。在细胞应激条件下,错误折叠或未折叠蛋白的积累会激活未折叠蛋白反应,包括PERK/eIF2α/ATF4/CHOP信号通路,该通路可能促进细胞凋亡并改变B细胞淋巴瘤2(Bcl-2)家族蛋白的表达8。ATF5也参与线粒体应激反应以及线粒体功能障碍与内质网应激之间的交互作用9。近期临床证据表明,持续使用抗血小板治疗(包括氯吡格雷)与进行性胃和小肠黏膜损伤相关10。
氯吡格雷是一种广泛使用的抗血小板药物,需经代谢活化后不可逆地结合于血小板P2Y12受体,从而抑制腺苷二磷酸介导的血小板聚集,发挥抗血栓作用11该生物活化主要通过肝脏细胞色素P450酶介导。因此,将培养的胃上皮细胞直接暴露于氯吡格雷原药无法重现氯吡格雷治疗的完整代谢及药代动力学环境 体内然而,越来越多的证据表明,氯吡格雷治疗可能与胃溃疡复发及胃肠道出血相关,凸显了在抗血栓疗效与胃肠道安全性之间取得平衡的重要性12,13,14尽管已有相关不良反应的报道,但氯吡格雷引起胃黏膜损伤的潜在机制尚未完全阐明,这限制了针对性预防和治疗策略的开发。在本研究中,我们采用Sprague–Dawley大鼠和GES-1细胞探讨氯吡格雷对胃黏膜的影响。大鼠通过灌胃给予氯吡格雷,并进行相应的补充 体外 采用 GES-1 细胞进行实验。通过组织病理学、分子和细胞分析,探讨氯吡格雷诱导的胃黏膜损伤是否与内质网应激和细胞凋亡相关。因此,本研究重点在于表征氯吡格雷诱导胃损伤相关的分子变化,而非建立因果信号通路。研究结果为进一步理解氯吡格雷诱导胃黏膜损伤的分子机制提供了新的视角,可能有助于未来预防和管理此类不良反应的研究。
方案
所有动物实验程序均经Dr. Can Biotechnology(浙江)有限公司动物实验伦理审查委员会审核批准。本研究遵循实验室动物护理与使用机构指南。动物伦理批准编号为DRK-20251015210。
动物与细胞系
伦理批准涵盖了20只SPF级Sprague–Dawley大鼠的使用。本研究共纳入12只雄性SPF级Sprague–Dawley大鼠,实验开始时年龄为6–8周,体重为280–300 g。大鼠购自杭州紫源实验室动物科技有限公司(中国杭州;生产许可证号:SCXK [浙江] 2024-0004),并随机分配至对照组和氯吡格雷处理组,每组6只。大鼠饲养于受控环境中,温度约为22°C,光照/黑暗循环为12小时/12小时,自由摄取标准饲料和灭菌饮用水。所有大鼠在实验前均适应环境一周。硫酸氢氯吡格雷用0.5%羧甲基纤维素钠(CMC-Na)悬浮,浓度为0.781 mg/mL。氯吡格雷处理组大鼠每日通过口服灌胃给予硫酸氢氯吡格雷,剂量为10 mL/kg体重(相当于1 mL/100 g体重,剂量为7.81 mg/kg),连续给药3天。对照组大鼠给予等体积的0.5% CMC-Na。给药剂量和3天的处理周期是基于先前报道的短期大鼠口服氯吡格雷模型确定的。在第3天最后一次灌胃后,禁食12小时,饮水自由供应。ad libitum。大鼠在诱导舱内使用3%异氟烷(氧气中)进行麻醉诱导,并通过鼻罩输送1.5%–2.0%异氟烷维持麻醉。通过角膜反射和足底回缩反射消失确认麻醉深度足够。在深度麻醉下,通过终末心脏穿刺采集血液。在保持深度麻醉状态下,大鼠通过放血并行双侧开胸术实施安乐死。通过至少5分钟内无自主呼吸和心脏活动,以及角膜反射和足底回缩反射消失来确认死亡。随后迅速取出胃组织,沿胃大弯剪开,并用冰冻生理盐水轻轻冲洗。
人胃黏膜上皮细胞系 GES-1 购自 iCell Bioscience Inc.(中国上海;货号:iCell-h062),并由供应商通过短串联重复序列分型进行鉴定。细胞在含 10% 胎牛血清(FBS)和 1% 青霉素-链霉素的 RPMI-1640 培养基中培养,培养条件为 37°C、5% CO₂ 的湿润培养箱。实验使用第 3 至第 10 代的早期传代细胞。当细胞融合度达到约 80%–90% 时,按 1:3 的传代比例进行传代。后续实验均使用处于对数生长期的细胞。在 CCK-8 实验中,将细胞以每孔 6 × 10³ 个细胞的密度接种至 96 孔板。在细胞凋亡和细胞周期分析实验中,将细胞以每孔约 5 × 10⁵ 个细胞的密度接种至 6 孔板,待细胞贴壁后进行氯吡格雷处理。
化学品与溶液
氯吡格雷硫酸氢盐(货号:C874834;纯度 ≥ 99%)用于动物和细胞实验。通过将100 mg氯吡格雷粉末溶于二甲基亚砜(DMSO)中,配制1 M的母液。使用前将母液进一步稀释至所需工作浓度。1 M母液用DMSO逐级稀释,配制1000× 10、100、200、400、600、800 和 1000 mM 浓度的给药溶液。处理前立即取出每份 1000× 将给药溶液以1:1000(v/v)的比例加入完全培养基中,分别获得终浓度为0.01、0.1、0.2、0.4、0.6、0.8和1.0 mM的氯吡格雷。对照组加入等体积不含氯吡格雷的DMSO,因此所有组别的终DMSO浓度均维持在0.1%(v/v)。培养的GES-1细胞不具备肝脏细胞色素P450介导的氯吡格雷生物活化能力,因此采用直接添加氯吡格雷作为探索性母体化合物暴露模型。所选浓度范围旨在表征实验条件下浓度依赖性的细胞反应,不应将其解读为等同于临床可达到的血浆或胃组织浓度。
细胞传代培养
完全培养基通过在基础培养基中添加胎牛血清(FBS)和青霉素-链霉素配制而成。当细胞融合度达到约80%时,移除培养基,用无菌磷酸盐缓冲液(PBS)洗涤细胞三次。随后用胰蛋白酶-乙二胺四乙酸(EDTA)溶液消化细胞约1–2分钟。待细胞部分脱落时,加入完全培养基以终止消化。将细胞悬液在1,200 × g离心3分钟。弃去上清液后,将细胞沉淀重悬于1–2 mL完全培养基中,并根据实验要求接种至新的培养皿中。
CCK-8 细胞活力检测
将处于对数生长期的 GES-1 细胞以每孔 6 × 10³ 个细胞的密度接种于 96 孔板中,培养过夜以使细胞贴壁。贴壁后,细胞分别用不同浓度的氯吡格雷(0、0.01、0.1、0.2、0.4、0.6、0.8 和 1.0 mM)处理 24 小时。对照组加入等体积的溶剂对照。处理结束后,按照试剂盒说明书向每孔加入 CCK-8 溶液,并在 37°C 孵育。使用酶标仪测定 450 nm 处的吸光度。细胞活力以对照组的百分比表示。根据浓度-反应关系结果,选择 0.1 mM 氯吡格雷处理 24 小时用于后续的细胞凋亡、细胞周期、qPCR 和 Western blot 分析。
流式细胞术分析
将 GES-1 细胞接种至 6 孔板中,待细胞贴壁后,用 0.1 mM 氯吡格雷处理 24 小时。处理结束后,收集悬浮细胞和贴壁细胞。贴壁细胞用不含 EDTA 的胰蛋白酶消化,用预冷的 PBS 洗涤两次,并重悬于结合缓冲液中。根据试剂盒说明书,使用 Annexin V-FITC/PI 凋亡检测试剂盒对细胞进行染色。避光室温孵育后,采用 RaiseCyte 2L6C 流式细胞仪检测凋亡细胞。使用 RaiseFlower 采集软件获取数据,并用 FlowJo 软件(版本 10.8.1)进行分析。通过 FlowJo 软件定量早期凋亡、晚期凋亡及总凋亡细胞群体。
细胞周期分布的流式细胞术分析
将 GES-1 细胞接种至 6 孔板中,并用 0.1 mM 氯吡格雷处理 24 小时。处理结束后,收集细胞,用 PBS 洗涤,并在 4°C 下用预冷的 70% 乙醇固定。固定后的细胞经洗涤以去除残留乙醇,随后根据试剂盒说明书,在避光条件下用 RNase A 和碘化丙啶染色液孵育。使用流式细胞仪分析细胞周期分布。采用采集软件获取数据,并使用 FlowJo 软件进行分析。通过 Watson 模型拟合细胞周期分布,计算处于 G0/G1 期、S 期和 G2/M 期的细胞百分比。
定量实时聚合酶链式反应(qPCR)
使用RNA提取试剂盒,按照试剂盒说明书从GES-1细胞和大鼠胃组织样本中提取总RNA。对于组织样本,迅速收集胃黏膜组织,在低温条件下匀浆后进行RNA提取。通过测定260 nm和280 nm处的吸光度来确定RNA浓度和纯度。使用含基因组DNA去除步骤的逆转录试剂盒,将等量RNA逆转录为互补DNA(cDNA)。采用基于SYBR Green的PCR预混液进行定量实时PCR。每个反应体系总体积为20 µL,包含10 µL 2×预混液、1 µL cDNA、0.4 µL正向引物、0.4 µL反向引物以及8.2 µL无RNase的ddH₂O。扩增程序如下:95°C预变性10分钟,随后进行40个循环,每个循环包括95°C变性10秒、60°C退火30秒、72°C延伸30秒。检测CHOP、ATF5、Bcl-2和Bax的表达水平。以内参基因GAPDH作为对照。采用2−ΔΔCt法计算相对基因表达量。引物序列见补充表1。
蛋白质印迹
从 GES-1 细胞和大鼠胃组织样本中提取总蛋白。对于细胞样本,用冷 PBS 洗涤处理后的 GES-1 细胞,随后使用含有蛋白酶抑制剂的放射免疫沉淀法(RIPA)裂解缓冲液进行裂解。对于组织样本,在低温条件下用 RIPA 缓冲液匀浆胃黏膜组织,然后离心收集上清液。采用 BCA 蛋白检测试剂盒测定蛋白浓度。每泳道加入 20 µg 蛋白,通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离后,转移至聚偏二氟乙烯(PVDF)膜上。用牛血清白蛋白(BSA)封闭后,膜在 4°C 下与一抗孵育过夜,一抗包括 CHOP(1:1000)、ATF5(1:1000)、Bcl-2(1:1000)、Bax(1:1000)和 β-actin(1:5000)。洗涤后,膜与相应的辣根过氧化物酶标记的二抗(1:10000)孵育。使用增强型化学发光试剂显色,并通过化学发光成像系统采集图像。采用图像分析软件对条带强度进行定量,并以 β-actin 为内参进行归一化处理。
组织病理学评估
在给予氯吡格雷处理后,采集Sprague–Dawley大鼠的胃组织样本,并用10%中性缓冲福尔马林固定。样本经脱水、透明化、石蜡包埋后,切片厚度为4 µm。石蜡切片采用苏木精和伊红染色。根据黏膜形态、上皮完整性、水肿及炎性细胞浸润情况,在光学显微镜下对组织病理学改变进行定性评估。采集代表性图像。未应用组织学评分系统。
免疫组织化学
将石蜡包埋的胃组织切片置于二甲苯中脱蜡,并通过梯度乙醇溶液进行水化。在柠檬酸盐缓冲液中进行加热诱导的抗原修复。使用3%过氧化氢室温孵育10分钟以阻断内源性过氧化物酶活性,再用正常山羊血清室温孵育30分钟以阻断非特异性结合。随后,切片在4°C下与针对CHOP、ATF5、Bcl-2和Bax的一抗抗体孵育过夜。用PBS洗涤后,切片与相应的辣根过氧化物酶标记的二抗抗体孵育。使用DAB显色溶液显影免疫反应信号,随后用苏木精复染。切片经脱水、透明、封片后,在光学显微镜下观察。采集代表性图像,并利用图像分析软件对阳性染色区域进行定量分析。
免疫荧光染色
将石蜡包埋的胃组织切片进行脱蜡、水化,并在柠檬酸盐缓冲液中进行热诱导抗原修复。用正常山羊血清封闭30分钟后,切片在4°C下与一抗CHOP(1:50)、ATF5(1:100)、Bcl-2(1:50)和Bax(1:200)孵育过夜。用PBS洗涤后,切片在室温避光条件下与相应的荧光二抗(1:500)孵育1小时,随后用DAPI复染。使用荧光显微镜在×200放大倍数下采集图像。每只动物随机选取三个不重叠的视野,采用Image-Pro Plus 6.0软件进行分析,荧光强度以IOD/Area表示。每组包含三只动物用于分析。
酶联免疫吸附测定(ELISA)
处理后采集Sprague–Dawley大鼠的血液样本,并在室温下使其凝固。通过离心分离血清,并于−80°C保存直至分析。根据试剂盒说明书,使用ELISA试剂盒检测血清中IL-1β、IL-6和TNF-α的水平。采用酶标仪测定吸光度,并根据标准曲线计算细胞因子浓度。
统计学分析
采用统计分析软件进行统计分析。数据以均值 ± 标准差表示。正态性与方差齐性分别通过 Shapiro–Wilk 检验与 Levene 检验进行评估。两组之间的比较采用 Student t 检验。多组之间的比较采用单因素方差分析,随后进行 Dunnett 事后检验。P < 0.05 被认为具有统计学显著性。所有细胞实验均至少进行三次独立的生物学重复。
结果
氯吡格雷降低GES-1细胞活力并促进细胞凋亡 体外
我们首先研究了氯吡格雷是否影响 GES-1 细胞的活力和凋亡。CCK-8 检测结果显示,氯吡格雷处理显著降低了 GES-1 细胞的活力(图 1A、B),表明细胞活力下降。根据在测试浓度范围内细胞活力的整体降低情况,选择 0.1 mM 氯吡格雷处理 24 小时用于后续所有细胞实验。随后通过流式细胞术分析细胞凋亡和细胞周期分布(图 1C–F)。流式细胞术分析显示,处于 S 期的细胞比例增加,同时 G0/G1 期细胞群体减少,而 G2/M 期细胞群体无明显增加,提示发生 S 期蓄积而非 G2/M 期阻滞。结果表明,与对照组相比,氯吡格雷显著增加了 GES-1 细胞的凋亡,并改变了细胞周期分布。综上所述,这些发现表明氯吡格雷可降低 GES-1 细胞活力,并与细胞凋亡增加及细胞周期进程改变相关。这些结果证明了在所选实验条件下,直接暴露于氯吡格雷原形化合物可引发细胞毒性反应。但本研究并未证实这些效应在临床相关暴露水平下是否同样发生,也未确定所观察到的反应是否由氯吡格雷的活性代谢产物介导。
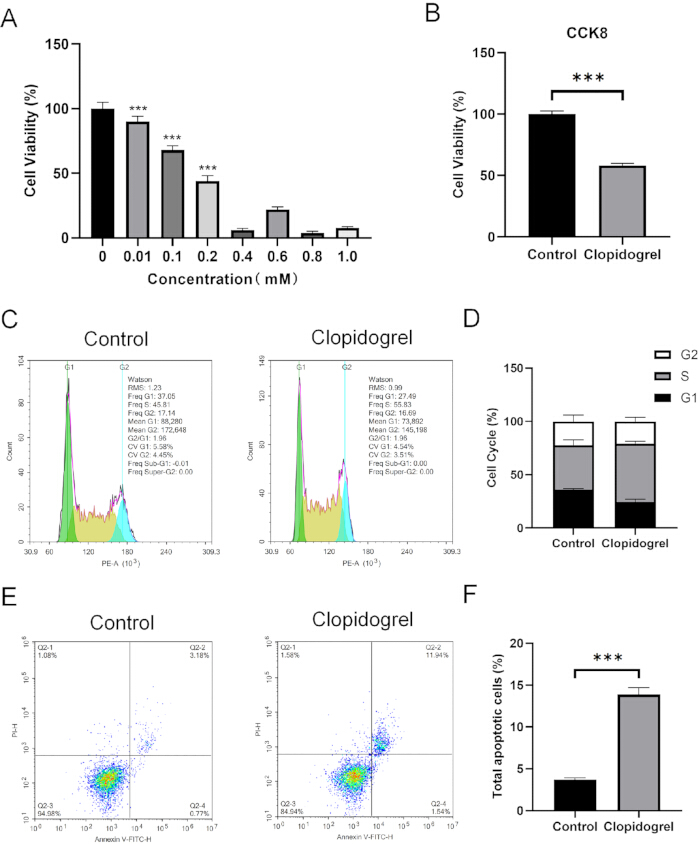
图1.氯吡格雷降低GES-1细胞活力并促进细胞凋亡。(A)采用CCK-8检测法评估人胃上皮细胞系GES-1在不同浓度氯吡格雷(0–1.0 mM)处理24小时后的细胞活力。(B)对照组与经0.1 mM氯吡格雷处理24小时组之间细胞活力的定量比较。(C)使用Watson模型分析的代表性流式细胞术细胞周期分布图谱。(D)处于G0/G1期、S期和G2/M期细胞百分比的量化结果。氯吡格雷处理增加了S期细胞比例,而G2/M期细胞比例无明显上升。(E)经Annexin V-异硫氰酸荧光素(FITC)和碘化丙啶(PI)染色后,代表性流式细胞术凋亡点图。(F)总凋亡细胞群体的定量分析。所有细胞实验均独立重复三次(n = 3)。数据以均值±标准差(SD)表示。统计学显著性通过与对照组比较确定。***P < 0.001。请点击此处查看该图的放大版本。
氯吡格雷引起的胃损伤与全身性炎症相关
将Sprague–Dawley大鼠随机分为两组(每组 n = 6):对照组和氯吡格雷处理组,后者接受每日灌胃给药。氯吡格雷的剂量和为期3天的给药方案依据既往报道的氯吡格雷诱导大鼠胃损伤模型确定16。给药3天后,采集胃组织进行苏木精-伊红(H&E)染色。组织病理学检查显示,与对照组相比,氯吡格雷处理组出现胃黏膜糜烂、水肿及炎性细胞浸润(图2A)。采用ELISA法检测血清炎症细胞因子水平。氯吡格雷处理组的血清白细胞介素(IL)-1β、IL-6和肿瘤坏死因子-α(TNF-α)水平均显著高于对照组(图2B–D)。这些结果表明,氯吡格雷处理可导致胃黏膜损伤并引发全身性炎症反应增强15,16。
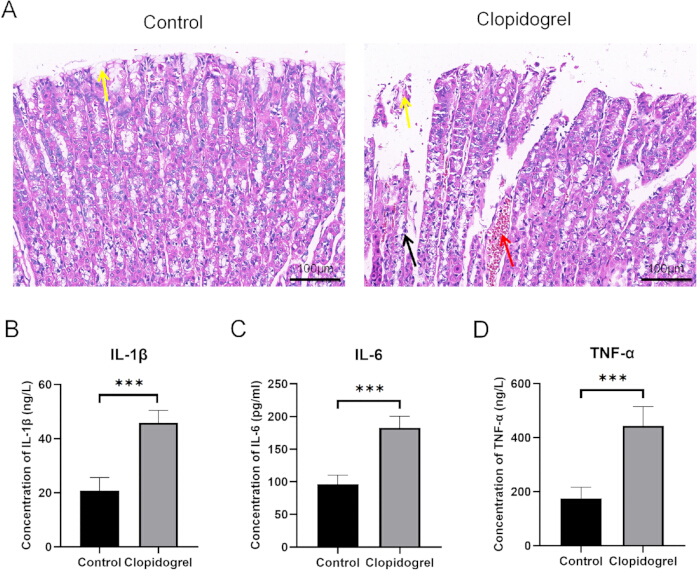
图2.氯吡格雷在大鼠中引起胃黏膜损伤并增加循环炎症细胞因子水平。(A)对照组和氯吡格雷处理的Sprague–Dawley大鼠胃黏膜的代表性苏木精-伊红(H&E)染色切片。组织学检查显示,对照组胃黏膜结构保持完整,而氯吡格雷处理组出现形态学改变。黄色箭头指示胃黏膜上皮细胞,红色箭头指示黏膜层内的局灶性充血,黑色箭头指示轻度炎性细胞浸润。原始放大倍数:×200;比例尺 = 100 µm。每组 n = 6 只动物。(B–D)采用酶联免疫吸附测定法(ELISA)检测血清中白细胞介素(IL)-1β、IL-6和肿瘤坏死因子-α(TNF-α)的浓度。数据以均值 ± 标准差表示;每组 n = 6 只动物。***P < 0.001,与对照组比较。 请点击此处查看该图的放大版本。
氯吡格雷改变大鼠胃黏膜中内质网应激和凋亡相关标志物
为研究与氯吡格雷诱导的胃损伤相关的分子变化,对胃组织切片进行了免疫组织化学染色。代表性图像显示,与对照组相比,氯吡格雷处理组中CHOP、ATF5和Bax的染色更强,而Bcl-2染色较弱(图3A)。IOD/面积的定量分析表明,氯吡格雷处理后CHOP、ATF5和Bax染色显著增强(图3B、C、E)。Bcl-2染色呈下降趋势,但差异未达到统计学显著性(图3D)。这些结果表明,氯吡格雷处理与大鼠胃黏膜中应激相关及凋亡相关蛋白的表达改变有关。免疫荧光分析显示,氯吡格雷处理组胃黏膜组织中CHOP和ATF5信号更强。定量分析证实CHOP(图4A和5A)和ATF5(图4B和5B)显著增加,而Bcl-2(图4C和5C)和Bax(图4D和5D)分别呈下降和上升趋势,但均未达到统计学显著性。综上所述,这些发现表明氯吡格雷处理与大鼠胃黏膜中内质网应激及凋亡相关标志物的表达改变相关。
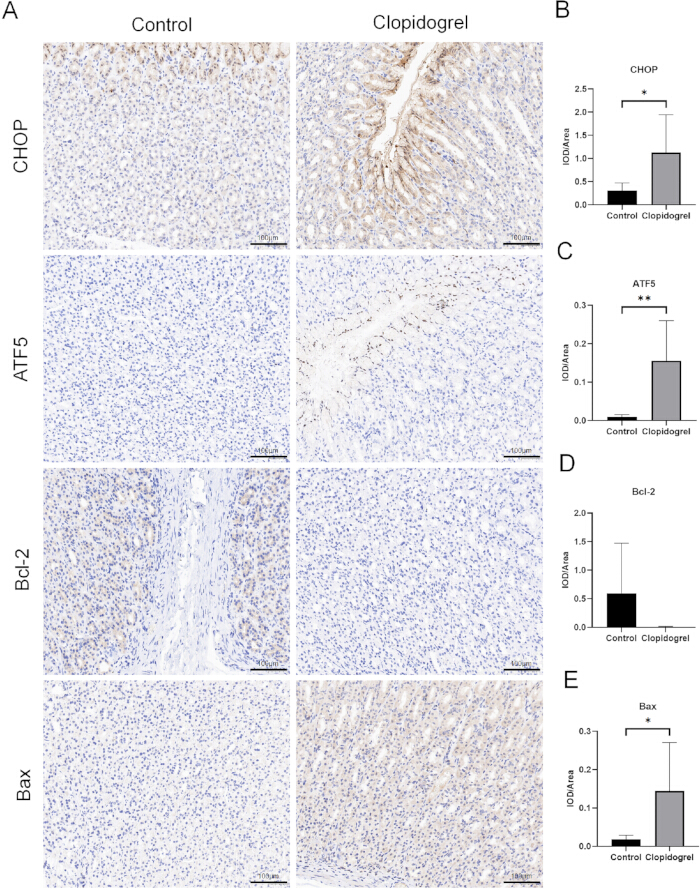
图3.胃组织中内质网应激及凋亡相关蛋白的免疫组织化学检测。(A)对照组和氯吡格雷处理的Sprague–Dawley大鼠胃黏膜组织中C/EBP同源蛋白(CHOP)、活化转录因子5(ATF5)、B细胞淋巴瘤-2(Bcl-2)和Bcl-2相关X蛋白(Bax)的代表性免疫组织化学染色图像。棕色染色表示阳性免疫反应性,细胞核经苏木精复染。所示图像代表所有分析样本,每组包含三只动物。原始放大倍数:×200;比例尺 = 100 µm。(B–E)CHOP、ATF5、Bcl-2和Bax的单位面积积分光密度(IOD/Area)定量分析。数据以均值 ± 标准差表示。*P < 0.05 与对照组比较,**P < 0.01 与对照组比较。请点击此处查看该图的放大版本。
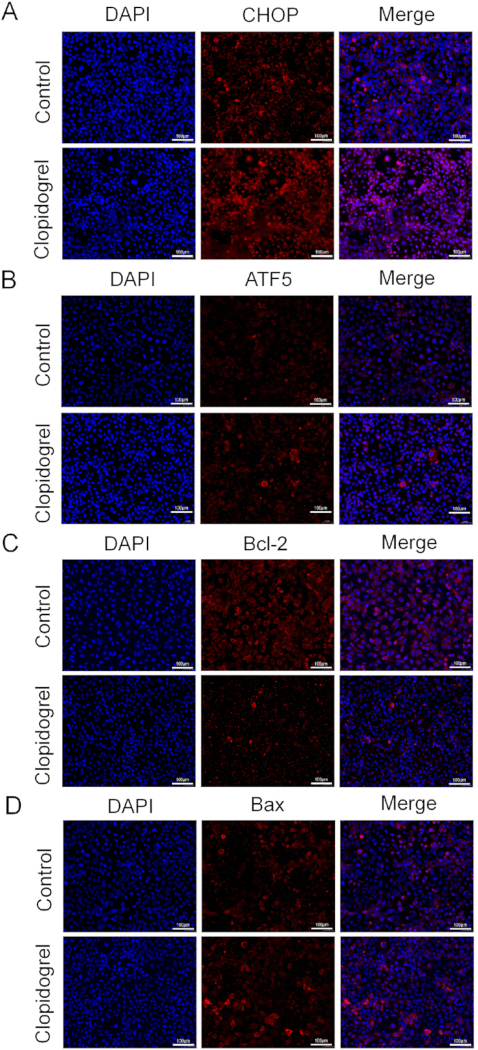
图4.胃组织中内质网应激及凋亡相关蛋白的免疫荧光检测。 典型免疫荧光图像显示了C/EBP同源蛋白(CHOP)、活化转录因子5(ATF5)、B细胞淋巴瘤2(Bcl-2)以及Bcl-2相关X蛋白(Bax)在对照组和氯吡格雷处理的Sprague–Dawley大鼠胃黏膜组织中的定位。细胞核用4′,6-二脒基-2-苯基吲哚(DAPI)复染(蓝色),阳性免疫荧光信号呈红色。合并图像显示于最右列。(A) CHOP。(B) ATF5。(C) Bcl-2。(D) Bax。原始放大倍数为×200;比例尺 = 100 µm。所示图像代表所有分析样本,每组n = 3只动物。请点击此处查看该图的高清版本。
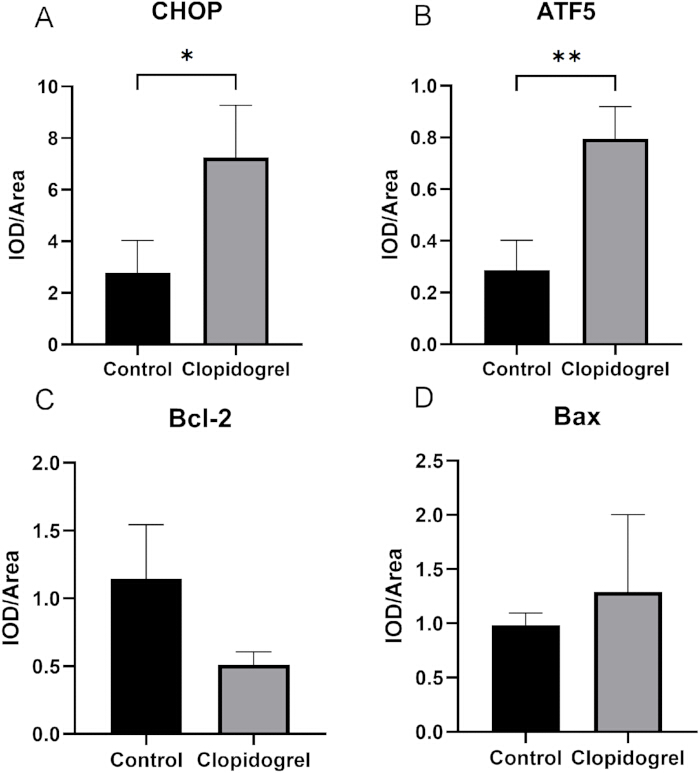
图5.胃组织中内质网应激及凋亡相关蛋白免疫荧光的定量分析。 (A–D)对照组和氯吡格雷处理的Sprague–Dawley大鼠胃黏膜组织中C/EBP同源蛋白(CHOP)、活化转录因子5(ATF5)、B细胞淋巴瘤2(Bcl-2)以及Bcl-2相关X蛋白(Bax)的单位面积积分光密度(IOD/Area)定量结果。每只动物每张组织切片随机选取三个无重叠的显微视野,使用图像分析软件进行分析,并取平均值用于统计学分析。数据以均值±标准差表示;每组n = 3只动物。*P < 0.05 与对照组比较,**P < 0.01 与对照组比较。请点击此处查看该图的放大版本。
氯吡格雷改变 GES-1 细胞和大鼠胃组织中内质网应激及凋亡相关基因和蛋白的表达
既往研究表明,内质网应激在细胞应激反应和细胞凋亡中发挥关键作用17,18。为评估氯吡格雷处理后内质网应激相关标志物的变化,在 GES-1 细胞中检测了 CHOP 和 ATF5 的表达水平。qRT-PCR 结果显示,氯吡格雷处理后 CHOP 和 ATF5 的 mRNA 表达升高。Western blot 分析进一步证实了 CHOP 和 ATF5 蛋白表达的增加(图 6A–E)。随后在 GES-1 细胞和大鼠胃组织中评估了凋亡相关蛋白的表达。与对照组相比,氯吡格雷处理组 Bax 表达升高,Bcl-2 表达降低,导致 Bax/Bcl-2 比值上升(图 6A–J)。这些表达模式在 GES-1 细胞和大鼠胃组织中均在 mRNA 和蛋白水平上一致观察到。综上所述,这些结果表明,在两种实验模型中,氯吡格雷处理均与内质网应激和凋亡相关标志物的表达改变相关。
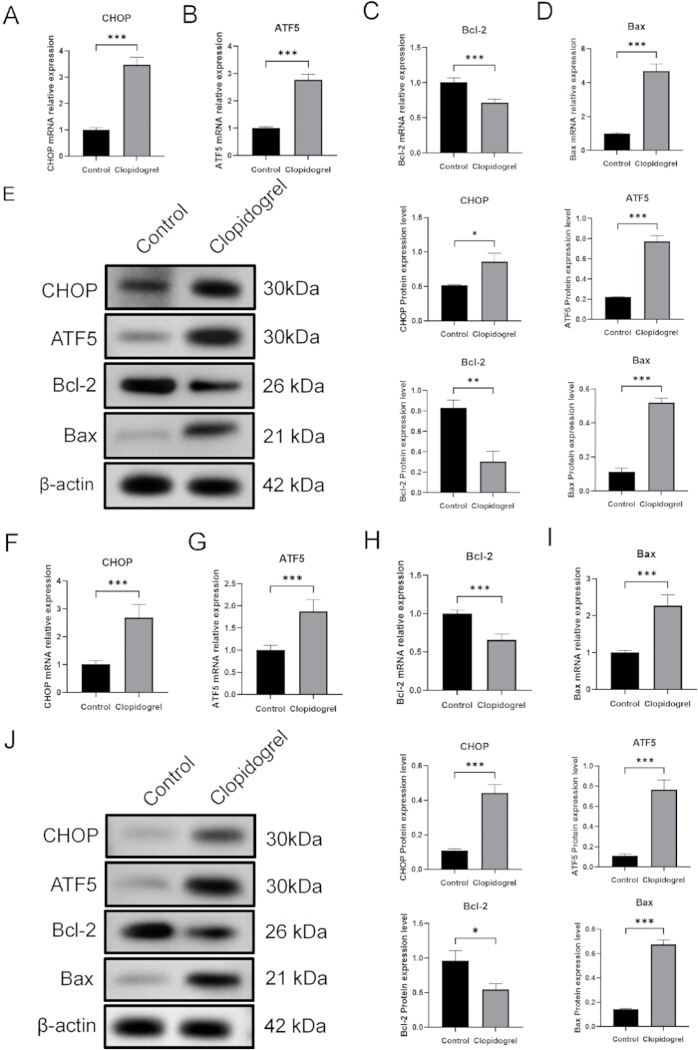
图6.氯吡格雷处理后 GES-1 细胞和大鼠胃组织中内质网应激及凋亡相关标志物的表达。(A–D)通过定量实时聚合酶链式反应(qRT-PCR)检测人胃上皮细胞系 GES-1 中 C/EBP 同源蛋白(CHOP)、活化转录因子 5(ATF5)、B 细胞淋巴瘤 2(Bcl-2)和 Bcl-2 相关 X 蛋白(Bax)的相对信使 RNA(mRNA)表达水平。(E)GES-1 细胞中 CHOP、ATF5、Bcl-2 和 Bax 蛋白表达的代表性 Western blot 图像及其相应的密度分析定量结果。蛋白表达水平以 β-actin 为内参进行标准化。细胞实验重复三次独立的生物学重复(n = 3)。(F–I)通过 qRT-PCR 检测大鼠胃组织中 CHOP、ATF5、Bcl-2 和 Bax 的相对 mRNA 表达水平。(J)大鼠胃组织中 CHOP、ATF5、Bcl-2 和 Bax 蛋白表达的代表性 Western blot 图像及其相应的密度分析定量结果。蛋白表达水平以 β-actin 为内参进行标准化。每组包含 n = 3 只动物。数据以均值 ± 标准差表示。统计学显著性通过与对照组比较确定。*P < 0.05,**P < 0.01,***P < 0.001。请点击此处查看该图的放大版本。
综合结果表明,氯吡格雷处理降低了GES-1细胞的活力,增加了细胞凋亡,改变了内质网应激和凋亡相关标志物的表达,并与大鼠胃黏膜损伤相关,同时伴有循环炎症细胞因子水平的升高。这些发现支持了本研究的假设,即氯吡格雷处理与胃黏膜损伤以及内质网应激和凋亡相关标志物的同步变化有关。
数据可用性:
本研究中生成或分析的所有数据均包含在本文及其补充材料中。用于RT-PCR的引物序列见补充表1。支持所有图示及各个图例面板的原始数据,包括原始实验数据集和源文件,均提供在随附的原始数据补充存档(压缩文件)中。
补充表1. 用于RT-PCR分析的引物序列。 本研究中用于GAPDH、CHOP、ATF5、Bcl-2和Bax基因RT-PCR分析的正向(F)和反向(R)引物序列均按5′–3′方向列出。请点击此处下载该文件。
讨论
氯吡格雷广泛用于心血管疾病的预防和治疗;然而,其临床应用与出血风险及胃肠道并发症相关,包括消化性溃疡、出血和穿孔19。因此,了解与氯吡格雷诱导的胃损伤相关的分子变化,对于改善这些不良反应的预防和管理具有重要意义。在本研究中,我们探讨了氯吡格雷对胃上皮细胞和大鼠胃组织的影响,并观察了细胞活力、细胞凋亡、炎症反应以及内质网应激和凋亡相关标志物表达的变化。这些结果表明,氯吡格雷诱导的胃黏膜损伤与内质网应激及凋亡相关标志物表达的改变有关。然而,由于未进行药理学挽救或基因功能缺失实验,这些发现尚不能确立内质网应激与细胞凋亡之间的因果关系。
既往研究表明,氯吡格雷可能损害胃黏膜修复并延缓胃溃疡愈合20。本研究中,CCK-8 检测显示氯吡格雷降低了 GES-1 细胞的存活率,流式细胞术显示细胞凋亡增加且细胞周期进程发生改变(图 1)。这些结果与既往报道的氯吡格雷诱导胃上皮细胞凋亡一致21。这些观察结果提示,氯吡格雷治疗与胃上皮细胞活力受损及凋亡增加相关,这可能促进胃黏膜损伤11。在大鼠模型中,H&E 染色显示氯吡格雷处理后出现胃黏膜损伤(图 2A)。血清中 IL-1β、IL-6 和 TNF-α 水平也显著升高(图 2B–D),表明存在与胃黏膜损伤相关的炎症反应22。此外,免疫组织化学和免疫荧光分析显示,与对照组相比,氯吡格雷处理大鼠胃组织中内质网应激和凋亡相关标志物的表达发生改变(图 3,图 4,图 5)。
CHOP、ATF5、Bcl-2 和 Bax 是细胞应激反应与凋亡的重要调控因子23,24,25,26。本研究中,氯吡格雷处理与 GES-1 细胞及大鼠胃组织中 CHOP 和 ATF5 表达升高以及 Bax 和 Bcl-2 表达改变相关(图6)。这些结果表明应激相关及凋亡相关标志物发生了同步变化。然而,本研究仅评估了表达水平的变化,尚未确定这些分子是否直接介导氯吡格雷诱导的胃黏膜损伤。同样,尽管观察到 Bax/Bcl-2 比值升高,但研究并未直接证实线粒体凋亡通路的激活。因此,这些发现应被解读为相关性结果,而非因果信号机制的证据。
本研究结合了一种 在体 在GES-1细胞中开展探索性直接暴露实验的大鼠模型,用于评估与氯吡格雷治疗相关的形态学和分子变化。 体内 该模型为胃黏膜损伤提供了主要证据,而GES-1细胞实验则为母体化合物直接暴露后细胞反应提供了支持性证据。结合组织病理学分析、炎性细胞因子检测、免疫组织化学、免疫荧光、qRT-PCR和Western blotting技术,可对胃损伤相关的形态学和分子变化进行系统评估。该实验方法可用于研究抗血小板药物对胃肠道的影响,并为未来探索潜在保护性干预措施提供参考。
应当承认本研究存在若干局限性。氯吡格雷是一种前体药物,需经肝脏代谢活化才能发挥作用,而将 GES-1 细胞直接暴露于母体化合物并不能再现这一过程,也无法完全反映临床药代动力学特征。此外,体外实验中使用的药物浓度相对较高,可能导致非特异性的细胞毒性。因此,GES-1 细胞实验结果应被视为在直接暴露条件下细胞反应的探索性证据。CCK-8 实验未设置细胞活力降低的阳性对照,限制了对检测性能的独立验证。本研究未探究导致内质网应激相关变化的上游机制,也未通过药理学抑制、基因敲低或基因敲除实验来确定内质网应激是否直接调控 Bax/Bcl-2 平衡及细胞凋亡。未来的研究应比较母体化合物与其活性代谢产物的作用,引入适当的代谢活化系统,并开展功能干预实验以阐明这些关系。此外,Annexin V-FITC/PI 检测中未包含公认的细胞凋亡诱导阳性对照。因此,尽管与溶剂对照组相比,氯吡格雷处理组中 Annexin V 阳性细胞比例升高,但尚未通过阳性对照条件独立验证该凋亡检测的技术可靠性。未来研究应在同一实验批次中加入细胞凋亡诱导剂(如星形孢菌素)作为阳性对照。
综上所述,口服氯吡格雷治疗可导致大鼠胃黏膜损伤,并伴随内质网应激和凋亡相关标志物的改变。在实验条件下,氯吡格雷原形化合物直接暴露也可降低GES-1细胞的活力,并改变相关分子标志物。然而,由于细胞模型无法模拟肝脏生物活化过程,且使用了相对较高的药物浓度,体外实验结果不能直接外推至临床暴露情况,且不能排除非特异性细胞毒性作用。总体而言,研究结果表明氯吡格雷诱导的胃黏膜损伤与内质网应激及凋亡相关标志物表达的改变有关,但仍需进一步的机制研究以明确其因果关系。
披露
利益冲突:
作者声明,他们不存在任何已知的相互竞争的财务利益或可能被认为影响本研究工作的个人关系。
致谢
本工作得到了“氯吡格雷诱导胃黏膜上皮细胞凋亡中CHOP/ATF5/Bcl-2信号通路的基础研究”项目(项目编号:2023BWKY009)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Annexin V-FITC/PI 凋亡检测试剂盒 | Elabscience | E-CK-A211 | 细胞凋亡检测试剂盒 |
| ATF5 抗体 | Proteintech | 67066-1-AP | 一抗 |
| BCA 蛋白定量检测试剂盒 | Solarbio | PC0020 | 蛋白浓度测定 |
| Bax 抗体 | Proteintech | 50599-1-AP | 一抗 |
| Bcl-2 抗体 | Proteintech | 26593-1-AP | 一抗 |
| β-actin 抗体 | Proteintech | 66009-1-Ig | 一抗 |
| 封闭缓冲液 | Beyotime | P0252 | Western blot 封闭溶液 |
| CCK-8 细胞计数试剂盒 | KeyGen Biotech | KGA317 | 细胞活力检测 |
| cDNA 合成试剂盒 | TransGen Biotech | AU341 | 含基因组 DNA 去除的第一链 cDNA 合成试剂盒 |
| 细胞周期检测试剂盒 | Lianke Biotechnology | CCS012 | 细胞周期分析试剂盒 |
| CHOP 抗体 | Proteintech | 15204-1-AP | 一抗 |
| 硫酸氢氯吡格雷(纯度 ≥99%) | Macklin | C874834 | 实验用药 |
| DAB 显色试剂盒 | Beyotime | P0201M | 免疫组化底物 |
| 二甲基亚砜(DMSO) | MedChemExpress | HY-Y0320C | 溶剂 |
| 增强型化学发光(ECL)试剂 | Meilunbio | MA0186 | 化学发光底物 |
| 胎牛血清(FBS) | Gibco | 10099-141 | 细胞培养添加剂 |
| GES-1 人胃上皮细胞系 | iCell Bioscience | iCell-h062 | 人胃上皮细胞系 |
| 苏木精-伊红(H&E)染色试剂盒 | Beyotime | C0105S | 组织学染色 |
| 辣根过氧化物酶(HRP)标记二抗 | Proteintech | RGAM001/RGAR001 | 二抗 |
| 过氧化氢溶液 | Absin | ABS9333-100mL | 内源性过氧化物酶封闭试剂 |
| IL-1β ELISA 试剂盒 | MEIMIAN | MM-0047R2 | 血清细胞因子检测 |
| IL-6 ELISA 试剂盒 | MEIMIAN | MM-0190R2 | 血清细胞因子检测 |
| 酶标仪 | 北京六一生物科技有限公司 | WD-2102B | 吸光度测定 |
| 青霉素-链霉素溶液 | Solarbio | P1400 | 抗生素溶液 |
| 磷酸盐缓冲液(PBS) | Servicebio | G4202-500ML | 1× PBS |
| 聚偏二氟乙烯(PVDF)膜 | Millipore | IPVH00010 | Western blot 转膜膜 |
| 一抗稀释液 | Beyotime | P0023A | 抗体稀释液 |
| 蛋白分子量标准 | Yeasen | WJ103 | 预染蛋白 Marker |
| 定量实时 PCR 预混液(SYBR Green) | CWBio | CW3008 | qPCR 试剂 |
| 放射免疫沉淀分析(RIPA)裂解缓冲液 | Solarbio | R0010 | 蛋白提取缓冲液 |
| RNase A | Lianke Biotechnology | CCS012 | 细胞周期分析试剂 |
| RPMI-1640 培养基 | Servicebio | G4535-500ML | 基础细胞培养基 |
| SD 大鼠 | 杭州紫源实验动物科技有限公司 | N/A | SPF 级 |
| TNF-α ELISA 试剂盒 | MEIMIAN | MM-0180R2 | 血清细胞因子检测 |
| 总 RNA 提取试剂盒 | TransGen Biotech | ER501-01 | RNA 提取试剂盒 |
| 胰蛋白酶-EDTA 溶液 | Solarbio | T1300 | 细胞消化试剂 |
参考文献
- Mills JC, Shivdasani RA. Gastric epithelial stem cells. Gastroenterology. 2011;140(2):412-424.
- Zhou CB, et al. The role of pyroptosis in gastrointestinal cancer and immune responses to intestinal microbial infection. Biochim Biophys Acta Rev Cancer. 2019;1872(1):1-10.
- Boltin D, Niv Y. Pharmacological and alimentary alteration of the gastric barrier. Best Pract Res Clin Gastroenterol. 2014;28(6):981-994.
- Kwon DA, et al. Protective effects of a standardized extract (HemoHIM) using indomethacin- and ethanol/HCl-induced gastric mucosal injury models. Pharm Biol. 2019;57(1):543-549.
- Guo XZ, et al. Effect of Bax, Bcl-2 and Bcl-xL on regulating apoptosis in tissues of normal liver and hepatocellular carcinoma. World J Gastroenterol. 2002;8(6):1059-1062.
- Gomi A, et al. Effect of Bifidobacterium bifidum BF-1 on gastric protection and mucin production in an acute gastric injury rat model. J Dairy Sci. 2013;96(2):832-837.
- Chiou SK, et al. Suppression of growth arrest and DNA damage-inducible 45alpha expression confers resistance to sulindac- and indomethacin-induced gastric mucosal injury. J Pharmacol Exp Ther. 2010;334(3):693-702.
- Chen X, et al. Endoplasmic reticulum stress: molecular mechanism and therapeutic targets. Signal Transduct Target Ther. 2023;8(1):352.
- Lian X, et al. ATF5-regulated mitochondrial unfolded protein response attenuates neuronal damage in epileptic rats by reducing endoplasmic reticulum stress through mitochondrial ROS. Neurochem Res. 2024;49(2):388-401.
- He C, et al. Progression of gastrointestinal injury during antiplatelet therapy after percutaneous coronary intervention: a secondary analysis of the OPT-PEACE randomized clinical trial. JAMA Netw Open. 2023;6(11):e2343219.
- Zongdan J, et al. The mechanism of miR-363-3p/DUSP10 signaling pathway involved in the gastric mucosal injury induced by clopidogrel. Toxicol Mech Methods. 2021;31(2):150-158.
- Chan FK, et al. Clopidogrel versus aspirin and esomeprazole to prevent recurrent ulcer bleeding. N Engl J Med. 2005;352(3):238-244.
- Taha AS, et al. Upper gastrointestinal mucosal abnormalities and blood loss complicating low-dose aspirin and antithrombotic therapy. Aliment Pharmacol Ther. 2006;23(4):489-495.
- Wu HL, et al. Increased endoplasmic reticulum stress response is involved in clopidogrel-induced apoptosis of gastric epithelial cells. PLoS One. 2013;8(9):e74381.
- Forsgard RA, et al. Intestinal permeability to iohexol as an in vivo marker of chemotherapy-induced gastrointestinal toxicity in Sprague-Dawley rats. Cancer Chemother Pharmacol. 2016;78(4):863-874.
- Wu H, et al. Clopidogrel-induced gastric injury in rats is attenuated by stable gastric pentadecapeptide BPC 157. Drug Des Devel Ther. 2020;14:5599-5610.
- Zhu XM, et al. The involvement of endoplasmic reticulum stress response in immune dysfunction of dendritic cells after severe thermal injury in mice. Oncotarget. 2017;8(6):9035-9052.
- Oakes SA, Papa FR. The role of endoplasmic reticulum stress in human pathology. Annu Rev Pathol. 2015;10:173-194.
- Abrignani MG, et al. Gastroprotection in patients on antiplatelet and/or anticoagulant therapy: a position paper of the National Association of Hospital Cardiologists (ANMCO) and the Italian Association of Hospital Gastroenterologists and Endoscopists (AIGO). Eur J Intern Med. 2021;85:1-13.
- Takahashi K, et al. Influence of antiplatelet drugs on gastric ulcer healing after endoscopic submucosal dissection in patients with early gastric cancer. DEN Open. 2025;5(1).
- Wu H, et al. Role of MKP-5-p38/MAPK pathway in clopidogrel-induced gastric mucosal epithelial cells apoptosis and tight junction dysfunction. Am J Transl Res. 2020;12(5):1741-1753.
- Fu X, et al. Protective effect of teprenone on gastric mucosal injury induced by dual antiplatelet therapy in rats. Am J Transl Res. 2021;13(4):2702-2709.
- Oyadomari S, Mori M. Roles of CHOP/GADD153 in endoplasmic reticulum stress. Cell Death Differ. 2004;11(4):381-389.
- Sears TK, Angelastro JM. The transcription factor ATF5: role in cellular differentiation, stress responses, and cancer. Oncotarget. 2017;8(48):84595-84609.
- Zhang Y, et al. Puerarin attenuates neurological deficits via Bcl-2/Bax/cleaved caspase-3 and Sirt3/SOD2 apoptotic pathways in subarachnoid hemorrhage mice. Biomed Pharmacother. 2019;109:726-733.
- Manas A, et al. Immunohistochemical detection of the pro-apoptotic BaxΔ2 protein in human tissues. Histochem Cell Biol. 2020;154(1):41-53.
重印与许可
本文已发表
视频即将推出