本研究探讨补肾健脾清肠方及其拆方对大鼠结肠炎的治疗作用,并通过多组学分析揭示其靶向肠道菌群-胆汁酸代谢轴的调控机制。
本文内容
摘要
摘要
由于传统中医药(TCM)具有经过验证的疗效和良好的安全性,其在溃疡性结肠炎(UC)管理中被广泛应用。慢性难治性UC的核心病机涉及脾肾亏虚合并肠道湿热积聚,而补肾健脾清肠方(BJQF)是针对该证候临床验证有效的复方制剂。本研究旨在探讨BJQF及其三种拆方子方(补肾方,BSF;健脾方,JPF;清肠方,QCF)对葡聚糖硫酸钠(DSS)诱导的大鼠结肠炎的治疗作用,并表征其对粪便胆汁酸(BA)谱和肠道微生物群落的调节效应。通过16S rRNA基因测序和液相色谱-串联质谱法(LC-MS/MS)定量分析DSS诱导UC大鼠的粪便细菌组成及BA浓度,并分析肠道菌群与BA代谢之间的潜在关联。结果显示,BJQF显著改善了UC模型大鼠的结肠炎症和溃疡。结肠炎大鼠与健康对照组之间在细菌多样性和组成上表现出明显差异。差异菌群与胆汁酸之间的关联以23-脱氧胆酸(23-DCA)为核心代谢节点。值得注意的是,牛磺石胆酸-3-硫酸盐(TLCA-3S)和石胆酸-3-硫酸盐(LCA-3S)可能作为潜在的疗效生物标志物。其中,JPF子方的疗效最接近完整BJQF。BJQF及其拆方制剂的给药可有效缓解UC大鼠的组织病理损伤、炎症反应、肠道菌群失调以及胆汁酸代谢紊乱,为中医药复方治疗提供了机制依据。
引言
溃疡性结肠炎(UC)是炎症性肠病(IBD)的主要类型之一,其特征是局限于结直肠黏膜的慢性、持续性非特异性炎症。UC 患者临床表现为腹泻、腹痛、非故意体重下降以及血便或脓性粪便,严重影响生活质量。UC 的发病机制涉及环境、遗传、微生物及免疫等多种因素。UC 通常在肠道菌群失衡后发生,而这种菌群失调可显著加速 UC 的进展1。越来越多的证据表明,肠道菌群–胆汁酸(BA)代谢轴是 UC 发病过程中的核心调控模块。胆汁酸代谢紊乱已被公认为 IBD 肠道黏膜损伤的重要标志。次级胆汁酸完全由肠道菌群将宿主来源的初级胆汁酸经生物转化生成,该过程依赖于如 7α-脱羟基酶等关键微生物酶的表达。因此,粪便中的胆汁酸谱可作为理想的生物学功能指标,用于反映中药治疗所诱导的菌群重塑情况。
这些次级胆汁酸作为关键的信号分子,在维持肠道免疫稳态、黏膜屏障完整性和上皮细胞存活中发挥重要作用2。该轴的异常,包括由微生物失衡引起的次级胆汁酸缺乏以及胆汁酸信号传导紊乱,可直接触发肠道促炎反应和屏障功能障碍,使其成为溃疡性结肠炎(UC)干预的潜在治疗靶点。肠道微生物群在UC的发生发展中起关键作用,并通过发酵反应产生的代谢产物(如胆汁酸)影响宿主。肠道微生物群和胆汁酸代谢的异常改变与UC密切相关3。由于肠道微生物群介导次级胆汁酸的生成,微生物组成和丰度的变化可能破坏胆汁酸代谢,进而促进炎症性肠病(IBD)的发展4。
由于中药在长期治疗中具有有效性和安全性,可作为抗炎或免疫抑制剂的替代或辅助疗法,因此已被广泛用于溃疡性结肠炎(UC)的管理5。温补脾肾、清肠化湿是治疗UC的核心治则6。根据中医理论,慢性UC的核心病机为脾肾亏虚(扶正,即增强正气)与肠道湿热蕴结(祛邪,即消除致病因素)并存,二者协同应用是实现UC有效治疗的关键。
既往实验研究已证实,补肾祛邪方(BJQF)的两个核心子方——健脾方(JPF)与清肠方(QCF),在治疗溃疡性结肠炎(UC)中具有显著疗效。JPF通过NF-κB/HIF-1α信号通路改善黏膜炎症及肠上皮屏障功能障碍7,而QCF则可恢复肠道菌群-代谢稳态、保护肠上皮屏障,并调节NLRP3/IL-1β通路8。为解析扶正与祛邪功能模块对肠道菌群-胆汁酸轴(gut microbiota–BA axis)的特异性生物学贡献,本研究设计包含完整的BJQF全方及三个拆分后的子方:补肾方(BSF,补肾健脾,纯扶正)、健脾方(JPF,健脾益气,核心扶正)和清肠方(QCF,清除肠道湿热,纯祛邪)。该实验设计有助于解析各功能模块在UC治疗中的协同作用与独立效应,对于推动中医药复方制剂向循证医学治疗转化具有重要意义。
本研究的假设是,补筋祛风方(BJQF)通过重塑肠道菌群组成和恢复正常胆汁酸代谢来改善葡聚糖硫酸钠(DSS)诱导的结肠炎,其中健脾模块是调控肠道菌群-胆汁酸轴的核心功能组分。本研究旨在系统解析BJQF的“组分-模块”作用机制。通过评估全方及其对应的靶向生理子模块,研究试图揭示该中药复方的生物学协同作用,并为通过调控肠道菌群-胆汁酸代谢轴治疗炎症性肠病(IBD)提供现代药理学依据。本文系统比较了完整的BJQF及其三个拆分后的功能方剂对DSS诱导的溃疡性结肠炎(UC)的治疗效果。鉴于肠道菌群-胆汁酸代谢轴在UC发病机制中的关键作用,本研究深入剖析BJQF的组分-模块协同机制,明确补肾、健脾和清肠模块各自的特异性调控贡献,并表征各模块对肠道菌群结构和粪便胆汁酸谱的重塑效应。核心目标在于揭示BJQF缓解UC的现代生物学基础,鉴定中药干预的关键微生物-代谢靶点,为复方中药制剂在IBD中的合理应用及转化研究提供机制参考。
方案
选取44只健康的雄性Sprague-Dawley大鼠用于本研究,体重为200 ± 20 g。所有动物均饲养在特定病原体阴性环境中,可自由摄取标准颗粒饲料和水,并在实验前适应性饲养1周。所有动物福利和实验操作均遵循中国科学技术部发布的《实验动物管理和使用指南》。本研究经南京中医药大学动物伦理委员会批准,批准号为2023DW-029-01。动物来源及饲养用品的详细信息见材料表。
中药方剂制备
补肾健脾清肠方(BJQF)由九味中药按预设剂量配伍而成:15 g 黄芪根,10 克炒制 白术,10 g 黄芩根,4 g 黄连,10 g 地榆,6 g 木香,5 g 甘草根,15 g 补骨脂,以及15 g 益智仁所有生药原料用生理盐水浸泡1 h,随后煎煮1 h,得到最终体积为1500 mL的药液。三种拆方组方采用相同的煎煮方法制备。补肾方(BSF)包含15 g 补骨脂 和 15 g 益智仁,煎煮至最终体积为500 mL。健脾方(JPF)由15 g 黄芪,10 g 炒制 白术,以及 5 g 甘草根,最终煎液体积为500 mL。清肠方(QCF)由10 g 黄芩根,4 g 黄连,10 g 地榆,以及 6 g 木香,同时定容至500 mL。所有草药材料的完整生产厂家信息及批号均提供于 材料表. 正文始终采用通用草药名称,生产厂商的具体信息仅限于 材料清单.
结肠炎诱导与实验分组
将大鼠随机分为六组实验组:对照组(n = 6):正常饮水 + 胃内注射生理盐水。UC模型组(n = 6):3.5%(wt/vol)DSS饮水 + 胃内注射生理盐水。BJQF治疗组(n = 8):3.5% DSS饮水 + 胃内注射BJQF(0.6 g/kg体重)。BSF治疗组(n = 8):3.5% DSS饮水 + 胃内注射BSF(0.6 g/kg体重)。JPF治疗组(n = 8):3.5% DSS饮水 + 胃内注射JPF(0.6 g/kg体重)。QCF治疗组(n = 8):3.5% DSS饮水 + 胃内注射QCF(0.6 g/kg体重)。
通过在饮水中添加3.5%的DSS连续处理10天以诱导实验性结肠炎;对照组给予不含DSS的蒸馏水。各中药方剂的给药剂量(0.6 g/kg)通过体表面积归一化法(Meeh-Rubner公式)从临床有效成人剂量换算为大鼠等效剂量。由于本研究为以方剂比较为导向的探索性研究,故仅采用单一临床等效剂量。自第1天起,每日一次经口灌胃给予各中药方剂。对照组和模型组给予等体积的生理盐水(10 mL/kg)。第11天通过颈椎脱位法处死大鼠。采集血清、粪便样本及结肠组织用于分析。每日测量体重。所有组别初始设计每组n = 8。在DSS诱导期间,对照组和模型组各有2只大鼠因严重结肠炎死亡,导致这两个组的最终n = 6。事后功效分析证实,最终样本量对所有主要结局指标(组织学评分、关键细胞因子、体重)均达到≥0.8的统计功效,符合标准统计学要求。
炎症细胞因子浓度的测定
使用商品化 ELISA 试剂盒对血清中 IL-1β、IL-10 和 TNF-α 的水平进行定量,严格遵循制造商提供的操作规程。采用自动酶标仪读取光密度值。统计分析:采用单因素方差分析(one-way ANOVA)检测各组间的总体差异,随后进行事后两两比较,并应用 Benjamini-Hochberg 方法进行错误发现率(FDR)校正,符合组学数据分析的标准流程。
组织病理学评估
结肠组织标本经10%甲醛固定、脱水、石蜡包埋、切片,并用苏木精和伊红(HE)染色。组织学评分采用经验证的实验性结肠炎半定量评分标准——改良Cooper结肠炎评分系统9。评分涵盖四个维度:炎症细胞浸润、隐窝结构损伤、黏膜水肿和溃疡范围(总分0–12分)。盲法声明:所有切片在评分前均以数字编码匿名处理。两名病理学家在不知分组信息的情况下独立对每张切片进行评分;最终得分为两者平均值,若评分差异≥2分,则由第三位高级病理学家裁定。组间比较采用单因素方差分析(ANOVA),并使用Benjamini-Hochberg法对多重比较进行FDR校正,与其他表型数据的分析方法一致。
样品采集与DNA提取
新鲜的大鼠粪便样品收集于1 mL无菌离心管中,立即在−80 °C下冷冻,并用干冰运输。使用DNA提取试剂盒,按照制造商说明书从250 mg粪便中提取粪便细菌基因组DNA。通过分光光度计测定DNA浓度,并通过0.8%琼脂糖凝胶电泳检测其完整性。在提取和定量过程中均设置了阴性缓冲液对照。提取的DNA在使用前储存于-20 °C。
16S rRNA基因测序与生物信息学分析
PCR扩增针对16S rRNA基因的V3–V4高变区(338F–806R)。PCR产物经纯化后,在Illumina MiSeq平台上进行2 × 300 bp双端测序。经过质量过滤后,每个样本平均获得68,450 ± 28,297条高质量清洁序列(最多158,361条,最少28,294条)。序列在97%相似度水平下聚类为OTUs。计算稀释曲线、丰富度指数和多样性指数。使用RDP分类器进行分类学注释。在R中基于UniFrac距离进行主坐标分析(PCoA)和层次聚类,以评估菌群相似性。在Galaxy平台上进行LEfSe分析以鉴定丰度差异显著的分类群(阈值:LDA > 3,Kruskal-Wallis p < 0.05,事后Wilcoxon p < 0.05)。对于微生物丰度的多重比较,采用Benjamini-Hochberg法进行FDR校正;p(FDR) < 0.05被视为具有统计学显著性。
粪便胆汁酸的液相色谱-串联质谱分析
取20 mg粪便样品,用200 µL甲醇进行匀浆。离心后,将上清液浓缩,重新溶解于100 µL 50%水-甲醇溶液中,并通过液相色谱-串联质谱(LC-MS/MS)进行分析。检测系统包括Shimadzu超高效液相色谱(UPLC)系统和Applied Biosystems 6500 QTRAP三重四极杆质谱(MS/MS)系统。采用胆汁酸标准品的校准曲线进行定性和定量分析。使用主成分分析(PCA)评估代谢谱的分离情况。差异性胆汁酸的定义标准为:VIP ≥ 1,且变化倍数 ≥ 2 或 ≤ 0.5。采用小提琴图(violin plots)可视化差异性胆汁酸的分布。对于多重比较,采用Benjamini-Hochberg方法进行错误发现率(FDR)校正,与微生物数据分析保持一致。
统计学分析
使用 R 中的 cor 函数计算 Spearman 相关性。使用 WGCNA R 软件包中的 corPvalueStudent 函数检验相关性的显著性。表型数据以均值 ± 标准差(Mean ± SD)表示。对于所有多组比较(表型、微生物、代谢),采用单因素方差分析(one-way ANOVA),并在事后检验中应用 Benjamini-Hochberg FDR 校正。校正后的 p < 0.05 被认为具有统计学显著性。所有分析均在 GraphPad Prism 7.00 和 R 4.2.0 中进行。事后样本量功效计算使用 G*Power 3.1 完成。
结果
中药复方改善DSS诱导结肠炎的炎症和结肠损伤
首先通过体重变化评估中药复方的保护作用。与对照组相比,溃疡性结肠炎(UC)模型组持续出现体重下降。BJQF、BSF、JPF和QCF均显著减轻了DSS诱导的体重下降(图1A)。HE染色显示,对照组结肠黏膜完整,无炎症表现;而模型组结肠组织则出现严重的上皮结构紊乱、隐窝破坏以及黏膜层和黏膜下层广泛的炎性细胞浸润。所有中药治疗均促进了组织修复并减轻了炎症反应,其中BJQF的改善效果最为显著(图1B–C)。定量组织学评分证实,中药复方显著改善了组织病理学损伤(p < 0.05)。
BJQF、BSF、JPF 和 QCF 均在不同程度上降低了血清 IL-1β(图 1D)和 TNF-α(图 1F)水平。各治疗组的 IL-10 水平未恢复至对照组水平,但显著高于模型组(图 1E)。这些结果表明,中药方剂可抑制 DSS 诱导的肠道炎症。
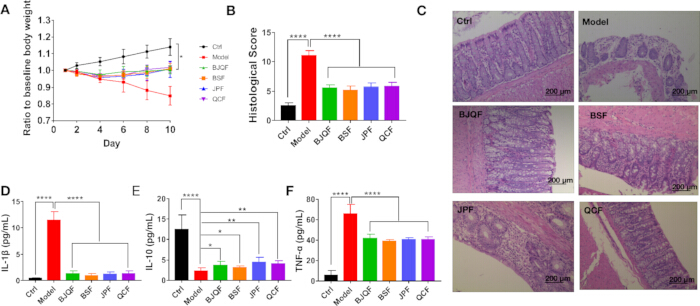
图1:BJQF及其拆方组方对DSS诱导的大鼠结肠炎的治疗作用。(A)实验期间各组大鼠体重与基线体重比值的动态变化(持续10天);(B)各实验组结肠组织的定量组织学评分;(C)各组结肠组织的代表性苏木精-伊红(HE)染色切片(比例尺 = 200 µm);(D–F)各组血清中炎症细胞因子浓度:(D)IL-1β,(E)IL-10,(F)TNF-α。数据以均值 ± 标准差表示。*p < 0.05, **p < 0.01,****p < 0.0001。请点击此处查看该图的放大版本。
中药治疗重塑溃疡性结肠炎大鼠肠道微生物群落结构
经过质量过滤后,每个样本平均获得 68,450 ± 28,297 条高质量清洁序列。中药治疗改变了细菌的 α 多样性(Chao1 指数,图 2A)。BJQF 显著降低了溃疡性结肠炎大鼠升高的 α 多样性(p(FDR) < 0.05)。在各拆方组中,JPF 显著降低了多样性(p(FDR) < 0.05),而 BSF 和 QCF 无显著影响。在 β 多样性方面,基于未加权 UniFrac 距离的主坐标分析(PCoA)显示各组之间存在明显分离,表明中药治疗重塑了整体微生物组成(图 2B)。层次聚类进一步证实模型组与治疗组之间具有明显的聚类差异(图 2C)。
共检测到13个门、22个纲、36个目、65个科和158个属。在门水平上,厚壁菌门(Firmicutes)、拟杆菌门(Bacteroidetes)、放线菌门(Actinobacteria)、疣微菌门(Verrucomicrobia)和变形菌门(Proteobacteria)占主导地位(总丰度 >99%,图2D)。厚壁菌门在对照组中占优势(86.98%),在溃疡性结肠炎(UC)模型中显著降低(p(FDR) < 0.05),经中药(TCM)干预后恢复(p(FDR) < 0.05),其中BJQF恢复效果最强。拟杆菌门和变形菌门在UC模型中显著升高,经所有中药复方干预后均被逆转。在属水平(丰度 >1%,图2E),乳杆菌属(Lactobacillus)在对照组中占主导(59.77%),在UC模型中显著减少(3.57%,p(FDR) < 0.05),经中药干预后恢复(p(FDR) < 0.05),其中BJQF和JPF对乳杆菌属的恢复作用更强。UC还导致拟杆菌属(Bacteroides)、瘤胃球菌属_2(Ruminococcus_2)、双歧杆菌属(Bifidobacterium)和布劳特氏菌属(Blautia)增加,而肠杆菌属(Enterorhabdus)和棒状杆菌属_1(Corynebacterium_1)减少——这些变化大多被中药干预逆转。总体而言,所有复方均改善了与UC相关的菌群失调,其中BJQF和JPF效果最为显著。
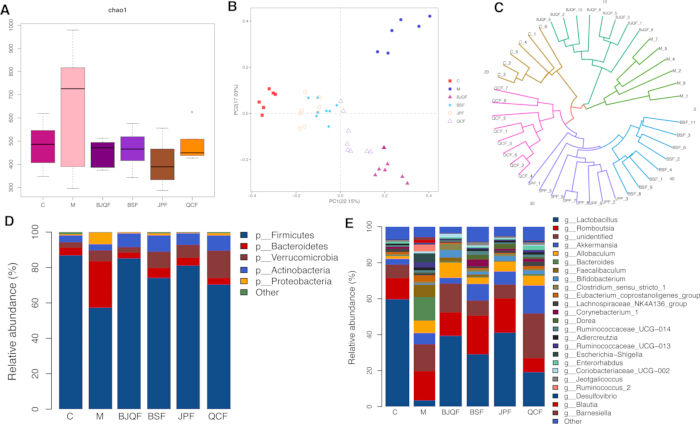
图2: 各组肠道微生物群的组成。 (A)采用Chao 1指数评估的细菌α多样性(p(FDR) < 0.05 vs Model);(B)基于不同组别OTU组成与丰度的UniFrac距离主坐标分析(PCoA);(C)基于距离矩阵的层次聚类分析;(D)门水平的相对丰度(p(FDR) < 0.05 vs Model);以及(E)属水平的相对丰度(p(FDR) < 0.05 vs Model)。 请点击此处查看该图的高清版本。
LEfSe 鉴定与溃疡性结肠炎相关及与中医证候相关的差异性微生物类群
LEfSe 分析用于鉴定在不同组间差异富集的分类群(LDA > 3, p < 0.05, 图3)。UC富集的分类群包括 拟杆菌科、拟杆菌属、梭菌目、梭菌纲、拟杆菌纲、拟杆菌目、拟杆菌门、粪杆菌属和瘤胃球菌科 主要来自 拟杆菌门 和 厚壁菌门经中医药治疗后,大多数富含BJQF的分类群属于 厚壁菌门,仅有 双歧杆菌科, 双歧杆菌目,以及 双歧杆菌属 从 放线菌门. BSF富集的分类群也主要是 厚壁菌门富含JPF的分类群,例如 Turicibacter 和 多雷氏菌属 属于 厚壁菌门QCF 表现出最强的富集效果 疣微菌门 (包括 Akkermansia),表明该门类对QCF干预具有高度敏感性。总体而言 厚壁菌门 对BJQF、BSF和JPF响应最显著的门。
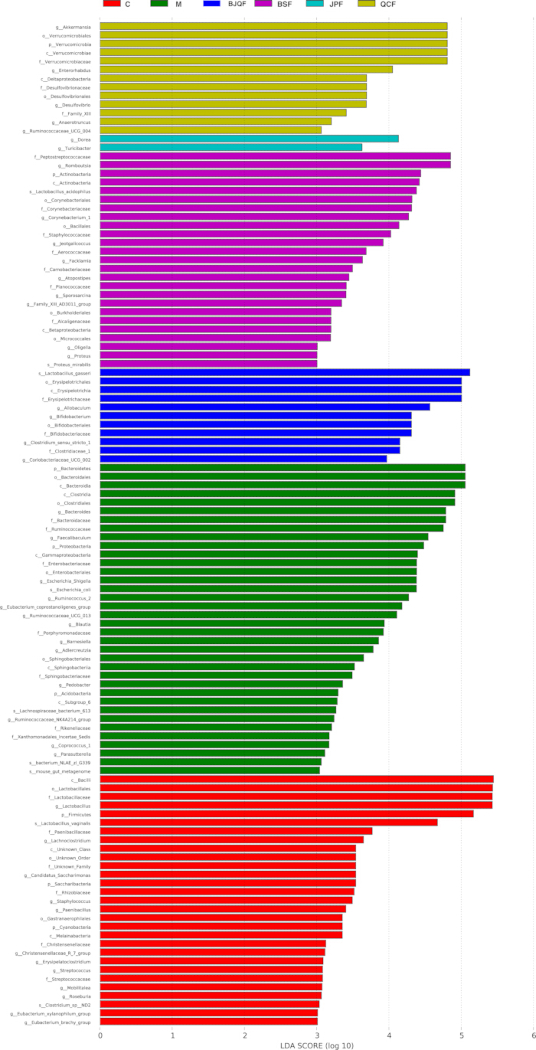
图3: LEfSe 鉴定了不同组间差异丰度最显著的 OTU。 各类群之间(Kruskal-Wallis 检验)以及亚类群之间(Wilcoxon 检验)的 LDA 分值差异具有统计学意义(p < 0.05)。差异类群的判定基于 LDA 阈值分值 > 3 且统计学显著性水平为 0.05。(p:门;c:纲;o:目;f:科;g:属)。请点击此处查看该图的放大版本。
中药干预可使溃疡性结肠炎大鼠的粪便胆汁酸谱趋于正常
鉴于炎症性肠病(IBD)中存在胆汁酸(BA)吸收不良,作者采用液相色谱-串联质谱法(LC-MS/MS)对粪便中的胆汁酸进行定量分析。主成分分析(PCA)显示对照组与模型组之间存在明显分离,而所有治疗组均更接近对照组,提示胆汁酸代谢部分恢复正常(图4A)。模型组中变化最显著的胆汁酸表现为LCA-3S升高和GDCA降低(图4B)。治疗后,各中药组中上调最显著的胆汁酸分别为ILCA(BJQF)、GCDCA(BSF)、DLCA(JPF)和GCDCA(QCF);下调最显著的胆汁酸分别为TLCA-3S(BJQF)、LCA-3S(BSF)、LCA-3S(JPF)和TLCA-3S(QCF)(图4C–F)。小提琴图展示了各组间共有的差异性胆汁酸(图5)。值得注意的是,所有中药方剂均使其大鼠体内的23-DCA、3-oxo-DCA和DLCA水平升高,并使HCA、LCA-3S、TCA和TLCA-3S水平降低。
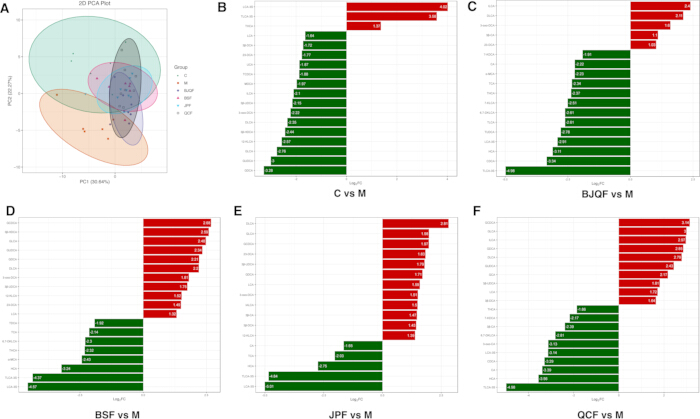
图4: 中医复方调节DSS诱导的UC模型中胆汁酸紊乱。 (A)对照组、模型组、BJQF组、BSF组、JPF组和QCF组胆汁酸的PCA图。 (B)模型组相对于对照组的倍数变化柱状图。 (C)BJQF组相对于模型组的倍数变化柱状图。 (D)BSF组相对于模型组的倍数变化柱状图。 (E)JPF组相对于模型组的倍数变化柱状图,以及(F)QCF组相对于模型组的倍数变化柱状图。 请点击此处查看该图的放大版本。
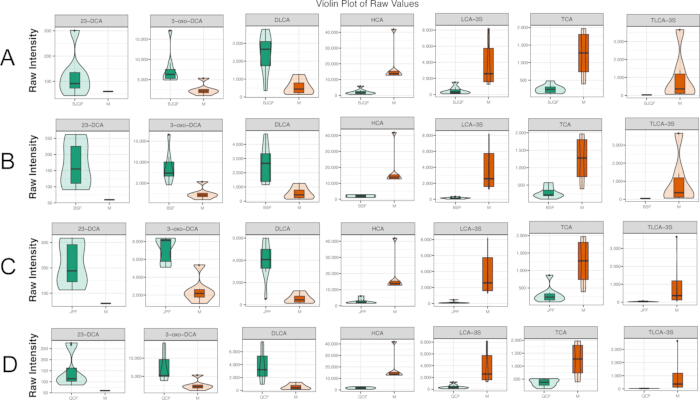
图5: 各比较组中差异性胆汁酸的 violin 图。 (A)BJQF 组与模型组之间的差异性胆汁酸。(B)BSF 组与模型组之间的差异性胆汁酸。(C)JPF 组与模型组之间的差异性胆汁酸,以及(D)QCF 组与模型组之间的差异性胆汁酸。 请点击此处查看该图的放大版本。
粪便胆汁酸与肠道微生物丰度之间的相关性
在差异门水平微生物与差异胆汁酸之间进行了斯皮尔曼相关性分析(图 6A–F,图 7A–D)。弦图展示了相关系数 |r| ≥ 0.8 的关联关系(图 6B、6D、6F)。在模型组与对照组的比较中,23-DCA 与 Saccharibacteria 和厚壁菌门呈正相关,与变形菌门和拟杆菌门呈负相关(图 6B)。在 BJQF 组与模型组的比较中,变形菌门与 TLCA-3S、LCA-3S、TCA、α-MCA、6,7-DKLCA、HCA、CDCA 和 THCA 相关(图 6D)。在 BSF 组与模型组的比较中,变形菌门与 TDCA、6,7-DKLCA 和 LCA-3S 呈正相关;Saccharibacteria 与 GUDCA 和 23-DCA 呈正相关(图 6F)。
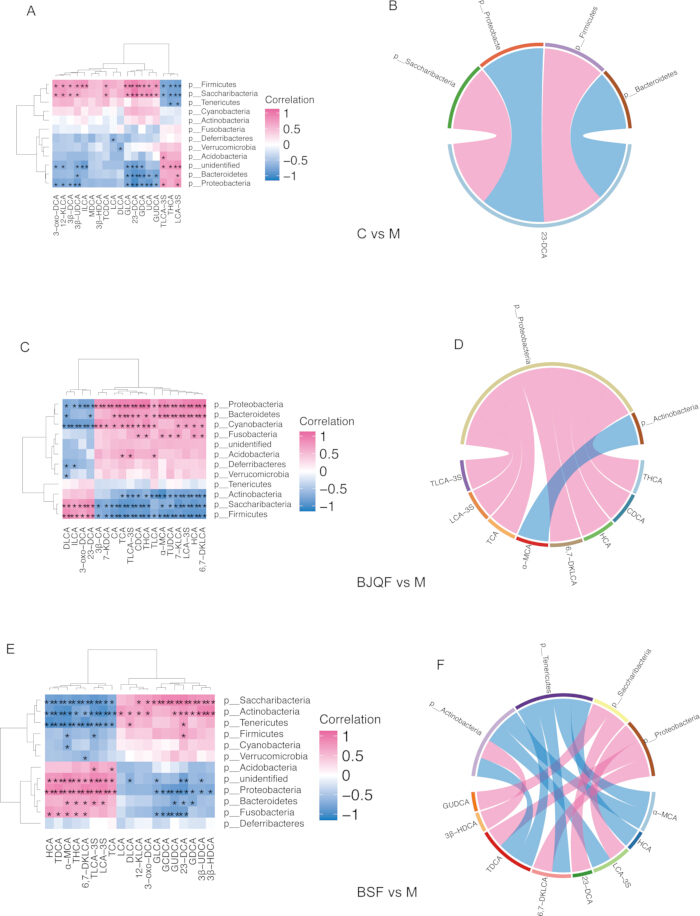
图6粪便中差异性胆汁酸(BAs)与门水平差异细菌丰度之间的相关性。 (A,C,E) 对照组 vs. 模型组、BJQF 组 vs. 模型组、BSF 组 vs. 模型组的 Spearman 相关性分析。 (B, D, F) 相应的弦图分别展示了对照组 vs. 模型组、BJQF vs. 模型组以及 BSF vs. 模型组中强相关性(|r| ≥ 0.8)的结果。 请点击此处以查看此图的放大版本。
弦图展示了 |r| ≥ 0.8 的相关性(图 7B、7D)。在JPF与模型的比较中,Saccharibacteria 与 TLCA-3S、LCA-3S 和 HCA 呈负相关,而与 23-DCA 呈正相关(图 7B)。在QCF与模型的比较中,Saccharibacteria 与 HCA、CA、LCA-3S、THCA 和 TLCA-3S 呈负相关,而与 23-DCA 呈正相关(图 7D)。这些结果表明,不同的中药复方通过不同的模式调节细菌–胆汁酸相互作用网络。
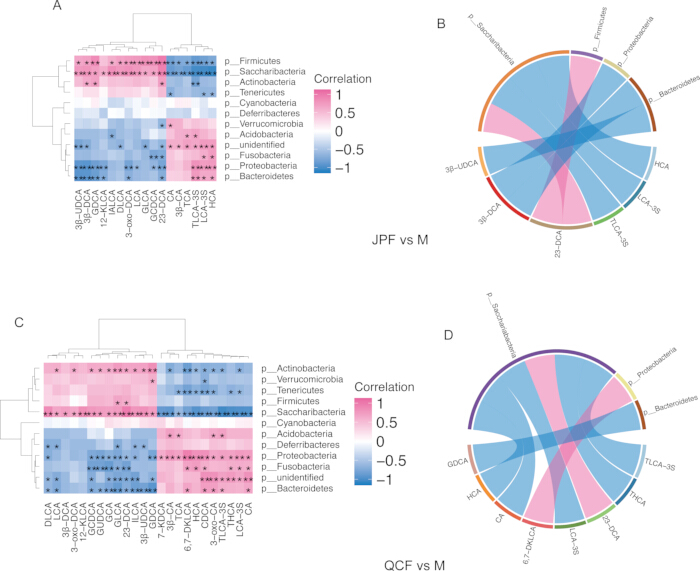
图7:粪便中差异性胆汁酸(BAs)与差异性细菌丰度之间的相关性。 (A, C)分别为JPF组与模型组、QCF组与模型组之间的Spearman相关性分析。(B, D)分别为JPF组与模型组、QCF组与模型组之间强相关性(|r| ≥ 0.8)对应的弦图。红色表示正相关,蓝色表示负相关。p < 0.05,p < 0.01。请点击此处查看该图的放大版本。
数据可用性:
所有原始数据均已上传至 NCBI 序列读取档案(SRA)数据库(登录号:PRJNA749732)。https://www.ncbi.nlm.nih.gov/bioproject/PRJNA749732
讨论
本研究探讨了半煎七方(BJQF)及其拆方子方通过肠道微生物群-胆汁酸代谢轴缓解DSS诱导的溃疡性结肠炎(UC)的治疗机制。该多组学分析表明,BJQF通过恢复与UC相关的微生物失衡并正常化粪便胆汁酸池,发挥抗结肠炎作用。其子方表现出不同的模块特异性调控效应,其中健脾方(JPF)的疗效最接近全方,揭示了健脾策略的核心作用。作者还鉴定出23-二氯胆酸(23-DCA)是连接微生物重构与UC改善的关键胆汁酸节点,以及牛磺-3-硫酸-石胆酸(TLCA-3S)和3-硫酸-石胆酸(LCA-3S)作为潜在疗效生物标志物。
半枝莲-黄芩复方(BJQF)介导的微生物群失调恢复可能与胆汁酸池的正常化及炎症减轻相关。溃疡性结肠炎(UC)由免疫-微生物群-代谢网络失调驱动,核心菌门失衡在患者及动物模型中均为典型特征10。这些结果证实,葡聚糖硫酸钠(DSS)诱导的UC大鼠表现出厚壁菌门(Firmicutes)和乳杆菌属(Lactobacillus)减少,拟杆菌门(Bacteroidetes)和变形菌门(Proteobacteria)增加——与临床UC患者的菌群特征一致11。其中,BJQF和健脾方剂(JPF)对上述异常的逆转作用最为显著,而补肾方剂(BSF)和清肠方剂(QCF)效果中等。鉴于乳杆菌属和梭菌属(Clostridium)等厚壁菌门类群已被充分证实含有次级胆汁酸生物合成的核心酶系统12,这提示可能存在一种关联机制:BJQF,尤其是其健脾组分,可恢复具有胆汁酸合成能力的厚壁菌门,从而可能促进次级胆汁酸的生物转化并纠正代谢紊乱。在属水平上,BJQF和JPF还逆转了UC引起拟杆菌属(Bacteroides)、瘤胃球菌属_2(Ruminococcus_2)、肠杆菌属(Enterorhabdus)和棒状杆菌属_1(Corynebacterium_1)的变化,进一步修复菌群失调及与胆汁酸合成相关功能。
恢复微生物失调可能有助于胆汁酸池的正常化,这是抗结肠炎作用的关键代谢机制。胆汁酸代谢高度依赖于微生物活性,而次级胆汁酸对免疫稳态和屏障完整性至关重要13。LC-MS/MS 数据显示,溃疡性结肠炎(UC)大鼠体内具有保护作用的次级胆汁酸(23-DCA、3-oxo-DCA、DLCA)减少,而硫酸化胆汁酸(TLCA-3S、LCA-3S)蓄积——这与先前报道的 UC 相关胆汁酸代谢紊乱一致14。硫酸化胆汁酸在肠道中吸收率低,无法进入肠肝循环15,其蓄积反映了胆汁酸代谢受损,并与促炎信号通路的激活相关16。所有药方均逆转了这一紊乱状态,其中 BJQF 和 JPF 的作用最强。
相关性分析证实,23-DCA 是与核心门水平变化相关的关键胆汁酸节点:与厚壁菌门(Firmicutes)呈正相关,与变形菌门(Proteobacteria)呈负相关。作为一种具有抗炎和屏障保护作用的次级胆汁酸17,23-DCA 在 BJQF/JPF 干预下的上调可能归因于厚壁菌门的富集及其生物合成能力的增强,并与细胞因子水平降低及组织学改善相关。基于上述相关性结果,作者提出一个假设性机制模型:BJQF 恢复厚壁菌门丰度 > 增强微生物次级胆汁酸生物合成 > 上调具有保护作用的 23-DCA > 抑制肠道炎症。该模型仍有待功能实验进一步验证。
本研究通过将补 justified 清方(BJQF)的功能模块与特定的微生物和代谢变化相对应,架起了中医理论与现代分子生物学之间的桥梁。健脾(Jianpi)概念是其中的核心环节。与中医“脾肾相互资生”的理论一致18,补脾方(BSF)显示出厚壁菌门(Firmicutes)的中度富集以及23-二氯苯甲酸(23-DCA)的上调。清肠方(QCF)主要富集疣微菌门(Verrucomicrobia)中的阿克曼菌(Akkermansia),并调节异生物质代谢,体现了“清利湿热”的功效。全方发挥的协同作用优于任一单一模块,验证了基于辨证论治的中药复方设计的合理性。
相关性分析进一步揭示了各药方塑造的独特细菌-胆汁酸互作网络。这些差异反映了不同模块的特异性调控特征,并为个体化临床应用提供了依据:JPF适用于以厚壁菌门为中心的菌群失调为主的脾虚型溃疡性结肠炎,QCF适用于伴有黏膜屏障损伤的湿热型溃疡性结肠炎,而完整的BJQF则适用于典型的复合证型。与上述发现一致,近期研究也支持肠道微生物群-胆汁酸轴作为溃疡性结肠炎及中医干预的核心治疗靶点19,20,21,22。由菌群失调驱动的次级胆汁酸缺乏是活动期溃疡性结肠炎的核心特征,恢复胆汁酸稳态可有效缓解炎症反应和黏膜损伤23。
本研究存在若干局限性。首先,微生物群重塑与胆汁酸正常化之间的所有关联均基于相关性多组学分析,尚未通过粪便微生物移植等功能实验验证其因果关系。其次,样本量相对有限,可能限制统计效能和结果的普适性。第三,仅对粪便中的胆汁酸进行了定量,而反映肠肝循环的血清和黏膜胆汁酸谱未予检测。第四,尚未明确调节微生物群和胆汁酸的具体活性植物化学成分。未来的研究将通过粪便微生物移植和无菌动物实验验证因果关系,鉴定BJQF中的关键活性成分,并开展临床初步研究以验证其转化价值。
披露
作者无任何利益冲突需要披露。
作者贡献:
Hongyu Chen 参与了研究概念化、方法学、验证、正式分析、调查、可视化以及论文初稿的撰写。Song Zhao 参与了方法学、项目管理、调查、可视化、经费获取以及论文初稿的撰写。Luzhou Xu 参与了研究概念化、资源提供、论文审阅与修改、项目管理以及本研究的整体监督。
致谢
本工作受到国家自然科学基金(81774243)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 mL PCR管 | Axygen | PCR-02-C | 用于16S rRNA基因PCR扩增反应 |
| 1.5 mL无菌离心管 | Axygen | MCT-150-C | 用于样本采集、储存和离心的无菌容器 |
| 10%中性缓冲福尔马林 | Solarbio Science & Technology | 1008128 | 用于结肠组织标本的固定 |
| 6500 QTRAP MS/MS系统 | Sciex | 5009065 | 用于基于MRM的粪便胆汁酸定量分析 |
| -80 ºC超低温冰箱 | Thermo Fisher Scientific | 702-UR | 用于粪便样本和生物标本的低温冻存 |
| 琼脂糖 | Sigma-Aldrich | A9539 | 用于通过凝胶电泳检测DNA完整性 |
| 阳春砂果实 | 南京中医药有限公司 | 批号20230321 | 生药材料,每剂15 g,用于BJQF和BSF |
| 黄芪根 | 南京中医药有限公司 | 批号20230312 | 生药材料,每剂15 g,用于BJQF和JPF |
| 木香根 | 南京中医药有限公司 | 批号20230217 | 生药材料,每剂6 g,用于BJQF和QCF |
| 胆汁酸标准混合物 | Sigma-Aldrich | B4893 | 用于粪便胆汁酸的定性和定量校准 |
| 黄连根茎 | 南京中医药有限公司 | 批号20230118 | 生药材料,每剂4 g,用于BJQF和QCF |
| 葡聚糖硫酸钠(DSS,36–50 kDa) | MP Biomedicals | 160110 | 用于大鼠UC造模,配制成3.5%(wt/vol)的饮水溶液,连续给予10天 |
| 甘草根 | 南京中医药有限公司 | 批号20230411 | 生药材料,每剂5 g,用于BJQF和JPF |
| GraphPad Prism | GraphPad Software | v7.00 | 用于统计分析、显著性检验和科学图表绘制 |
| 苏木精-伊红(H&E)染色试剂盒 | 碧云天生物技术 | C0105S | 用于结肠组织切片染色、组织病理学观察和炎症评分 |
| 高速冷冻离心机 | Eppendorf | 5810R | 用于核酸提取和代谢组学样品制备过程中的样本离心 |
| 色谱纯甲醇 | Merck KGaA | 1.06007.4008 | 用于LC-MS/MS样品制备和流动相配制 |
| Illumina MiSeq测序平台 | Illumina Inc. | SY-410-1003 | 用于16S rRNA基因高通量测序和肠道菌群分析 |
| KEGG数据库 | Kanehisa Laboratories | Release 107.0 | 用于微生物功能通路注释 |
| 雄性SPF级SD大鼠 | 上海西普-必凯实验动物有限公司 | / | 44只,体重200 ± 20 g,用于UC模型构建及后续实验 |
| Multiskan™ GO酶标仪 | Thermo Fisher Scientific Oy | 51119080 | 用于ELISA吸光度读数和细胞因子定量 |
| NanoDrop 2000分光光度计 | Thermo Fisher Scientific | ND-2000 | 用于粪便细菌基因组DNA的定量和纯度评估 |
| 石蜡包埋盒 | Leica Biosystems | 3801520 | 用于结肠组织脱水和石蜡包埋 |
| PowerFecal® DNA提取试剂盒 | MoBio (Qiagen) | 12830-50 | 用于粪便细菌基因组DNA的提取和纯化 |
| 补骨脂果实 | 南京中医药有限公司 | 批号20230129 | 生药材料,每剂15 g,用于BJQF和BSF |
| R统计环境 | R基金会统计计算 | v4.2.0 | 用于生物信息学分析和统计计算 |
| 大鼠IL-10 ELISA试剂盒 | 伦昌硕生物科技 | YD-30194 | 用于血清IL-10浓度的定量检测 |
| 大鼠IL-1β ELISA试剂盒 | 伦昌硕生物科技 | YD-30206 | 用于血清IL-1β浓度的定量检测 |
| 大鼠TNF-α ELISA试剂盒 | 伦昌硕生物科技 | YD-31063 | 用于血清TNF-α浓度的定量检测 |
| 地榆根 | 南京中医药有限公司 | 批号20230309 | 生药材料,每剂10 g,用于BJQF和QCF |
| 黄芩根 | 南京中医药有限公司 | 批号20230407 | 生药材料,每剂10 g,用于BJQF和QCF |
| Shim-pack UFLC UPLC系统 | 岛津公司 | CBM-20A | 用于粪便胆汁酸样品的色谱分离 |
| 炒白术根茎 | 南京中医药有限公司 | 批号20230225 | 生药材料,每剂10 g,用于BJQF和JPF |
参考文献
- Gilbert JA, et al. Current understanding of the human microbiome. Nat Med. 2018;24(4):392-400.
- Fiorucci S, et al. Bile acid signaling in inflammatory bowel diseases. Dig Dis Sci. 2021;66(3):674-693.
- Sinha SR, et al. Dysbiosis-induced secondary bile acid deficiency promotes intestinal inflammation. Cell Host Microbe. 2020;27(4):659-670.e5.
- Zhan K, et al. Gut microbiota-bile acid crosstalk in diarrhea-irritable bowel syndrome. Biomed Res Int. 2020;2020:3828249.
- Zhang C, Jiang M, Lu A. Considerations of traditional Chinese medicine as adjunct therapy in the management of ulcerative colitis. Clin Rev Allergy Immunol. 2013;44(3):274-283.
- Zhang S, et al. Consensus on Chinese medical diagnosis and treatment of ulcerative colitis (2009). Chin J Integr Tradit West Med. 2010;30(5):527-532.
- Chen YL, et al. Systems pharmacology approach reveals protective mechanisms of Jian-Pi Qing-Chang decoction on ulcerative colitis. World J Gastroenterol. 2019;25(21):2603-2622.
- Hu J, et al. Qingchang Huashi Formula attenuates DSS-induced colitis in mice by restoring gut microbiota-metabolism homeostasis and goblet cell function. J Ethnopharmacol. 2021;266:113394.
- Cooper HS, et al. Clinicopathologic study of dextran sulfate sodium experimental murine colitis. Lab Invest. 1993;69(2):238-249.
- Zuo T, Ng SC. The gut microbiota in the pathogenesis and therapeutics of inflammatory bowel disease. Front Microbiol. 2018;9:2247.
- Kobayashi T, et al. Ulcerative colitis. Nat Rev Dis Primers. 2020;6(1):74.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41-50.
- Joyce SA, Gahan CGM. Bile acid-microbiota crosstalk in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(11):694-707.
- Duboc H, et al. Connecting dysbiosis, bile-acid dysmetabolism and gut inflammation in inflammatory bowel diseases. Gut. 2013;62(4):531-539.
- Alnouti Y. Bile acid sulfation: A pathway of bile acid elimination and detoxification. Toxicol Sci. 2009;108(2):225-246.
- Ungaro R, et al. Ulcerative colitis. Lancet. 2017;389(10080):1756-1770.
- Tang Y, Li Y, Zhang L, et al. 23-Deoxycholic acid ameliorates colitis by regulating gut microbiota and activating FXR signaling. J Ethnopharmacol. 2022;298:115463.
- Lu YH, Cong LL, Zhang Y. TCM syndrome classification and its correlation with gut microbiota in ulcerative colitis. Chin J Integr Tradit West Med. 2020;40(7):867-871.
- Zhang Y, Li X, Wang H. Traditional Chinese medicine for inflammatory bowel disease: From empirical therapy to mechanism-based treatment. J Ethnopharmacol. 2022;296:115347.
- Li J, Wang Y, Zhang L, et al. Targeting the gut microbiota-bile acid axis: a novel strategy for TCM compound prescriptions in treating chronic inflammatory diseases. Pharmacol Res. 2023;192:106589.
- Abdo W, et al. Gut Microbiota and Bile Acid Metabolism in Inflammatory Bowel Disease: Pathophysiological Links and Therapeutic Implications. Arch Med Res. 2023;54(8):789-801.
- Liu M, et al. Traditional Chinese Medicine Targeting Gut Microbiota-Bile Acid Axis for Ulcerative Colitis: A Systematic Review. Arch Med Res. 2022;53(6):542-553.
- Chen L, et al. Secondary Bile Acids as Key Mediators of Intestinal Mucosal Barrier Protection in Inflammatory Bowel Disease. Arch Med Res. 2023;54(2):189-200.