本研究评估了七福饮(QFY)在5xFAD小鼠中的治疗作用。研究结果表明,给予QFY可改善学习和记忆能力,减少大脑皮层中Aβ沉积和细胞衰老,并减轻突触结构损伤。
研究文章
芪复饮改善5xFAD小鼠脑内认知功能障碍及减轻细胞衰老的作用
* These authors contributed equally
本文内容
摘要
摘要
尽管中药复方七福饮(Qi-fu-yin, QFY)的作用机制尚未完全阐明,但其在阿尔茨海默病(Alzheimer's disease, AD)中已显示出潜在的治疗作用。本研究旨在探讨七福饮(QFY)治疗与5xFAD小鼠认知功能障碍之间的关联。我们采用抓力测试、 步态,群居筑巢,穿梭箱,莫里斯水迷宫实验,以及ELISA检测淀粉样蛋白水平β 蛋白 1-42 (Aβ1-42),Aβ1-40生长相关蛋白43(GAP-43)、突触素(SYN)以及突触后密度蛋白95(PSD-95)在5xFAD小鼠脑组织中的表达。采用Luminex细胞因子分析法定量检测大脑皮层中衰老相关分泌表型(SASP)的水平。衰老相关 β-半乳糖苷酶(SA-β-半乳糖苷酶(-Gal),Aβ 动物大脑中的沉积物及树突棘通过SA测定β-半乳糖苷酶染色、免疫组织化学以及Golgi-Cox染色分别进行。QFY处理显著降低了皮层Aβ 斑块负荷并降低5xFAD小鼠中p21的表达水平,免疫荧光检测结果表明。在5xFAD小鼠中,QFY治疗显著改善学习与记忆能力,缓解 衰老,并增加了小鼠皮层中GAP-43、PSD-95和SYN蛋白的含量。经QFY处理后,Aβ 斑块和SA-β脑内的-Gal活性,以及Aβ1-42 和 Aβ1-42/Aβ1-40 海马体中的水平。IL-1的水平α, IL-1β, IL-6, IL-17A 和 IFN-γ 在5xFAD小鼠皮层中显著减少。PCA和Pearson相关性分析显示,SASP细胞因子与突触蛋白水平之间存在强烈的负相关关系。这些结果提示,QFY处理与5xFAD小鼠年龄相关认知功能下降及细胞衰老表型的改善相关,并伴随突触结构损伤的减轻。这些发现支持进一步研究QFY作为阿尔茨海默病潜在治疗候选药物的可能性。
引言
阿尔茨海默病'阿尔茨海默病 (AD)1 是最常见的痴呆症类型,其特征为淀粉样蛋白-β 蛋白质 (Aβ高磷酸化tau蛋白(P-Tau)、突触丧失以及慢性炎症。目前用于阿尔茨海默病的可用药物存在多种副作用,且无法阻止疾病进展。'进展2,3,4,5.
衰老表现为整个生物体在细胞和间质微环境层面的广泛紊乱,而非局限于特定器官的改变,是阿尔茨海默病发病机制中的一个关键风险因素。这种系统性失调从根本上改变了整个生物系统的稳态机制,从而将阿尔茨海默病的进展与单一组织病理学模型区分开来。6,7尽管细胞衰老最初作为一种稳态调节机制发挥作用,但衰老细胞的积累最终会导致渐进性组织退化和持续性炎症级联反应,从根本上破坏生理稳态。8随之而来的炎症可能损害突触并损害认知功能。9,10.
细胞衰老是一种复杂的细胞应激反应,其特征为端粒缩短、细胞周期永久性停滞以及分泌活动改变。11其他特征还包括细胞形态增大、扁平化,以及衰老相关β-半乳糖苷酶染色呈阳性。 ββ-半乳糖苷酶 (SA-β-半乳糖苷酶染色、脂褐素积累及SASP因子分泌12记忆形成受到轴突与树突突触可塑性相关蛋白水平显著下降的影响,这一现象伴随细胞衰老而发生。13,14由于突触可塑性对学习与记忆至关重要,突触蛋白的紊乱会导致认知功能障碍。这些蛋白包括 GAP-43、SYN 和 PSD-95。毫无疑问,老年人脑内树突数量的减少和功能异常会影响突触功能。15.
QFY是一种源自传统中医的复方制剂, 《经阅全书》它由 Panax ginseng C.A.Mey (五加科), 远志 (Polygalaceae), 地黄 (Gaertn.) Libosch. ex Fisch. & C. A. Mey (列当科), 当归 (Oliv.) Diels (伞形科), 甘草 Fisch. ex DC. (豆科), 白术 Koidz(菊科), Ziziphus jujuba Mill. var. 刺槐 (Bunge) Hu ex H.F. Chou (鼠李科)。研究表明,QFY 能显著改善糖尿病所致脑损伤大鼠的认知功能障碍。16我们先前的研究发现,QFY能够改善5xFAD和APP/PS1小鼠的认知学习与记忆功能损伤。此外,QFY在非临床研究中表现出较高的安全性,未观察到明显的急性、亚急性或长期毒性反应。17,18,19QFY临床疗效分析显示,阿尔茨海默病患者在接受QFY治疗后,其日常生活活动能力与简易精神状态检查量表评分均出现显著提升。20在雄性 Sprague-Dawley 大鼠连续三天给予 QFY 后,在脑脊液中检测到十种 QFY 来源的原型成分,包括丁烯基苯酞、丁基苯酞、20(S)-人参皂苷 Rh1、20(R)-人参皂苷 Rh1 和姜糖苷 R1。21,22然而,QFY 治疗阿尔茨海默病的机制仍不明确。本研究探讨了 QFY 治疗与 5xFAD 小鼠细胞衰老及阿尔茨海默病相关病理变化之间的关联。
尽管先前的研究已证明 QFY 在阿尔茨海默病模型中的神经保护作用, 细胞衰老的特异性参与 在介导这些效应中的作用仍有待探索。此外,QFY是否通过 衰老‑相关的突触保护,而非仅通过淀粉样蛋白‑β 然而,QFY治疗是否能够减轻细胞衰老,以及这种减轻是否与改善5xFAD小鼠的突触可塑性相关,目前尚未得到阐明。因此,本研究旨在探究QFY治疗是否能减轻细胞衰老,以及这种减轻作用是否与5xFAD小鼠突触可塑性的改善相关。
方案
所有动物实验均经山东中医药大学实验动物福利伦理委员会批准(SDUTCM20221101001)。
药物
QFY颗粒干浸膏粉由鲁南制药厚朴研发中心制备并检测。多奈哌齐和美金刚购自上海源叶科技。本研究采用雄性5xFAD小鼠,初始体重范围为19–27 g。QFY的给药剂量根据临床人用剂量43 g/d推算,换算为QFY颗粒干浸膏粉后为16.297 g/d。本实验的中剂量根据临床人用剂量计算(16.297 g/70 kg × 9.1 = 2.11861 g/kg/d)。高剂量设为中剂量的两倍(4.24 g/kg/d),低剂量设为中剂量的一半(1.06 g/kg/d)。所有药物溶液按每10 g体重0.1 mL的体积给药。
作为阳性对照,采用多奈哌齐和盐酸美金刚的联合给药方案。剂量参考了二者目前的临床应用剂量(分别为10 mg/d和20 mg/d)以及本研究团队既往的研究数据,最终确定给药方案为多奈哌齐1.0 mg/kg/d联合美金刚2.8 mg/kg/d,总联合剂量为3.8 mg/kg/d。多奈哌齐-美金刚混合液的最终浓度配制为0.38 mg/mL,按3.8 mg/kg除以每10 g体重0.1 mL的给药体积计算得出。
低、中、高剂量的QFY溶液制备方法如下:分别取5.3 g、10.6 g和21.2 g QFY干粉,置于100 mL烧杯中,各加入30 mL纯化水,充分搅拌混匀后转移至量筒中,再用纯化水定容至50 mL,最终质量浓度分别为0.106 g/mL、0.212 g/mL和0.424 g/mL。阳性对照组使用5 mg多奈哌齐和14 mg美金刚溶于纯化水中,并用纯化水定容至50 mL。各组动物每日通过口服灌胃给予相应的药物溶液一次。
动物
5xFAD 转基因小鼠 [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] 在实验室中进行繁育。所有动物均饲养于山东中医药大学的SPF级环境中,温度为22–24 oC,湿度为50–60%,光照与黑暗周期各12小时。小鼠可随时获取食物和饮水。
在2.5个月大时,雄性5xFAD小鼠被随机分为五组:未治疗的5xFAD组、多奈哌齐联合美金刚组、低剂量QFY组、中剂量QFY组和高剂量QFY组。同龄雄性野生型(WT)同窝小鼠作为WT对照组。治疗持续220天,每天给药一次。(图1)。
行为学测试
握力测试
使用握力计测量小鼠前肢骨骼肌的力量23。实验过程中,将测试装置水平放置,确保小鼠身体与实验台表面保持平行。打开设备后,将小鼠轻轻放置在握力板上。当小鼠牢固抓住握力板时,以均匀的力度向后牵拉其尾巴,直至小鼠松开握力。记录此时的最大握力值。该测量重复进行三次,取三次测量值的平均值作为小鼠的握力强度。
步态测试
使用 CatWalk XT 测量小鼠的步态规律性。实验分为训练期和测试期24。实验前一天,将实验小鼠转移至实验室内,使其适应新环境。训练期间,将小鼠置于起点,使其沿通道跑至终点。每只小鼠每天训练三次。经过三天训练(直至每只小鼠均能快速通过通道)后,将小鼠放回笼中。测试期的操作与训练期相同,计算机软件会自动分析每条运动轨迹。若轨迹合格则显示绿色点,不合格则显示橙色点,每只小鼠至少需有三个绿色点的合格轨迹,由 CatWalkXT 10.0 软件进行分析。
穿梭箱实验
穿梭箱实验用于评估小鼠的条件性主动回避能力25。实验装置包括一个置于隔音箱内的穿梭箱(18 cm × 18 cm)。 实验包括为期4天的学习阶段,随后进行1天的测试阶段。 在每天的学习阶段中,小鼠在训练开始前先在穿梭箱内适应120秒。每次试验以持续6秒的条件刺激(70 dB、1000 Hz的音调结合500 lux的光照)开始,随后是通过栅格地板施加的持续3秒、强度为0.3 mA的足底电击,最后是12秒的试验间间隔。如果小鼠在条件刺激期间穿越至对侧舱室,则不施加电击,并将该反应记录为主动回避。如果小鼠在条件刺激期间未穿越,但在足底电击期间穿越,则记录为 被动回避反应。如果小鼠在整个试验过程中均未穿越,则记录为 逃避失败。训练连续进行4天,每天30次试验。在测试阶段(第5天),不施加足底电击,其余参数均与学习阶段相同。主动回避反应的次数被记录为学习与记忆能力的主要评估指标。
莫里斯水迷宫
采用Morris水迷宫实验评估实验动物的空间学习和记忆能力26。实验在一个直径为120 cm、深度为50 cm的水池中进行。水池中注满浑浊的白色水,水温维持在21 °C。在其中一个象限的水面下1 cm处放置一个直径为10 cm的平台。在水池周围设置视觉线索,作为小鼠定位的空间参照物。学习阶段持续连续四天,每天的实验从三个象限中的一个开始,起始位置在四个正方向上伪随机变化。每次试验以动物成功登上平台为结束。每次试验最长持续60 s;若动物在此期间未能找到平台,则将其小心引导至平台。动物登上平台后,给予10 s的短暂休息,随后放回其居住笼中。学习阶段结束后,测试阶段于24小时后开始。在第5天,将小鼠从平台所在象限的对侧象限放入水中。记录测试阶段的逃避潜伏期、在目标象限的运动时间以及穿越原水下平台区域的次数。
菌落筑巢实验
使用群体筑巢实验评估实验动物的日常活动27。实验持续24小时,每组3只动物。当天给药后,准备新的笼子,并在笼底铺上6 g软纸用于筑巢,分别在6 h、12 h和24 h时拍照记录。实验结束时,若纸张散落在整个笼内,且无任何啃咬痕迹,记为1分;纸张碎片聚集在笼子一侧,但较为松散,未形成巢状,无明显撕裂或折叠,记为2分;纸张聚集并折叠成形,但巢较扁平,无明显撕裂,记为3分;形成较深的巢,且纸张被广泛撕碎,记为4分。 实验结束时,收集剩余的 未撕碎的纸巾 (定义为未被撕碎或未被纳入巢中的纸片,重量>0.1 g),经空气干燥后,使用电子天平(精度:0.01 g)称重。
采样与样品收集
仅收集了野生型(WT)、5xFAD 和 QFY(2.12 g/kg/d)组的样本。在 CO2 窒息处死后,切除头部,迅速打开右侧半脑以分离海马和皮层,用磷酸盐缓冲液(PBS)冲洗后,置于液氮中的 1.5 mL 冻存管内,于 -80 oC 保存用于生化检测。左侧半脑则浸入 4% 多聚甲醛中固定 24 小时,经无水乙醇脱水后,包埋于石蜡中,切为 5 µm 厚的切片,再进行脱蜡处理以用于免疫组织化学检测。
酶联免疫吸附测定(ELISA)
采用ELISA法测定脑组织中目标蛋白的水平。使用商用试剂盒检测海马匀浆中的Aβ1–40和Aβ1–42含量,而皮层中GAP-43、PSD-95和SYN的水平则使用江苏酶免疫分析研究所提供的试剂盒进行测定。所有操作均严格遵循生产商提供的说明书进行。标准品系列根据试剂盒说明通过连续稀释制备。酶标板布局包括空白孔、标准品孔、5xFAD样本孔、QFY处理组(2.12 g/kg/d)样本孔以及野生型孔。上样前,所有样本均用所提供的稀释液进行两倍稀释。加样时,移液枪枪头保持垂直于孔底加入试剂,随后轻轻振荡以确保充分混匀。
封板后,初始孵育在37 °C下进行30分钟。在此期间,通过将浓缩储备液与超纯水按1:29的比例稀释(1 mL浓缩液加29 mL水)来配制洗涤缓冲液。孵育结束后,移除封板膜,弃去液体,并将板拍干。每个孔中加入200 µL洗涤缓冲液,静置30秒后吸出;此洗涤步骤重复5次。随后,除空白孔外,向所有孔中加入50 µL酶标试剂,重新密封后于37 °C再次孵育30分钟,之后进行相同的五次洗涤循环。
显色时,每孔加入50 µL显色剂溶液A,随后加入50 µL显色剂溶液B,每次加入后均轻轻混匀。将酶标板置于37 °C避光孵育10分钟。每孔加入50 µL终止液以终止酶促反应,溶液颜色随即由蓝色变为黄色。使用酶标仪在450 nm波长处测定吸光度(光密度),以空白孔作为参比;所有读数均在反应终止后15分钟内完成。
Luminex
使用 Bio‑Plex Pro 小鼠细胞因子 23‑重检测试剂盒测量皮层中 SASP 因子的水平,所有操作均按照制造商提供的说明书进行。试剂从 4 °C 取出后,在使用前于室温下平衡 30 分钟。根据试剂盒说明书,将标准品原液进行系列稀释,制备七点标准曲线,并设一个空白孔。磁珠预先混匀后稀释至推荐的工作浓度;检测抗体配制成工作液;洗涤缓冲液浓缩液用去离子水稀释至 1x。PE‑链霉亲和素偶联物也使用提供的稀释缓冲液稀释至 1x。
进行检测时,根据板布局,依次向指定孔中加入50 µL微球悬浮液、标准品、质控品以及稀释后的组织样本(5.6 µg/µL)。随后密封反应板,并在4 °C下以800 rpm转速振荡孵育过夜。孵育结束后,每孔用200 µL洗涤缓冲液洗涤三次。接着,向每孔加入50 µL配制好的检测抗体,室温下振荡孵育1小时(800 rpm)。再经过三次洗涤后,向每孔加入50 µL PE‑链霉亲和素工作液,在相同振荡条件下室温孵育30分钟。最后进行一次洗涤(每孔用200 µL洗涤缓冲液洗涤三次),之后向每孔加入150 µL洗涤缓冲液,在800 rpm转速下室温振荡2分钟,然后在Bio‑Plex仪器上读取结果。
SA-β-半乳糖苷酶染色与免疫组织化学
SA-β-Gal 染色按照衰老相关 β-半乳糖苷酶染色试剂盒说明书进行。SA-β-Gal 染色后,切片在柠檬酸盐缓冲液(pH 6.0)中加热进行抗原修复。室温下用过氧化物酶阻断液孵育 10 分钟以阻断内源性过氧化物酶活性。随后,切片在 4 °C 下与兔单克隆抗 Aβ₁-₄₂ 抗体(1:400)孵育过夜。洗涤后,切片在室温下与抗兔/小鼠 IgG 二抗孵育 20 分钟。再次洗涤后,使用 DAB 显色 2 分钟以显示免疫反应。最后,切片经脱水、透明化处理,并用中性树脂封片,用于显微镜观察。
免疫荧光
进行免疫荧光染色时,将石蜡切片置于二甲苯中脱蜡(3次,每次15分钟),并通过梯度乙醇系列(100%、95%和75%;每次2次,每次5分钟)复水。抗原修复通过将切片浸入1×柠檬酸钠缓冲液中,在95 °C下处理30分钟,然后逐渐冷却至室温完成。用含Tween 20的磷酸盐缓冲液(PBST)清洗三次(每次5分钟)后,切片在室温下用含0.3% Triton X‑100的10%正常山羊血清透化并封闭90分钟。随后,切片在37 °C下与抗p21/CIP1/CDKN1A(1:200)和Aβ₁‑₄₂(1:400)的一抗孵育2小时。用PBST洗涤四次(每次5分钟)后,切片在37 °C避光条件下与相应种属的Alexa Fluor标记的二抗(1:500)孵育2小时。再次洗涤(PBST中4次,每次5分钟)后,用含DAPI的抗荧光淬灭封片剂封片,并使用荧光显微镜成像。
高尔基-考克斯染色
采用商用试剂盒,按照制造商说明书进行高尔基-考克斯染色。溶液A与溶液B在实验前24小时混合。小鼠安乐死后,迅速取出脑组织,用PBS冲洗,然后浸入溶液A和溶液B的混合液中。组织在室温避光条件下保存6小时,随后更换为新鲜的浸渍液,并继续在室温避光条件下孵育额外2周(每份脑组织至少使用2 mL浸渍液)。之后将组织转移至溶液C中孵育24小时,再更换为新鲜的溶液C,在室温避光条件下继续孵育7天。使用振动切片机将脑组织切成100 µm厚的切片。切片贴附于明胶包被的载玻片上,在室温下干燥3天。载玻片用蒸馏水冲洗两次(每次5分钟),然后浸入溶液D、溶液E与蒸馏水按1:1:2比例配制的混合液中15分钟。再用蒸馏水额外冲洗两次(每次5分钟)后,依次通过梯度乙醇溶液(50%、75%和95%;每次5分钟)进行脱水,随后用无水乙醇冲洗四次(每次4分钟),再用二甲苯冲洗三次(每次5分钟)。最后,用封片介质加盖盖玻片。使用显微镜采集图像,并利用ImageJ软件定量分析树突棘密度。
统计学分析
所有结果均以均值 ± 标准差表示。数据使用 GraphPad Prism 8.1.0 进行分析并绘图。两组之间的比较采用学生t检验。对于涉及多组的比较,采用单因素方差分析(one-way ANOVA),并使用 Dunnett 检验进行成对比较。统计学显著性设定为 p < 0.05。
多变量与相关性分析
使用 GraphPad Prism 8.0.1 进行主成分分析(PCA),以可视化 SASP 因子(IL-1α, IL-1β, IL-6, IL-17A, IFN-γ,CCL3、CCL4 和 CCL5)在野生型(WT)、5xFAD 和 QFY(2.12 g/kg/天)组之间的表达水平(n 每组8个样本。得分图基于前两个主成分生成。在PCA之前未进行数据转换。采用Pearson相关性分析评估SASP因子与突触蛋白(PSD-95、GAP-43和SYN)以及A之间的线性关系。β₁₋₄₀,Aβ₁₋₄₂,以及 Aβ₁₋₄₂/Aβ₁₋₄₀ 比率。分析使用 GraphPad Prism 进行,显著性阈值设定为双尾检验。 p < 0.05。生成相关性矩阵和热图以可视化关联的强度和方向。
结果
QFY给药可增强5xFAD小鼠的学习与记忆能力
给予QFY后,进行穿梭箱测试以评估小鼠的条件性主动回避反应(图 2A–C结果显示,第1至4天的主动回避次数(图 2A, p < 0.05)以及主动回避的曲线下面积(AUC)图2B, p < 0.01),而主动回避次数(图 2C, p < 与野生型小鼠相比,5xFAD小鼠在测试期间主动回避次数显著减少(p < 0.05)。在5xFAD小鼠中,给予多奈哌齐和美金刚可显著增加其在学习期第2天的主动回避次数。图 2A, p < 0.05)。QFY给药显著增加了第3天和第4天的主动回避次数(图 2A, p < 0.05),主动回避任务的曲线下面积(图 2B, p < 0.01 in QFY高剂量组)在学习期间,以及主动回避次数(图 2C, p < 在测试期间,5xFAD小鼠的主动回避反应能力受损,而QFY给药则改善了该能力(QFY低剂量组p < 0.05)。这一数据表明,5xFAD小鼠执行主动回避反应的能力受损,而QFY给药改善了该能力。
我们采用 Morris 水迷宫评估小鼠的空间学习与记忆能力。结果显示图 2D–I) 第一天(图 2D, p < 0.05)及逃避潜伏期曲线下面积(AUC)图 2E, p < 0.01)在学习期间,测试期间的逃避潜伏期(图 2F, p < 与野生型小鼠相比,5xFAD小鼠的平台穿越次数(P < 0.05)显著增加,图 2H, p < 与野生型小鼠相比,5xFAD小鼠的逃避潜伏期曲线下面积显著降低(P < 0.05)。多奈哌齐和美金刚的给药显著降低了学习期逃避潜伏期的曲线下面积。图 2E, p < 0.05)以及在测试期间(图 2F, p < 0.01)。QFY 处理显著降低了学习阶段逃避潜伏期的曲线下面积(AUC)(图 2E, p < 0.05 in QFY 低剂量组和高剂量组, p < 0.01,QFY中剂量组)和逃避潜伏期(图 2F, p < 在测试期间,三个 QFY 组(p < 0.01)的穿越平台次数均显著增加,同时延长了在目标象限的停留时间。图 2G, p < 0.05),并增加了穿箱次数(图 2H, p < 0.05),表明 QFY 治疗改善了这些缺陷。这些结果表明 5xFAD 小鼠存在空间学习与记忆缺陷,且 QFY 治疗改善了这些缺陷。
QFY 给药可缓解 5xFAD 小鼠的衰老进程
给予QFY后,通过步态、抓握力和筑巢行为测试评估小鼠衰老状况。结果(图 3A) 结果显示,与野生型小鼠相比,5xFAD 小鼠的奔跑持续时间、奔跑最大变异度及步序规律性指数均显著下降。p < 0.05)。运行平均速度(图 3A, p < 0.05)、右前肢(RF)站立指数(图 3A, p < 0.01),左后肢(LH)站立指数(图 3A, p < 0.05), RF 最大接触 (图3A, p < 0.01),右后肢摆动速度(图 3A, p < 0.05),黄体生成素摆动速度(图 3A, p < 0.01)与占空比(图 3A, p < 0.05) 在 5xFAD 中显著增加。多奈哌齐与美金刚的治疗增加了右后肢站立指数、左前肢站立指数图 3A, p < 0.05)且黄体生成素占空比降低(图 3A, p < 0.01),亦显著降低了右髋关节初始双足站立期(图 3A, p < 0.05) 与 LH 终末双支撑期 (图 3A, p < 5xFAD小鼠的LH占空比(p < 0.01)。QFY的施用降低了LH占空比(图 3A, p < 0.05 in QFY 低浓度与 p < 0.01 在中等剂量组中),RH 初始双足站立(图 3A, p < 0.05 于 QFY 低剂量组和高剂量组, p < 0.01 于 QFY 中剂量组)及 LH 终末双足站立(图 3A, p < 0.05 in QFY low-dose group, p < 0.01,在QFY中、高剂量组中),亦延长了跑步持续时间(图 3A, p < 0.05 in QFY 低中剂量组), 运行最大变异(图 3A, p < 0.05),步序规律性指数(图 3A, p < 0.01 in QFY低、中剂量组),LF站立指数(图 3A, p < 0.05 in QFY低剂量组)与LH站立指数(图 3A, p < 在 5xFAD 小鼠中,QFY 低剂量组(p < 0.05)和高剂量组(p < 0.05)均显著改善了步态异常。这些结果表明,5xFAD 小鼠表现出步态异常,而 QFY 治疗可使其恢复正常。
给予QFY后,进行抓力测试以评估前肢力量。实验数据(图 3B) 显示,5xFAD 小鼠的前肢力量显著弱于 WT 小鼠(p < 0.01)。多奈哌齐与美金刚的给药(图 3B, p < 0.01), QFY (图 3B, p < 0.01)中,QFY低剂量组与高剂量组均显著提升了5xFAD小鼠的抓握力。这些研究表明,QFY处理增强了5xFAD小鼠的前肢力量。
集落筑巢测试结果显示图 3C–G) 5xFAD小鼠的筑巢评分在6小时时显著低于野生型小鼠。图 3C, p < 0.05),在集群筑巢开始后12小时和24小时图3DE, p < 0.01),且5xFAD小鼠的未撕裂组织重量显著更高(图 3F, p < 0.01)。使用多奈哌齐和美金刚进行给药仅降低了未受损组织的重量(图 3F, p < 0.01)。QFY 处理在 12 小时时提高了筑巢评分(图 3D; QFY p < 0.05)和24小时(图 3E; QFY p < QFY低、中剂量组中未撕裂组织重量显著降低(P < 0.05)。图 3F, p < 0.01)及 QFY 高剂量组(图 3F, p < 0.05)。这些结果表明,QFY 治疗增强了 5xFAD 小鼠的日常活动能力。
QFY 处理可降低 5xFAD小鼠大脑皮层中的突触结构损伤
经QFY处理后,收集小鼠大脑皮层,通过ELISA法检测GAP-43、PSD-95和SYN的蛋白水平。结果显示(图4A–C) 表明,GAP-43 的含量图 4A, p < 0.05), PSD-95 (图 4B, p < 0.01)和 SYN(图 4C, p < 5xFAD小鼠大脑皮层中的GAP-43蛋白含量显著低于野生型小鼠(p < 0.01)。图 4A, p < 0.05)、PSD-95(图 4B, p < 0.01)和 SYN(图 4C, p < 经 QFY 治疗后,其水平显著升高(p < 0.01)。高尔基-考克斯染色结果显示图 4D) 显示,5xFAD 小鼠大脑皮层中树突的长度较短(图 4G, p < 与野生型小鼠相比,其差异具有统计学意义(p < 0.05)。QFY处理倾向于增加树突棘的长度、数量和密度。
QFY 处理降低了 Aβ 5xFAD小鼠脑内的沉积与细胞衰老
Aβ 淀粉样蛋白沉积与细胞衰老在阿尔茨海默病发病机制中扮演重要角色。我们采用SA-β-gal染色结合免疫荧光染色技术,对阿尔茨海默病小鼠模型脑组织切片中的衰老细胞进行鉴定与定量分析。ββ-半乳糖苷酶染色与活性测定β 免疫组织化学法用于评估SA-β-半乳糖和Aβ 斑块。结果显示存在大量SA-ββ-半乳糖苷聚集与Aββ 5xFAD 小鼠大脑皮层中的斑块沉积图 5A),而仅有少数SA-β-半乳糖凝集素聚集与Aβ 经QFY处理后,观察到斑块沉积。图 5A此外,还观察到SA-β-半乳糖和Aβ 斑块。
免疫荧光检测显示,5xFAD小鼠大脑中大量沉积了Aββ 斑块与 p21 阳性细胞图 5B,)。QFY 的给药显著抑制了皮层 Aβ 斑块形成与这些动物体内 p21 表达减弱图 5B,)。ELISA结果显示,与WT小鼠相比,Aβ1-42 以及 A 的比值β1-42/ 一个Β1-40 5xFAD 小鼠海马中显著增加图 5D,,p < 0.01),而QFY处理则显著降低了这些指标(图 5D, p < 0.01; 图 5F, p < 分别为 0.05)。
衰老细胞通常会分泌大量SASP因子。Luminex分析结果显示,IL-1的含量α (图 5G, p < 0.05), IL-1β (图 5H, p < 0.01), IL-17A (图 5J, p < 0.05)、CCL3(图 5K, p < 0.01)、CCL4(图 5L, p < 0.01), CCL5 (图 5M, p < 0.01)与IFN-γ (图 5N, p < 5xFAD小鼠皮层中IL-1β的含量显著增加(p < 0.01)。QFY处理降低了IL-1β的含量。α (图 5G, p < 0.05), IL-1β (图 5H, p < 0.05), IL-6 (图 5I, p < 0.05)、IL-17A(图 5J, p < 0.05),以及 IFN-γ (图 5N, p < 皮层区域显著(p < 0.01)。
这些数据表明,5xFAD小鼠大脑中出现了细胞衰老,而QFY处理降低了5xFAD小鼠的细胞衰老。
QFY改善5xFAD小鼠认知障碍及减轻脑细胞衰老的效应与突触损伤相关
采用主成分分析(PCA)评估整体衰老相关分泌表型(SASP)的表达谱(IL‑1α, IL‑1β白细胞介素‑6, IL‑17A、CCL3、CCL4、CCL5 与 IFN‑γ) 在野生型、5xFAD 和 QFY 之间‑处理组图 6A前两个主成分分别占总方差的44.11%和23.46%。如主成分分析得分图所示,图 6A野生型组与5xFAD组被明确区分开来。值得注意的是,QFY‑治疗组呈现中间位置,其聚类更接近野生型组而非5xFAD组,提示QFY处理后衰老相关分泌表型谱部分恢复正常。对第一主成分得分的统计分析图 6B) 结果显示,5xFAD组表现出显著高于WT组的PC1值。PC2得分(图 6C) 亦显示 5xFAD 与 WT 组之间存在显著差异。载荷图分析(图 6D) 表明 IL‑1α,白细胞介素‑1β与干扰素‑γ 是PC1的主要贡献者,而IL‑6 和 CCL3 对 PC2 的贡献更为显著。
我们进行了IL-1β与各临床指标之间的皮尔逊相关性分析。α, IL-1β以及干扰素γ 以及皮层中 PSD-95、GAP-43 和 SYN 的含量,以及 Aβ1-40 和 Aβ1-42 与 Aβ1-42/Aβ1-40 在海马体中的表达,并绘制了热图以可视化突触相关蛋白与 SASP 功能之间的相互作用。IL-1α, IL-1β与干扰素γ 水平与A含量呈正相关β1-40 和Aβ1-42 以及A的比值β1-42/Aβ1-40 (图 6E, p < 0.05),且与 SYN 蛋白含量呈负相关。IL-1 水平α 与 IFN-γ 与GAP-43蛋白含量呈负相关,且IL-1β 与PSD-95蛋白呈负相关图 6E, p < 0.05)。这些数据表明,IL-1α, IL-1β与干扰素γ 是导致突触功能障碍的主要因素。
数据可用性:
本研究的所有原始数据均已存入 Figshare 平台,可通过以下私人审阅链接访问: https://doi.org/10.6084/m9.figshare.33208029.
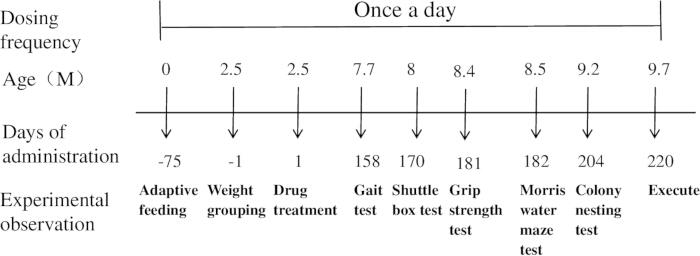
图 1: 实验流程示意图。 请点击此处查看此图的放大版本。
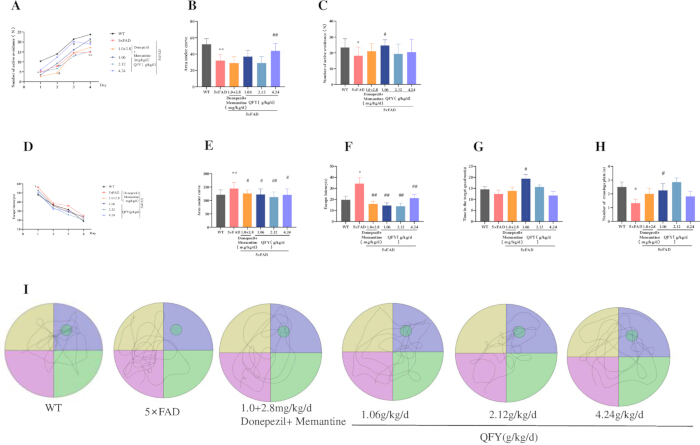
图 2QFY 给药可改善 5xFAD 小鼠的学习和记忆表现。(A–C) 穿梭箱测试: (A) 学习期间主动回避反应次数。 (B) 学习期间主动回避反应曲线下面积(AUC)。 (C) 测试期间主动回避反应次数。 (D–一) Morris 水迷宫测试: (D) 学习阶段的逃避潜伏期。 (E) 学习阶段逃避潜伏期的曲线下面积。 (F) 测试期间逃避潜伏期。 (G) 目标象限停留时间。 (H) 平台穿越次数。 (一) 测试期间的运动轨迹。平均 ± SD,n = 11–每组20只,具体数量标注于各柱状图内。* = p < 0.05, 对比 野生型,学生氏 t-测试; # = p < 0.05, ## = p < 0.01, 对比 5xFAD;单因素方差分析,随后进行 Dunnett 检验's多重比较检验。 请点击此处查看此图的放大版本。
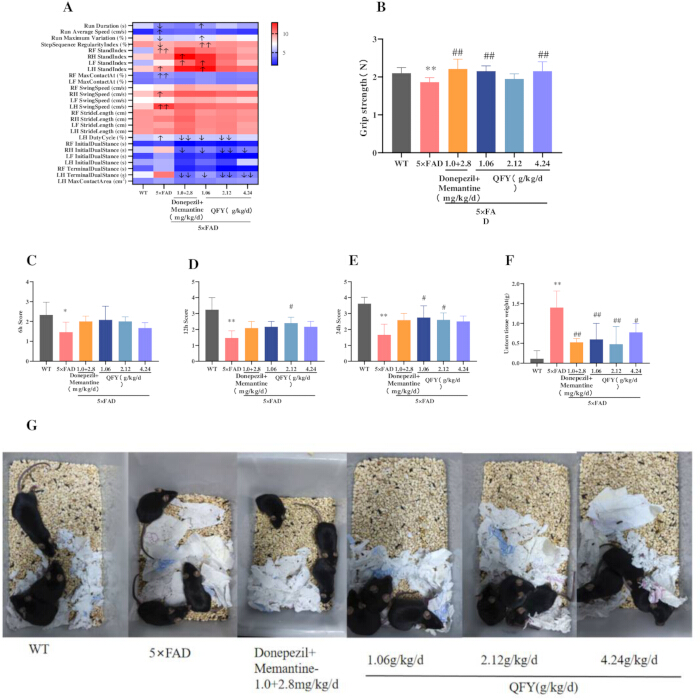
图 3QFY给药对5xFAD小鼠衰老相关功能指标的影响。 (A) 步态热图。色标基于行‑明智 Z‑分数归一化,其中红色表示高于组均值的数值,蓝色表示低于组均值的数值,白色代表均值水平。B) 握力测试。C–G) 集落筑巢测试:C) 筑巢评分 6 小时,(D) 12 小时筑巢评分。E) 24小时筑巢评分。F) 未撕裂组织重量。G) 24小时巢的代表性图像。平均值 ± SD,每组 n = 3,具体 n 值标注于各柱状图中。* = p < 0.05, ** = p < 0.01, 对比 野生型,学生氏 t-测试; # = p < 0.05, ## = p < 0.01, 对比 5x FAD,单因素方差分析后接 Dunnett 检验's多重比较检验。 请点击此处查看此图的放大版本。
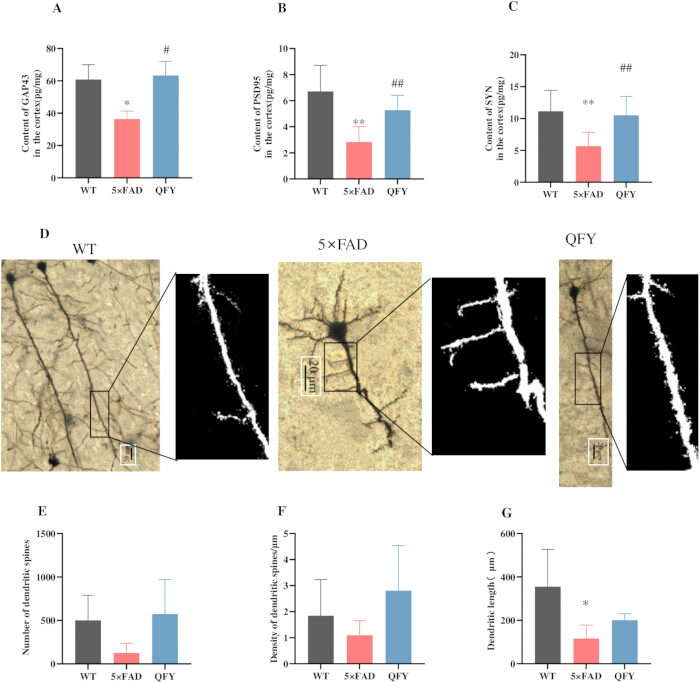
图 4QFY 可减轻 5xFAD 小鼠大脑皮层中的突触结构改变。 (A) 皮层中 GAP-43 的含量。B) 皮层中 PSD-95 的含量。C) 皮层中 SYN 的含量。D) 高尔基-考克斯染色法。E) 树突棘数量。F) 树突棘密度。G) 树突长度。平均值 ± SD,n = 3–每组14只,具体数量见各柱状图标注。* = p < 0.05, ** = p < 0.01, 对比 野生型,学生氏 t-测试; # = p < 0.05, ## = p < 0.01, 对比 5xFAD,学生 t-测试。 请点击此处查看此图的放大版本。
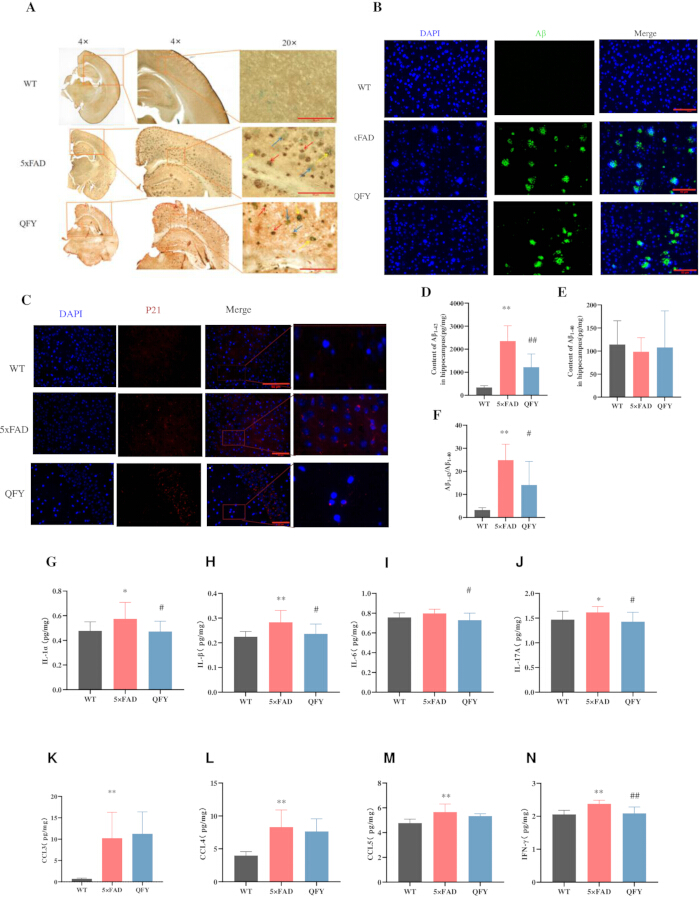
图 5QFY 降低了 Aβ 在5xFAD小鼠大脑中的沉积与细胞衰老。 (A) 联合SA-ββ-半乳糖苷酶染色与活性测定β 免疫组织化学,SA-β-Gal(绿色,蓝色箭头),Aβ (棕色,红色箭头),SA-β-Gal + Aβ (黄色箭头),n = 3,比例尺 = 10 µm,20倍物镜。B) 免疫荧光图像显示 Aβ 经QFY处理后的大脑皮层,n = 3,比例尺 = 50 µm,40倍物镜。C) 免疫荧光图像显示经QFY处理后大脑皮层中的p21。n = 1,比例尺 = 50 µm,40倍物镜。D–F) 酶联免疫吸附测定。D) A 含量β1-42 在海马体中。E) A 的含量β1-40 在海马体中。F) Aβ1-42/ 一种β1-40. (G–N) Luminex 细胞因子分析。G) 白细胞介素-1β 含量α 在大脑皮层中。H) 白细胞介素-1β 含量β 在大脑皮层中。I) 皮层中 IL-6 的含量。JoVE) 皮层中 IL-17A 的含量。K) 皮层中 CCL3 的含量。L) 皮层中 CCL4 的含量。M) 皮质中 CCL5 的含量。N) 干扰素含量γ 在大脑皮层中。平均值 ± 标准差,n = 8–每组14只,具体数量见各柱状图标注。* = p < 0.05, ** = p < 0.01, 与 WT,学生’s t-测试; # = p < 0.05 ## = p < 0.01, 对比 5xFAD,学生’s t-测试。 请点击此处查看此图的放大版本。
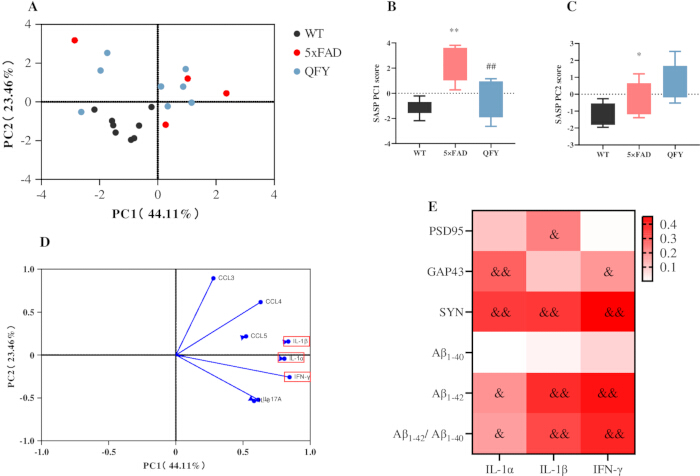
图 6主成分与相关性分析:SASP因子、突触蛋白与Aβ 经QFY治疗后5xFAD小鼠体内的水平。 (A–D) SASP 因子的主成分分析 (PCA)。(A) PCA 得分图。(B) PC1 得分。(C) PC2 得分。(D) PCA 载荷图。E) 由 SASP 与 PSD-95、GAP-43、SYN、Aβ1-40Aβ1-42, 以及A的比值β1-42/Aβ1-40颜色越接近红色,表示R值越高;颜色越接近白色,则表示R值越低。平均值 ± 标准偏差;每组 n = 8。* = p < 0.05, ** = p < 0.01,对比 野生型; ## = p < 0.01, 对比 5xFAD, & = p < 0.05, && = p < 0.01,表明存在显著相关性。采用 Pearson 相关分析评估变量间的关联性。 请点击此处查看此图的放大版本。
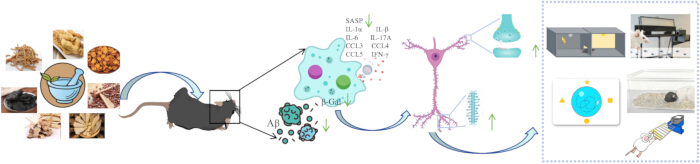
图 7QFY 对 5xFAD 小鼠年龄相关认知衰退及细胞衰老相关表型影响的模型。 请点击此处查看此图的放大版本。
讨论
神经突触可塑性在认知功能中起关键作用。在阿尔茨海默病(AD)患者的大脑中,Aβ沉积物扩散至不同脑区,直接导致突触结构损伤、兴奋性突触丢失以及认知功能下降28。GAP-43(一种突触前膜蛋白)29、PSD-95(一种位于突触后膜的支架蛋白)30以及SYN(一种与突触小泡相关的磷蛋白)31在突触结构可塑性及AD的发病机制中发挥重要作用32。本研究发现,QFY治疗可改善5xFAD小鼠的学习与记忆能力,减轻Aβ斑块负荷,并通过增加树突棘数量以及脑内GAP-43、PSD-95和SYN蛋白水平来恢复突触结构。
衰老是阿尔茨海默病(AD)发展的重要风险因素,可促进Aβ的产生。衰老的特征包括肌肉力量下降、步态失衡以及日常生活基本活动能力受损33,34。细胞衰老以SA-β-Gal为特征,已被报道与衰老及包括AD在内的年龄相关疾病的发生有关11,35。选择性清除衰老细胞可延长健康寿命并延缓年龄相关疾病的发生36。通过遗传或药理学方法清除衰老细胞,可减轻AD模型小鼠中的Aβ沉积,并改善其学习和记忆功能37。达沙替尼与槲皮素(D+Q)联合治疗可减少少突胶质前体细胞的衰老,缓解神经炎症,降低Aβ斑块和SA-β-Gal活性,预防APP/PS1小鼠中Aβ的积聚及认知功能障碍37。美金刚治疗显著降低了SAMP8小鼠脑组织中SA-β-Gal的活性,并改善了其空间学习与记忆能力;美金刚与多奈哌齐联合使用也观察到相同效果38。本研究发现,QFY治疗改善了5xFAD小鼠的步态,增强了前肢肌肉力量,并提高了其日常生活基本活动能力,尤其是通过脑组织中SA-β-Gal染色所显示的细胞衰老减轻所致。
阿尔茨海默病(AD)患者及动物模型均表现出星形胶质细胞、小胶质细胞、内皮细胞和神经元的衰老特征39,40。衰老相关分泌表型(SASP)的分泌,包括趋化因子和炎性细胞因子,是细胞衰老的显著特征;过量的SASP分泌可导致慢性炎症,进而引起组织损伤和细胞衰老41。持续分泌的SASP因子,如IL-1α、IL-1β、IL-6、IL-8、IFN-γ、CCL2、CCL3、CCL4、CCL5、CXCL1等,可促进慢性炎症、正常细胞的旁分泌衰老、细胞代谢和表观遗传调控的改变,以及Aβ的持续产生42,43,44,45。在AD患者和AD模型脑组织中,IL-1α、IL-1β、IL-6、IL-17A和IFN-γ的水平显著上调46。研究表明,D+Q可抑制包括IL-1α、IFN-γ在内的炎性因子分泌,并减少APP/PS1小鼠中的Aβ斑块和SA-β-Gal活性37。该研究发现,QFY可降低多种SASP因子的表达,包括IL-1α、IL-1β、IL-6、IL-17A和IFN-γ,从而减轻衰老相关的炎症表型。
p21 属于周期蛋白依赖性激酶抑制剂的 CIP/KIP 家族,可作为周期蛋白-CDK2/4 复合物的上游抑制因子,在细胞应激、DNA 损伤和衰老发生时诱导 G1/G2 期阻滞。p21 表达水平持续升高通常被解读为细胞进入稳定的衰老程序47,48。 最新研究数据显示,5xFAD 小鼠大脑中 p21 负荷异常升高,而联合使用 D+Q 后该水平显著降低49。与此一致,本研究发现,给予 QFY 可显著减少这些动物大脑皮层中的 Aβ 斑块,并抑制 p21 的表达。
综上所述,这些发现表明QFY治疗与5xFAD小鼠中与年龄相关的认知功能下降和细胞衰老表型的改善有关,同时突触结构损伤也有所减轻图7).
本研究存在若干局限性,需予以说明。首先,仅使用了雄性5xFAD小鼠,而所观察到的效应是否具有性别依赖性仍有待确定。其次,尽管现有数据表明衰老相关表型的减轻与认知功能改善之间存在显著关联,但我们并未开展直接的机制性干预实验以确立因果关系。第三,由于物种差异以及缺乏临床药代动力学数据,本研究结果向人类阿尔茨海默病(AD)的转化应用价值受到一定限制。未来有必要开展包含雌性动物、衰老特异性干预措施以及设计严谨的临床试验,以进一步拓展本研究发现。
披露
作者声明无任何利益冲突。
致谢
本工作获得了中国国家自然科学基金(82205078,82374062)、山东省自然科学基金(ZR2026MS1293,ZR2021QH157)、山东省中医药科学技术项目(M20251730)、中国西藏自治区科学技术项目(XZ202601ZY0167)以及山东省技术创新引导计划(中央引导地方科技发展基金)(YDZX2023137)的资助,项目名称为“通里肠溶胶囊作为1类新型中药的开发与产业化研究”。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 药物 | |||
| 多奈哌齐 | 上海源叶科技 | lot.J15HB188725 | |
| 美金刚 | 上海源叶科技 | 批号:J21HB189391 | |
| 芪复饮 | 鲁南制药厚朴研发中⼼ | lot. 2209001 | |
| 行为学实验 | |||
| CatWalk XT | Noldus | CatWalkXT 10.0 软件 | |
| 握力计 | Bileadbiosci | BLD-ZL-20 | |
| 莫里斯水迷宫 | 上海新软信息技术有限公司 | 120 cm | |
| 穿梭箱 | 上海新软信息技术有限公司 | XR-XC404 | |
| 抗体 | |||
| 抗-Aβ1-42 抗体 | Abcam | 货号 ab201061 | |
| 抗p21/CIP1/CDKN1A抗体 | Novus Biologicals | 货号 NBP3-15661 | |
| 检测试剂盒 | |||
| Aβ1-40 ELISA试剂盒 | 赛默飞世尔科技 | 货号 KHB3482 | |
| Aβ1-42 ELISA试剂盒 | 赛默飞世尔科技 | 货号 KHB3442 | |
| Bio-Plex Pro 小鼠细胞因子 23-plex 检测试剂盒 | R&D系统 | 货号 LXLBM23-1 | |
| GAP-43 ELISA试剂盒 | 江苏酶免疫分析产业 | 货号 MM-47506M1 | |
| 高尔基-考克斯染色试剂盒 | 北京博奥百奥生物科技有限公司 & 科技公司 | 货号 PK401 | |
| PSD-95 ELISA试剂盒 | 江苏酶免疫分析产业 | 货号 MM-45953M1 | |
| 衰老 ββ-半乳糖苷酶染色试剂盒 | Beyotime | 货号 C0602 | |
| 突触素(SYN)ELISA试剂盒 | 江苏酶免疫分析产业 | 货号 MM-46504M1 | |
| 化学品 & 试剂 | |||
| 抗兔和小鼠 IgG(二抗) | 引物 | 货号 S0C1001 | |
| DAB显色剂 | 引物 | 货号 S0C1001 | |
| 软件 | |||
| CatWalk XT | Noldus 信息技术公司 | 版本 10.0 | |
| ImageJ | 美国国立卫生研究院(NIH) | 版本 1.53 |
参考文献
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.