本方案描述了从立方水母Tripedalia cystophora分离的感器囊中记录视觉诱发的游泳起搏信号的细胞外电生理方法,可定量反映避障行为,从而精确研究视觉信息处理与感觉运动整合机制。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
箱形水母Tripedalia cystophora将成像晶状体眼、特征明确的视觉引导行为以及约含1000个神经元且易于研究的触手神经节神经系统相结合,使其成为在系统层面研究视觉信息处理与感觉运动整合的新兴模型。游泳起搏神经元可产生直接控制伞部收缩的运动指令,这些信号可从离体触手神经节的表皮柄神经上进行细胞外记录,从而为视觉驱动的运动输出提供定量代理指标。起搏神经元反应的强度以起搏信号计数和瞬时频率导出的标准神经活动量化,在超过决策转换阈值(DTT)后,其强度随刺激对比度而变化,从而实现对视觉驱动感觉运动整合的分级评估。在本实验方案中,我们涵盖了细胞外吸吮电极的制备、触手神经节的分离、记录室的配置、对下晶状体眼的视觉刺激呈现、硬件层面的刺激时序验证、电极在表皮柄神经上的放置,以及利用标准实验设备同步采集电生理信号与刺激数据的方法。
引言
理解神经系统如何处理感觉信息并将其转化为适应性行为,是神经科学领域的一个核心挑战。在果蝇(Drosophila melanogaster)等体型较大且复杂的模式生物中,研究已取得显著进展。果蝇大脑约包含200,000个神经元,结合其他具有遗传可操作性的模型以及先进的成像和神经环路绘制工具,使得对神经环路结构的精细解析成为可能1。然而,这些系统的高度复杂性使得人们难以在系统层面全面理解感觉输入、神经计算与行为输出之间的关系。在复杂性谱系的另一端,神经元数量极少且连接图谱完整的系统(例如秀丽线虫 Caenorhabditis elegans,仅含302个神经元2)等极简神经元模型虽结构简单、易于研究,但缺乏成像眼睛以及依赖视觉引导的行为能力。
Tripedalia cystophora,即加勒比海立方水母(图1A),正逐渐成为研究系统层面视觉信息处理与感觉运动整合的模式系统,在这两个极端之间占据着独特的位置3。本文所述的实验方案(图1)旨在使更广泛的神经科学研究群体能够充分开发和利用该动物的实验潜力。
T. cystophora 对于具有此类神经复杂性的动物而言,拥有极为精密的视觉系统。其四个被称为感棍的感觉结构中,每一个都带有六只眼睛,其中包括两只可形成图像的晶状体眼:上晶状体眼(ULE)和下晶状体眼(LLE)4(图1B)。这些并非简单的感光器官——它们具备马蒂森型梯度折射率晶状体(这种晶状体结构也存在于脊椎动物的眼睛中),以及外翻式视网膜,其中下晶状体眼约有600个感光细胞,上晶状体眼约有400个感光细胞,这些感光细胞直接与二级神经元相连5,6,7。感光机制的分子组成,包括与脊椎动物c-视蛋白同源的刺胞动物视蛋白(cnidops opsins)以及相关的光转导组分8,9,10,强烈提示这些是超极化型感光细胞。尽管其进化起源独立,T. cystophora 的视觉系统在广泛的功能类别上仍与脊椎动物眼睛处于同一范畴。
关键在于,这些光学结构的进化与复杂且可通过实验表征的、视觉引导的行为相匹配。T. cystophora 利用远距离导航和光束检测来维持其在光学环境复杂的红树林生境中的位置11,12,并通过避障行为绕开水下支柱根12,13,14。本研究的神经行为学框架认为,行为是感知处理在非语言动物中唯一有效的读出方式。由于我们无法直接询问动物所感知的内容,实验设计必须适应动物能够检测和理解的刺激,以及动物能够执行的行为。这意味着实验问题必须基于动物自身的感知逻辑来提出,而非研究者的主观设定。T. cystophora 的避障行为正是这一原则的例证。箱形水母的表皮仅由单层细胞构成,因此与水下支柱根发生碰撞可能因其脆弱身体受损而致命。由于不同感器之间的信息整合仅通过位于下游的环状神经实现15,单个感器神经系统(RNS)无法接收重叠的双目输入,因而无法通过立体视差计算深度。相反,该动物利用了水下光学的一个基本特性:物体与其周围水体之间的对比度随距离增加而迅速衰减。因此,高对比度的障碍物意味着距离较近,构成直接威胁;而低对比度的障碍物则距离较远,尚不构成威胁。动物利用对比度作为距离的代理指标16。在自由活动的个体中,避障行为(OAB)基于“行动/不行动”的决策机制:当动物检测到水下障碍物的对比度超过决策转换阈值(DTT)——即障碍物已足够接近并构成威胁的临界点时,便会触发“行动”反应,表现为3–5次快速的伞部收缩、120–180°的方向转变,并迅速游离障碍物14(图1C)。高于DTT时所引发的节律起搏器反应的强度梯度,反映了威胁紧迫性的梯度变化16。因此,OAB为研究感觉-运动整合提供了一个高度可操作的行为检测系统:一个明确的视觉参数(对比度)控制着一种刻板且可量化的运动输出,使其成为探究视觉驱动决策神经基础的理想模型。
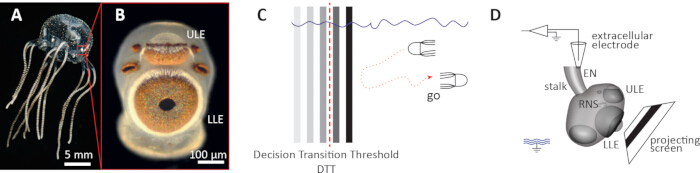
图1:Tripedalia cystophora 离体感棍制备用于细胞外电生理记录的概述。(A)成年 T. cystophora 水母。比例尺:5 mm。红色方框标示感棍在伞缘上的位置。(B)离体感棍的放大图。上晶状体眼(ULE)和下晶状体眼(LLE)为成像眼。比例尺:100 µm。图像由 Dan-Eric Nilsson 提供,经许可复制。(C)障碍物回避行为(OAB)的示意图。当信号低于决策转换阈值(DTT,红色虚线)时,动物继续向障碍物游动(不行动);当信号高于 DTT 时,启动障碍物回避行为(行动)。(D)离体感棍电生理实验装置示意图。感棍被放置为正对倾斜的投影屏幕。细胞外电极从表皮柄神经(EN)记录游泳起搏信号。RNS:感棍神经系统;ULE:上晶状体眼;LLE:下晶状体眼;EN:表皮柄神经。接地符号表示浴槽参考电极。请点击此处查看该图的放大版本。
介导这种视觉处理的神经结构是神经节(RNS),每个感器囊(rhopalium)约含有1000个神经元17。尽管神经元数量有限,RNS在结构上却十分复杂。免疫组织化学证据表明,RNS被组织成若干离散的神经元簇,各簇表达不同的神经肽谱型18,这与分区化的信息处理架构相一致。有研究提出,视觉信息通过若干从属振荡簇(subOCs)进行处理,每个subOC与感器囊上的特定眼相关联,这些subOC汇聚到一个终末振荡簇(trmOC)——该结构被认为对应于产生运动输出信号以控制伞部收缩的起搏细胞群3。我们提出,trmOC整合来自subOCs的已处理感觉信息,并生成驱动行为运动输出的游泳起搏信号,而subOCs与trmOC之间的同步化是将视觉输入转化为行为控制输出的基础3(图2)。
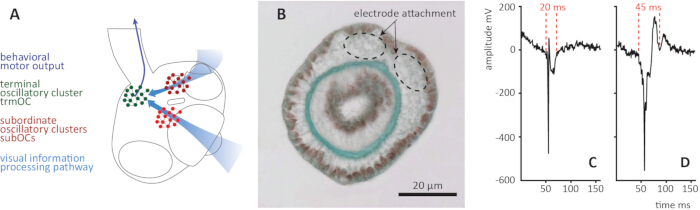
图 2:Tripedalia cystophora 中游泳起搏信号的神经回路起源及其电生理鉴定。(A)感器囊神经系统示意图。视觉信息通过与各个眼相关的次级振荡簇(subOCs,红色)进行处理,并汇聚到终末振荡簇(trmOC,绿色)。推测trmOC整合来自subOCs的已处理感觉信息,并产生驱动行为运动输出的游泳起搏信号。浅蓝色箭头表示视觉信息处理通路;深蓝色箭头表示行为运动输出。(B)横切的表皮柄表面透射电子显微镜(TEM)图像。虚线圆圈表示分叉的表皮柄神经在柄部口面侧的两个附着点,对应于记录电极的放置位置。(C)类似动作电位的信号。该波形特征为陡峭、狭窄的偏转,持续时间约为20 ms(由红色虚线标示)。(D)源自trmOC的游泳起搏信号。该波形更宽,特征持续时间约为45 ms(由红色虚线标示),并表现出复合形态,反映了多个trmOC神经元活动的总和。尽管两种信号类型的振幅相近,但波形持续时间和形态是下游分析中可靠的区分标准。所有电生理数值均为放大后(×1000)的结果。经Bielecki等24许可修改。请点击此处查看该图的放大版本。
这种结构提供了一个极为理想的实验机会。由trmOC产生的游泳起搏信号以严格的一对一方式驱动伞缘收缩19,并且可以从离体感器的表皮柄神经上进行细胞外记录13,20。这意味着,即使在完全去除运动效应器的制备中,仍可通过电生理学方法监测由视觉诱发的运动指令,进而监测视觉引导的行为反应14。因此,离体感器在方法学上占据了一个在其他系统中难以实现的中间位置:它既具备简化制备所具有的实验可控性,包括对时空视觉刺激的精确设定,又能直接定量地读取与行为相关的神经输出。在无干扰条件下,起搏信号的发生频率为0.5–1 Hz;而由视觉诱发的避障反应则表现为频率升高至2–3 Hz,为分析提供了清晰的信号窗口14(图1D)。
这些特性组合使得离体的T. cystophora触手囊制备物成为研究视觉信息处理和感觉运动整合系统水平机制的理想模型。该制备物适用于希望在具有成像眼和特征明确的视觉引导行为的可操作神经系统中,研究视觉处理、感觉运动整合或振荡性网络动态的研究人员4。实验仅需标准的电生理设备、一台经改装的商用投影仪以及解剖显微镜,可在无需特殊基础设施的实验室中建立。此前针对该制备物所描述的关联性机械-视觉学习范式——即视觉刺激与机械感觉刺激的关联性配对14——可作为本文所述基本记录方案的扩展加以实施。
访问受限。请登录或开始试用以查看此内容。
方案
本研究无需动物伦理审批。刺胞动物门动物(包括立方水母 *Tripedalia cystophora*)不在欧盟关于用于科学目的动物保护的2010/63/EU号指令的适用范围内,该指令仅适用于头足类动物和脊椎动物。本研究使用的动物采集自美属波多黎各拉帕尔格拉附近的红树林溪流,该地区并非《关于遗传资源获取与惠益分享的名古屋议定书》缔约方,因此无需事先知情同意或获取与惠益分享协议。*Tripedalia cystophora* 未被列入《濒危野生动植物种国际贸易公约》(CITES)或任何适用的国家保护法规中的濒危或受保护物种名录。
1. 平台与信号链设置
注意:所有硬件组件及其连接方式均如图3所示。本节操作过程中请参考图3。在接触动物之前,必须完成本节中的所有步骤。此时记录室尚未加入海水。
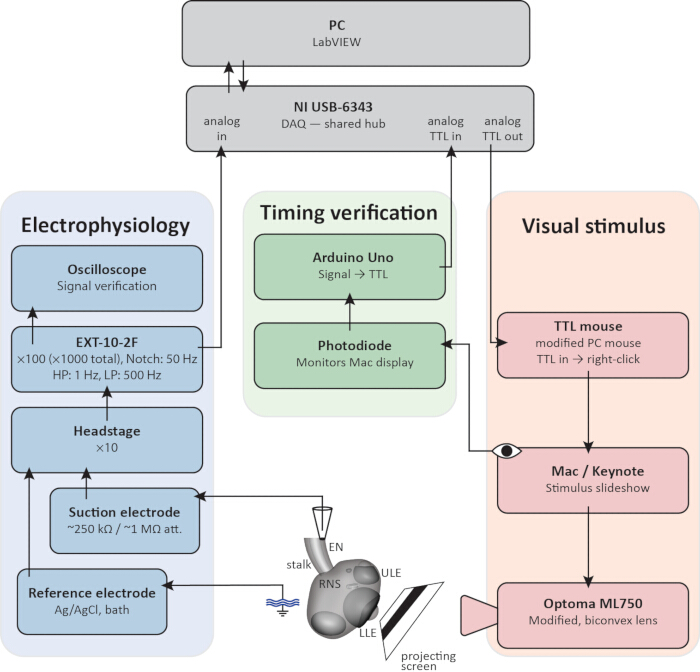
图3:离体视柄细胞外电生理记录装置的连接示意图。 运行虚拟仪器(VI)的计算机和数据采集设备(DAQ,顶部灰色部分)作为全部三个信号通路的共同集成中心。电生理信号通路(蓝色):通过吸吮电极(游离尖端阻抗约250 kΩ,吸附后约1 MΩ)和浴槽中使用的Ag/AgCl参比电极,记录来自表皮柄神经(EN)的游泳起搏信号;信号经EXT-10-2F前置放大器(×10)和主放大器(×100,总放大倍数×1000)放大,带通滤波(高通:1 Hz,低通:500 Hz),并进行50/60 Hz陷波滤波,在示波器上监测,并由DAQ采集。视觉刺激通路(红色):DAQ输出的TTL脉冲通过改装的PC鼠标(TTL鼠标)切换刺激幻灯片,驱动DLP投影仪(经改装,使用双凸透镜),将刺激图像投射到记录室前方倾斜的屏幕墙上,正对下 lens眼(LLE)。时间验证通路(绿色):光电二极管监测计算机显示器上的黑白指示方块,该方块在刺激开始时由白色变为黑色,在刺激结束时恢复为白色;Arduino Uno将此信号转换为TTL脉冲,并由DAQ记录,作为经验证的刺激时间窗口。RNS:视柄神经系统;ULE:上 lens眼;LLE:下 lens眼;EN:表皮柄神经。所有幅度值均为放大后(×1000)数值。请点击此处查看该图的放大版本。
- 记录室的构建
- 设计或3D打印一个具有足够内部尺寸的记录室,以容纳实验标本、固定微电极尖端和记录电极尖端。
注意:关键的功能设计特征是盖玻片凸缘,其将视杆体定位在距投影屏幕2 mm的盖玻片边缘处,以及屏幕尺寸(16 mm × 12 mm,倾斜) 60°),二者共同决定了视觉刺激在下透镜眼处的角距离。本文所述装置的底座尺寸为 30 mm × 30 mm,壁厚约为 5 mm。技术图纸见于 图4. - 将Roth 20 mm × 26 mm血细胞计数板盖玻片放置于记录室的盖玻片托架上。盖玻片依靠负浮力固定就位,无需使用粘合剂固定。
- 使用M6通孔将记录室安装在显微镜载物台上。建议使用x-y-z三维平移台,以便将投射图像精确对准记录室的投影屏幕壁。
- 将记录室的流入和流出端口与灌流通道连接(图4A)至控温水浴循环水 28 °C.
注意:记录室的温度应维持在 28–30 °C 在整个实验过程中。
- 设计或3D打印一个具有足够内部尺寸的记录室,以容纳实验标本、固定微电极尖端和记录电极尖端。
- 光学配置(图3,视觉刺激序列
警告:切勿直接观看投影仪输出,尤其是在安装中性密度滤光片之前(第4节)。移除制造商的镜头系统会失去内置的光衰减功能,可能导致眼部损伤。- 从投影仪上拆下制造商的镜头系统。
- 在投影仪输出孔径前方安装一个平凸透镜(f = 30 mm),将投射的图像聚焦到记录室的投影屏幕墙上。
- 调整投影仪,使投影图像在记录室的投影屏幕墙上清晰对焦,并充满整个屏幕区域(16 mm × 12 mm)。
注意:此阶段不插入中性密度滤光片。适当的滤光片强度将在第4节的生物学校准过程中通过实验确定。
- 信号通路组装(图3,电生理学和时序验证链路)
- 将电极夹持器连接到EXT-10-2F放大器配套的头级臂上,并将头级臂固定在一台MM33显微操作器上。
- 将头级放大器连接至主放大器。头级放大器增益为 ×10。将主放大器增益设置为 ×100,总放大倍数为 ×1000。
- 将放大器输出端连接至模拟-数字转换器(DAQ)的模拟输入通道。
- 通过 USB 将数据采集设备(DAQ)连接至运行 LabVIEW(版本 2018 或类似版本)的计算机。
- 将 Arduino Uno 的 TTL 输出连接到数据采集设备(DAQ)的专用模拟输入通道。
- 将光电二极管置于计算机显示屏上的黑白指示方块上方(步骤1.4.2)。将光电二极管的正极连接至Arduino Uno模拟输入引脚A0,负极接地。用于实现光电二极管监测及TTL输出阈值逻辑的Arduino程序作为补充材料提供补充文件 1).
- 刺激几何形状设计(图3, 视觉刺激序列
- 在演示软件中将视觉刺激设计为白色背景上的移动垂直灰色条,模拟红树林支柱根障碍物。将背景设置为最亮白色。
注意:条形刺激相对于白色背景的灰度决定了刺激的对比度,该参数在第4节的辐照度表征过程中确定。条形应张成 30° 下透镜眼的视场角(在视场中心测量)并移动 10° s-1 在整个视野宽度范围内移动,且始终停留在视野内。投射障碍物的视觉角度可通过以下方式确定:
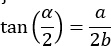
其中α为视角,a为图像特征的宽度,b为下部透镜眼到屏幕的距离。条形物的运动通过单个连续的对象动画(例如 Keynote 的“移动”动画效果)在一张幻灯片内作用于条形对象来实现,而非通过一系列离散的幻灯片实现。用于实现该动画的代表性刺激文件作为补充材料提供补充文件 2)。由于光栅的宽度和速度以视觉角度而非物理单位表示,因此必须根据记录室特定的工作距离和屏幕尺寸,使用上述公式将其转换为毫米(mm)和毫米/秒(mm/s),然后作为动画中物体大小和持续时间输入到呈现软件中。 - 在幻灯片的一角包含一个小型黑白指示方块,该方块在条形移动开始时由白色变为黑色,并在刺激结束时恢复为白色。在步骤3.3中,使用光电二极管监测计算机显示屏上的此方块,以验证刺激时间。
注意:黑色和白色指示方块必须作为幻灯片的一部分出现在计算机显示中,因此在记录室屏幕的投影图像中必然可见。然而,该方块的尺寸仅与计算机显示器上光电二极管的感受区域相匹配。当投影到记录室屏幕时,其尺寸足够小,以至于下部透镜眼无法将其分辨为一个独立的视觉特征,且其对屏幕整体亮度的贡献可忽略不计,不会引发光的开启/关闭反应。4,13,20. - 使用自动或手动触发方式推进演示文稿软件的幻灯片。
- 选项A(自动):通过改装标准PC鼠标构建一个晶体管-晶体管逻辑(TTL)鼠标,使其接收来自数据采集设备(DAQ)输出的短暂5 V TTL脉冲时,替代鼠标右键点击信号。通过USB将TTL鼠标连接至演示计算机。配置演示软件,使其在接收到右键点击输入时切换幻灯片。
- 选项B(手动):在预期的刺激开始时刻手动触发幻灯片切换。由于用于分析的最终时间记录是经过Arduino验证的刺激时间窗(通道3,参见步骤6.2.1),而非触发信号本身,因此手动触发不会影响时间精度。但该方法要求操作者在数据采集过程中具备精确的时机把握,且相比自动触发方式更为不便。
- 在演示软件中将视觉刺激设计为白色背景上的移动垂直灰色条,模拟红树林支柱根障碍物。将背景设置为最亮白色。
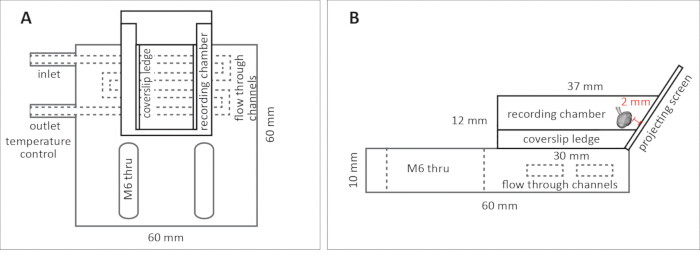
图4:用于分离触手囊制备的记录室装置。(A)顶视图示意图。记录室两侧设有流通式流道,用于夹套控温,进液口和出液口(外径4.2 mm,内径2.5 mm)已标出。盖玻片支承台沿记录室内壁两侧纵向延伸,用于在腔室中部高度支撑血细胞计数板盖玻片。M6通孔用于将腔室固定在显微镜载物台上。整体尺寸:60 mm × 60 mm。(B)带尺寸标注的侧视图示意图。记录室内高12 mm,顶部宽度为37 mm。腔室一侧壁作为投影屏,相对于垂直方向倾斜60°,以与下透镜眼的光轴对齐。盖玻片支承台将触手囊固定在朝向投影屏的盖玻片边缘处。图中所示2 mm的工作距离是针对本方案中描述的特定腔室、屏幕和投影仪配置;若读者将此设计适配于不同硬件,应根据步骤1.4.1中的公式重新计算其装置的合适工作距离。用于温度控制的流通式流道位于记录室底座内部,不与样品接触。请点击此处查看该图的放大版本。
2. 电极制备
注意:细胞外吸电极由玻璃毛细管制成,其尖端经过拉制形成锥形开口,适用于吸附固定并记录电位。玻璃毛细管起到电绝缘作用,确保仅记录尖端处的电位。将一根银丝插入毛细管内并连接至放大器。该配置可实现多单元记录,即通过与浴槽中放置的参考电极对比,记录电极尖端附近起搏细胞群的电活动。 电极应在使用当天、记录实验开始前制备。储存的电极容易发生尖端堵塞,导致无法吸入海水,从而使电极失效。 拉制后的玻璃毛细管尖端锋利且易碎。在制备过程中应小心操作,避免刺伤;破损、废弃或使用过的毛细管须丢弃于指定的锐器容器中。
- 拉制玻璃毛细管
- 将硼硅酸盐玻璃毛细管(内径 1.16 mm × 外径 2.00 mm × 长度 80 mm)装入微电极拉制仪。
- 执行以下拉制程序:第 1 行(×1):加热 535,拉力 0,速度 12,时间 200,压力 600,斜坡 540;第 2–4 行(×3):加热 532,拉力 0,速度 12,时间 100。
注意:这些参数针对所使用的仪器、玻璃材质和灯丝而设定,在不同设备上或灯丝磨损后可能需要调整;应将其视为起始参考值,而非固定不变的规范。 - 小心取出已拉制的电极,并将其尖端朝上存放,以防机械损伤。
- 抛光电极尖端
- 对尖端进行抛光,以形成一个与毛细管轴线垂直的光滑、可实现真空密封的表面。请参考以下两种选择;推荐使用选项 A(微熔炉法)。
- 选项 A:使用微熔炉抛光(推荐)
- 将已拉制的电极安装至微熔炉中。
- 在 600 倍放大倍数下(40× 物镜,15× 目镜),将电极尖端置于加热灯丝附近。
- 加热并抛光尖端,直至其开口电阻约为 250 kΩ(接触组织时对应约 1 MΩ)。在 600 倍放大下,这大约相当于目镜测微尺刻度上的三个刻度单位。
注意:测量电极电阻时,需在电极内充满海水后,将万用表连接于 BNC 接头中心电极(连接至电极内的银丝)与浴槽参比电极(Ag/AgCl 小球)之间。对于以信号质量为主要评估标准的标准视觉诱发电位记录(见步骤 6.1.5),无需测量电极电阻;但当本制备方法用于需要精确电流输送的联合型学习范式时(超出本方案范围14),则必须进行电阻测量。 - 在从微熔炉中取出电极前,确保其完全冷却。
- 选项 B:无微熔炉的手动抛光
警告:此步骤使用明火(乙醇燃烧器)。请远离易燃物,并遵守实验室明火操作的标准安全规范。- 将已拉制的毛细管尖端短暂置于乙醇燃烧器火焰中,直至玻璃熔化并在尖端形成细小液滴以封闭开口。
- 让封闭后的尖端完全冷却。
- 在细砂纸(粒径 1200)表面滴一滴去离子水,并将毛细管垂直于砂纸表面持握。
- 以小范围圆周运动打磨尖端,交替进行顺时针与逆时针方向运动。
- 持续小心打磨,直至有少量含玻璃碎屑的水通过毛细作用被吸入尖端。
- 在毛细管另一端连接一段橡胶管,并将其接至注射器。
- 施加轻柔负压,使去离子水通过尖端,冲出玻璃碎屑。
- 若碎屑未清除干净,可再轻微打磨片刻,并重复冲洗步骤。
注意:成品尖端在轻柔负压下的目标流速约为每 10 秒通过 1 cm 水柱。电极制备是否成功应由记录结果(低噪声、高幅值信号)决定,而非尖端外观。两种抛光方法所制电极中,约有 40%–50% 可获得合格记录,但失败原因不同。对于微熔炉抛光(选项 A),失败通常源于拉制步骤(步骤 2.1)中产生的不均匀孔径结构,后续热抛光无法完全纠正;而对于手动抛光(选项 B),成功率主要取决于操作者技巧,最常见的失败原因是过度打磨导致孔径过大。光滑、尺寸合适且呈圆形的孔径可显著提高获得高质量记录的概率,但并不能保证成功——最终的功能性表现才是唯一决定性标准。
- 组装电极
- 将抛光后的毛细管插入电极夹持器中,确保 Ag/AgCl(银/氯化银)导线在玻璃毛细管内充分伸展且无弯折,然后将其安装至 EXT-10-2F 放大器配套的前置放大器臂上。将前置放大器臂固定于 MM33 微操纵器上。
注意:若银丝未氯化,可通过电化学方法进行氯化处理:将电极中的银丝与另一根纯银电极共同浸入 2 M KCl 溶液中,通过绝缘导线连接至 12 V 直流电源。以约 2 分钟为间隔施加电流,并在每次之间目视检查银丝状态;当银丝明显变暗时即表明氯化充分,通常在总计 5 分钟内完成。氯化后需用去离子水充分冲洗。未氯化的银丝可能引入较大且不稳定的直流偏移。
警告:在 KCl 溶液中进行电解氯化会生成氯气和氢气。操作应在通风良好的区域进行。废弃的 KCl 氯化液应按照机构危险废物处理指南妥善处置。 - 在记录前立即填充电极:直接从盛满海水的记录槽中吸取海水进入毛细管,直至内部溶液上升至银丝中段位置。填充操作详见步骤 3.1。
注意:固定用微电极对光学或电学性能的要求低于记录电极。在制备过程中因尖端直径过大(电阻低于 250 kΩ)或尖端偏心等原因被弃用的电极,可用于此目的,建议保留。无需专门制作固定用微电极。
- 将抛光后的毛细管插入电极夹持器中,确保 Ag/AgCl(银/氯化银)导线在玻璃毛细管内充分伸展且无弯折,然后将其安装至 EXT-10-2F 放大器配套的前置放大器臂上。将前置放大器臂固定于 MM33 微操纵器上。
3. 系统验证
在引入实验制备之前,本步骤用于验证完整的记录系统——包括电极、信号通路、刺激传递和时间验证——是否正常工作。完整的信号通路如图3所示。在继续操作前,请确认所有连接均已正确连接。
- 记录室填充与电极制备
- 使用来自培养罐的经0.20 µm滤膜过滤的海水填充记录室。这可确保培养环境与记录室之间的化学成分连续一致,避免感光器暴露于外来化合物或可能影响起搏器活性或样本活性的水质变化。
- 通过将记录室中的海水吸入毛细管,直至内部溶液上升至银丝一半高度,完成记录用吸电极的填充。同时,从记录室中吸取足量海水填充固定用微电极,以便通过负压吸附晶体。
- 将Ag/AgCl(银/氯化银)烧结颗粒电极置于记录浴液中,并连接至前置放大器的参考输入端。
- 接地与噪声验证
注意:本实验装置在靠近海水的环境中运行电气设备。请确保所有电气连接和设备远离记录室及任何液体溢出区域,并遵守机构针对潮湿环境作业制定的电气安全规范。- 将所有仪器接地至同一个公共接地点(星型接地配置),以防止形成接地环路。
- 在示波器上监测信号。在继续操作前,确认基线清晰且无噪声。
注:在本实验室中,细胞外记录通常不使用法拉第笼,因为严格的星型接地在消除电噪声(50/60 Hz)方面始终比物理屏蔽更有效。
- 时间验证链
- 运行LabVIEW虚拟仪器(VI)(作为补充材料提供,补充文件3)。在系统验证期间运行该VI。该程序将发送TTL脉冲至TTL鼠标以触发刺激生成,并生成一个.txt输出文件,用于确认在引入实验样本前,所有通道——电生理信号、LabVIEW TTL和Arduino TTL——均被正确采集。
注:LabVIEW记录的TTL命令与Arduino确认的刺激起始之间存在不可预测的延迟,该延迟在本阶段不予解决,而是在每次记录的数据分析阶段单独测定并校正(步骤7.2.1)。 - 验证DAQ输出的TTL脉冲是否能正确触发刺激生成,并确认视觉刺激按设计投射至投影屏幕。
- 验证Arduino Uno是否能检测计算机显示屏上黑白指示方块的变化,并向DAQ输出TTL脉冲。
注:Arduino Uno通过analogRead(A0)采样光电二极管电压。当采样值低于经验确定的阈值(本系统中为0–1023 analogRead范围内的61)时,数字输出引脚5设置为5 V(TTL高电平);当数值回升至阈值以上时,输出返回0 V。该阈值依赖于具体设置,必须针对每块屏幕和环境光照条件重新校准。 - 确认来自Arduino Uno的刺激窗口TTL信号与电生理通道及VI数字TTL通道一同被正确记录在LabVIEW VI生成的.txt文件中。
注:DAQ不直接记录光电二极管信号,因为原始光电二极管输出在DAQ输入端噪声过大,无法实现可靠的刺激检测。由Arduino Uno将其转换为干净的TTL脉冲,可确保获得可靠且低噪声的时间信号。实现光电二极管监测与TTL输出的Arduino程序作为补充材料提供(补充文件1)。1 kHz的Arduino刷新率与DAQ采样率匹配,确保无时间信息丢失。 - 在确认所有通道正常后,排空记录室并从室内取出电极,为第4节操作做准备。
- 运行LabVIEW虚拟仪器(VI)(作为补充材料提供,补充文件3)。在系统验证期间运行该VI。该程序将发送TTL脉冲至TTL鼠标以触发刺激生成,并生成一个.txt输出文件,用于确认在引入实验样本前,所有通道——电生理信号、LabVIEW TTL和Arduino TTL——均被正确采集。
4. 光照校准与对比度测定
注意:本节用于建立对下晶状体眼进行视觉刺激的正确光学配置,并确定对比度计算所需的辐照度值。生物校准步骤使用一个牺牲用的触手囊。在无任何样本置于记录腔室的情况下进行辐照度表征。本节耗时较长。生物校准、全灰度级范围内的辐照度表征以及对比度计算可能需要在正式记录前单独安排一次实验时段。用于生物校准的触手囊在本节完成后必须丢弃,不可用于后续电生理记录。
- 生物学校准
- 用来自培养罐的0.20 µm滤过海水填充记录室。
- 分离一个感器囊(rhopalium),并按照第5节所述步骤将其转移至记录室。
- 使用固定微移液管将感器囊置于盖玻片边缘,使其面向投影屏幕(图1D)。
注意:将感器囊置于盖玻片边缘而非盖玻片表面有两个目的:第一,盖玻片边缘可被放置在距投影屏幕固定且可重复的距离处,确保所有记录中的工作距离一致;第二,下透镜眼无需透过玻璃盖玻片观察屏幕,从而避免视觉刺激的角畸变。盖玻片边缘到投影屏幕的距离决定了所有投射刺激在下透镜眼处的视角大小,该距离在所有记录中必须保持恒定。在本方案描述的记录室中,此距离为2 mm。 - 按照步骤6.1所述方法,将记录电极连接至表皮柄神经。
- 呈现一个最大对比度障碍物(c ≈ 1.0,白色背景上的黑色条),使其横跨整个视野移动,并评估起搏器信号的响应(图1C;图5)。
注意:光度测量证实,所用投影系统最亮与最暗灰度级别之间的最大可实现对比度为c ≈ 0.99,这反映了投影仪黑点处的残余亮度,而非刺激设计的限制;因此本方案中所有最大对比度刺激均采用近似表示法(c ≈ 1.0)。
注意:(关键)满意的响应表现为起搏器信号频率出现显著增加(高于2 Hz),在障碍物前缘到达视野中心时以短暂、时间锁定的爆发形式出现,而非在整个刺激呈现期间持续存在,此爆发期间大约产生5–15个起搏器信号(图5B)。响应强度(包括频率和信号数量)随刺激对比度升高而增强;因此对最大对比度刺激(c ≈ 1.0)的响应应尽可能强,因为这反映了下透镜眼的正确朝向、电极连接良好以及投影仪校准准确,并确保有足够的动态范围以区分低对比度水平下的响应。这表明光感受器在其动态范围内工作,未因过强辐照度而饱和。 若尽管样本状态良好且自发起搏器活动频率为0.5–1 Hz,但仍未能观察到起搏器频率的调制,则应怀疑光感受器因辐照度过高而饱和。此时应在透镜组件中插入中性密度滤光片(例如Thorlabs NE01A,光密度=0.1,视需要而定),并重复校准。逐步增加衰减程度,直至获得明显的起搏器频率响应。所有后续记录必须在此滤光片配置下进行。 - 一旦获得满意的生物学响应,记录所用中性密度滤光片的配置。此配置在使用该光学装置的所有后续记录中保持固定。
- 将感器囊从记录室中移除并丢弃。用于生物学校准的感器囊因校准过程耗时,不可用于后续记录。
- 辐照度表征
- 清空记录室,并确保投影屏幕表面干燥。将光谱仪光纤直接垂直放置于投影屏幕表面。
注意:大多数光谱仪光纤不防水。在将光纤放置于屏幕前,必须确保记录室为空且屏幕表面干燥。 - 使用呈现软件,依次以每个待测灰度级别均匀照亮投影屏幕,并使用光谱仪记录辐照度(350–700 nm)。
注意:建议从最大到最小灰度级别(白到黑)依次进行,因为光谱仪在高辐照度水平下最易过曝。在不同灰度级别范围内可能需要重新校准积分时间,以避免过曝或欠曝。该过程覆盖所有灰度级别,耗时较长,应合理规划。 - 根据下透镜眼中存在的 T. cystophora 500 nm 视蛋白的吸收光谱,对每个测得的辐照度值进行校正21,22。
注意:视蛋白校正方法是将每个波长处测得的辐照度乘以Govardovskii视觉色素模板中λmax为500 nm对应的受纳系数21,然后在测量的波长范围内求和,得到单一的视蛋白校正后辐照度值。在获取原始光谱辐照度数据后,可在任何标准电子表格软件中完成此计算。 - 使用校正后的辐照度值计算每个灰度级别的对比度:

其中 Iw 为白色背景的视蛋白校正后辐照度,Ig 为灰色或黑色条的视蛋白校正后辐照度。对比度值范围为0(条与背景无法区分)至1(最大对比度,白色背景上的黑色条)。 - 根据计算出的对比度值,确定对应实验方案所需对比度水平的灰度级别。使用这些灰度级别更新呈现软件的幻灯片。
注意:对比度是辐照度值的比值,因此对所有灰度级别上绝对光源输出的均匀变化不敏感。只要光学配置保持不变,辐照度表征无需在每次记录会话之间重复进行。然而,若在不同会话中观察到刺激响应出现意外变化,建议验证辐照度的稳定性。
- 清空记录室,并确保投影屏幕表面干燥。将光谱仪光纤直接垂直放置于投影屏幕表面。
<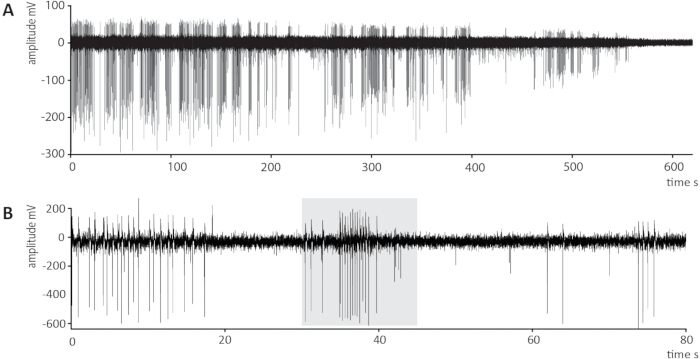
图5:离体Tripedalia cystophora菱形体中游泳起搏器信号的代表性细胞外记录。(A)在一次长时间记录过程中电极封接逐渐丢失的示例。起搏器信号振幅约在200–250秒时开始下降,反映出电极尖端与表皮柄神经之间的电接触恶化,并在约580–600秒时信号完全丢失。信号振幅和背景噪声同步降低,这是封接丢失的典型特征。(B)在DTT上方记录到的视觉诱发避障反应的代表性结果。灰色阴影区域表示刺激时间窗,由Arduino TTL信号定义,在此期间,一个高对比度(c = 0.80)的垂直条形障碍物横跨下 lens 眼视野的整个宽度移动。在刺激时间窗内,起搏器信号频率显著升高,符合视觉诱发的避障反应特征;刺激结束后,频率恢复至基线水平。在刺激时间窗之外出现的自发性起搏器信号属于正常现象,不应视为视觉诱发反应。请注意,各子图中y轴尺度的差异反映了记录质量的不同,并不表示信号强度存在差异;在细胞外电生理记录中,信号振幅主要取决于电极封接质量,而非生理反应的强度。所有数值均为放大后(×1000)的结果。请点击此处查看该图的放大版本。
5. 感觉棍的分离与转移
注意:每次需要触手囊时均需执行此操作:第4节中使用一个牺牲用触手囊进行生物学校准,随后在第6节中对每个实验用触手囊依次操作。每次操作前,必须在接触动物之前完成所有硬件的组装并进行验证。实验用触手囊的数量由实验设计决定。
- 使用一次性塑料移液管,将管尖剪裁至开口直径约为 8 mm,将一只动物从培养缸转移至含有 0.20 µm 过滤海水的 35 mm 培养皿中,过滤海水取自原培养缸。
- 去除多余海水,直至动物紧贴培养皿底部且不再移动,但避免其脱水。
- 使用精细剪刀(Vannas 剪刀,刀刃尺寸为 0.025 mm × 0.015 mm),在茎部约距感器附着点三分之二长度处(即远离感器的一侧)切断连接感器与伞部的茎部。切断后立即用取自培养缸的 0.20 µm 过滤海水重新注满培养皿。
警告:Vannas 剪刀极为锋利。解剖过程中应小心操作,避免造成伤害。
注意:切断后,感器可能回缩至其所在的凹陷结构(rhopalial niche)内。重新注满过滤海水通常可使感器脱离凹陷。若未脱离,可用巴斯德移液管轻轻冲洗将其冲出。
使用巴斯德移液管(150 mm),将分离出的感器转移至置于显微镜载物台上的电生理记录室中。(关键步骤)确保感器在转移过程中及之后始终浸没于海水中。暴露于空气中将不可逆地损伤组织样本。 - 使用移液管将动物送回培养缸。
注意:单个感器的缺失不会显著影响箱型水母的正常行为;即使仅保留一个感器,动物仍可表现出正常的摄食行为和对光束的反应行为。此外,感器可在移除后两周内完全再生,恢复包括起搏信号产生和正常光感受器反应在内的全部功能23。该动物可在后续实验中重复使用,直至所有感器均被移除。一旦四个感器全部被移除,动物将无法产生游泳起搏信号或引发伞部收缩,此时应按照标准实验室下水道处理程序人道处置,处理方式与感器组织的处置一致(步骤 6.2.5)。
6. 记录
- 感器定位与电极连接
- 通过将记录室中的海水直接吸入毛细管,填充记录用的吸吮电极,直至内部溶液上升至银丝的一半位置。用记录室中的海水充分填充持握微移液管,以便通过吸力将其牢固吸附在晶体上。
- 将持握微移液管安装在显微操作器上。使用连接的鲁尔锁注射器施加轻柔的负压,将持握微移液管的尖端附着在感器远端的硫酸钙(CaSO₄)晶体上。该晶体可提供牢固的机械锚定点,同时不会损伤神经组织。
- 使用持握微移液管,将感器置于盖玻片边缘,使其朝向投影屏幕(图1D)。
注意:(关键步骤)必须测量并记录下部晶状体眼与投影屏幕之间的距离,因为该距离是利用以下公式计算投影图像特征在下部晶状体眼处所张视角(接收角)所必需的:
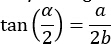
其中α为视觉角度,a为图像特征的宽度,b为下部晶状体眼到屏幕的距离。在工作距离为2 mm时,16 mm × 12 mm(宽×高)的投影图像在下部晶状体眼170°圆形视野中水平方向约张角150°,垂直方向约张角120°。所有记录过程中必须保持工作距离恒定,任何偏差都会使所呈现刺激的角度计算失效,并阻碍不同记录之间的直接比较。 - 在用持握微移液管固定感器位置的同时,使用第二个显微操作器将记录电极推进至柄部的截断表面。
注意:表皮柄神经沿柄部全长纵向延伸,从感器附着点通向环状神经15。在截断面上,分叉的表皮柄神经末端暴露于柄部口面侧——即朝向晶状体眼的一侧(图2B),可供电极接触。 - 通过鲁尔锁注射器施加轻柔负压,直至建立稳定的信号。
注意:神经末梢在截断面上并不总是肉眼可辨。应根据解剖标志,将电极尖端置于预期存在表皮柄神经的区域,并施加轻柔负压。良好的电极连接表现为出现幅度大、波形清晰且频率稳定在0.5–1 Hz范围内的起搏信号(图5)。起搏信号与动作电位样信号的区别在于其波形持续时间和形态特征(图2C、D)13,20,24。稳定起搏信号的出现是电极正确放置的决定性标准,而非对神经接触的视觉确认。若未获得信号,应释放负压,轻微调整电极尖端在截断面上的位置后重新施加负压。过度负压可能导致组织碎片堵塞电极尖端或机械性损伤神经末梢。记录过程中信号幅度逐渐下降和背景噪声增加提示电极密封性丧失(图5A)。 - 电极连接完成后,至少让标本适应10分钟再开始记录。在此期间,保持投影屏幕以白色背景照明,并将灰色条带静止置于视野一侧,偏离中心位置。
注意: 在开始适应前,应通过呈现一次最大对比度刺激(c ≈ 1.0)来确认标本的反应性;无反应的感器将被排除在数据集之外。适应期可使标本在电极连接造成的机械扰动后恢复稳定。保持白色屏幕并固定条带位置可确保感光细胞在视觉刺激开始前已适应基线光照条件,且起搏器基线频率在首次刺激呈现前已稳定。这也是使用呈现软件控制刺激的另一实际优势:适应期及记录间隔期间的屏幕内容可直接观察且完全可控,无需额外编程。 - 一旦建立稳定的起搏信号,应在细胞外放大器上优化带通滤波器设置,以最大化信噪比并保持信号幅度和波形形态,同时在示波器上监测其效果。建议初始设置如下:高通滤波1 Hz,低通滤波500 Hz;启用50/60 Hz陷波滤波器(EXT-10-2F集成附加模块)。根据实际观察到的信号情况酌情调整。
注意:将高通截止频率提高至1 Hz以上会逐步衰减起搏信号的低频成分,降低其幅度,可能影响信号检测。目标放大后信号幅度应为400–600 mV,清晰可辨的起搏信号最大幅度约为1 V。
- 数据采集
- 配置虚拟仪器VI(作为补充材料提供,补充文件3),通过DAQ以1 kHz采样率同步采集以下通道:
通道1:电生理信号(来自EXT-10-2F的放大和滤波后的起搏信号)
通道2:LabVIEW生成的模拟TTL输出至TTL鼠标
通道3:Arduino Uno模拟TTL时间戳(记录经光电二极管检测计算机显示器上黑白指示方块所验证的刺激窗口——起始定义为TTL上升沿,终止定义为TTL下降沿)。
注意:通道2记录预期的刺激传递时间,通道3记录经验证的实际刺激窗口。所有分析应以通道3作为最终的刺激时序记录。 - 根据实验方案设定记录持续时间。对于标准刺激呈现序列(包括30秒刺激前基线期、约15秒视觉刺激期和35秒刺激后恢复期),总记录时长应设为80秒。
注意:该方案通常使用10个生物学重复(感器),最好来自10只不同的动物,以评估反应强度,符合Bielecki等(2023)14的做法。在同一标本中,同一个分离的感器按顺序依次接受从最低到最高对比度的完整视觉刺激方案;此顺序可防止动物因在高对比度下未遭遇厌恶后果而产生习惯化,从而避免降低对后续低对比度刺激的反应性。连续记录以固定2分钟间隔启动,使一次刺激期结束与下一次刺激开始之间间隔105秒(足以让起搏频率在下次刺激前恢复至基线)。不进行技术重复;每个感器在其刺激序列中每种对比度水平仅接受一次刺激呈现。 - LabVIEW VI(作为补充材料提供,补充文件3)会在记录序列的适当时机自动从DAQ向TTL鼠标输出TTL脉冲,推进幻灯片并启动视觉刺激。将采集的数据保存为制表符分隔的.txt文件。使用所提供的VI时,记录元数据需在保存时手动编码至文件名中。
注意:建议用户在开始记录前建立一致的文件命名规范。标本标识符是一个唯一代码(例如动物编号或会话编号),可用于追溯特定记录所来源的具体感器和实验会话。具体命名方案由研究者自行决定,但必须系统化并能明确追溯任一记录至其对应标本——例如,文件名可结合记录日期时间与相关刺激参数(如对比度水平、条带尺寸和速度)。 - 完成某一感器的所有记录后,通过标准实验室下水道处置方式丢弃该感器组织。
注意:建议用户在开始记录前建立一致的文件命名规范。包含日期、标本标识符和刺激条件的系统化文件名足以支持后续分析。 相较于LabVIEW生成的视觉刺激,推荐使用呈现软件,原因有二:首先,它确保在记录间隔期间投射到下部晶状体眼的图像始终可知且可控,避免软件界面或系统屏幕带来的非预期视觉刺激;其次,它消除了记录会话之间屏幕变黑的风险,否则会引发感光细胞的光-OFF反应,导致后续基线期出现伪迹性起搏活动。 由于晶状体眼的几何结构,条带在视野中不同位置的表观角大小和速度呈非线性变化。这种非线性未予校正,原因有二:其一,自由游动的动物接近障碍物时速度和方向并不恒定,因此角度校正在自然情境下相关性有限;其二,校正角大小需改变整体屏幕亮度,这会激活参与检测红树林光束的光ON/OFF反应。
- 配置虚拟仪器VI(作为补充材料提供,补充文件3),通过DAQ以1 kHz采样率同步采集以下通道:
7. 数据分析
- Igor Pro 中的起搏器信号鉴别
注意:在进行频率分析之前,需从原始电生理轨迹中区分游泳起搏器信号与类似动作电位的信号。这两种信号类型可能在记录中同时出现,因此在提取起搏器时间数据之前必须加以区分。文中提供了两种信号类型的代表性示例及其波形特征的鉴别方法。 图2C,D.- 使用 Neuromatic 插件(版本 2.00)将 .txt 数据文件导入 Igor Pro(版本 6.37 或更高版本)。
- 根据信号持续时间和波形形态,区分游泳起搏器信号与动作电位样信号。
注意:游泳起搏器信号具有约45毫秒的特征性持续时间,其复合波形形态反映了多个起搏神经元活动的总和。动作电位样信号的持续时间较短,约为10毫秒,波形更尖锐,呈单一分立形态。仅凭信号幅度无法可靠区分这两种信号类型,因为两类信号的幅度可能达到相似水平。24 (图 2C,D)。图示展示了游泳起搏器信号与类似动作电位信号的典型波形特征差异(图2C,D建议用户在分析前熟悉这两种信号类型,因为误判会导致起搏频率估计出现误差。同一制备样本内的信号波形特征具有一致性,但在不同样本之间可能略有差异;因此,应针对每个制备样本单独评估判别标准,并以上述波形特征作为一般性指导,而非固定不变的通用阈值。对于无法明确分类的模糊或中间型波形,应按照与预期或假设结果相反的方向解决歧义——例如,若较高的信号计数支持正在检验的假设,则排除该模糊事件;若较低的信号计数支持假设,则将其纳入——以避免夸大结果的显著性。 - 提取每个识别出的游泳起搏信号的时间戳,以获得每次记录中起搏事件的时间序列,并将这些时间戳(例如导出至电子表格或.csv文件)用于后续的统计分析。
- 频率分析
- 根据记录中的信号间期,计算起搏信号频率,即信号间期的倒数。
- 通过比较刺激前基线期、刺激期和刺激后期间的起搏器频率,评估视觉刺激的影响,起搏器信号的时间戳需根据LabVIEW记录的TTL指令(通道2)与Arduino验证的刺激起始(通道3)之间的时间延迟进行校正。
注意:下透镜眼对刺激的响应依据的是已验证的TTL信号时间,而非软件记录的命令时间,因此每次记录的已验证起始时间将与原始起搏器信号和TTL时间戳一同导出至电子表格中(补充表1 并直接由SAS分析脚本用于将每个起搏器信号分类为其刺激前、刺激中或刺激后时间窗(图6);在电子表格阶段不修改任何时间戳数值。在未受干扰的基线条件下,起搏信号频率为0.5–1 Hz。在DTT上方由视觉诱发的避障反应表现为起搏频率增加至2–3 Hz。生理学上的最大频率约为4 Hz,对应最小信号间期为250–280 ms。25. 由于不同样本的基础起搏频率存在差异,每个记录的频率值均相对于该记录自身的平均频率进行标准化处理,该平均频率由刺激前和刺激后时期(不包括刺激期本身)计算得出。这种标准化处理使得不同样本间的反应幅度可在不受基础起搏频率差异影响的情况下进行比较。用于评估反应显著性的完整统计分析流程,包括用于比较基础期、刺激期和刺激后时期的非线性模型,详见 Bielecki 等(2023)的研究。14;相应的SAS分析代码可在doi: 10.17632/csgymw8kjk.1获取。从原始信号出发,经过判别、频率计算和标准化,最终得到反应指标的代表性分析流程如下所示: 图7.
- 通过比较刺激前基线期、刺激期和刺激后期间的起搏器频率,评估视觉刺激的影响,起搏器信号的时间戳需根据LabVIEW记录的TTL指令(通道2)与Arduino验证的刺激起始(通道3)之间的时间延迟进行校正。
- 根据记录中的信号间期,计算起搏信号频率,即信号间期的倒数。
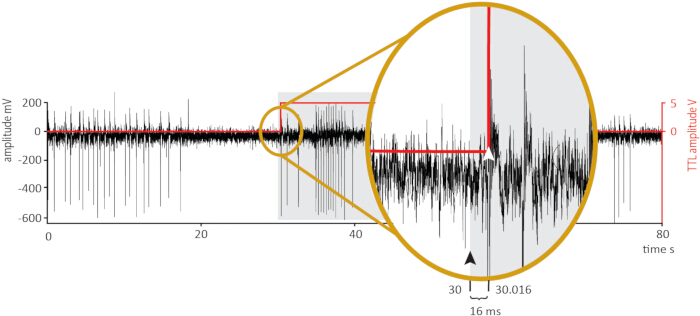
图6:用于刺激验证时间校正的起搏器时间戳校正代表性示例。 本示例记录展示了VI记录的TTL指令与Arduino验证的刺激起始之间的时间延迟,该延迟通过Arduino/光电二极管定时链路对每次记录单独验证,并导出至电子表格(补充表1),供SAS分析脚本直接使用,以将每个起搏器信号时间戳分类为刺激前、刺激中或刺激后时间窗。黑色轨迹(左侧y轴):电生理信号(mV)。红色轨迹(右侧y轴):TTL振幅(V)。灰色阴影区域标记了由软件记录的TTL指令所标注的名义刺激时间窗。插图:TTL起始的放大视图。黑色箭头指示LabVIEW记录的TTL发送时间(t = 30.000 s,通道2);白色箭头指示通过Arduino/光电二极管链路检测到的验证刺激起始时间(t = 30.016 s,通道3)。所示16 ms间隔是在自动TTL-鼠标触发所报告的<20 ms范围内具有代表性的示例(结果部分)。由于该延迟在单次记录内保持恒定,相应的偏移转换未单独图示。请点击此处查看此图的放大版本。
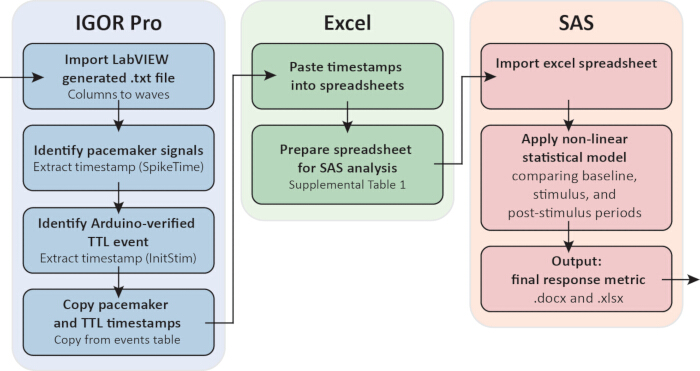
图 7:从原始记录到最终反应指标的代表性分析流程。 起搏信号和 TTL 时间戳从 Igor Pro/Neuromatic 事件表中提取:起搏信号事件通过持续时间和波形形态(步骤 7.1.2)进行识别,每个记录中经 Arduino 验证的刺激起始时间(InitStim,通道 3)被提取为绝对时间戳,而非计算延迟。这些时间戳被复制到电子表格中(补充表 1),通过计算每个起搏信号事件的峰间间隔(Intval)和中间时间戳(MidTime)来为 SAS 分析做准备。SAS 导入准备好的电子表格,并应用非线性统计模型(Bielecki 等,202314),根据每个记录经验证的刺激起始时间,比较刺激前、刺激中和刺激后时期的起搏频率,以输出最终反应指标(.docx 摘要文件,.xlsx 数据表)。 请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
信号质量和自发起搏活动
在成功将电极连接到横断的表皮柄神经后,示波器上应立即可见自发的起搏信号。高质量的记录表现为放大后振幅为400–600 mV、清晰可辨且较大的起搏信号,以0.5–1 Hz的稳定自发频率发放,同时基线噪声较低(零线两侧峰值偏移约10–15 mV,对应目标振幅范围内的信噪比约为27–40:1)(图5B)。振幅低至100 mV的信号也可进行分析,但会显著增加在Igor Pro中信号判别的耗时,因此不推荐,尤其对于经验不足的操作者。起搏信号的复合波形形态反映了多个trmOC神经元活动的总和,可将其与记录中可能同时存在的较短、较尖锐的动作电位样信号区分开来24(图2C、D)。如步骤7.1所述,应基于信号持续时间(起搏信号约45 ms,动作电位样信号约10 ms)和波形形态对这两种信号类型在分析前进行区分。仅凭振幅不能作为可靠的区分标准。本...
访问受限。请登录或开始试用以查看此内容。
讨论
本方案中有多个步骤对于获得可靠的记录至关重要。其中最重要的是负压电极的制作与准备。对于标准的视觉诱发电脉冲记录,任何能够优化信噪比的电极均可使用;但当该制备用于传递电无条件刺激时,电极的附加电阻约为 1 MΩ 就变得尤为关键,因为需要据此计算所施加的电流14。仅用于记录目的时,主要标准是信号质量,而非特定的电阻值。
在开始记录之前,对光学系统进行生物学校准同样至关重要(步骤 4.1.5)。由于投影仪输出、镜头配置和屏幕反射率共同决定了下镜头眼处的有效辐照度,因此无法提供适用于所有情况的通用辐照度数值。通过生物学校准(以起搏器对最大对比度刺激的频率响应作为光感受器动态范围的判定标准),可建立一种自我验证、且不依赖硬件的适当刺激强度设定方法。此步骤不可省略,因为过高的辐照度会导致光感受器饱和,从而消除视觉诱发的起搏器反应,并可能被误判为无反应的实验样本。
在整个分离和转移过程中,保持感茎体浸没至关重要。感茎体神经系统对干燥极为敏感,即使短暂暴露于空气中也可能对样本造成不可逆的损伤。所...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无竞争利益。
致谢
作者感谢 Dan-eric Nilsson 提供的眼点图像(图1B),感谢马蒂亚斯·霍普(Mathias Hoppe)、英戈·克莱因(Ingo Klein)、奥拉夫·温特(Olaf Wendt)和霍尔格·沃伊特(Holger Voigt)(基尔大学)提供的技术支持,以及感谢哥本哈根大学感觉生物学团队成员在培养物维护方面给予的帮助。本研究由德国研究基金会(Deutsche Forschungsgemeinschaft,DFG)资助——项目编号 567357102(J.B.)
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 35 mm 培养皿 | Nunc | 153066 | 任何适用的等效培养皿均可 |
| Arduino Uno | Arduino | — | 将光电二极管信号转换为 TTL 信号,用于刺激时序验证;刷新率为 1 kHz |
| 双凸透镜 f = 30 mm | Linos | G063-022-000 | 替代原厂镜头;用于将图像聚焦在记录室投影屏壁上 |
| 硼硅酸盐玻璃毛细管,内径 1.16 mm × 外径 2.00 mm × 长度 80 mm | Science Products | GB200-8P | 用于制作吸电极 |
| 一次性移液管 | Sarstedt | 86.1171 | 管尖剪至约 8 mm 开口,用于动物转移 |
| 电极夹持器 PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | BNC 型夹持器,带吸液口;配备约 0.25 mm 银丝 |
| EXT-10-2F 细胞外放大器 | NPI Electronic | — | 差分交流耦合放大器;前置放大器增益 ×10,主放大器增益 ×100,总增益 ×1000;集成带通滤波器:高通 1 Hz,低通 500 Hz;启用 50/60 Hz 陷波滤波器;配备前置放大器支架 |
| 血细胞计数板盖玻片 20 mm × 26 mm | Carl Roth | L 189 | 依靠负浮力置于盖玻片托架上;比标准盖玻片更坚固 |
| Igor Pro 6.37 | WaveMetrics Inc. | Version 6.37 | 美国俄勒冈州奥怀希湖;用于起搏信号分析 |
| LabVIEW 2016 | National Instruments | Version 2016 | 数据采集与刺激控制软件;VI 程序作为补充材料提供 |
| 鲁尔锁式注射器 | — | — | 通用型;任何标准实验室鲁尔锁式注射器均可适用 |
| 微电极拉制仪 MF-2 | Narishige | — | 用于电极尖端抛光(选项 A) |
| 显微操作器 MM33 | Märzhäuser Wetzlar | 00-42-101-0000(右侧)/ 00-42-102-0000(左侧) | 手动三轴操作器;需两台(分别用于持握移液管和记录电极) |
| 微移液管拉制仪,Flaming/Brown P-1000 | Sutter Instrument | P-1000 | 拉制程序:第 1 行 ×1:加热 535,拉力 0,速度 12,时间 200,压力 600,斜坡 540;第 2–4 行 – × 3:加热 532,拉力 0,速度 12,时间 100 |
| Neuromatic 插件 v2.00 | — | Version 2.00 | 适用于 Igor Pro;用于起搏信号识别与时间戳提取 |
| 中性密度滤光片 | Thorlabs | NE10A | 透光率 10%;衰减程度需通过生物学校准(步骤 4.1)经验验证 |
| NI USB-6343 数据采集卡 | National Instruments | 781438-01 | 16 位多功能数据采集卡;用于电生理信号采集、TTL 小鼠刺激信号输出及 Arduino TTL 输入;采样率为 1 kHz |
| Optoma ML750 DLP 投影仪 | Optoma | ML750 | 移除原厂镜头系统;替换为单片双凸透镜 f = 30 mm |
| 示波器 DS1102E | Rigol | DS1102E | 用于电极放置和滤波器优化期间的实时信号监测 |
| 巴斯德移液管 150 mm | Carl Roth | 4518 | 用于触手囊转移 |
| 光电二极管 BRW21 | OSRAM | BRW21 | 硅光电二极管;监测计算机显示器上的黑白指示方块 |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | 美国北卡罗来纳州卡里;用于起搏响应的统计分析;代码可在 doi: 10.17632/csgymw8kjk.1 获取 |
| 硅胶管 | Erich Eydam KG | 9205000 | 用于电极夹持器与注射器之间的吸力连接 |
| 滤器 Filtropur S,0.20 µm PES | Sarstedt | 83.1826.001 | 用于过滤培养水箱中的海水,供记录室和制备皿使用 |
| Vannas 剪刀 | World Precision Instruments | 500086 | 刀片尺寸 0.025 mm × 0.015 mm;用于触手囊柄部横切 |
| WTE var 3185 | Assistent | — | 水浴温度控制器 |
参考文献
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.
访问受限。请登录或开始试用以查看此内容。