整合生物信息学与实验分析发现,LINC01871 可能是预测细胞周期蛋白依赖性激酶 4/6 抑制剂敏感性的潜在指标,并表明 LINC01871 的过表达可抑制乳腺癌细胞增殖,且与 NF-κB 信号通路活性降低相关。
本文内容
摘要
摘要
乳腺癌仍然是女性中最常被诊断的恶性肿瘤,而对细胞周期蛋白依赖性激酶4和6(CDK4/6)抑制剂的耐药性限制了长期治疗效果。本研究旨在鉴定与预测CDK4/6抑制剂敏感性相关的长链非编码RNA(lncRNA),并探讨其在乳腺癌中的生物学功能。整合了来自癌症基因组图谱(The Cancer Genome Atlas, TCGA)的转录组数据和来自癌症药物敏感性基因组学数据库2(GDSC2)的药物敏感性数据,并使用oncoPredict算法预测药物敏感性。通过差异表达分析、加权基因共表达网络分析、预后分析和机器学习筛选候选lncRNA。随后通过体外和体内实验评估LINC01871的生物学功能。共鉴定出62个与预测对瑞博西利(ribociclib)和帕博西利(palbociclib)敏感性相关的lncRNA,并筛选出6个核心lncRNA。其中LINC01871在预测药物敏感性方面表现出最高的判别效能。LINC01871的过表达与乳腺癌细胞对瑞博西利和帕博西利的敏感性增加、细胞增殖抑制、凋亡促进以及核因子κB(NF-κB)信号通路的抑制相关。单细胞转录组分析显示LINC01871在T细胞和自然杀伤(NK)细胞中高表达,而基于转录组的免疫浸润分析表明,LINC01871高表达与免疫细胞浸润增加相关。这些发现表明LINC01871是CDK4/6抑制剂敏感性的候选生物标志物,并证实其在乳腺癌中具有抑瘤作用。未来还需进一步的临床和机制研究以验证其预测价值和治疗意义。
引言
尽管乳腺癌的临床管理不断取得进展,但乳腺癌仍是全球女性癌症死亡的主要原因1,2。治疗手段已逐步从内分泌治疗和化疗扩展到分子靶向治疗3。其中,细胞周期蛋白依赖性激酶4和6(CDK4/6)抑制剂,如瑞博西利、帕博西利和阿贝西利,在雌激素受体和/或孕激素受体阳性乳腺癌中已显示出显著的临床获益4,5,6。然而,长期治疗可能伴随获得性耐药的发生,从而限制治疗效果的持续时间7。
CDK4/6 抑制主要通过 Rb–E2F 细胞周期调控轴发挥作用。抑制 CDK4/6–细胞周期蛋白 D 活性可减少视网膜母细胞瘤(Rb)蛋白的磷酸化,使低磷酸化的 Rb 蛋白抑制 E2F 依赖性转录,从而促进 G1 期阻滞并限制肿瘤细胞增殖8。尽管已有若干机制被证实与 CDK4/6 抑制剂耐药相关,但这些机制尚不能完全解释治疗反应的个体差异。这些机制包括磷脂酰肌醇 3-激酶/蛋白激酶 B/哺乳动物雷帕霉素靶蛋白(PI3K/AKT/mTOR)通路的异常激活以及细胞周期蛋白–CDK 复合物表达升高9,10。值得注意的是,PI3K/AKT/mTOR 通路的组分本身在晚期疾病中也是治疗靶点11。总体而言,这些观察结果表明,决定 CDK4/6 抑制剂敏感性与耐药性的其他分子因素仍有待鉴定。预测性生物标志物的临床意义在激素受体阳性转移性乳腺癌的生物标志物指导治疗策略中得到了体现。例如,对循环肿瘤 DNA(ctDNA)进行连续分析,可在基于 CDK4/6 抑制剂的治疗过程中检测到 ESR1 突变的出现。PADA-1 和 SERENA-6 研究表明,此类分子检测可用于在维持 CDK4/6 抑制的同时,指导早期调整内分泌治疗12,13。然而,ESR1 突变仅代表治疗反应的一个决定因素,无法解释所有敏感性或耐药情况。这一局限性在临床上日益重要,因为接受基于 CDK4/6 抑制剂治疗后进展的激素受体阳性/HER2 阴性转移性乳腺癌患者,目前已有多种后续治疗选择,包括口服选择性雌激素受体降解剂、PI3K/AKT 通路抑制剂以及抗体–药物偶联物。因此,鉴定与 CDK4/6 抑制剂敏感性差异相关的其他候选生物标志物,可能有助于区分更可能从这些疗法中获益的患者与需要更早调整治疗方案的患者。
长链非编码RNA(lncRNA)是一类不具备蛋白质编码能力的转录本,参与调控多种生物学过程。已有多个lncRNA被发现与癌症进展及治疗反应相关。在口腔鳞状细胞癌中,LOC100506114通过与转录因子RUNX相互作用并调控下游基因表达,促进细胞增殖和迁移14。在乳腺癌中,HISLA与糖酵解增强及凋亡抵抗性升高相关15,而LINC02568通过调控ESR1和CA12导致内分泌耐药16。尽管lncRNA在癌症生物学中的作用已被广泛认可,但其与CDK4/6抑制剂耐药性的关系仍缺乏充分研究。本研究采用整合的多组学与机器学习策略,筛选出与预测的瑞博西利和帕博西利敏感性相关的lncRNA,其中LINC01871被识别为候选分子。随后,我们进一步分析了LINC01871与这两种药物敏感性的关联,并通过体外和体内实验方法评估其对乳腺癌细胞增殖的影响。
方案
所有涉及动物的实验操作均在遵守机构动物福利要求的前提下进行,并已获得福建肿瘤医院动物伦理与福利委员会的批准 &;福建医科大学附属肿瘤医院(批准号:SQ2021-159-01)
数据采集
批量转录组谱数据于2025年1月从TCGA下载,并在下游分析前转换为每百万转录本数(TPM)。单细胞RNA测序数据来自基因表达综合数据库(GEO),使用数据集GSE161529。
瑞博西利和帕博西利的药物敏感性评估
采用GDSC2数据训练药物反应预测模型,并以TCGA-BRCA转录组谱作为测试数据集。亚组分析所需的临床信息来自TCGA泛癌图谱临床随访数据集。共考虑了四个临床变量:雌激素受体(ER)状态(breast_carcinoma_estrogen_receptor_status)、孕激素受体(PR)状态(breast_carcinoma_progesterone_receptor_status)、免疫组织化学法(IHC)检测的HER2状态(lab_proc_her2_neu_immunohistochemistry_receptor_status)以及荧光原位杂交法(FISH)检测的HER2状态(lab_procedure_her2_neu_in_situ_hybrid_outcome_type)。若ER或PR任一项标注为“阳性”,则将肿瘤归类为激素受体(HR)阳性。当HER2的IHC或FISH检测结果中至少有一项为阴性且两项均无阳性结果时,将肿瘤归类为HER2阴性。无法明确判定HR或HER2状态的病例被排除。根据上述标准,共确定601例HR阳性/HER2阴性患者。其中,599例患者在泛癌临床数据集和TCGA-BRCA表达矩阵中均有对应记录,被纳入亚组分析。使用oncoPredict R软件包(版本1.2)在默认参数下估算瑞博西利和帕博西利的IC₅₀值。采用ggplot2生成散点图,以展示患者中预测IC₅₀值的分布情况。将预测IC₅₀值处于最高25%的患者定义为耐药,而处于最低25%的患者定义为敏感。
CDK4/6 抑制剂耐药相关基因的鉴定
使用 limma 软件包评估预测敏感组与耐药组之间的差异表达,并利用 ggplot2 将所得基因表达模式展示为火山图。随后,采用 WGCNA 软件包进行加权基因共表达网络分析(WGCNA),以鉴定与两种 CDK4/6 抑制剂耐药性相关的表达模块。通过 VennDiagram 软件包识别并可视化四个数据集间共有的基因。对交集基因进一步进行 Kaplan–Meier 生存分析和单变量 Cox 回归分析,使用 survival 和 survminer 软件包生成相应的生存曲线以供可视化。在两项生存分析中均达到统计学显著性的基因被纳入 LASSO 回归分析,使用 glmnet 软件包筛选核心预后因子。随后使用 pROC 软件包通过 ROC 分析评估所选基因对预测药物耐药性的区分能力,并以 ROC 曲线下面积(AUC)量化其性能。不同药物的 AUC 值通过 ggplot2 生成的柱状图进行图形化比较。
LINC01871基因的单基因分析
首先通过差异表达分析比较LINC01871在肿瘤组织与正常组织中的表达水平。随后使用R语言的survival和survminer软件包,通过Kaplan–Meier生存分析和单变量Cox回归分析评估其在多种癌症类型中的预后关联性。不同临床病理学分组间LINC01871表达水平的差异采用Wilcoxon秩和检验进行评估,并使用ggpubr软件包以箱线图形式展示。在单细胞RNA测序分析中,数据预处理及后续分析使用Seurat完成。批次间的变异通过Harmony软件包在默认参数设置下进行校正。完成批次校正后,将所得的细胞聚类结果以UMAP降维图形式呈现。随后使用参考转录组谱,通过SingleR软件包自动注释细胞身份。
功能富集分析
使用 limma 软件包确定高表达与低表达 LINC01871 组之间差异表达的基因。同时,采用 Pearson 相关性分析鉴定表达水平与 LINC01871 表达相关的 mRNA。随后使用 clusterProfiler 进行 GO 和 KEGG 富集分析。利用 ggplot2 生成条形图和气泡图展示富集结果。
免疫浸润分析
使用CIBERSORT结合LM22特征矩阵对免疫细胞浸润进行初步表征,以估计22种免疫细胞群体的相对分布。利用ggpubr可视化高表达组与低表达组之间这些估计值的差异。随后,使用estimate软件包计算每个样本的基质细胞评分、免疫细胞评分和ESTIMATE评分,并以小提琴图展示结果。此外,采用GSVA软件包进行单样本基因集富集分析(ssGSEA),以评估每个样本中免疫细胞群体的相对丰度。使用ggpubr对两组LINC01871表达水平样本间的免疫浸润估计值差异进行评估和可视化。
细胞培养
本研究使用了 MDA-MB-231、MCF-10A 和 HEK293T 细胞系。MDA-MB-231 和 HEK293T 细胞在含有 10% 胎牛血清的 DMEM 培养基中培养,而 MCF-10A 细胞则维持在为此细胞系专门配制的培养基中。培养物在 37°C、5% CO₂ 的湿化条件下孵育。为建立 LINC01871 过表达细胞,将 LINC01871 过表达载体与慢病毒包装质粒共转染至 HEK293T 细胞以产生慢病毒。随后收集含病毒的上清液,并用于转导 MDA-MB-231 细胞。转导后的细胞用 1 μg/mL 嘌呤霉素进行筛选。野生型对照细胞和转导细胞均接受嘌呤霉素处理,当所有野生型对照细胞死亡后,筛选在 3–4 天后终止。
反转录定量聚合酶链式反应(RT-qPCR)
使用 RNAiso Plus 试剂提取细胞 RNA,并在反转录前将 RNA 浓度调整至相同水平。根据试剂盒生产商的说明书,利用反转录试剂盒合成互补 DNA(cDNA)。RT-qPCR 扩增程序起始于 95°C 下变性 30 秒,随后进行 40 个循环,每个循环包括 95°C 变性 5 秒、60°C 退火 30 秒和 72°C 延伸 30 秒。采用 2−ΔΔCt 法计算转录本的相对丰度,以 GAPDH 作为内参基因进行标准化。分析所用引物序列列于补充表 1中。
细胞增殖与细胞毒性检测
为评估药物细胞毒性,将每孔8,000个细胞接种于96孔板中,培养24小时。随后更换为含指定药物浓度的新鲜培养基,继续孵育24小时。加入CCK-8试剂后,将培养板置于避光环境中孵育2小时,然后在450 nm波长下测定吸光度。利用这些数据绘制药物剂量–反应曲线并计算IC₅₀值。为检测细胞增殖,将细胞调整至1,000个细胞/mL的密度,每孔加入100 μL细胞悬液至96孔板中。每隔24小时进行一次CCK-8检测。在每个时间点,加入试剂后将培养板避光孵育2小时,随后在450 nm波长下测定吸光度以评估细胞增殖情况。
集落形成实验
进行集落形成实验时,每孔接种1,000个细胞,置于6孔板中,每个实验组设置三个重复孔。细胞培养1–2周,以使集落可见生长。随后弃去培养基,用4%多聚甲醛固定细胞,PBS洗涤,再用1%结晶紫染色。
5-乙炔基-2′-脱氧尿苷掺入检测
将各实验组细胞接种于12孔板中,过夜培养。次日,细胞用EdU工作液处理2小时。经固定和透化后,进行EdU标记,随后用Hoechst对细胞核进行复染。最后通过荧光显微镜采集图像,用于评估EdU的掺入情况。
蛋白质印迹(Western blot)
采用含有蛋白酶和磷酸酶抑制剂的RIPA裂解缓冲液裂解细胞,以获取总蛋白。使用BCA法测定蛋白浓度。加入上样缓冲液后,蛋白样本在95°C变性,经SDS-PAGE电泳分离后转移至PVDF膜。膜在室温下封闭1小时,随后在4°C下与指定的一抗孵育过夜(补充表2)。用TBST洗涤三次后,在室温下加入相应的二抗孵育45分钟。通过增强型化学发光(ECL)检测蛋白信号,并进行成像。以GAPDH或β-actin作为上样对照。
流式细胞术分析
进行细胞周期评估时,用胰蛋白酶消化收集细胞,用 PBS 洗涤后,在 4°C 条件下用 70% 乙醇固定过夜。固定后的细胞再次用 PBS 洗涤,并加入细胞周期检测试剂孵育,随后进行流式细胞术检测。进行细胞凋亡评估时,收集的细胞用 PBS 洗涤后重悬于结合缓冲液中。细胞悬液在避光条件下室温孵育 10–15 分钟,用 Annexin V 和碘化丙啶(PI)染色。随后进行流式细胞术分析,以定量检测凋亡细胞群体。
异种移植小鼠模型
体内实验采用五周龄NOD/ShiLtJGpt免疫缺陷小鼠进行。动物饲养于特定病原体阴性(SPF)环境中,光照周期为12小时明/12小时暗,每笼最多饲养四只。在肿瘤细胞移植前,小鼠通过吸入异氟烷进行麻醉。确认麻醉充分后,将动物分为两组,分别向腹脂垫注射对照组或过表达LINC01871的MDA-MB-231细胞。以肿瘤生长为主要观察终点。每3–4天使用游标卡尺测量肿瘤尺寸。肿瘤体积按公式 V = ( L × W2 ) / 2 计算,其中 L 表示肿瘤最长直径,W 表示最短直径,体积单位为mm3。在任何肿瘤直径达到1.5 cm或体积达到2,000 mm3之前终止实验。实验终点时,小鼠以异氟烷麻醉,并在确认深度麻醉后实施颈椎脱位。若小鼠出现明显痛苦迹象,包括嗜睡、体重减轻、弓背姿势或无法进食饮水,则在预定终点前实施安乐死。研究结束后,取出肿瘤并进行称重和成像。
统计学分析
数据分析使用 GraphPad Prism 10.3.1 版本和 R 4.3.1 版本进行。根据研究设计和相应数据的分布情况,为每项比较选择适当的统计学方法。适当情况下,分析包括 Student’s t 检验、配对 t 检验、Wilcoxon 符号秩检验、Mann–Whitney U 检验、单因素或双因素方差分析(ANOVA)、Kaplan–Meier 生存分析结合 log-rank 检验、单变量 Cox 比例风险回归分析,以及 Pearson 或 Spearman 相关性分析。统计学显著性定义为双侧 P 值 <0.05。
结果
LINC01871 与对瑞博西利和帕博西利的敏感性密切相关
基于 GDSC2 数据,对 TCGA-BRCA 队列中患者的瑞博西利和帕博西利预测 IC50 值进行估算,并按升序排列。将预测 IC50 值处于最低四分位的患者归为敏感组,而处于最高四分位的患者归为耐药组(图 1A、B)。对这两组进行比较,鉴定出每种药物对应的差异表达长链非编码 RNA(lncRNA)(补充图 1A、B)。加权基因共表达网络分析(WGCNA)进一步鉴定出与瑞博西利和帕博西利预测敏感性显著相关的 lncRNA 模块(图 1C、D;补充图 1C、D)。整合上述四个基因集,得到 62 个共有的 lncRNA(图 1E),其中 18 个在单变量 Cox 回归分析和 Kaplan–Meier 生存分析中均与预后显著相关。随后采用 LASSO 回归进一步筛选该基因集,最终获得六个具有预后意义的 lncRNA:ANKRD44-AS1、AC083837.1、AC242842.1、DBH-AS1、LINC00926 和 LINC01871(图 1F、G;补充图 2A)。随后通过 AUC 分析比较这六个 lncRNA 区分预测药物耐药性的能力。在六个候选分子中,LINC01871 在瑞博西利和帕博西利中的平均 AUC 值最高(图 1H–J;补充图 2B、C)。
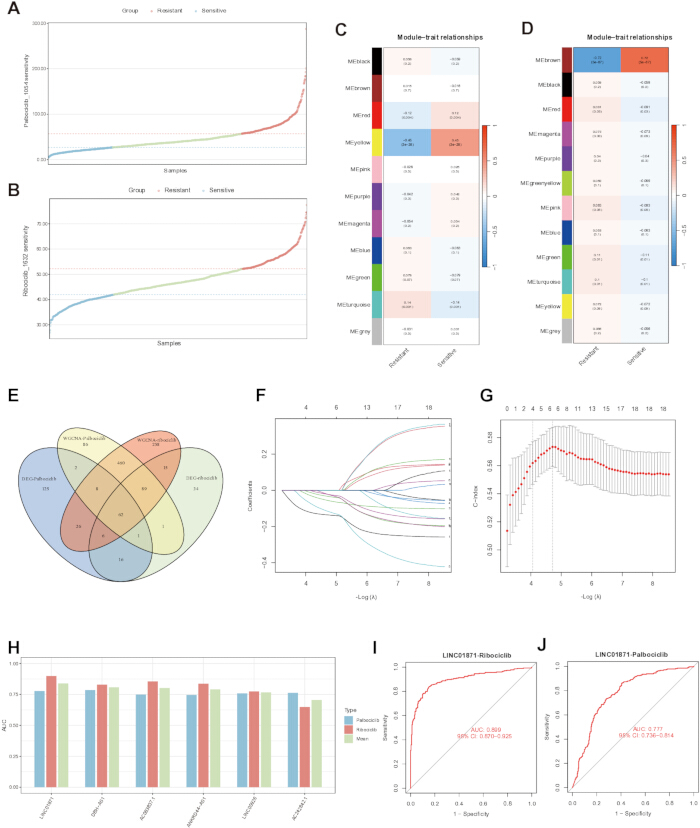
图1。与预测的瑞博西利和帕博西利敏感性相关的长链非编码RNA的鉴定。
(A, B) 基于癌症药物敏感性基因组学2(GDSC2)数据集估算的癌症基因组图谱乳腺浸润性癌(TCGA-BRCA)队列中帕博西利(A)和瑞博西利(B)预测的半数最大抑制浓度(IC50)分布。(C, D) 加权基因共表达网络分析(WGCNA)显示帕博西利(C)和瑞博西利(D)的模块-性状关联。(E) 维恩图展示在差异表达基因集和WGCNA衍生基因集中与两种药物相关的共有基因。(F, G) 使用最小绝对收缩与选择算子(LASSO)回归筛选具有预后意义的长链非编码RNA(lncRNA)。(H) LASSO筛选出的六个lncRNA的受试者工作特征曲线下面积(AUC)值比较。(I, J) 受试者工作特征(ROC)曲线评估LINC01871区分对瑞博西利(I)和帕博西利(J)预测敏感性的能力。 请点击此处查看该图的放大版本。
LINC01871 过表达增强乳腺癌细胞的药物敏感性
在 TCGA-BRCA 队列中,较高的 LINC01871 表达水平与核糖西利布(ribociclib)和帕博西利布(palbociclib)的较低预测 IC50 值相关(图 2A、B)。该关系在具有临床意义的激素受体阳性/HER2 阴性亚组(n = 599)中进一步分析。在此亚组中,LINC01871 高表达患者的两种药物预测 IC50 值显著低于低表达患者。此外,LINC01871 表达水平与核糖西利布和帕博西利布的预测 IC50 值呈负相关(补充图 3A、B)。随后通过实验验证了这一计算分析结果。细胞毒性实验显示,在 LINC01871 过表达的乳腺癌细胞中,对核糖西利布和帕博西利布的敏感性均高于空载体对照细胞(图 2C、D)。流式细胞术结果显示,LINC01871 过表达后,处于 G1 期的细胞比例升高,S 期细胞比例降低,提示 G1 期阻滞增强(图 2E)。在克隆形成实验中,随着核糖西利布或帕博西利布浓度增加,克隆形成能力逐步下降(图 2F、G)。在相同药物浓度下,LINC01871 过表达细胞的克隆形成能力显著低于空载体对照细胞。此外,Western blot 分析显示,LINC01871 过表达细胞中 CDK4、CDK6 和周期蛋白 D1(cyclin D1)水平降低,同时 RB 磷酸化水平减少(图 2H)。这些分子变化与 LINC01871 过表达后观察到的更强 G1 期阻滞现象一致。
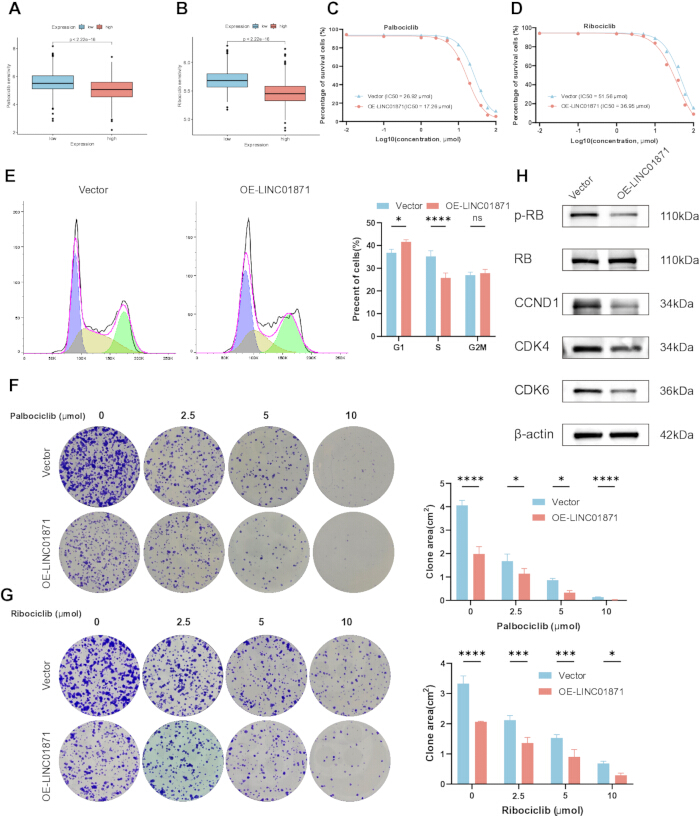
图2LINC01871 过表达与乳腺癌细胞对周期蛋白依赖性激酶 4/6 抑制剂敏感性的关联 (A, B) 根据LINC01871表达水平低或高预测对帕博西尼(A)和瑞博西尼(B)的敏感性。(C, D) 载体对照组与LINC01871过表达细胞中帕博西尼(C)和瑞博西尼(D)的药物剂量–反应曲线,及其相应的半数抑制浓度(IC50) 值在每个图中显示。(E) 载体对照组和LINC01871过表达细胞的细胞周期分布流式细胞术检测。(F,G) 经不同浓度帕博西尼(F)和瑞博西尼(G)处理后的集落形成情况。(H) 蛋白质印迹法检测细胞周期蛋白依赖性激酶4 (CDK4)、细胞周期蛋白依赖性激酶6 (CDK6)、细胞周期蛋白D1 (CCND1)、视网膜母细胞瘤蛋白(RB)及磷酸化RB (p-RB),并以 β-actin 作为上样对照。OE-LINC01871,LINC01871 过表达;ns,无显著性差异。所有实验均独立重复三次。数据以均值表示 ± SD. IC50 通过非线性回归确定数值。细胞周期分布和克隆形成数据采用双因素方差分析(two-way ANOVA)进行分析。*P < 0.05,**P < 0.01,***P < 0.001,以及 ****P < 0.0001;ns,无显著性差异。 请点击此处以查看此图的放大版本。
LINC01871 高表达的患者往往具有较好的临床预后
在 TCGA-BRCA 队列中进一步分析了 LINC01871 的预后相关性。Kaplan–Meier 分析表明,LINC01871 表达水平较高通常与更长的总生存期和无进展间隔期相关(图 3A;补充图 3C)。对配对和非配对样本的比较也显示,肿瘤组织中的 LINC01871 表达水平显著低于正常组织(图 3B、C)。接下来,我们分析了 LINC01871 表达水平与临床病理特征之间的关系。LINC01871 表达水平较低往往与较大的肿瘤尺寸相关,并且在记录为死亡的患者中较记录为存活的患者中更为明显(图 3D、E)。在接受放疗的患者中,亚组分析进一步显示,LINC01871 高表达患者的生存预后显著更佳(补充图 3D)。随后,我们构建了一个结合 LINC01871 表达水平及多种临床特征的预后列线图(补充图 3E)。校准分析显示,列线图预测的生存概率与实际观察结果之间具有良好的一致性(补充图 3F)。
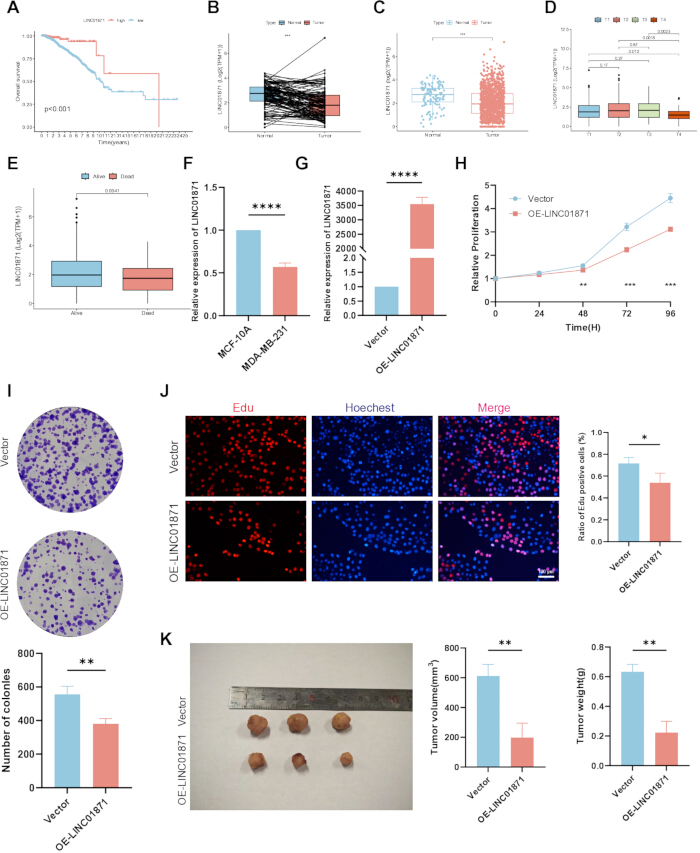
图3LINC01871 表达、预后关联及其对乳腺癌增殖的抑制作用
(A)基于LINC01871表达水平的总生存期Kaplan–Meier分析。(B,C)配对(B)和非配对(C)分析比较正常组织与肿瘤组织中LINC01871的表达水平。(D,E)LINC01871表达水平与肿瘤T分期(D)及生存状态(E)的关系。(F)MCF-10A与MDA-MB-231细胞中LINC01871相对表达水平的比较。(G)通过逆转录定量聚合酶链反应验证MDA-MB-231细胞中LINC01871的过表达。(H–J)采用Cell Counting Kit-8(CCK-8)法(H)、克隆形成实验(I)和5-乙炔基-2-脱氧尿嘧啶核苷(EdU)染色(J)评估细胞增殖能力。′-脱氧尿苷(EdU)掺入实验(J)。图J中的比例尺代表 100 μm(K) 载体对照组与LINC01871过表达组的异种移植瘤外观、体积及重量。TPM:每百万转录本数;OE-LINC01871:LINC01871过表达。总体生存率采用Kaplan-Meier法进行分析,并用log-rank检验评估。肿瘤组织与正常组织之间的配对比较采用Wilcoxon符号秩检验。其余两组间比较,在使用Shapiro-Wilk检验评估正态性后,选择非配对Student t检验或Mann-Whitney U检验。CCK-8检测结果采用双因素方差分析进行分析。体外实验包含三个独立的生物学重复,异种移植实验每组包括三只小鼠。数据以均值表示 ± 标准差。*P < 0.05,**P < 0.01,***P < 0.001,以及 ****P < 0.0001;ns,无显著性差异。 请点击此处以查看此图的放大版本。
LINC01871 的过表达抑制肿瘤细胞增殖,并与 NF-κB 信号通路活性降低相关
通过体外和体内模型进一步研究了 LINC01871 对肿瘤细胞增殖的抑制作用。在正常乳腺上皮细胞系中,LINC01871 的表达水平显著高于乳腺癌细胞系(图 3F)。通过 RT-qPCR 验证,LINC01871 过表达模型构建成功,其 LINC01871 表达水平较空载体对照组显著升高(图 3G)。随后的 CCK-8 实验结果显示,过表达 LINC01871 的细胞增殖能力显著降低(图 3H)。与此结果一致,LINC01871 的过表达降低了细胞的克隆形成能力(图 3I),并减少了 EdU 阳性细胞的比例(图 3J)。在异种移植模型中,过表达 LINC01871 的细胞所形成的肿瘤明显小于空载体对照组细胞形成的肿瘤(图 3K)。
为了探索这些效应的潜在机制,使用了两个基因集进行功能富集分析:在高表达与低表达LINC01871组之间差异表达的基因,以及通过皮尔逊相关分析鉴定为与LINC01871共表达的基因。对这些基因集进行的GO分析揭示了其与多种免疫相关功能的关联,包括T细胞受体结合、主要组织相容性复合体(MHC)蛋白复合物结合、白细胞活化的正向调控以及免疫受体活性(图4A,C)。KEGG分析同样识别出与免疫相关的通路,包括T细胞受体信号通路,以及癌症中的程序性死亡配体1(PD-L1)表达与程序性死亡蛋白1(PD-1)检查点通路。此外,还观察到Janus激酶/信号转导和转录激活因子(JAK-STAT)通路以及NF-κB信号通路的富集(图4B,D)。由于NF-κB信号通路在两种富集分析中均被识别,因此进一步通过蛋白质印迹法检测其活性。在LINC01871过表达细胞中,P65的磷酸化水平明显低于对照组(图4E),该结果与NF-κB通路活化减弱一致。同时评估了LINC01871过表达与细胞凋亡之间的关系。蛋白质印迹结果显示,LINC01871过表达后,促凋亡蛋白Bax的表达增加,而抗凋亡蛋白Bcl-2的表达减少(图4F)。流式细胞术进一步显示,与载体对照组相比,LINC01871过表达组中凋亡细胞的比例显著更高(图4G)。
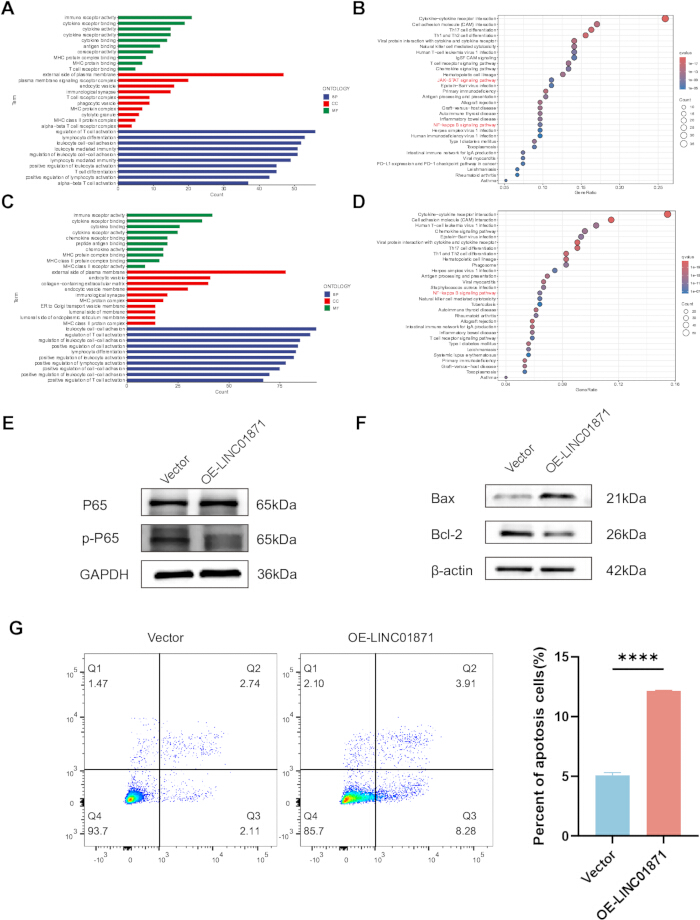
图4LINC01871 与核因子κB信号通路及细胞凋亡的关联
(A,B)高表达与低表达LINC01871组之间差异表达基因的基因本体(GO)(A)和京都基因与基因组百科全书(KEGG)(B)富集分析。(C,D)与LINC01871共表达基因的GO(C)和KEGG(D)富集分析。(E)核因子κB(NF-κB)κB) 通路蛋白P65及磷酸化P65(p-P65),以甘油醛-3-磷酸脱氢酶(GAPDH)作为上样对照。(F)通过Western blot检测凋亡相关蛋白B细胞淋巴瘤2(Bcl-2)和Bcl-2相关X蛋白(Bax),使用 β-actin 作为上样对照。(G)通过流式细胞术评估并定量分析空载体对照组和LINC01871过表达组细胞的凋亡情况。所有体外实验均包含三个独立的生物学重复。所示的蛋白质印迹图像为三次独立生物学实验的代表性结果。数据以均值表示 ± SD。使用非配对的 Student’s t 检验对载体对照组与 LINC01871 过表达细胞进行了比较 t-检验或在使用Shapiro-Wilk检验评估正态性后采用Mann-Whitney U检验。*P < 0.05,**P < 0.01,***P < 0.001,以及 ****P < 0.0001;ns,无显著性差异。 请点击此处以查看此图的放大版本。
LINC01871 的泛癌分析
鉴于 LINC01871 在乳腺癌中表现出的抑癌特性,我们进一步将其分析扩展至多种癌症类型,以系统刻画其表达模式及预后相关性。除乳腺癌外,多种恶性肿瘤中均观察到 LINC01871 的差异表达(图 5A)。在结肠腺癌(COAD)、肾透明细胞癌(KIRC)、肾乳头状细胞癌(KIRP)、肺鳞状细胞癌(LUSC)以及甲状腺癌(THCA)中,无论在配对还是非配对样本比较中,均检测到肿瘤组织与正常组织之间存在显著差异(图 5B)。生存分析进一步揭示,LINC01871 在头颈部鳞状细胞癌(HNSC)、KIRC、脑低级别胶质瘤(LGG)、直肠腺癌(READ)、皮肤黑色素瘤(SKCM)、子宫内膜癌(UCEC)、膀胱尿路上皮癌(BLCA)、肝细胞癌(LIHC)以及前列腺癌(PRAD)中均具有显著的预后相关性(图 5C–E)。
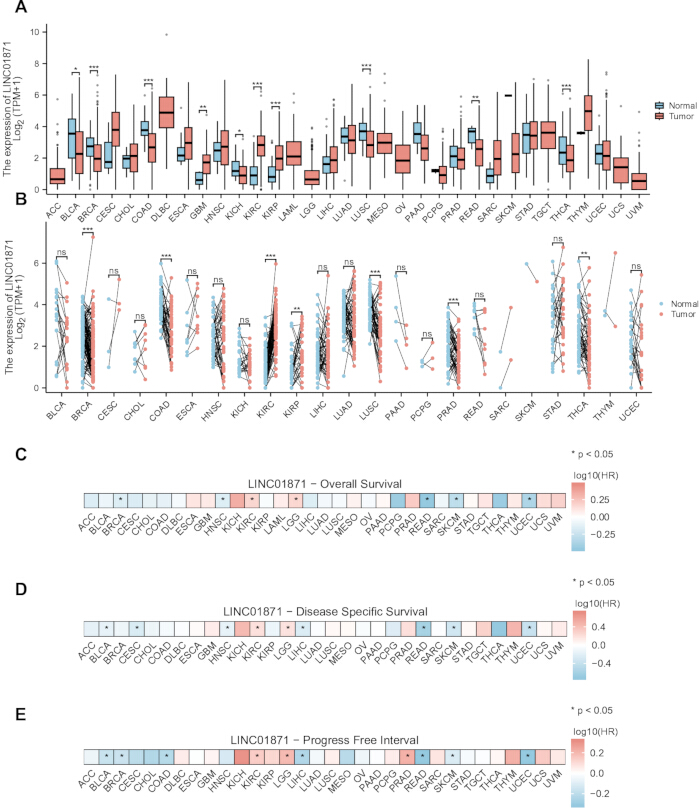
图5泛癌中LINC01871的表达及预后分析
(A,B)使用非配对(A)和配对(B)分析方法在多种癌症类型中比较肿瘤组织与正常组织中LINC01871的表达水平。(C–E)LINC01871的预后关联性,显示总体生存期(C)、疾病特异性生存期(D)和无进展生存期(E)的对数转换风险比。HR,风险比;TPM,每百万转录本数;ns,无显著性差异。癌症类型缩写基于癌症基因组图谱命名法。非配对的肿瘤–正常数据采用Mann–Whitney U检验进行评估(A),配对的肿瘤–正常数据采用Wilcoxon符号秩检验进行评估(B)。总体生存期、疾病特异性生存期和无进展生存期的关联性通过单变量Cox比例风险回归模型分析(C–E)。*P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001 < 0.05,**P < 0.01,***P < 0.001,以及 ****P < 0.0001;ns,无显著性差异。 请点击此处查看此图的放大版本。
LINC01871 表达与免疫细胞浸润的相关性
接下来,我们利用乳腺癌样本的单细胞 RNA 测序数据(GSE161529)表征了 LINC01871 的细胞分布。在完成质量控制、批次效应校正、聚类及细胞类型注释后,鉴定出的细胞群体包括上皮细胞、CD8⁺ T 细胞、T 细胞、巨噬细胞、成纤维细胞、自然杀伤(NK)细胞和 B 细胞(图 6A)。在这些细胞群体中,LINC01871 的表达在 T 细胞和 NK 细胞中最为显著(图 6B、C)。因此,我们进一步利用基于转录组的浸润估计方法,分析了 LINC01871 与免疫微环境之间的关系。CIBERSORT 分析表明,LINC01871 高表达组中多种免疫细胞群体的估计比例较高,包括 CD8⁺ T 细胞、NK 细胞和 M1 巨噬细胞,同时调节性 T 细胞(Tregs)和 M2 巨噬细胞的估计比例较低(图 6D)。类似地,ESTIMATE 计算的免疫评分在 LINC01871 高表达样本中也更高(图 6E)。使用既往报道的免疫细胞标志基因进行 ssGSEA 分析,也得到了基本一致的结果模式(图 6F)。将该分析扩展至多种癌症类型后发现,LINC01871 表达与多种免疫细胞群体的估计丰度之间存在显著相关性(图 6G)。
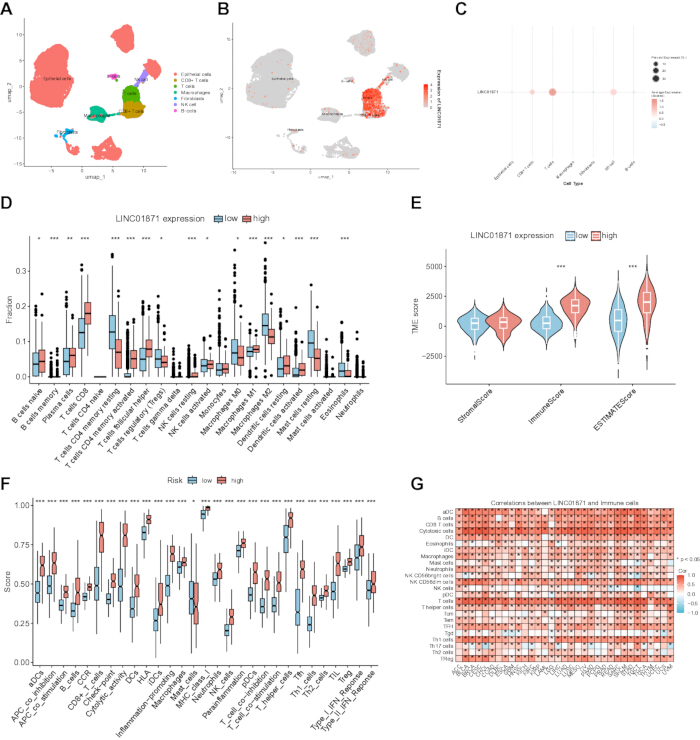
图6LINC01871 的单细胞表达与免疫浸润分析
(A)基于单细胞RNA测序数据鉴定的注释细胞群体的均匀流形近似与投影(UMAP)图示。(B)UMAP特征图展示LINC01871在各注释细胞群体中的表达分布。(C)点图显示每种细胞类型中表达LINC01871的细胞比例及标准化平均表达水平。(D)通过RNA转录本相对子集估计法(CIBERSORT)估算的低表达与高表达LINC01871组中22种免疫细胞群体的相对比例。(E)利用基于表达数据估算恶性肿瘤组织中基质和免疫细胞(ESTIMATE)方法获得的基质、免疫及肿瘤微环境评分。(F)通过单样本基因集富集分析(ssGSEA)在低表达与高表达LINC01871组中获得的免疫相关评分。(G)通过ssGSEA估算的泛癌范围内LINC01871表达与免疫细胞浸润之间的关联。NK,自然杀伤细胞;TME,肿瘤微环境。癌症类型缩写依据癌症基因组图谱(The Cancer Genome Atlas)命名规范。低表达与高表达LINC01871组间的差异采用Mann–Whitney U检验进行评估(D–F)。泛癌范围内LINC01871表达与免疫细胞浸润的关联采用Spearman相关分析进行评估(G)。*P < 0.05,**P < 0.01,***P < 0.001 < 0.05,**P < 0.01,***P < 0.001,以及 ****P < 0.0001;ns,无显著性差异。 请点击此处以查看此图的放大版本。
数据可用性:
本研究中分析的数据集可从癌症基因组图谱(The Cancer Genome Atlas, TCGA;https://portal.gdc.cancer.gov)和基因表达综合数据库(Gene Expression Omnibus, GEO;https://www.ncbi.nlm.nih.gov/geo/)公开获取。所使用的数据集包括 TCGA-BRCA 队列和 GSE161529(https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529)。补充图 1–3 提供了额外的生物信息学和预后分析结果。补充表 1 列出了用于逆转录定量聚合酶链反应(RT-qPCR)的引物序列,补充表 2 列出了用于蛋白质印迹分析的一抗和二抗。用于生物信息学和统计分析的 R 脚本作为 补充文件 1 提供。
补充图1. 与预测的CDK4/6抑制剂敏感性相关的差异表达基因及加权基因共表达网络模块的鉴定。
(A,B)伏洛诺图显示了瑞博西利(A)和帕博西利(B)预测耐药组与预测敏感组之间的差异表达基因。(C,D)通过WGCNA生成的聚类树状图,展示了瑞博西利(C)和帕博西利(D)的基因聚类及模块分配。差异表达基因定义为绝对log2倍数变化≥0.5且校正后P值<0.05的基因。 请点击此处下载该文件。
补充图2. 五个额外候选lncRNA的预后及预测效能。
(A)通过LASSO回归鉴定出的五个额外候选lncRNA的Kaplan–Meier生存分析。(B,C)受试者工作特征曲线分析,显示这五个lncRNA在预测对瑞博西利(ribociclib)(B)和帕博西利(palbociclib)(C)耐药性方面的诊断效能。LINC01871的相应分析结果见图1和图3。 请点击此处下载该文件。
补充图3. LINC01871在乳腺癌中的预后评估。
(A)在激素受体阳性/人表皮生长因子受体2阴性(HR阳性/HER2阴性)亚组中,LINC01871高表达组与低表达组对瑞博西利和帕博西利的预测半数抑制浓度(IC50)值。(B)在HR阳性/HER2阴性亚组中,LINC01871表达水平与瑞博西利及帕博西利预测IC50值之间的Spearman相关性分析。(C)根据LINC01871表达水平绘制的无进展间隔期(PFI)Kaplan–Meier生存分析。(D)接受放疗的患者按LINC01871表达水平分层的Kaplan–Meier生存分析。(E)整合LINC01871表达水平与临床病理特征的列线图,用于预测TCGA-BRCA总队列的总生存期。(F)列线图在1年、3年和5年时预测生存概率与实际观察生存概率一致性的校准曲线。A图中的比较采用Mann–Whitney U检验分析,B图中的相关性采用Spearman相关性分析评估。IC50,半数抑制浓度;PFI,无进展间隔期;HR,激素受体;HER2,人表皮生长因子受体2。*P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001;ns,无统计学意义。 请点击此处下载该文件。
补充表 1. 逆转录定量聚合酶链式反应(RT-qPCR)所用引物序列。
用于 LINC01871 和内源性参考基因 GAPDH 的 RT-qPCR 分析的正向与反向引物序列(5′→3′)。 请点击此处下载该文件。
补充表 2. 用于蛋白质印迹分析的一抗和二抗。
用于蛋白质印迹分析的一抗和二抗,包括靶蛋白或抗体特异性、供应商、目录号、宿主物种、工作稀释度以及研究资源标识符(RRID)。 请点击此处下载该文件。
补充文件1:用于生物信息学和统计分析的R脚本。
本补充文件包含用于生成本研究中所展示的生物信息学分析和图表的R脚本,包括转录组分析、差异表达分析、加权基因共表达网络分析(WGCNA)、最小绝对收缩与选择算子(LASSO)回归、生存分析、受试者工作特征(ROC)分析、功能富集分析、免疫浸润分析、单细胞RNA测序分析以及图表生成。各个脚本对应于论文中呈现的主要图表和补充图表。 请点击此处下载该文件。
讨论
随着对癌症生物学认识的不断深入,研究人员已鉴定出多个新的治疗靶点,并确立了靶向治疗作为癌症治疗的重要组成部分17。然而,治疗耐药性的出现持续限制了这些疗法的长期有效性。本研究通过整合多组学分析与机器学习方法,鉴定出LINC01871是一个与预测对瑞博西利(ribociclib)和帕博西利(palbociclib)敏感性相关的候选因子。实验分析进一步表明,LINC01871的过表达在体外增强了细胞对这两种药物的敏感性,并在基于细胞及异种移植模型中抑制了乳腺癌细胞的增殖。这些效应伴随着NF-κB信号通路活性的降低,提示LINC01871与该信号通路之间可能存在关联。这些发现可能与当前在基于CDK4/6抑制剂治疗过程中越来越多地使用生物标志物来指导治疗决策的趋势相关。然而,支持LINC01871作为生物标志物的证据与已有成熟生物标志物指导策略相比仍存在显著差距。例如,对循环肿瘤DNA中ESR1突变的监测已被作为调整内分泌治疗策略的一部分,并接受了前瞻性评估。相比之下,LINC01871目前仍仅为一种候选生物标志物,尚不足以用于临床决策。这一区别尤为重要,因为在激素受体阳性/HER2阴性转移性乳腺癌患者中,经历CDK4/6抑制剂治疗进展后的可选治疗方案现已包括口服选择性雌激素受体降解剂、PI3K/AKT信号通路抑制剂以及抗体-药物偶联物18,19。在这一不断演变的治疗格局中,能够区分CDK4/6抑制剂敏感性差异的生物标志物有望辅助治疗方案的分层选择。尽管我们的研究结果支持LINC01871与瑞博西利和帕博西利敏感性之间的关联,但目前的证据主要来源于药物敏感性的计算预测及体外实验。因此,仍需开展包含明确CDK4/6抑制剂暴露史和临床结局记录的前瞻性队列研究,以确定LINC01871是否在患者中具有预测价值。
CDK4/6抑制剂在雌激素受体和/或孕激素受体阳性乳腺癌中的治疗益处已在多项临床试验中得到证实4,5,6。其在三阴性乳腺癌中的潜在应用价值也引起了研究关注20,21。例如,Yang等人发现,同时靶向CDK4/6和CDK7可抑制三阴性乳腺癌细胞的增殖22。其他研究已鉴定出可能影响对CDK4/6抑制反应的分子改变。据报道,GPX4抑制可提高palbociclib在雌激素受体阳性及三阴性乳腺癌中的敏感性23,而C9orf142则与三阴性乳腺癌中CDK4/6抑制剂耐药相关20。相反,ACAA1的抑制被报道可增强乳腺癌细胞对CDK4/6抑制剂的敏感性24。目前关于CDK4/6抑制剂反应的分子决定因素的研究主要集中于蛋白编码基因,而长链非编码RNA(lncRNA)的作用尚不明确。我们的研究通过鉴定LINC01871为一种可能与CDK4/6抑制剂反应相关的非编码RNA,拓展了该领域认知。细胞毒性实验和克隆形成实验,结合流式细胞术检测及细胞周期相关蛋白分析,一致表明LINC01871的过表达与对ribociclib和palbociclib更高的敏感性相关。独立的增殖实验及异种移植模型进一步支持LINC01871过表达与乳腺癌生长之间存在抑制性关联。
为了探究可能介导上述现象的机制,我们分析了高表达与低表达 LINC01871 两组之间差异表达基因以及与 LINC01871 共表达基因的功能谱。GO 和 KEGG 分析均将这两组基因与免疫相关过程及 NF-κB 信号通路联系起来。该发现与细胞周期调控相关,因为已有研究报道 NF-κB 信号通路可上调细胞周期蛋白 D(cyclin D)的表达,从而促进细胞周期进程25,26。Zhou 等人进一步证明,NF-κB 可与 CDK6 启动子结合并促进 CDK6 的转录27。NF-κB 与 PI3K/AKT/mTOR 通路之间的交互作用也已有描述28,而后者通路与 CDK4/6 抑制剂耐药性相关11。综上,这些发现为在 LINC01871 背景下研究 NF-κB 活性提供了理论依据。与富集分析结果一致,过表达 LINC01871 的细胞中 P65 的磷酸化水平较低。然而,这些数据仅表明一种关联性,而非直接的调控机制,LINC01871 如何影响 NF-κB 信号通路仍有待阐明。
免疫微环境是影响CDK4/6抑制剂反应的另一个潜在因素。例如,已有研究报道,γδ T细胞可通过CX3CR1⁺巨噬细胞介导的作用促进耐药性29。Luo等人观察到,在对CDK4/6抑制剂产生晚期耐药的患者肿瘤中,CD8⁺ T细胞和NK细胞的浸润程度更高30。我们的单细胞分析显示,LINC01871在T细胞和NK细胞中的表达比在上皮细胞中更为显著。基于转录组的互补分析表明,LINC01871高表达与估计的CD8⁺ T细胞、M1型巨噬细胞和NK细胞浸润增加相关,同时与M2型巨噬细胞和调节性T细胞(Tregs)的估计浸润减少相关。已有研究将CD8⁺ T细胞、M1型巨噬细胞和NK细胞与抗肿瘤免疫活性联系在一起,而M2型巨噬细胞则与促进肿瘤的功能相关31,32,33,34。综上所述,我们的结果提示,LINC01871的高表达可能与更具免疫活性的肿瘤微环境相关。然而,这一解释仍属初步,因为免疫细胞的估计值是基于转录组谱推断得出,而非直接测量,未来还需开展功能研究以明确LINC01871是否在塑造免疫微环境中发挥作用。
在解读这些研究结果时,应认识到存在若干局限性。首先,LINC01871 是通过整合性多组学分析鉴定得出的,其中药物反应是通过计算推断得出,而非来自接受 CDK4/6 抑制剂治疗的患者实际数据。尽管直接的体外实验显示,在 LINC01871 过表达后,细胞对帕博西尼和瑞博西尼的敏感性增加,但这些结果尚不足以确立其在患者中的预测价值。因此,仍需依赖具有明确 CDK4/6 抑制剂用药记录和临床反应数据的独立队列,以评估 LINC01871 作为预测性生物标志物的潜力。其次,发现性分析最初是在整个 TCGA-BRCA 队列中进行的,该队列包含临床异质性的乳腺癌亚型。尽管在激素受体阳性/HER2 阴性亚组中也观察到了 LINC01871 与预测药物敏感性之间的关联,但仍需在经临床治疗的激素受体阳性/HER2 阴性人群中进一步验证。第三,由于本研究使用的 GDSC2 数据集中缺乏相应的阿贝西尼反应数据,我们的药物反应分析仅限于帕博西尼和瑞博西尼。因此,目前尚不清楚所观察到的关联是否同样适用于阿贝西尼。第四,尽管基于细胞和异种移植实验观察到了 LINC01871 的肿瘤抑制效应,但其与 NF-κB 信号通路之间的分子联系尚未建立。LINC01871 过表达伴随 P65 磷酸化水平降低,但介导这一关联的具体机制仍需进一步研究。类似地,免疫相关发现主要来源于基于转录组的计算分析,应将其视为关联性结果,而非 LINC01871 直接调控肿瘤免疫微环境的证据。最后,CDK4/6 抑制剂耐药涉及多种生物学过程,LINC01871 不太可能完全解释治疗反应的全部复杂性。因此,未来的研究应纳入特定亚型队列,评估阿贝西尼的反应,验证免疫相关性发现,深入探究 LINC01871 与 NF-κB 信号通路之间的机制关系,并开展前瞻性临床评估,以确定 LINC01871 是否具备作为预测性生物标志物的应用价值。
披露
利益冲突:
作者声明不存在任何竞争利益。
致谢
本研究由福建省自然科学基金(项目编号:2022J011056)资助。作者感谢癌症基因组图谱(The Cancer Genome Atlas, TCGA)和基因表达综合数据库(Gene Expression Omnibus, GEO)提供了本研究中使用的公开数据集。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 25 G 注射器针头 | Beyotime | FS802-30pcs | 用于口腔牵开器及可选的牙周膜预松解的一次性注射器针头 |
| 4% 多聚甲醛溶液 | Solarbio | P1110 | 用于标本固定的 4% 多聚甲醛溶液 |
| 75% 乙醇 | Ouse 医疗器械商店 | N/A | 用于表面消毒的 75% 医用级乙醇 |
| C57BL/6 小鼠 | Charles River | 213 | 8 周龄雄性 C57BL/6 小鼠,体重 22–29 g |
| 卡洛芬 | Solarbio | C5350 | 术后镇痛药,皮下注射,剂量为 5 mg/kg |
| 棉球 | 欧宁医疗器械 | N/A | 用于口腔清洁和止血的无菌棉球 |
| CTAn v1.18.4.0+ | SkyScan | N/A | 用于 μCT 图像分析的软件 |
| DataViewer v1.5.6.2 | SkyScan | N/A | 用于查看和导出重建的 μCT 图像的软件 |
| 指套 | 乐苏办公 | MEKU-1/2/3B | 拔牙过程中用于保护拇指的指套 |
| 泡沫板 | 东莞市利江龙工业有限公司 | N/A | 用作手术操作和固定平台的泡沫板 |
| 凝胶饲料 | ReadyDietech | J10001 | 术后使用时,在笼底提供 3 天的凝胶饲料 |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | 用于统计分析和图表生成的软件 |
| 头灯 | 霸州市鹏恩防护用品厂 | N/A | 用于照亮手术区域的头灯 |
| 加热垫 | 石家庄佳暖电器有限公司 | N/A | 预热至约 38 °C,用于术后恢复 |
| 羟基磷灰石模体 | QRM | QRM-70127 | 用于将 CT 衰减值转换为骨密度的校准模体 |
| 放大装置 | 奥林巴斯公司 | SZX10 | 用于在放大条件下检查带齿镊尖端和拔牙窝的装置 |
| 口罩 | 森伦医疗器械专营店 | N/A | 外科口罩 |
| 微型计算机断层扫描仪 | Bruker SkyScan | SkyScan 1276 | μCT 扫描仪,工作参数为 80 kV、500 μA 和 10 μm 体素分辨率 |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | 用于三维重建的软件 |
| 戊巴比妥钠 | Sigma-Aldrich | P3761 | 用作 1% 麻醉溶液的戊巴比妥钠盐 |
| 磷酸盐缓冲液 | Solarbio | P1010 | 0.01 M 磷酸盐缓冲液粉末,pH 7.2–7.4 |
| 聚维酮碘消毒液 | 贝康药房旗舰店 | N/A | 用于腹部消毒的聚维酮碘溶液 |
| 橡胶圈 | 佛山普力橡胶制品厂 | N/A | 用于组装口腔牵开器的橡胶圈 |
| 生理盐水溶液 | 赛默飞世尔 | BR0053G | 用于配制口腔清洁溶液的生理盐水片剂 |
| 标准颗粒饲料 | 江苏协通医药生物科技工程有限公司 | XTC01WC-001 | 用于常规饲养及术后软化后喂食的标准颗粒饲料 |
| 蒸汽灭菌器 | 机构设施 | N/A | 用于灭菌带齿镊和生理盐水溶液的设备 |
| 无菌棉签 | 康百来医疗器械商店 | N/A | 一次性无菌棉签 |
| 无菌手套 | 森伦医疗器械专营店 | N/A | 无菌乳胶手套 |
| 无菌无纺布 | 山东新华感控用品杭州店 | N/A | 用于覆盖操作台面和加热垫的无菌无纺布 |
| 无菌手术帽 | 森伦医疗器械专营店 | N/A | 无菌手术帽 |
| 手术服 | 森伦医疗器械专营店 | N/A | 操作过程中穿着的清洁手术服 |
| 胶带 | 赛默飞世尔 | 15947 | 用于固定小鼠四肢的粘性胶带 |
| 带齿眼科镊 | Beyotime | FS229 | 用作牙科镊的带齿眼科镊 |
| 兽用眼科软膏 | 德克拉兽用产品 | 143-16 | 麻醉后涂抹以防止角膜干燥的眼科软膏 |
参考文献
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.