本研究提出了一种可重复的生物信息学分析流程,整合转录组学、机器学习和免疫浸润分析,以鉴定慢性阻塞性肺疾病(COPD)中潜在的诊断生物标志物和调控网络。
研究文章
UPP1 作为诊断生物标志物:慢性阻塞性肺疾病中整合生物信息学与免疫浸润分析的见解
* These authors contributed equally
本文内容
摘要
摘要
慢性阻塞性肺疾病(COPD)是一种以持续性气流受限和慢性炎症为特征的进行性呼吸系统疾病,但N4-乙酰胞苷(ac4C)RNA修饰在其发病机制中的作用仍基本未被探索。本研究旨在从已发表的数据库中系统筛选与ac4C相关的基因(ac4C-RGs),并分析其在COPD中的调控网络,从而识别潜在的生物标志物,用于后续机制研究,而不预设任何特定基因与ac4C修饰之间存在直接调控关系。通过转录组数据鉴定差异表达基因(DEGs),并采用加权基因共表达网络分析(WGCNA)挖掘关键共表达模块。对DEGs、显著模块和ac4C-RGs进行交叉分析。使用LASSO回归、XGBoost和随机森林算法筛选关键基因,随后基于逻辑回归构建诊断模型。通过受试者工作特征(ROC)曲线分析、曲线下面积(AUC)及其95%置信区间、校准曲线评估和决策曲线分析(DCA)评价模型性能。共鉴定出160个重叠基因,其中六个核心基因(PTRF、PRKCDBP、UPP1、TOR3A、FAM168B和B4GALT2)被三种机器学习算法一致选出。该诊断模型表现出良好的区分能力,在训练集、内部测试集和外部验证集中的AUC分别为0.766、0.759和0.723。调控网络分析提示可能存在竞争性内源RNA(ceRNA)轴及转录因子相互作用,而免疫浸润谱分析显示关键基因与多种免疫细胞亚群之间存在显著相关性。药物-基因相互作用分析和分子对接结果表明,氟尿嘧啶、卡培他滨和5-苄基环尿苷可能与UPP1具有良好的预测结合亲和力。综上所述,PTRF、PRKCDBP、UPP1、TOR3A、FAM168B和B4GALT2被鉴定为COPD中潜在的ac4C相关生物标志物,可能参与免疫和代谢调控,为未来的功能研究和治疗探索提供了基础。
引言
慢性阻塞性肺疾病(COPD)是一种慢性且具有异质性的呼吸系统疾病,其特征是由于肺泡和气道结构异常导致进行性气流受限1,2。蛋白酶与抗蛋白酶失衡、氧化应激、慢性炎症以及细胞衰老构成了COPD的核心病理生理机制,导致肺组织的结构破坏和功能损害3,4。此外,COPD受多种危险因素影响,包括长期吸烟、环境污染、职业暴露、呼吸道感染以及遗传易感性5,6。COPD已对全球经济造成重大负担,预计在2020年至2050年间每年将占全球GDP的0.111%7。尽管目前的治疗策略(如支气管扩张剂、吸入性糖皮质激素、肺康复和长期氧疗)可缓解症状,但阻止疾病进展仍具挑战性。由于临床表现存在显著异质性,患者的预后差异较大8。因此,迫切需要新的诊断生物标志物和预后指标,以提升COPD的管理水平并改善患者生存率。
RNA修饰是指RNA分子发生的化学改变,可改变RNA的结构和功能,从而调控基因表达9,10。常见的RNA修饰包括N6-甲基腺苷(m6A)、假尿苷(Ψ)、5-甲基胞嘧啶(m5C)和ac4C11。ac4C修饰在维持mRNA稳定性及促进mRNA翻译方面发挥关键作用12,13。NAT10是目前唯一已知的可催化ac4C修饰的真核生物酶,其活性对ac4C修饰的形成至关重要14。研究表明,氧化应激、细胞衰老、炎症与ac4C修饰之间存在显著相关性。例如,炎症性肠病(IBD)患者结肠组织中的CD4+ T淋巴细胞表现出NAT10水平显著升高15。NAT10通过增强趋化因子CCL2和CXCL1的ac4C乙酰化,促进巨噬细胞和中性粒细胞的浸润,从而加剧炎症损伤16。细胞对氧化应激的响应可能涉及ac4C修饰,因为在氧化应激条件下ac4C水平显著上升。此外,NAT10通过ac4C修饰稳定TGFB1 mRNA,促进PM2.5诱导的肺纤维化,进而触发上皮-间质转化17。然而,ac4C修饰在慢性阻塞性肺疾病(COPD)中的作用仍 largely 未被探索,凸显了该领域进一步研究的必要性。
本研究利用 GEO 数据库鉴定慢性阻塞性肺疾病(COPD)患者与对照组之间的差异表达基因(DEGs)。随后,将来自多组学数据整合的已发表 ac4C 相关基因(ac4C-RGs)列表18 与差异表达基因进行整合,以识别重叠的候选基因。鉴于 ac4C 修饰已知可影响炎症和氧化应激——这两个过程在 COPD 中至关重要——我们假设与 ac4C 调控网络相关的基因可能在 COPD 中发生异常调控。然而,这些重叠基因并不被视为 NAT10 的直接底物或由 ac4C 直接调控的基因,而是被认为与 ac4C 相关网络有关的候选基因。通过多种机器学习算法筛选关键基因,随后构建并验证诊断模型。接着,确定了与 COPD 发病机制相关的关键通路,并预测了潜在的靶向药物。最后,通过 RT-qPCR 实验验证关键基因的表达水平,为 COPD 的病理生理机制提供了初步见解,并为治疗探索指出了潜在方向。
方案
机构审查委员会声明
本研究遵循《赫尔辛基宣言》进行。研究方案经深圳市罗湖区中医院伦理委员会批准(批件号:2024-LHQZYYYXLL-KY-039),所有参与者在入组前均签署了书面知情同意书。本方案所用研究工具与材料的详细信息见于 材料表.
数据来源与处理
与慢性阻塞性肺疾病(COPD)相关的基因表达数据集来自基因表达综合数据库(Gene Expression Omnibus, GEO)。GSE54837 数据集被用作转录组数据集,GSE112811 数据集则作为验证集(表 1)。ac4C 相关基因(ac4C-RGs)通过文献检索获得18。使用 R 软件包 limma 鉴定 COPD 组与对照组之间的差异表达基因(DEGs)。当 |log2FC| > 0 且 p < 0.05 时,差异表达基因被认为具有统计学显著性。通过绘制火山图以可视化基因表达变化的整体分布情况。
WGCNA 的构建
使用R对GSE54837数据集进行WGCNA分析,以鉴定与慢性阻塞性肺疾病(COPD)相关的模块。在网络构建之前,采用hclust函数结合平均连接法和欧氏距离度量进行层次聚类分析,识别并剔除离群样本。最优软阈值幂次(β = 10)被选定以实现无标度拓扑拟合指数 R2 ≥ 0.85,以平衡无标度拓扑结构与平均连接度。构建邻接矩阵并将其转换为拓扑重叠矩阵(TOM)。采用动态树切割算法(deepSplit = 2,minClusterSize = 50)识别基因模块。对具有特征基因相关性的模块 > 0.75 的模块随后使用 mergeCloseModules 函数进行合并。然后使用 Pearson 相关系数将模块特征基因与临床特征(COPD 状态、年龄、性别和吸烟状态)进行相关性分析,以鉴定与 COPD 相关的模块用于后续分析。
重叠基因的筛选、富集分析及蛋白质相互作用网络分析
使用 R 软件包 ggvenn 生成维恩图,以鉴定差异表达基因(DEGs)、MEsalmon 模块基因和 ac4C 相关基因(ac4C-RGs)之间的重叠基因。利用 R 软件包 clusterProfiler,基于基因本体(Gene Ontology, GO)和京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes, KEGG)数据库对重叠基因进行功能富集分析。从 STRING 数据库(https://string-db.org/)获取蛋白质-蛋白质相互作用(PPI)信息,用于分析重叠基因在蛋白质水平上的相互作用关系。使用 Cytoscape 软件对所得的 PPI 网络进行可视化。
通过机器学习鉴定关键基因
应用了三种机器学习方法:最小绝对收缩与选择算子(LASSO)回归、极端梯度提升(XGBoost)以及随机森林(RF)。LASSO回归使用glmnet包实现,并采用10折交叉验证来确定最优惩罚参数λ。type.measure参数设置为“deviance”,family参数设置为“binomial”。通过λmin准则选择最优λ值,该准则可使交叉验证偏差最小化,最终筛选出17个基因。XGBoost使用xgboost包进行,设定以下超参数:nrounds = 100,max_depth = 6,eta = 0.3,subsample = 0.8,colsample_bytree = 0.8,eval_metric = “logloss”。特征重要性按增益(gain)指标排序,选取前30个基因。随机森林使用randomForest包实现,ntree = 200。特征重要性按Gini指数平均下降值排序,同样选取前30个基因。将三种机器学习方法筛选出的基因取交集,以确定后续分析中的关键基因。
构建并评估用于风险预测的逻辑回归模型
GSE54837 数据集被随机分为训练集(70%)和测试集(30%)。使用 MASS 软件包中的 glm 函数,在训练集上构建逻辑回归模型,以关键基因的表达水平作为输入特征。采用 pROC 软件包生成的 ROC 曲线评估模型性能。通过 2,000 次自助重复抽样计算 AUC 的 95% 置信区间。使用 rms 软件包生成的校准曲线(基于 1,000 次自助重采样)评估模型校准度。利用 dca 软件包进行决策曲线分析(DCA),以评估在不同阈值概率范围内的净临床获益。使用 rms 软件包中的 nomogram 函数构建列线图,以实现个体化风险预测。
回归方程为:
logit(P) = 0.5823 + 0.6010 × UPP1 - 0.6563 × PTRF + 0.3853 × B4GALT2 - 0.3972 × FAM168B + 0.1848 × PRKCDBP - 0.4787 × TOR3A. (1)
此处,P 表示 COPD 的预测概率,每个系数代表相应基因表达值对 COPD 对数优势的贡献。
表达分析、GeneMANIA 网络和分子调控网络
使用Wilcoxon秩和检验比较GSE54837数据集中慢性阻塞性肺疾病(COPD)组与对照组之间的基因表达水平。采用ggplot2软件包生成箱线图以可视化表达水平的分布情况,图中叠加显示中位数、四分位距(IQR)及各个数据点。利用GeneMANIA构建基因网络并预测功能相互作用。搜索时采用默认参数:物种 = Homo sapiens,最大相关基因数 = 20。将所得网络下载并进行可视化展示,边的颜色表示相互作用类型。构建竞争性内源RNA(ceRNA)网络以研究转录后调控机制。使用两个独立数据库预测靶向六个关键基因的miRNA:DIANA-microT(得分 ≥ 0.8)和miRanda(得分 ≥ 140,能量 ≤ −20 kcal/mol)。取两个数据库共同预测出的miRNA交集用于构建miRNA-mRNA配对关系。随后,利用StarBase数据库预测靶向这些miRNA的lncRNA。使用Cytoscape构建并可视化lncRNA-miRNA-mRNA调控网络。采用ChIP-X富集分析版本3(ChEA3)预测转录调控关系。对于每个预测出转录因子(TF)的关键基因,筛选出富集得分最高的前10个转录因子。在Cytoscape中构建TF-靶基因调控网络。
基因集富集分析与免疫细胞浸润评估
使用 clusterProfiler 软件包进行基因集富集分析(GSEA),以探究每个关键基因的生物学功能。对于每个关键基因,根据中位值将样本分为高表达组和低表达组。使用 limma 对两组间进行差异表达分析,并根据带符号的 log₂ 倍数变化对所得基因列表进行排序。采用 gseGO 函数对 GO 生物过程术语、gseKEGG 函数对 KEGG 通路进行 GSEA 分析,参数设置如下:minGSSize = 10,maxGSSize = 500,pvalueCutoff = 0.05,nPerm = 1,000。使用 GSVA 软件包中实现的单样本基因集富集分析(ssGSEA)估算了 28 种免疫细胞类型的相对丰度。包含 28 种免疫细胞类型标志基因的 curated 基因集特征矩阵来自既往文献19。对每个样本,应用 gsva 函数,参数设置为 method = "ssgsea",ssgsea.norm = TRUE,kcdf = "Gaussian"。使用 cor.test 函数计算 ssGSEA 富集评分与六个关键基因表达水平之间的 Spearman 相关系数。p 值采用 Benjamini-Hochberg 方法进行多重检验校正。利用 pheatmap 软件包将相关性矩阵以热图形式可视化。
药物预测、分子对接和疾病关联分析
利用 DrugBank 数据库鉴定了靶向关键基因的潜在治疗化合物。在 Cytoscape 中构建了“关键基因-靶向药物”相互作用网络,以可视化预测的药物-基因相互作用。使用 CB-Dock2 平台进行分子对接,以评估结合亲和力。人源 UPP1 的三维蛋白结构从蛋白质数据库中获取(PDB ID: 7B8T)。药物分子结构(SMILES 格式)从 PubChem 获取。采用 AutoDock Vina 引擎进行对接,结果按结合自由能(ΔG,单位为 kcal/mol)排序。使用 PyMOL 可视化对接复合物。利用比较毒物基因组学数据库(CTD)分析关键基因与环境暴露相关的人类疾病之间的关联。对每个基因单独查询,并提取关联性最强的前十种疾病,使用雷达图进行可视化。
RT-qPCR 实验方案
从中国深圳罗湖区中医院的八名慢性阻塞性肺疾病(COPD)患者和八名健康对照者中采集外周静脉血样本。COPD 的诊断依据全球慢性阻塞性肺疾病倡议(GOLD)标准,定义为支气管扩张剂使用后 FEV1/FVC < 0.7。 < 0.70。对照组由年龄和性别相匹配、无呼吸系统疾病史且肺功能检查正常的健康志愿者组成(FEV1% 预计值 ≥ 80% 且 FEV1/FVC ≥ 0.70)。患者的基线信息如表所示 表 2从COPD血液样本中使用血液RNA提取试剂盒提取总RNA。对于cDNA合成,取500 ng总RNA,按照试剂盒提供的说明书,使用含基因组DNA去除步骤的cDNA合成试剂盒进行逆转录。将所得cDNA稀释至150 ng/μL。μL.
采用基于SYBR Green的qPCR预混液在实时PCR系统上进行RT-qPCR。每个10 μL反应体系包含5 μL 2x SYBR Green预混液、0.5 μL正向引物(10 μM)、0.5 μL反向引物(10 μM)、1 μL稀释后的cDNA(15 ng/μL)以及3 μL无核酸酶水。扩增程序为:95 °C预变性5 min,随后进行40个循环(95 °C变性10 s,60 °C退火延伸30 s),最后从60 °C升至95 °C进行熔解曲线分析,以验证扩增特异性。所有反应均设置技术重复三次。以β-actin作为内参基因。各目的基因的引物扩增效率通过标准曲线稀释系列验证,效率范围为90%至110%。基因表达水平经β-actin归一化后,采用2-ΔΔCt法计算相对表达量。COPD组与对照组之间的统计学差异分析采用Mann-Whitney U检验。
统计分析
使用 Cytoscape 创建网络可视化图,使用 R 软件进行统计分析。除非另有说明,对于非正态分布的数据采用 Mann-Whitney U 检验,对于正态分布的数据采用 Student t 检验来比较两组之间差异。以 p < 0.05 为具有统计学显著性。
结果
重叠基因的鉴定、富集分析及蛋白质相互作用网络构建
从 GSE54837 数据集中共鉴定出 3,371 个差异表达基因(DEGs),其中包括 1,675 个上调基因和 1,696 个下调基因。前 10 个显著上调和下调的基因如图所示 图1A对 GSE54837 数据进行了层次聚类分析(补充图 1A),并应用10的软阈值化幂以确保无标度网络拓扑结构(图1B)。采用动态树切割法构建基因共表达模块,最小模块大小设为50个基因,每个模块被赋予一种独特的颜色(补充图1B)。具有特征基因相关性的模块 > 0.75 随后被合并(补充图1C, 图1C),从而得到14个不同的模块。根据模块特征基因与临床特征之间的皮尔逊相关性分析,MEsalmon模块(包含5,226个基因)与慢性阻塞性肺疾病(COPD)呈最显著的正相关(r = 0.35, p = 7 × 10⁻8, 图1D)。维恩分析在3,371个差异表达基因、5,226个MEsalmon模块基因和2,118个ac4C相关基因中鉴定出160个重叠基因图1E). 对这160个基因的功能富集分析显示,显著的GO条目包括单链RNA结合、mRNA代谢过程的调控以及RIG-I信号通路(图1F)。此外,KEGG分析表明,这些基因主要富集于FcγR介导的吞噬作用、mRNA监视途径以及黏着斑。图1G)。重叠基因的PPI网络包含118个节点和196条边(图1H).
慢性阻塞性肺疾病中六个关键基因的鉴定
为了在160个重叠候选基因中进一步鉴定潜在的关键基因,采用了三种机器学习算法。首先应用LASSO回归,并通过交叉验证确定最优惩罚参数(λ)≈ 0.091(图2A)。系数分布图显示,在最优λ值下共有17个基因被保留(图2B)。XGBoost分析筛选出增益值最高的前30个基因,其中PTRF、WBP11和LDOC1L表现出较高的预测价值(图2C)。随机森林(RF)算法根据Gini重要性得分对前30个基因进行排序,其中PTRF、RFX5和PRKCDBP具有最强的预测能力(图2D)。对三种方法筛选出的基因进行交集分析,最终鉴定出六个关键重叠基因:PTRF、PRKCDBP、UPP1、TOR3A、FAM168B和B4GALT2(图2E)。
诊断模型构建与关键基因表达分析
使用GSE54837数据集的70%作为训练集,建立了一个包含六个关键基因的逻辑回归模型。ROC曲线分析显示该模型具有中等诊断效能,训练集、内部测试集和外部验证集的AUC分别为0.766(95% CI:0.691–0.8417)、0.759(95% CI:0.6368–0.8817)和0.723(95% CI:0.6085–0.8596)(图3A–C)。校准分析证实模型具有高可靠性,决策曲线分析(DCA)表明在训练集(图3D–E)和验证集(图3F–G)中,广泛范围的阈值概率下均具有明确的净临床获益。构建了列线图以直观展示各基因的贡献,并辅助个体化风险评估(图3H)。表达分析显示,B4GALT2、PRKCDBP和UPP1在慢性阻塞性肺疾病(COPD)样本中显著上调,而FAM168B、PTRF和TOR3A则下调(图3I)。
慢性阻塞性肺疾病关键基因的调控网络与功能分析
使用 GeneMANIA 分析构建了包含与已鉴定枢纽基因相关性最高的前 20 个基因的功能相互作用网络(图 4A)。其中以物理相互作用为主,其次是共表达相关性和共享的蛋白质结构域。功能注释显示,这些基因在含氮碱基的小分子分解代谢过程、核苷分解代谢过程以及质膜筏等生物学过程中显著富集。通过整合 DIANA-microT 和 miRanda 数据库的 miRNA 预测结果,研究了转录后调控机制,共鉴定出 8 个重叠的 miRNA(图 4B),并据此构建了 lncRNA-miRNA-mRNA 调控轴。根据桑基图显示,两个被鉴定出的 miRNA(均与 FAM168B 的调控相关)被预测可受 7 个 lncRNA 靶向调控;而对于其余五个枢纽基因,则未发现此类调控相互作用(图 4C)。进一步利用 ChEA3 平台探索转录调控,预测了 B4GALT2、UPP1、FAM168B 和 TOR3A 的上游转录因子(TF)。针对每个基因选取排名前十的转录因子,构建了 TF-靶基因调控网络(图 4D)。为探究六个关键基因的生物学功能,进行了 GSEA 分析。结果显示,UPP1 在二酰甘油代谢过程和嘌呤核苷三磷酸生物合成过程等生物学过程,以及蛋白酶体通路和细胞色素 P450 介导的异源物代谢通路中显著富集(图 4E–F)。其余五个关键基因的富集分析结果见 补充图 2A–J。
COPD中UPP1的免疫浸润及药物靶点预测
使用ssGSEA算法评估了对照组和慢性阻塞性肺疾病(COPD)组中28种免疫细胞类型的免疫浸润水平。在COPD患者中,记忆B细胞、髓源性抑制细胞和活化树突状细胞的富集评分显著升高;相反,1型辅助性T细胞、活化B细胞和未成熟B细胞的富集评分显著降低(图5A)。需要注意的是,ssGSEA基于转录组数据提供的是相对免疫细胞富集程度的估计值,而非免疫细胞比例的直接测量结果。相关性分析显示,六个关键基因与不同免疫细胞亚群之间表现出差异性的关联模式。具体而言,UPP1、PRKCDBP和B4GALT2与记忆B细胞、活化树突状细胞及髓源性抑制细胞的浸润水平呈正相关(Spearman ρ > 0.4,p < 0.05);而PTRF、TOR3A和FAM168B则与1型辅助性T细胞和活化B细胞呈负相关(Spearman ρ < −0.3,p < 0.05)。完整的相关性矩阵以热图形式展示(图5B)。药物预测分析发现,在这六个候选基因中,仅UPP1被预测可与小分子发生相互作用。数据库中筛选出三种潜在的与UPP1相互作用的化合物:氟尿嘧啶(fluorouracil)、卡培他滨(capecitabine)和5-苄基环尿苷(5-benzylacyclouridine)(图5C)。这些化合物主要应用于肿瘤治疗或实验研究,其在COPD中的意义尚需进一步研究。结合自由能计算结果显示,5-苄基环尿苷具有最强的结合亲和力,提示其预测结合能力相对较高(表3)。三种化合物与UPP1的分子对接可视化分析表明,它们均呈现有利的预测结合构象,但该结果基于计算模拟预测,尚未经过实验验证(图5D–F)。此外,CTD分析表明,全部六个关键基因均与多种疾病表型显著相关,包括产前暴露延迟效应、体重减轻、肝肿大和炎症等(图5G–L)。
临床样本中关键诊断基因的 RT-qPCR 验证
为了验证关键基因的表达水平,从八名慢性阻塞性肺疾病(COPD)患者和八名对照受试者中采集了血液样本,由于样本量有限,该分析被视为初步验证。如图6A–F所示,PTRF、TOR3A和FAM168B在COPD样本中显著下调,而PRKCDBP和UPP1则显著上调,这与生物信息学分析中观察到的趋势一致。相比之下,两组之间B4GALT2的表达水平无显著差异。这种差异可能归因于样本量有限,或数据集与临床样本之间样本类型的差异。
数据可用性声明:
所有RNA测序数据均来自基因表达综合数据库(GEO,https://www.ncbi.nlm.nih.gov),其中GSE54837被选为训练集,GSE112811被选为验证集。本分析所用代码可从https://doi.org/10.5281/zenodo.21771476获取。
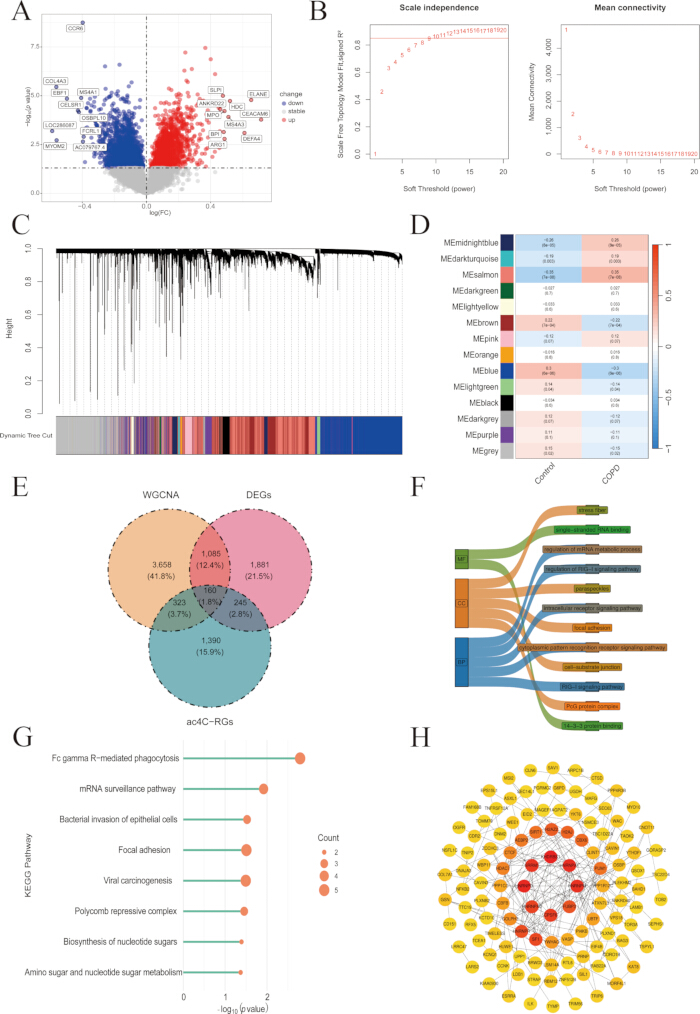
图 1:重叠基因的鉴定、富集分析及蛋白质互作网络构建。(A)GSE54837 数据集中差异表达基因(DEGs)的火山图。(B)软阈值筛选。(C)模块聚类树状图(合并后)。(D)模块与性状相关性热图。(E)用于鉴定重叠基因的维恩图。(F)GO 富集分析的桑葚图,显示交集基因在分子功能(MF)、细胞组分(CC)和生物过程(BP)中的主要富集结果。(G)KEGG 信号通路富集分析的棒棒糖图,气泡大小代表富集基因的数量。(H)重叠基因的蛋白质互作(PPI)网络;节点代表蛋白质,边代表蛋白质-蛋白质相互作用。缩写:DEGs = differentially expressed genes;PPI = protein-protein interaction;GO = Gene Ontology;MF = molecular function;CC = cellular component;BP = biological process;KEGG = Kyoto Encyclopedia of Genes and Genomes;ac4C-RGs = N4-acetylcytidine-related genes。请点击此处查看该图的高清版本。
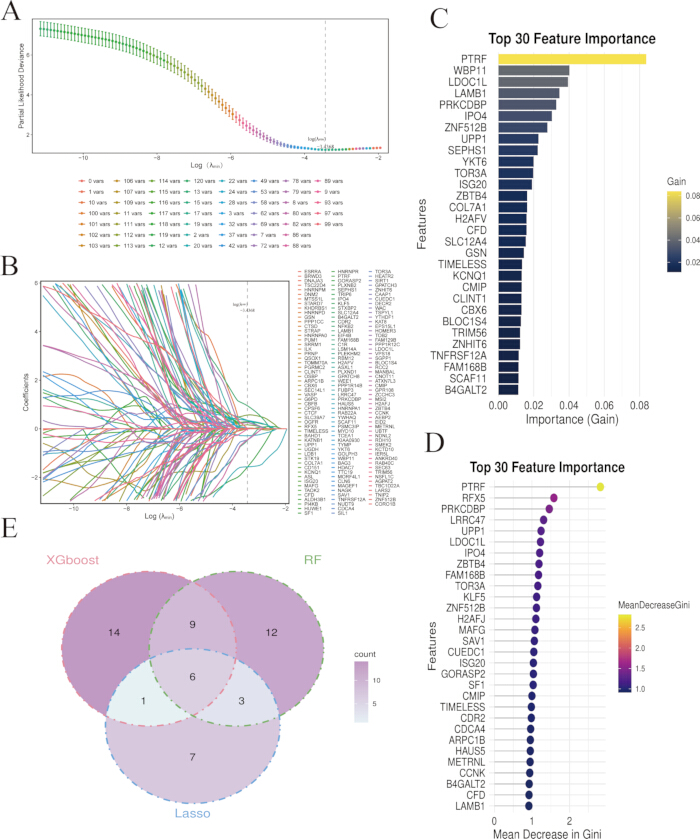
图 2:COPD 中六个关键基因的鉴定。(A)LASSO 交叉验证曲线。(B)LASSO 回归系数路径图。随着 λ 增大,不重要基因的系数趋近于 0。(C)XGBoost 特征重要性排序图。横轴表示增益值,纵轴表示基因名称,颜色深度表示重要性。(D)RF 特征重要性排序图。横轴表示 Gini 指数平均下降值。(E)三种算法交叉分析所得共有基因的维恩图。缩略语:LASSO = least absolute shrinkage and selection operator;XGBoost = extreme gradient boosting;RF = random forest。请点击此处查看该图的高清版本。
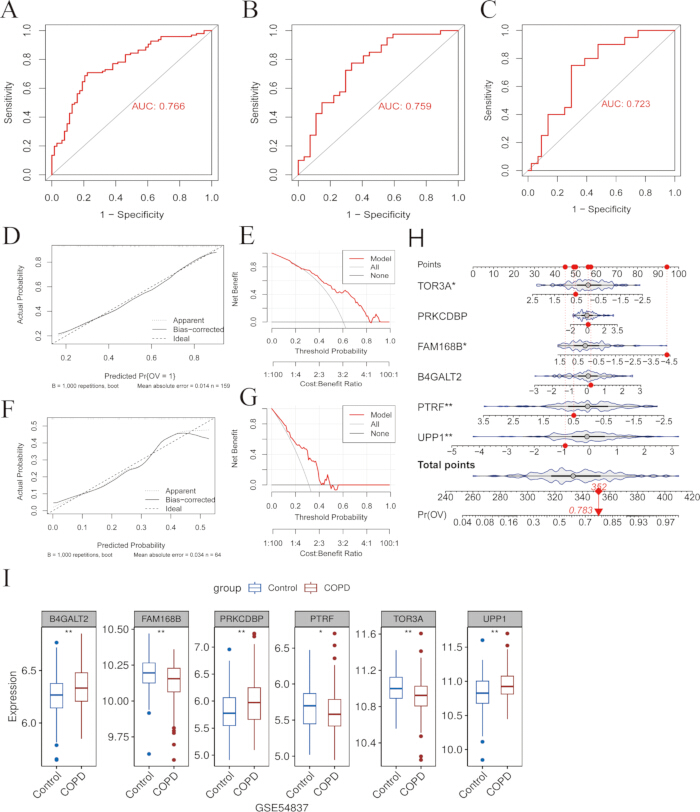
图 3:诊断模型的构建及关键基因的表达分析。 (A)训练集的 ROC 曲线。(B)内部测试集的 ROC 曲线。(C)外部验证集的 ROC 曲线。(D)训练集的校准曲线。(E)训练集的决策曲线分析(DCA)。(F)外部验证集的校准曲线。(G)外部验证集的决策曲线分析(DCA)。(H)六个关键基因的列线图。用于预测个体慢性阻塞性肺疾病(COPD)风险,每个基因赋予相应的评分。(I)GSE54837 数据集中 COPD 样本与对照样本中六个关键基因的表达分析。缩略语:ROC = 受试者工作特征曲线;AUC = 曲线下面积;DCA = 决策曲线分析;COPD = 慢性阻塞性肺疾病。 请点击此处查看该图的高清版本。
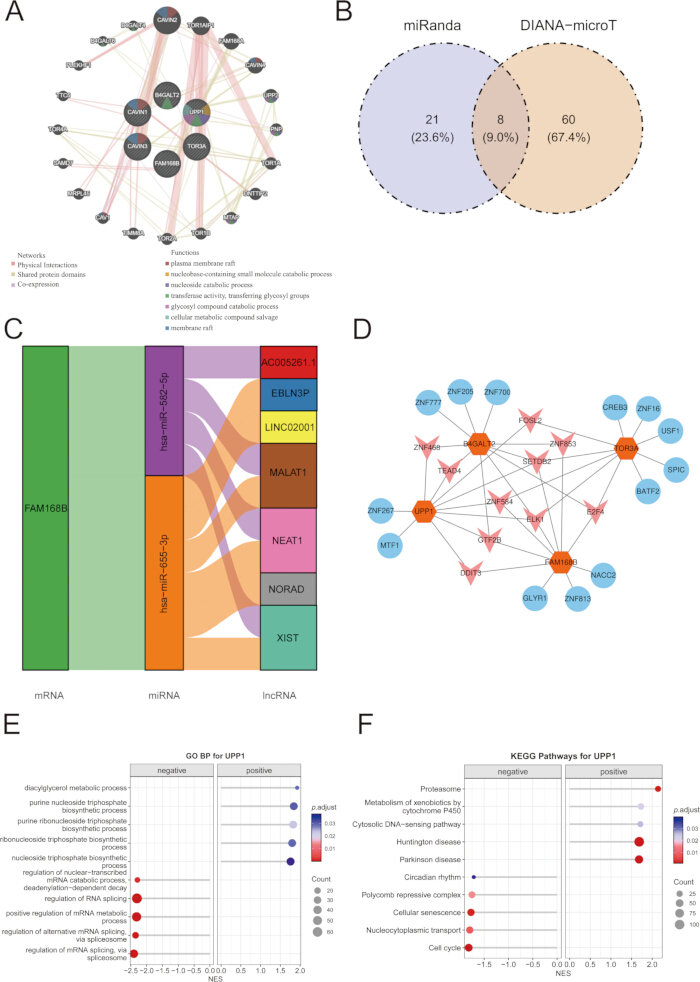
图 4:COPD 关键基因的调控网络及其功能意义。(A)6 个关键基因的 GeneMANIA 分析结果。线条颜色表示基因间的关联类型,节点颜色表示不同的功能类别。(B)DIANA-microT 与 miRanda 数据库交叉分析的维恩图。(C)ceRNA 调控网络的桑基图。(D)潜在的转录因子调控网络。蓝色节点代表转录因子,橙色节点代表靶基因。(E)UPP1 的单基因 GSEA 富集分析结果,包含 GO 分析。(F)UPP1 的单基因 GSEA 富集分析结果,包含 KEGG 分析。缩写:GO = Gene Ontology;KEGG = Kyoto Encyclopedia of Genes and Genomes。请点击此处查看该图的高清版本。
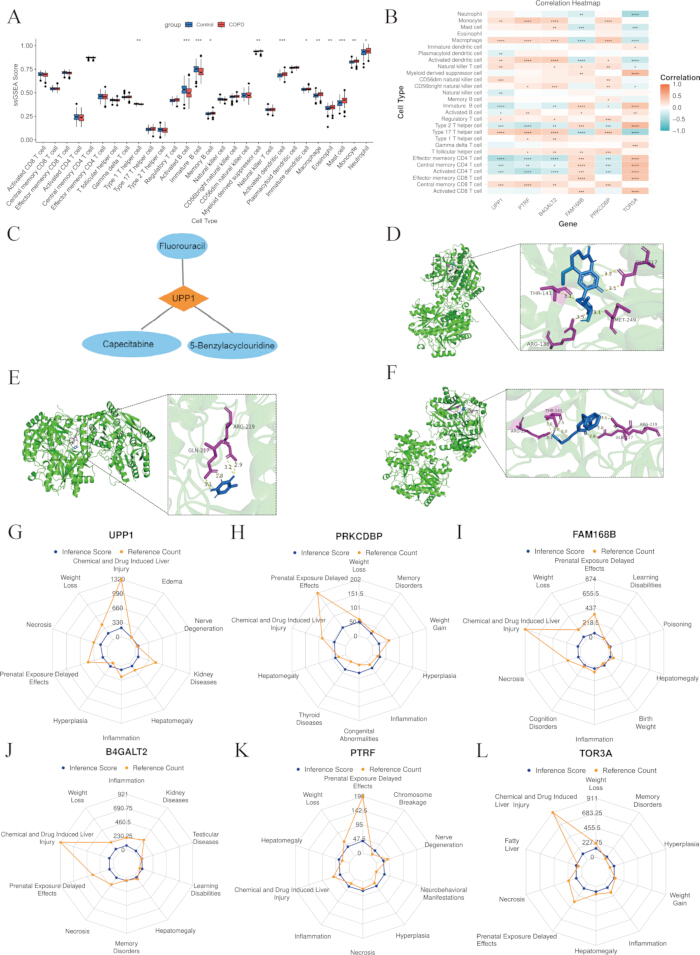
图 5:慢性阻塞性肺疾病中关键基因的免疫浸润及药物靶点预测。(A)各组间免疫细胞丰度的差异。(B)免疫细胞与关键基因相关性的热图。(C)关键基因与预测药物之间的相互作用网络。(D)氟尿嘧啶与UPP1的分子对接。(E)卡培他滨与UPP1的分子对接。(F)5-苄基-acyclouridine与UPP1的分子对接。每种化合物左侧图像显示整体对接构象,右侧图像显示局部结合相互作用。(G)B4GALT2的CTD分析。(H)FAM168B的CTD分析。(I)PRKCDBP的CTD分析。(J)PTRF的CTD分析。(K)TOR3A的CTD分析。(L)UPP1的CTD分析。请点击此处查看该图的高清版本。
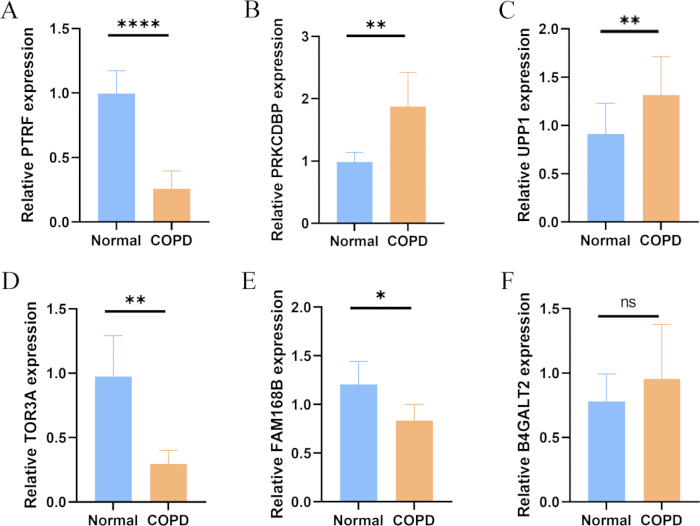
图6:慢阻肺样本与对照样本中关键基因表达的RT-qPCR验证。(A)PTRF的相对表达。(B)PRKCDBP的相对表达。(C)UPP1的相对表达。(D)TOR3A的相对表达。(E)FAM168B的相对表达。(F)B4GALT2的相对表达。ns = 无显著性差异,p > 0.05;* p < 0.05;** p < 0.01;*** p < 0.001;**** p < 0.0001。缩写:RT-qPCR = 逆转录定量聚合酶链式反应。请点击此处查看该图的高清版本。
补充图1:GSE54837数据集样本及基因模块聚类。(A)GSE54837数据集的样本聚类图。(B)合并前的模块聚类树状图。采用动态树剪切法对基因进行分组,以识别不同的模块。(C)模块特征基因的层次聚类树状图。根据特征基因的相似性,将表达模式相似的模块进行聚类。请点击此处下载该文件。
补充图2:GSEA富集分析。(A)PRKCDBP的GO分析。(B)PRKCDBP的KEGG分析。(C)PTRF的GO分析。(D)PTRF的KEGG分析。(E)TOR3A的GO分析。(F)TOR3A的KEGG分析。(G)FAM168B的GO分析。(H)FAM168B的KEGG分析。(I)B4GALT2的GO分析。(J)B4GALT2的KEGG分析。缩写:GO = 基因本体;KEGG = 京都基因与基因组百科全书。请点击此处下载该文件。
| 数据集 | 对照组 | 患者 | 测序平台 |
| GSE54837 | 90 | 136 | GPL570 |
| GSE112811 | 44 | 20 | GPL570 |
表1:本研究中使用的基因表达数据集。用于模型构建/内部测试和外部验证的GSE54837和GSE112811数据集的特征。
| 患者 | 1 | 2 | 3 | 4 | 5 | 6 | 7 | 8 |
| 性别(女/男) | M | M | M | F | M | M | M | M |
| 年龄(岁) | 69 | 72 | 75 | 73 | 68 | 70 | 69 | 71 |
| 吸烟状况 | 是 | 是 | 已戒烟(2年) | 否 | 是 | 是 | 是 | 已戒烟(5年) |
| 吸烟包年数 | 每日20包 / 30年 | 每日15包 / 35年 | 每日20包 / 50年 | 每日20包 / 40年 | 每日30包 / 40年 | 每日15包 / 40年 | 每日20包 / 30年 | |
| COPD分组 | 2 | 3 | 3 | 2 | 2 | 3 | 2 | 3 |
表2:研究参与者的基线特征。纳入RT-qPCR验证的慢性阻塞性肺疾病(COPD)患者和健康对照组的基线人口统计学和临床特征。
| 分子名称 | 基因 | 得分(kcal/mol) |
| 5-Benzylacyclouridine | UPP1 | -9.6 |
| Capecitabine | UPP1 | -6.1 |
| Fluorouracil | UPP1 | -5.5 |
表3:UPP1与候选化合物的分子对接结果。
UPP1与氟尿嘧啶、卡培他滨和5-苄基酰基尿苷之间相互作用的预测分子对接结果,包括它们的结合亲和力。
讨论
一种保守的RNA修饰ac4C主要存在于信使RNA(mRNA)和转运RNA(tRNA)中,可增强mRNA的稳定性及翻译效率20。NAT10是目前唯一已知介导ac4C修饰的RNA乙酰转移酶21。研究表明,NAT10在慢性阻塞性肺疾病(COPD)患者肺上皮细胞中表达上调。NAT10的敲低会破坏线粒体功能和转录组响应22。基于整合的多组学分析,本研究鉴定了六个与COPD密切相关的关键基因,并构建了一个诊断模型,该模型显示出中等诊断效能,具有进一步研究的潜在价值。进一步分析揭示了这些基因在转录调控、ceRNA网络以及免疫微环境中的关键作用。此外,还预测了潜在的靶向药物,为COPD的发病机制提供了新的见解,并有助于推动个体化精准治疗策略的发展。通过加权基因共表达网络分析(WGCNA)和差异表达分析,我们筛选出在COPD中差异表达且同时存在于既往发表的ac4C相关基因列表中的基因。需要强调的是,这些基因的筛选依据是其与ac4C调控网络的关联性,而非已证实与NAT10或ac4C乙酰化之间存在机制性联系,最终共获得160个候选基因。通过机器学习算法进一步筛选出六个关键基因(PTRF、PRKCDBP、UPP1、TOR3A、FAM168B和B4GALT2)。其中,PTRF通过调控IL-33-ZBP1介导的巨噬细胞坏死性凋亡,在尘螨(HDM)诱导的气道炎症中发挥关键作用,提示其可能参与COPD等慢性炎症性肺部疾病的发生23。Lai等24研究表明,外源性尿苷给药可通过Nrf2/SLC7A11/GPX4通路抑制巨噬细胞的铁死亡,从而缓解脓毒症引起的急性肺损伤。尽管在急性肺损伤模型的肺组织中观察到尿苷代谢关键酶UPP1的上调,但其确切功能——这种上调是保护性反应还是组织损伤的结果——仍有待进一步阐明。然而,该发现提示UPP1可能与COPD等炎症性肺部疾病的病理生理过程存在潜在关联,值得深入研究。其余四个关键基因在肺部相关疾病中的研究较少,但基于其在其他疾病中的功能及本研究的现有发现,我们推测其可能通过某些通路参与COPD的发病机制。
基于这六个关键基因,我们构建了一个慢性阻塞性肺疾病(COPD)诊断模型,并验证了其良好的预测性能。表达分析显示,在COPD中,UPP1、B4GALT2和PRKCDBP显著上调,而FAM168B、PTRF和TOR3A则明显下调。尽管在数据集分析中B4GALT2被识别为上调基因,但在RT-qPCR验证中未观察到显著差异。这种不一致可能归因于样本量有限、队列异质性以及公共数据集与临床血液样本之间样本来源的差异。基因集富集分析表明,这些关键基因在RNA剪接和mRNA加工过程中显著富集,同时也富集于细胞周期和尼古丁成瘾等通路。不可逆的细胞周期阻滞已被认为是细胞衰老的主要机制,可能在COPD的病理生理过程中发挥重要作用25,26。进一步分析表明,由DNA损伤诱导的衰老相关分泌表型(SASP)可能通过维持慢性炎症和加剧肺组织损伤,促进COPD的持续进展27。先前的一项研究也综述了尼古丁成瘾与COPD之间的遗传关联28。尽管吸烟是COPD的主要危险因素,但仅有少数吸烟者会发展为该疾病,提示遗传因素在COPD和尼古丁依赖中均起重要作用。Liu等29总结了RNA结合蛋白(RBPs)在COPD和肺动脉高压(PH)中的作用,强调其通过调控mRNA剪接和转录后基因表达参与肺血管重塑和炎症反应,从而凸显其作为生物标志物和治疗靶点的潜力。综上所述,本研究鉴定的关键基因及相关通路不仅加深了我们对COPD发病机制的理解,也为未来诊断生物标志物和靶向治疗策略的开发提供了坚实基础。
ceRNA网络涉及多种RNA分子,包括lncRNA、circRNA和mRNA,它们通过竞争性结合共享的miRNA,形成相互调控关系,从而影响基因表达30。这一复杂网络参与多种生理和病理过程,有助于阐明基因调控机制以及癌症和慢性炎症性疾病等疾病的发病机制。例如,Wang等人构建了一个包含11个lncRNA、5个miRNA和16个mRNA的ceRNA共表达网络,其中核心子网络与慢性阻塞性肺疾病(COPD)中免疫细胞比例变化和肺功能改变相关31。类似地,Zhang等人32基于男性吸烟者的外周血单个核细胞构建了circRNA-miRNA-mRNA ceRNA网络,鉴定了在COPD中异常表达的circRNA及相关关键通路。我们的共表达网络分析显示,关键基因主要通过物理相互作用、共表达以及共享蛋白结构域建立功能联系,并在多个与代谢相关的通路中显著富集。基于这些发现,我们进一步构建了转录因子(TF)-靶基因调控网络以及miRNA-lncRNA-mRNA调控轴。这些结果提示,在COPD中,关键基因可能通过lncRNA、转录因子和miRNA参与的多层次机制协同调控。
免疫浸润通过反映免疫细胞在组织或血液中的分布与活性,揭示了机体的免疫状态。基于此,本研究采用计算筛选预测潜在候选药物,并通过分子对接模拟评估其与靶蛋白的结合亲和力和稳定性。上述分析共同促进了新型治疗药物的发现,并为疾病机制提供了更深入的见解。本研究中,六个关键基因与大多数免疫细胞浸润呈正相关。药物预测结果显示UPP1与氟尿嘧啶、卡培他滨及5-苄基酰基尿苷可能存在相互作用,其中后者表现出最强的结合亲和力,分子对接结果进一步验证了这一发现。值得注意的是,氟尿嘧啶和卡培他滨主要作为抗肿瘤药物使用,在本研究中被识别为数据库预测的UPP1相互作用化合物,而非已验证的慢性阻塞性肺疾病(COPD)治疗方案。既往研究报道,局部应用氟尿嘧啶可能改善严重气道阻塞患者的气道通畅性33。然而,其他证据表明,氟尿嘧啶和卡培他滨可能引发肺毒性,尤其是在已有肺部基础疾病的患者中34。因此,其在COPD中的潜在相关性仍需进一步的实验验证和安全性评估。此外,CTD分析表明,这六个关键基因均参与多种病理过程。综上所述,免疫浸润、药物预测与分子对接的整合分析为COPD的精准治疗提供了新的分子靶点和理论依据,有助于推动相关药物的研发与临床转化。
然而,仍应承认存在一些局限性。本研究依赖于公共数据集,其样本来源相对有限,这可能引入批次效应和模型过拟合的风险。RT-qPCR 验证是在一个小样本队列中进行的,而 B4GALT2 表达水平的不一致现象提示可能存在队列异质性。此外,免疫浸润分析和药物预测分析本质上属于计算推断,尚需进一步的实验验证。同时,作为一项探索阶段的生物信息学研究,我们的诊断模型主要通过 AUC 值及其 95% 置信区间进行评估。由于公共数据集具有回顾性且样本量有限,敏感性、特异性、预测值以及详细的校准统计等全面的性能指标尚未充分评估。因此,本模型应被视为概念验证工具,其临床应用价值有待在更大规模的前瞻性队列中进一步验证。
通过整合生物信息学与机器学习分析,本研究鉴定了六个与慢性阻塞性肺疾病(COPD)显著相关的关键基因。建立了一个稳健的诊断模型,在多个队列中均表现出可靠的预测性能。功能分析表明,这些基因参与了涉及转录及转录后调控、免疫细胞浸润以及尼古丁成瘾和细胞周期相关通路的关键调控网络。药物预测与分子对接分析凸显了UPP1作为有前景的治疗靶点,多个候选化合物表现出较强的结合亲和力。总体而言,这些发现加深了我们对COPD病理生理机制的理解,并为未来的治疗开发和精准医学策略提供了有价值的分子靶点。
披露
作者声明无利益冲突。研究中所有受试者均签署了知情同意书。
致谢
我们感谢深圳市罗湖区中医院为本研究提供了必要的临床设施和行政支持。最后,我们衷心感谢所有参与本研究的患者和健康志愿者;他们的贡献对本工作至关重要。本研究得到了深圳市医疗卫生“三名”工程(编号:SZZYSM202401018)、罗湖区重点专科基金(编号:LX202402021)和罗湖区重点专科基金(编号:LX202302064)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| β-肌动蛋白引物 | Tsingke | N/A | 正向引物:5’-CATGTACGTTGCTATCCAGGC-3’ 反向引物:5’-CTCCTTAATGTCACGCACGAT-3’ |
| B4GALT2 引物 | Tsingke | N/A | 正向引物:5’-GGGCAGACTGCTGATCGAG-3’ 反向引物:5’-CCGGTGTCTAAAGGGGATGAT-3’ |
| CB-Dock2 | LabShare | Online | 分子对接 |
| clusterProfiler | Bioconductor | v4.14.6 | 富集分析 |
| Cytoscape | Cytoscape Consortium | v3.8.3 | 网络可视化 |
| DrugBank | University of Alberta | Online | 药物预测 |
| FAM168B 引物 | Tsingke | N/A | 正向引物:5’-TCTGGGGTTCCCTATGCAAAT-3’ 反向引物:5’-GTAGGATTCGCTCCAGGATACA-3’ |
| glmnet | CRAN | v4.1 | LASSO 回归 |
| GSVA | Bioconductor | v1.52.3 | ssGSEA 分析 |
| Hifair III 第一链 cDNA 合成超混合液 | YEASEN | 11141ES | cDNA 合成 |
| Hieff RTPCR SYBR Green 主混合液 | YEASEN | 11201ES | qPCR 扩增 |
| limma | Bioconductor | v3.54.0 | 差异表达分析 |
| LightCycler 480 II 系统 | Roche | LightCycler 480 II | 实时 PCR |
| PTRF 引物 | Tsingke | N/A | 正向引物:5’-GGGCCGTAGACCAGATCCA-3’ 反向引物:5’-CTTGCTCACCGTATTGCTCGT-3’ |
| PRKCDBP 引物 | Tsingke | N/A | 正向引物:5’-CACGTTCTGCTCTTCAAGGAG-3’ 反向引物:5’-TGTACCTTCTGCAATCCGGTG-3’ |
| R 软件 | R Foundation | v4.4.2 | 统计计算 |
| randomForest | CRAN | v4.7 | 随机森林 |
| RNA isolater MolPure 血液 RNA 提取试剂盒 | YEASEN | 19241ES50 | RNA 提取 |
| STRING 数据库 | EMBL | Online | 蛋白质相互作用网络 |
| TOR3A 引物 | Tsingke | N/A | 正向引物:5’-CCCTTGCTCTGTCGTTCCAC-3’ 反向引物:5’-CCCGTCCCGATACAGGTTC-3’ |
| UPP1 引物 | Tsingke | N/A | 正向引物:5’-CTGTCAGTCATGGTATGGGCA-3’ 反向引物:5’-GAGCACCGGGCATAGTACA-3’ |
| WGCNA | CRAN | v1.72 | 共表达网络 |
| xgboost | CRAN | v1.7 | XGBoost 算法 |
参考文献
- Hogg JC. Pathophysiology of airflow limitation in chronic obstructive pulmonary disease. Lancet. 2004;364(9435):709-21.
- Baraldo S, Turato G, Saetta M. Pathophysiology of the small airways in chronic obstructive pulmonary disease. Respiration. 2012;84(2):89-97.
- Fischer BM, Pavlisko E, Voynow JA. Pathogenic triad in COPD: oxidative stress, protease-antiprotease imbalance, and inflammation. Int J Chron Obstruct Pulmon Dis. 2011;6:413-21.
- Pandey KC, De S, Mishra PK. Role of proteases in chronic obstructive pulmonary disease. Front Pharmacol. 2017;8:512.
- Wang L, Xie J, Hu Y, Tian Y. Air pollution and risk of chronic obstructed pulmonary disease: the modifying effect of genetic susceptibility and lifestyle. EBioMedicine. 2022;79:103994.
- Elonheimo HM, et al. Environmental substances associated with chronic obstructive pulmonary disease-a scoping review. Int J Environ Res Public Health. 2022;19(7):3945.
- Chen S, et al. The global economic burden of chronic obstructive pulmonary disease for 204 countries and territories in 2020-50: a health-augmented macroeconomic modelling study. Lancet Glob Health. 2023;11(8):e1183-e93.
- Rutten-van Mölken MP, et al. Costs and effects of inhaled corticosteroids and bronchodilators in asthma and chronic obstructive pulmonary disease. Am J Respir Crit Care Med. 1995;151(4):975-82.
- Ontiveros RJ, Stoute J, Liu KF. The chemical diversity of RNA modifications. Biochem J. 2019;476(8):1227-45.
- Roundtree IA, Evans ME, Pan T, He C. Dynamic RNA modifications in gene expression regulation. Cell. 2017;169(7):1187-200.
- Wang C, et al. RNA modification in cardiovascular disease: implications for therapeutic interventions. Signal Transduct Target Ther. 2023;8(1):412.
- Zhang W, et al. ac4C acetylation regulates mRNA stability and translation efficiency in osteosarcoma. Heliyon. 2023;9(6):e17103.
- Qiu L, Jing Q, Li Y, Han J. RNA modification: mechanisms and therapeutic targets. Mol Biomed. 2023;4(1):25.
- Luo J, Cao J, Chen C, Xie H. Emerging role of RNA acetylation modification ac4C in diseases: current advances and future challenges. Biochem Pharmacol. 2023;213:115628.
- Li H, et al. RNA cytidine acetyltransferase NAT10 maintains T cell pathogenicity in inflammatory bowel disease. Cell Discov. 2025;11(1):19.
- Wang JN, et al. NAT10 exacerbates acute renal inflammation by enhancing N4-acetylcytidine modification of the CCL2/CXCL1 axis. Proc Natl Acad Sci U S A. 2025;122(17):e2418409122.
- Shenshen W, et al. NAT10 accelerates pulmonary fibrosis through N4-acetylated TGFB1-initiated epithelial-to-mesenchymal transition upon ambient fine particulate matter exposure. Environ Pollut. 2023;322:121149.
- Liu J, et al. Unveiling ac4C modification pattern: a prospective target for improving the response to immunotherapeutic strategies in melanoma. J Transl Med. 2025;23(1):287.
- Su F, et al. Multimodal single-cell analyses outline the immune microenvironment and therapeutic effectors of interstitial cystitis/bladder pain syndrome. Adv Sci (Weinh). 2022;9(18):e2106063.
- Schiffers S, Oberdoerffer S. ac4C: a fragile modification with stabilizing functions in RNA metabolism. RNA. 2024;30(5):583-94.
- Jiao L, et al. Emerging role of N-acetyltransferase 10 in diseases: RNA ac4C modification and beyond. Mol Biomed. 2025;6(1):46.
- Zheng N, et al. Regulatory roles of NAT10 in airway epithelial cell function and metabolism in pathological conditions. Cell Biol Toxicol. 2023;39(4):1237-56.
- Du J, et al. PTRF-IL33-ZBP1 signaling mediating macrophage necroptosis contributes to HDM-induced airway inflammation. Cell Death Dis. 2023;14(7):432.
- Lai K, et al. Uridine alleviates sepsis-induced acute lung injury by inhibiting ferroptosis of macrophage. Int J Mol Sci. 2023;24(6):5093.
- Kumari R, Jat P. Mechanisms of cellular senescence: cell cycle arrest and senescence associated secretory phenotype. Front Cell Dev Biol. 2021;9:645593.
- Ogrodnik M, Salmonowicz H, Jurk D, Passos JF. Expansion and cell-cycle arrest: common denominators of cellular senescence. Trends Biochem Sci. 2019;44(12):996-1008.
- Kumar M, Seeger W, Voswinckel R. Senescence-associated secretory phenotype and its possible role in chronic obstructive pulmonary disease. Am J Respir Cell Mol Biol. 2014;51(3):323-33.
- Pérez-Rubio G, et al. Role of genetic susceptibility in nicotine addiction and chronic obstructive pulmonary disease. Rev Invest Clin. 2019;71(1):36-54.
- Liu Y, Wang R, Jiang T. RNA-binding proteins as a molecular link between COPD and pulmonary hypertension. Int J Med Sci. 2025;22(8):1979-91.
- Marques TM, Gama-Carvalho M. Network approaches to study endogenous RNA competition and its impact on tissue-specific microRNA functions. Biomolecules. 2022;12(2):332.
- Wang J, Xia B, Ma R, Ye Q. Comprehensive analysis of a competing endogenous RNA co-expression network in chronic obstructive pulmonary disease. Int J Chron Obstruct Pulmon Dis. 2023;18:2417-29.
- Zhang J, et al. Construction of a ceRNA network and screening of potential biomarkers and molecular targets in male smokers with chronic obstructive pulmonary disease. Front Genet. 2024;15:1376721.
- Celikoğlu F, Celikoğlu SI. Intratumoural chemotherapy with 5-fluorouracil for palliation of bronchial cancer in patients with severe airway obstruction. J Pharm Pharmacol. 2003;55(10):1441-8.
- Chan AK, Choo BA, Glaholm J. Pulmonary toxicity with oxaliplatin and capecitabine/5-fluorouracil chemotherapy: a case report and review of the literature. Onkologie. 2011;34(8-9):443-6.