miR-93-5p 直接靶向儿童中的Toll样受体4(TLR4) 肺炎支原体 肺炎(MPP)。其表达下调可能与疾病进展及伴随的消化系统损伤有关。这些发现提示,miR-93-5p 可能作为 MPP 及合并消化系统损伤的 MPP 的潜在诊断生物标志物。
本文内容
摘要
摘要
MiR-93-5p 已被证实在调节急性肺损伤中发挥作用,但其在儿童中的作用及诊断价值尚不明确 肺炎支原体 肺炎(MPP)伴消化系统损伤的机制仍不明确。本研究评估了miR-93-5p作为儿童MPP及其相关消化系统并发症潜在诊断生物标志物的作用。临床样本采集自MPP患儿及健康对照儿童。采用逆转录定量PCR法检测miR-93-5p的表达水平。 肺炎支原体 感染MP的A549细胞被用于建立细胞MPP模型,以评估细胞活力和促炎性细胞因子的变化。通过荧光素酶报告基因检测评估miR-93-5p对Toll样受体4(TLR4)的靶向作用。采用受试者工作特征(ROC)曲线分析评估诊断效能。与健康对照组相比,MPP患者中miR-93-5p水平显著降低P < 0.001),且在合并消化系统损伤的肺炎支原体肺炎(MPP)患者中较单纯 MPP 患者进一步降低。肺炎支原体(MP)感染可降低细胞活力,并增加 IL-6 和 TNF-α 的表达。α 水平,而miR-93-5p过表达则减弱了这些效应。MP感染后TLR4表达升高,并受到miR-93-5p的负向调控。临床数据显示,MPP患儿中伴有消化系统损伤者miR-93-5p水平较低。ROC曲线分析显示,miR-93-5p在区分MPP患者与健康对照以及伴有消化系统损伤的MPP患者与单纯MPP患者方面具有良好的诊断效能。在儿童MPP中,miR-93-5p直接靶向TLR4,其表达下调可能促进疾病进展及相关的消化系统损伤。上述结果提示,miR-93-5p可能作为MPP及伴有消化系统损伤的MPP的潜在诊断生物标志物。
引言
肺炎支原体 肺炎支原体(MP)是导致儿童肺炎的主要病原体1,常导致全球范围内严重的呼吸系统疾病。尽管 MP 主要引起肺部感染,但也可能引发累及多个器官系统的肺外并发症。2肺炎支原体感染期间,最常见的胃肠道症状包括恶心、呕吐、腹泻和腹痛。3多种胃肠道状况和表现也被确认为其中的一部分 M. pneumoniae-相关肺外疾病(MPEPDs)2儿科患者伴有 肺炎支原体肺炎 (MPP)合并消化系统损伤时,可带来临床挑战,可能加重疾病严重程度并使治疗管理更加复杂4越来越多的证据表明,肺部感染与肠道功能障碍之间存在相互作用,这可能是这种关联的潜在机制。5,6MP感染期间免疫反应的失调也可能与消化系统损伤相关7.
尽管诊断技术不断进步8,但由于支原体肺炎(MPP)的临床表现与其他呼吸道感染存在重叠,且肺外受累表现多样,其早期准确识别仍具挑战性9。肺和肠道是共同黏膜免疫系统的关键组成部分,这两个器官的功能可相互影响,这在肺部疾病期间出现的肠道功能紊乱及其相互作用中得以体现,该现象被称为肺-肠交互作用10。此外,儿科护理主要关注呼吸道症状的管理11,而胃肠道表现可能被忽视或归因于治疗的不良反应。这一差距凸显了有必要进行全面评估,整合肺部与胃肠道的评价,以优化支持性护理干预措施12。近期的分子研究表明,在MPP中,肺部病变和肠道炎症均涉及炎症信号通路的调控因子12,13。
miR-93-5p 已被证实在急性肺损伤的发病机制中发挥作用,其表达下调与肺功能受损及炎症反应加剧相关14,15。基于上述发现,推测 miR-93-5p 在合并消化系统损伤的儿童肺炎支原体肺炎(MPP)患者血清中同样呈下调状态。利用 TargetScan 数据库进行的生物信息学分析显示,Toll 样受体 4(TLR4)可能是 miR-93-5p 的一个直接靶点。已有研究报道,TLR4 在调控肺-肠轴中发挥重要作用16,17,因此可能与 MPP 患者出现的胃肠道并发症相关。据此,本研究旨在探讨 miR-93-5p 在合并消化系统损伤的儿童 MPP 患者中的作用。
方案
本研究经扬州大学附属医院伦理委员会审查批准(批准号:2023-YKL01-(16);2023年1月17日)。采集每位参与者的外周静脉血样本用于相关实验室检测。在参与前,已获得所有参与者法定监护人的知情同意。本方案中使用的试剂、仪器和工具详见材料表。
1. 临床样本采集
2023年2月至2024年12月期间,在扬州大学附属医院共招募了108名2至14岁的儿童。所有108名儿童均被诊断为肺炎支原体肺炎(MPP),诊断依据为胸部影像学检查及鼻咽样本中肺炎支原体(MP)DNA的聚合酶链式反应(PCR)检测结果。采用针对MP特异性P1黏附素基因的实时荧光定量PCR法检测鼻咽拭子中的MP DNA。
根据疾病状态,将患者分为两组:无消化系统受累的MPP(n = 60)和伴有消化系统受累的MPP(n = 48)。消化系统受累(DSI)的定义为存在至少一种胃肠道症状,包括腹泻(每日≥3次稀便或水样便,持续时间>24小时)、恶心、呕吐,或持续性腹痛(无论是否伴有反跳痛),并同时具备至少一项异常实验室指标和/或腹部影像学确诊发现。异常实验室指标包括血清转氨酶、淀粉酶或脂肪酶升高,和/或肠道通透性标志物(如D-乳酸和内毒素)升高。腹部影像学确诊发现包括超声或计算机断层扫描(CT)检测到的肠壁增厚、肠系膜淋巴结肿大或腹腔积液。此外,纳入60名接受常规体检的健康儿童作为对照组。
- 纳入标准
出现胃肠道症状并伴有实验室或影像学异常的患者被归类为DSI组。 - 排除标准
排除标准包括病毒性或细菌性肺炎、结核病、研究用药物过敏史、免疫系统疾病、营养不良、肾功能不全、胃肠道畸形以及入院前曾接受过抗生素治疗。
2. 细胞培养与MPP模型
Mycoplasma pneumoniae 标准株ATCC 15531在PPLO肉汤中培养。人肺泡上皮A549细胞在含10%胎牛血清的RPMI-1640培养基中,于37 °C、5% CO₂的湿化条件下培养。
为建立肺炎支原体肺炎(MPP)的体外模型,将 A549 细胞以感染复数(MOI)为 1:100 的肺炎支原体(M. pneumoniae)悬液进行感染18。感染后,通过更换培养基去除未结合的细菌。通过定量 PCR(qPCR)检测感染后培养上清液中的肺炎支原体(MP)DNA,以确认感染效率。
3. 质粒构建与转染
miR-93-5p 模拟物、TLR4 过表达(oe-TLR4)质粒及其相应的阴性对照由商业途径合成。采用基于脂质的转染试剂对感染 MP 的 A549 细胞进行转染。转染后 48 小时,通过逆转录定量 PCR(RT-qPCR)检测转染效率。
4. RT-qPCR 分析
从实验结束时收获的A549细胞中提取总RNA。使用磷酸盐缓冲液(PBS)裂解并匀浆细胞。采用基于苯酚的RNA提取试剂纯化总RNA。miR-93-5p的反转录使用反转录试剂盒进行,而用于mRNA分析的cDNA则使用市售的反转录试剂合成。RT-qPCR分析采用SYBR Green荧光染料法进行。
5. MTT 比色法
收集各实验组转染的 A549 细胞,以每孔 2 × 10³ 个细胞的密度接种至 96 孔板中。随后,每孔加入 20 µL 甲基噻唑基四唑(MTT)试剂。在 37 °C 继续孵育 2 小时后,小心移除上清液。根据试剂盒说明书,将代谢活跃细胞生成的甲臜结晶溶解。使用酶标仪在 490 nm 处测定光密度(OD),间接定量细胞活力。
6. 酶联免疫吸附测定
采用商用酶联免疫吸附测定(ELISA)试剂盒检测白细胞介素-6(IL-6)和肿瘤坏死因子-α(TNF-α)的水平。实验操作严格按照制造商说明书进行。为确保结果的准确性和可重复性,每个样本在两次独立的实验重复中均设三个复孔进行检测。
7. 双荧光素酶报告基因检测
使用TargetScan数据库预测了miR-93-5p在TLR4的3′非翻译区(UTR)内的结合位点。将包含野生型(WT)或突变型(MUT)序列的片段克隆至萤光素酶报告载体中。采用基于脂质的转染试剂,将500 ng的WT或MUT载体与miR-93-5p模拟物或对照物共同转染至A549细胞中。转染48小时后,使用双萤光素酶报告基因检测系统测定萤光素酶活性。通过将萤火虫萤光素酶活性标准化为海肾萤光素酶活性,以校正转染效率。
8. 蛋白质印迹分析
进行蛋白质印迹时,将细胞裂解液与上样缓冲液混合,于10,000 × g 离心3分钟。上清液经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳分离后,蛋白质被转印至聚偏二氟乙烯膜上。膜在室温下用含5%牛血清白蛋白(BSA)的溶液封闭1小时,随后在含0.1%吐温20和5% BSA的Tris缓冲盐溶液中,于4 °C与一抗孵育过夜,一抗为抗甘油醛-3-磷酸脱氢酶(GAPDH)和抗IκBα抗体,稀释比例为1:1000。经三次洗涤后,膜在室温下与辣根过氧化物酶标记的山羊抗兔IgG(1:500)孵育1小时。再次洗涤后,使用增强型化学发光底物显色,并通过化学发光成像系统采集图像。使用图像分析软件对三次独立实验中目标蛋白与GAPDH的条带强度进行定量分析。
9. 统计分析
采用统计分析软件进行统计分析。使用Shapiro-Wilk检验评估测量数据的正态性。符合正态分布的数据以均值±标准差表示,两组间比较采用独立样本t检验,多组间比较采用单因素方差分析(ANOVA)。当ANOVA显示总体差异显著时,采用Tukey事后检验进行两两比较。非正态分布的数据采用Mann-Whitney U检验进行分析。分类变量以频数和百分比表示,组间比较采用卡方检验。采用受试者工作特征(ROC)曲线分析评估miR-93-5p在预测MPP或伴发DSI的MPP中的诊断价值。为识别与伴发DSI的MPP相关的预测因素,进行多变量logistic回归分析。纳入模型的变量包括年龄、性别、发热持续时间、抗生素使用时间以及以中位数为截断值的miR-93-5p表达水平。双侧P值<0.05被认为具有统计学显著性。
结果
miR-93-5p 在儿童 MPP 中表达降低
为探讨 miR-93-5p 作为儿童 MPP 生物标志物的潜力,对其诊断效能进行了评估。如图 1A所示,与健康对照组相比,患 MPP 的儿童患者中 miR-93-5p 的表达显著降低。两组人群的人口统计学及血液学特征总结于表 1。组间在年龄或性别分布上未观察到统计学显著差异(P > 0.05)。然而,MPP 组的外周血白细胞计数(WBC)、中性粒细胞百分比(Net%)以及 C 反应蛋白(CRP)水平均显著高于健康对照组(P < 0.001)。
采用受试者工作特征(ROC)曲线分析进一步评估miR-93-5p在区分肺炎支原体肺炎(MPP)患儿与健康儿童中的诊断效能(图1B)。曲线下面积(AUC)为0.9009 [95%可信区间(CI):0.8537–0.9482],敏感度为80.56%,特异度为88.33%。这些结果表明,血清miR-93-5p水平降低与小儿MPP相关。
miR-93-5p 对 MPP 细胞模型的影响
为评估 miR-93-5p 在 MPP 细胞模型中的作用,开展了一系列体外实验。与对照组细胞相比,MPP 细胞模型中 miR-93-5p 的表达下调(图 2A)。MP 感染也导致 A549 细胞活力下降(图 2B)。此外,与对照组相比,MPP 模型中促炎性细胞因子 IL-6 和 TNF-α 的水平升高(图 2C)。
为了进一步评估 miR-93-5p 的功能效应,在肺炎支原体(MP)感染的 A549 细胞中建立了 miR-93-5p 过表达模型(图 2D)。与未过表达 miR-93-5p 的 MPP 模型相比,miR-93-5p 过表达显著提高了细胞活力(图 2E)。与上述结果一致,miR-93-5p 表达水平升高伴随着 IL-6 和 TNF-α 的生成减少(图 2F)。这些结果表明,在 MP 感染过程中,miR-93-5p 表达降低与细胞活力下降和炎症反应增强相关,而 miR-93-5p 过表达则可减轻这些变化。
miR-93-5p 靶向 TLR4
为了阐明 miR-93-5p 与 TLR4 之间的调控关系,生物信息学分析发现 miR-93-5p 在 TLR4 mRNA 的 3′ 非翻译区(UTR)内存在一个预测的结合位点(图 3A)。与对照组相比,MP 细胞模型中 TLR4 的表达水平升高(图 3B)。随后通过荧光素酶报告基因实验验证了该预测的相互作用。共转染 miR-93-5p 模拟物可降低野生型载体的荧光素酶活性,表明其特异性结合于预测位点(图 3C)。
与未进行mimic处理的感染对照组相比,MP感染细胞中miR-93-5p过表达导致TLR4表达水平降低(图3D)。为进一步研究与TLR4调控相关的下游效应,建立了TLR4过表达的A549细胞模型(图3E)。Western blot分析显示,TLR4过表达后IκBα水平升高(图3F)。
与对照细胞相比,TLR4过表达在肺炎支原体(MP)感染后显著降低了细胞活力,而同时过表达miR-93-5p则逆转了这一下降趋势(图3G)。炎症因子的检测进一步显示,TLR4过表达会提高促炎介质水平,而miR-93-5p过表达即使在TLR4过表达存在的情况下,也能减弱这些变化(图3H)。这些结果表明,miR-93-5p可负向调控TLR4的表达,并减轻与MP感染相关的细胞改变。
miR-93-5p 在 MPP 及伴消化系统损伤的 MPP 中的诊断价值
既往报道已描述了 TLR4 在肺组织和结肠组织中的参与作用16。因此,本研究在临床上评估了 miR-93-5p 与 MPP 中消化系统损伤之间的潜在关联。如图 4A所示,MPP+DSI 组中 miR-93-5p 的表达水平较单纯 MPP 组降低。
人口统计学和血液学特征总结见表2。各组之间在年龄或性别方面未观察到显著差异。然而,合并DSI患者的发热持续时间和抗生素使用时间显著更长(P < 0.05)。
采用ROC曲线分析评估了miR-93-5p在区分伴有DSI与不伴有DSI的MPP病例中的诊断价值。AUC为0.7866(95% CI:0.6889–0.8843)(图4B),敏感性为85.71%,特异性为57.45%。
多变量logistic回归分析确定了MP感染期间与消化系统损伤相关的因素,包括miR-93-5p低表达、发热持续时间延长以及抗生素使用时间延长(表3;P < 0.05)。
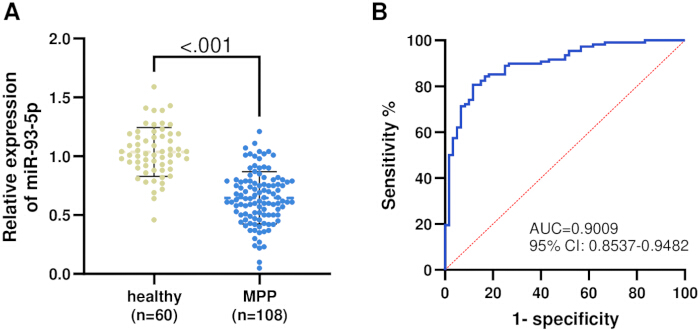
图1:健康对照组(n = 60)与MPP患者(n = 108)中miR-93-5p的表达水平及诊断价值。(A) MPP患者的miR-93-5p表达水平降低。(B) miR-93-5p的ROC曲线分析。 请点击此处查看此图的放大版本。
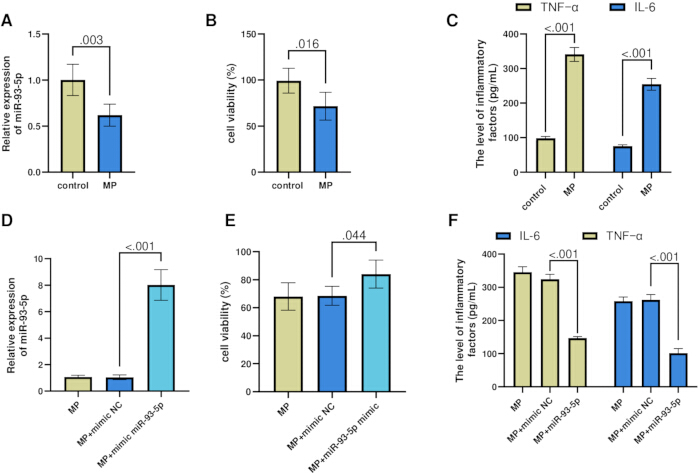
图 2:miR-93-5p 在 MP 感染细胞模型中的功能效应。(A) miR-93-5p 的表达在 MP 感染模型中降低。(B) MP 感染模型中细胞活力下降。(C) MP 感染模型中 TNF-α 和 IL-6 水平升高。(D) miR-93-5p 模拟物的转染效率。(E) 过表达 miR-93-5p 后细胞活力升高。(F) 过表达 miR-93-5p 后 TNF-α 和 IL-6 水平降低。n = 3。P < 0.05,P < 0.01,P < 0.001。请点击此处查看该图的放大版本。
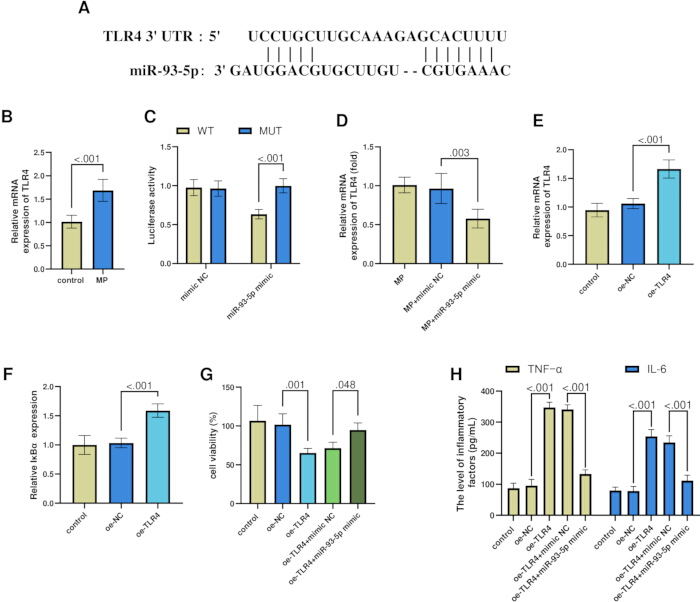
图3:miR-93-5p 直接靶向 TLR4。(A) miR-93-5p 与 TLR4 之间的预测结合位点。 (B) MP 感染模型中 TLR4 的表达水平。 (C) 双荧光素酶报告基因检测。 (D) miR-93-5p 对 TLR4 的负向调控作用。 (E) TLR4 过表达效率验证。 (F) IκBα 的蛋白质印迹分析。 (G) 细胞活力检测。 (H) TNF-α 和 IL-6 水平。n = 3。P < 0.05,P < 0.01,P < 0.001。请点击此处查看该图的放大版本。
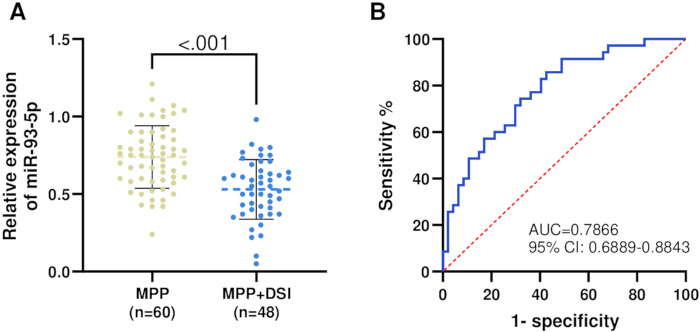
图 4:MPP 患者(n = 60)及合并 DSI 的 MPP 患者(n = 48)中 miR-93-5p 的表达水平及其诊断价值。(A) MPP 合并 DSI 组中 miR-93-5p 的表达水平。 (B) miR-93-5p 的 ROC 曲线分析。 请点击此处查看该图的高清版本。
| 变量 | 健康组 (n = 60) | MPP组 (n = 108) | P |
| 年龄(岁) | 6.81± 3.14 | 7.12 ± 3.55 | 0.559 |
| 性别(男/女) | 28/32 | 49/59 | 0.872 |
| 白细胞计数 ( × 109/L) | 7.27 ± 0.89 | 9.86 ± 1.36 | <0.001 |
| C反应蛋白 (mg/L) | 2.35 ± 0.17 | 11.53 ± 2.01 | <0.001 |
| 中性粒细胞百分比 (%) | 42.55 ± 5.62 | 56.51 ± 15.40 | <0.001 |
表1:健康对照组与MPP患者的人口统计学特征及常规血液参数比较。 本表总结了健康对照组与MPP患者的人口统计学特征及常规血液学参数,包括年龄、性别、白细胞计数(WBC)、中性粒细胞百分比、嗜酸性粒细胞百分比、嗜碱性粒细胞百分比和C反应蛋白(CRP)。组间比较结果及相应的P值一并列出。
| 变量 | MPP (n = 60) | MPP+DSI (n = 48) | P |
| 年龄(年) | 6.88 ± 3.87 | 7.42 ± 3.11 | 0.441 |
| 性别(男/女) | 31/29 | 28/20 | 0.494 |
| 白细胞计数(× 10⁹/L) | 8.9 ± 0.89 | 11.05 ± 0.76 | <0.001 |
| C反应蛋白(mg/L) | 10.94 ± 1.62 | 12.27 ± 2.22 | <0.001 |
| 中性粒细胞百分比(%) | 55.87 ± 14.75 | 57.32 ± 16.29 | 0.629 |
| 发热持续时间(天) | 4.60 ± 1.83 | 7.26 ± 1.04 | <0.001 |
| 抗生素使用时间(天) | 4.65 ± 1.147 | 6.29 ± 0.771 | <0.001 |
表2:MPP患者与MPP合并DSI患者的人口学特征及常规血液参数比较。 本表比较了单纯MPP患者与MPP合并DSI患者之间的人口学特征、常规血液学参数及相关临床特征。组间比较结果及相应的P值均已列出。
| 变量 | OR | 95% CI | P 值 | |
| 下限 | 上限 | |||
| miR-93-5p(低 vs 高) | 6.702 | 1.487 | 30.211 | 0.013 |
| 年龄 | 1.126 | 0.286 | 4.437 | 0.866 |
| 性别 | 1.071 | 0.27 | 4.248 | 0.923 |
| 发热持续时间 | 73.416 | 15.018 | 358.895 | <0.001 |
| 抗生素使用时间 | 7.921 | 1.877 | 33.421 | 0.005 |
表3:肺炎支原体感染合并消化系统损伤患儿的逻辑回归分析。 本表展示了对肺炎支原体感染患儿中与消化系统损伤相关的因素进行逻辑回归分析的结果。分析内容包括每个变量的比值比(OR)、95% 置信区间(CI)和P值。
缩写:Baso%,嗜碱性粒细胞百分比;CI,置信区间;CRP,C反应蛋白;DSI,消化系统损伤;Eos%,嗜酸性粒细胞百分比;IκBα,核因子κB抑制蛋白α;IL-6,白细胞介素-6;MP,肺炎支原体;MPP,肺炎支原体肺炎;NC,阴性对照;Net%,中性粒细胞百分比;oe-TLR4,TLR4过表达;OR,比值比;ROC,受试者工作特征;TLR4,Toll样受体4;TNF-α,肿瘤坏死因子α;WBC,白细胞计数。
数据可用性:
图和表所依据的原始数值数据作为补充表1提供。
补充表 1:图和表的原始数值数据。 请点击此处下载此文件。
讨论
尽管肺炎支原体(MP)主要被视为一种肺部病原体,但其感染可引起多种肺外并发症,累及肺部以外的多个器官系统19,20。新近证据表明,肺-肠轴之间存在相互作用,即肺部病变期间释放的炎性介质会破坏肠道菌群平衡21和肠道功能22。这种双向相互作用凸显了全面评估患者的重要性,需同时关注呼吸系统症状与胃肠道健康。因此,循环血清生物标志物因其具有潜在的诊断或预后价值,且为微创性检测手段,正受到越来越多的关注23,24。微小RNA(miRNA)因其稳定性及其在调控MP致病过程中炎症相关信号通路中的作用,已成为极具前景的候选标志物25,26,27。本研究系统探讨了miR-93-5p在儿童肺炎支原体肺炎(MPP)中的作用及其临床意义,尤其在其合并消化系统损伤时的情况。结果显示,与健康对照儿童相比,MPP患儿体内miR-93-5p水平降低,而在合并消化系统损伤的患儿中进一步下降。这些发现提示,miR-93-5p的表达失调可能参与肺部病理过程,并可能作为肺外表现的潜在生物标志物。
miRNA 在重症肺炎的诊断中已显示出良好的诊断价值,具有较高的敏感性、特异性和总体诊断准确性28,29。临床上,合并消化系统受累(DSI)的难治性肺炎支原体肺炎(MPP)患儿相较于无消化系统并发症的患儿,发热持续时间更长,抗生素治疗周期也更长。在多变量逻辑回归分析中,血清 miR-93-5p 水平降低与消化系统受累独立相关,且与上述临床参数一致。此外,ROC 曲线分析显示,血清 miR-93-5p 对区分合并与不合并 DSI 的 MPP 患儿具有良好的诊断效能。因此,检测 miR-93-5p 水平可能有助于儿童肺炎支原体感染的早期识别和风险分层。
关于循环miR-93-5p在诊断性能方面与常规临床炎症标志物的比较,研究结果表明,miR-93-5p可能具有补充价值,而非取代传统指标。C反应蛋白(CRP)和降钙素原(PCT)在临床实践中仍被广泛用作评估感染严重程度和指导抗生素治疗的生物标志物,荟萃分析显示,在细菌性肺炎中,PCT的诊断准确性略优于CRP30。然而,这些急性期反应物的特异性普遍较低,因其可对多种炎症刺激产生反应,难以可靠地区分肺炎支原体(MP)感染与其他呼吸道病原体,也无法特异性地反映肺外并发症的风险。相比之下,miR-93-5p作为一种与Toll样受体4(TLR4)/核因子κB(NF-κB)信号通路相关的调控分子,可能提供有别于传统标志物的病理生理学信息。已有报道显示,miR-93-5p与CRP之间的相关性较弱(Pearson r = 0.2698),提示miR-93-5p可能反映的是不同于全身性急性期反应的炎症反应层面。
来自动物模型的新证据表明,Mycoplasma pneumoniae 感染不仅可引起呼吸系统病理改变,还可通过肠道菌群介导的肺-肠轴导致消化系统损伤31。在肺炎支原体(MP)感染的小鼠中,已观察到肺和结肠均出现病理损伤,同时伴有肠道菌群组成的变化,包括有益菌如Corynebacterium glutamicum的丰度降低,以及潜在致病菌如Lachnospiraceae NK4A136 group和Escherichia-Shigella的丰度升高,并伴随结肠内容物和血液中脂多糖(LPS)水平的升高32。据报道,黄芩苷可通过TLR4/NF-κB通路改善MPP小鼠的肺部炎症并调节肠道菌群,支持该信号通路参与肺-肠相互作用33。这些发现与本研究中探讨的miR-93-5p/TLR4轴可能涉及NF-κB信号通路的作用相一致。
在机制层面,TLR4 是与促炎反应相关的先天免疫关键介质34,35,36,37,在 MP 感染过程中表达上调。TLR4 表达升高伴随炎性细胞因子 IL-6 和 TNF-α 水平增加,以及上皮细胞活力下降。miR-93-5p 的过表达可抑制 TLR4 表达,减轻炎性细胞因子释放,并在感染条件下改善细胞存活。因此,MPP 患者(尤其是伴有消化系统损伤者)中 miR-93-5p 的下调可能与 TLR4 介导的炎性信号增强及更广泛的全身性炎症反应相关。本研究结果并未证实下游 NF-κB 通路的激活,因为未检测磷酸化的 IκBα 和 p65。
本研究存在若干局限性,需予以说明。首先,本研究为单中心研究,样本量相对较小,尤其是 DSI 亚组,这可能限制统计效能和结果的普适性。需要在更大规模、多中心的队列中进行外部验证,以确认这些发现并建立可靠的临床截断值。第二,尽管通过 Western blot 检测了 IκBα,但未对 TLR4/NF-κB 通路的其他下游组分(包括 MyD88、p-IκBα 和 p65)进行系统性验证。对这些信号分子进行蛋白水平的验证将增强机制解释的可信度。第三,由于研究设计为观察性研究,无法得出因果推论;尚需开展功能缺失和功能获得实验,例如在体外或体内使用 miRNA 模拟物或抑制剂,以确定 miR-93-5p 是否直接参与支原体肺炎相关消化系统损伤的发生。第四,体外实验是在 A549 肺上皮细胞中进行的。尽管该模型适用于评估 miR-93-5p 在肺部环境中的抗炎作用,但无法直接模拟胃肠道病理变化。肺部 miR-93-5p/TLR4 信号通路与消化系统表现之间的潜在关联——可能通过肺-肠轴介导——需在肠道上皮细胞模型(如 Caco-2 细胞)以及肺炎支原体感染的体内动物模型中进行直接验证。最后,miRNA 检测相关的技术挑战,包括 RNA 稳定性和标准化策略等问题,仍是其在临床常规应用中的障碍。尽管存在上述局限性,本研究结果仍为后续机制研究和大规模验证工作提供了基础。
综上所述,miR-93-5p 的上调通过抑制 TLR4 减轻了肺上皮细胞中由 MP 诱导的炎症反应。在临床方面,循环中 miR-93-5p 水平降低与儿童 MPP 患者消化系统损伤相关,提示其可能作为辅助生物标志物,用于识别存在胃肠道并发症风险的患者。
披露
作者声明无利益冲突。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| A549 人肺泡上皮细胞 | ATCC, USA | Cat# CCL-185; RRID: CVCL_0023 | 用于体外 MPP 模型的人肺泡上皮细胞系 |
| 抗 GAPDH 抗体 | 杭州先志生物科技有限公司,中国 | Cat# AB-P-R001; RRID: AB_3096355 | 作为 Western 印迹实验中上样对照的 GAPDH 一抗 |
| 抗 IκBα 抗体 | Beyotime,中国 | Cat# AG2741; RRID: AB_3731391 | 用于 Western 印迹检测 IκBα 的一抗 |
| 牛血清白蛋白(BSA) | Solarbio,中国 | Cat# A8012 | Western 印迹实验中使用的封闭试剂 |
| 离心机 | Thermo Fisher Scientific, USA | Multifuge X4 Pro; Cat# 75016066; RRID: SCR_020726 | 细胞培养和样品制备过程中使用的离心机 |
| 化学发光成像系统 | Tanon,中国 | 5200Multi; RRID: SCR_027114 | 用于可视化化学发光 Western 印迹信号的成像系统 |
| 双荧光素酶报告基因检测系统 | Promega, USA | Cat# E1910 | 用于检测萤火虫和海肾荧光素酶活性 |
| 胎牛血清(FBS) | Gibco, USA | Cat# A5256701 | 细胞培养基中的血清补充物 |
| 辣根过氧化物酶标记山羊抗兔 IgG | Cell Signaling Technology, USA | Cat# 7074; RRID: AB_2099233 | 用于 Western 印迹实验的 HRP 标记二抗 |
| GraphPad Prism | GraphPad Software | Version 10.1.2; URL: https://www.graphpad.com | 用于统计分析和图形展示的软件 |
| 白细胞介素-6(IL-6)ELISA 试剂盒 | Elabscience,中国 | Cat# E-EL-H6156; RRID: AB_3665145 | 用于定量检测 IL-6 的 ELISA 试剂盒 |
| Lipofectamine 3000 转染试剂 | Thermo Fisher Scientific | Cat# L3000015 | 用于 A549 细胞转染的脂质体试剂 |
| 酶标仪 | Tecan, 瑞士 | Infinite M Plex; RRID: SCR_026522 | 用于在 490 nm 处测定吸光度的酶标仪 |
| miR-93-5p 模拟物 | Ribobio,中国 | Cat# miR10000093-1-5 | 用于过表达 miR-93-5p 的合成模拟物 |
| miR-93-5p 阴性对照 | Ribobio,中国 | Cat# miR1N0000001-1-5 | miR-93-5p 模拟物转染的阴性对照 |
| MTT 细胞增殖与细胞毒性检测试剂盒 | Beyotime,中国 | Cat# C0009S | 用于评估细胞活力 |
| 肺炎支原体标准菌株 ATCC 15531 | ATCC, USA | Cat# 15531 | 用于建立感染模型的标准 M. pneumoniae 菌株 |
| pGL3-Basic 荧光素酶报告载体 | Promega, USA | Cat# E1751 | 用于双荧光素酶报告基因检测的报告载体 |
| 磷酸盐缓冲液(PBS) | Solarbio,中国 | Cat# IP9212 | 用于细胞洗涤和样品制备的缓冲液 |
| Pierce ECL Western 底物 | Thermo Scientific, USA | Cat# 32209 | 用于 Western 印迹检测的化学发光底物 |
| 类胸膜肺炎样生物(PPLO)培养基 | BD, USA | Cat# 255420 | 用于 M. pneumoniae 培养的培养基 |
| 聚偏二氟乙烯(PVDF)膜 | Bio-Rad | Cat# 1620177 | 用于 Western 印迹实验中蛋白转膜的膜 |
| PrimeScript RT Master Mix(Perfect Real Time) | Takara Bio Inc., 日本 | Cat# RR036A | 用于 cDNA 合成的反转录预混液 |
| PrimeScript RT 试剂盒 | Takara Bio Inc., 日本 | Cat# RR037A | 用于反转录的试剂盒 |
| 实时 PCR 系统 | Applied Biosystems, USA | QuantStudio 3 Real-Time PCR System; RRID: SCR_020238 | 用于 qPCR 分析的实时 PCR 仪器 |
| RPMI-1640 培养基 | Gibco, USA | Cat# 11875135 | 用于 A549 细胞的细胞培养基 |
| SPSS | IBM | Version 27.0; RRID: SCR_016479 | 用于统计分析的软件 |
| TLR4 过表达阴性对照 | Ribobio,中国 | NA | TLR4 过表达实验的阴性对照 |
| TLR4 过表达质粒(oe-TLR4) | Ribobio,中国 | NA | 用于 TLR4 过表达的质粒 |
| TRIzol 试剂 | Invitrogen, Thermo Fisher Scientific | Cat# 15596026 | 用于总 RNA 提取的试剂 |
| 肿瘤坏死因子-α(TNF-α)ELISA 试剂盒 | Elabscience,中国 | Cat# E-EL-H0109; RRID: AB_3665144 | 用于定量检测 TNF-α 的 ELISA 试剂盒 |
| 通用 SYBR qPCR 预混液 | Takara Bio Inc., 日本 | Cat# BL697A | 用于定量 PCR 的预混液 |
| Western 印迹凝胶电泳系统 | Bio-Rad, USA | Mini-PROTEAN Tetra Cell; Cat# 1658004 | 用于蛋白质分离的电泳系统 |
参考文献
- Yan C et al. Current status of Mycoplasma pneumoniae. infection in China. World Journal of Pediatrics. 2024;20(1):1-4.
- Poddighe D. Extra-pulmonary diseases related to Mycoplasma pneumoniae. in children: recent insights into the pathogenesis. Current Opinion in Rheumatology. 2018;30(4). doi:10.1097/BOR.0000000000000494.
- Schildgen O et al. Clinical manifestations in infants and children with Mycoplasma pneumoniae. infection. PLOS ONE. 2018;13(4). doi:10.1371/journal.pone.0195288.
- Li X et al. Intestinal necrosis due to nonocclusive mesenteric ischemia in a child with Mycoplasma pneumoniae. pneumonia: a case report. BMC Infectious Diseases. 2025;25(1):1049.
- Ran B, Yang Z, Li M. METTL3-mediated miR-4534 maturation promotes IVDD progression by targeting the Sirt6-mediated Nrf2/HO-1 pathway. 2024;21(6):2795-2813.
- Du B et al. The lung-gut crosstalk in respiratory and inflammatory bowel disease. Frontiers in Cellular and Infection Microbiology. 2023;13. doi:10.3389/fcimb.2023.1218565.
- Jiang Y et al. Intestinal bacteria flora changes in patients with Mycoplasma pneumoniae pneumonia. with or without wheezing. Scientific Reports. 2022;12(1):5683.
- Lin L-J et al. The diagnostic value of serological studies in pediatric patients with acute Mycoplasma pneumoniae. infection. Journal of Microbiology, Immunology and Infection. 2020;53(2):351-356.
- Cui J et al. Integrated microfluidic cartridge for rapid and colorimetric detection of Mycoplasma pneumoniae. Microchimica Acta. 2025;192(9):559.
- Wang X, Starodubtseva MN, Kapron CM, et al. Cadmium, von Willebrand factor and vascular aging. NPJ Aging. 2023;9(1):11.
- Chen J. Efficacy of the PDCA cyclic care model in improving lung function and speed of recovery in children with Mycoplasma pneumonia. American Journal of Translational Research. 2025;17(3):1792-1802.
- Li Y et al. Clinical significance of serum miR-98-5p in children with Mycoplasma pneumoniae. infection complicated with digestive system damage. Immunobiology. 2025;230(4):153101.
- Zhang Y, Wu ZM. LINC02605 involved in paediatric pneumonia complicated with diarrhoea via miR-539-5p/CXCL1 axis. European Journal of Clinical Investigation. 2024;54(9). doi:10.1111/eci.14234.
- Gao H et al. Knockdown of lncRNA MEG3 protects against sepsis-induced acute lung injury in mice through miR-93-5p-dependent inhibition of NF-κB signaling pathway. Pathology - Research and Practice. 2022;239:154142.
- Gao H et al. MicroRNA-93 contributes to the suppression of lung inflammatory responses in LPS-induced acute lung injury in mice via the TLR4/MyD88/NF-κB signaling pathway. Int J Mol Med. 2020;46(2):561-570.
- Wedgwood S et al. Intestinal dysbiosis and the developing lung: the role of Toll-like receptor 4 in the gut-lung axis. Frontiers in Immunology. 2020;11. doi:10.3389/fimmu.2020.00357.
- Zou N et al. Transcutaneous auricular vagus nerve stimulation as a novel therapy connecting the central and peripheral systems: a review. Int J Surg. 2024;110(8):4993-5006.
- Chen Y et al. Combination of azithromycin and methylprednisolone alleviates Mycoplasma pneumoniae.-induced pneumonia by regulating miR-499a-5p/STAT3 axis. Exp Ther Med. 2022;24(3):578.
- Poddighe D. Mycoplasma pneumoniae.-related extra-pulmonary diseases and antimicrobial therapy. Journal of Microbiology, Immunology and Infection. 2020;53(1):188-189.
- Meyer Sauteur PM, Ramien ML, Theiler M. Mycoplasma pneumoniae.: extrapulmonary manifestations in children with focus on mucocutaneous disease. The Pediatric Infectious Disease Journal. 9900. doi:10.1097/INF.0000000000004946.
- Liu C et al. Mast cells participate in regulation of lung-gut axis during Staphylococcus aureus pneumonia. Cell Proliferation. 2019;52(2).
- Guo J et al. People are an organic unity: gut-lung axis and pneumonia. Heliyon. 2024;10(6).
- Fan F et al. Clinical characteristics and serum inflammatory markers of community-acquired mycoplasma pneumonia in children. The Clinical Respiratory Journal. 2023;17(7):607-617.
- Ding L, Jiang Y. Biomarkers associated with the diagnosis and prognosis of Mycoplasma pneumoniae. pneumonia in children: a review. Frontiers in Cellular and Infection Microbiology. 2025;15. doi:10.3389/fcimb.2025.1552144.
- Peng W et al. Comparative analysis of the efficacy and safety of different methods for injecting polidocanol in the treatment of venous malformations. Phlebology. 2024;39(9):629-635.
- Wang J et al. Peripheral blood microR-146a and microR-29c expression in children with Mycoplasma pneumoniae. pneumonia and its clinical value. Italian Journal of Pediatrics. 2023;49(1):119.
- Chu C et al. High expression of miR-222-3p in children with Mycoplasma pneumoniae. pneumonia. Italian Journal of Pediatrics. 2019;45(1):163.
- Powell BH, Witwer KW, Meffert MK. Cellular miRNAs and viruses: trends in miRNA sequestering and target de-repression. J Virol. 2025;99(7).
- Gan T, Yu J, He J. miRNA, lncRNA and circRNA: targeted molecules with therapeutic promises in Mycoplasma pneumoniae. infection. Arch Microbiol. 2023;205(8):293.
- Im PK et al. Hyperuricemia, gout and the associated comorbidities in China: findings from a prospective study of 0.5 million adults. The Lancet Regional Health – Western Pacific. 2025;58. doi:10.1016/j.lanwpc.2025.101572.
- Hu J et al. Insight into the pathogenic mechanism of Mycoplasma pneumoniae. Curr Microbiol. 2022;80(1):14.
- Li B et al. Cecropin AD ameliorates pneumonia and intestinal injury in mice with Mycoplasma pneumoniae. by mediating gut microbiota. BMC Vet Res. 2025;21(1):39.
- Song D et al. The mechanism of baicalin in improving pulmonary inflammatory response and injury and regulating intestinal flora in Mycoplasma pneumoniae pneumoni.a mice. Cellular Signalling. 2025;126:111530.
- Coutinho-Wolino KS et al. Bioactive compounds modulating Toll-like 4 receptor (TLR4)-mediated inflammation: pathways involved and future perspectives. Nutrition Research. 2022;107:96-116.
- Thorburn AN et al. TLR2, TLR4 and MyD88 mediate allergic airway disease (AAD) and Streptococcus pneumoniae-induced suppression of AAD. PLOS ONE. 2016;11(6).
- Tang J et al. Effect of gut microbiota on LPS-induced acute lung injury by regulating the TLR4/NF-kB signaling pathway. International Immunopharmacology. 2021;91:107272.
- Jia H et al. Pulmonary epithelial TLR4 activation leads to lung injury in neonatal necrotizing enterocolitis. The Journal of Immunology. 2016;197(3):859-871.