本方案描述了一种通过联合鼻内给予严重急性呼吸综合征冠状病毒2和脂多糖诱导的新型冠状病毒病2019相关肺损伤的小鼠模型。该模型可用于研究肺部炎症反应、I型干扰素反应受损情况以及潜在的治疗干预措施。
方法文章
由严重急性呼吸综合征冠状病毒2和脂多糖诱导的2019冠状病毒病相关肺损伤小鼠模型
45 次观看
⸱
2026年9月11日
* These authors contributed equally
本文内容
摘要
摘要
尽管疫苗接种和抗病毒治疗已广泛应用,SARS-CoV-2 感染仍在脆弱人群中导致显著的发病率和死亡率,凸显了建立可靠实验模型以研究 COVID-19 发病机制、阐明药物作用机制并评估潜在治疗策略的迫切需求。SARS-CoV-2 感染可引起严重的肺损伤,其特征为过度的炎症反应以及 I 型干扰素(IFN-I)介导的抗病毒免疫功能受损;然而,现有的动物模型在模拟与 COVID-19 相关的免疫-炎症反应失调方面仍存在局限性。为此,研究人员建立了 SARS-CoV-2 与脂多糖(LPS)联合诱导的小鼠模型,以模拟 COVID-19 相关肺损伤的关键免疫病理特征。该模型可诱导肺组织出现显著的病理改变,包括炎性细胞浸润、肺泡结构破坏以及促炎细胞因子表达升高,同时伴有 IFN-I 反应受损。本研究详细描述了建立 SARS-CoV-2 与 LPS 诱导小鼠肺损伤模型的操作流程,并通过肺组织的组织病理学改变、病毒载量、炎症细胞因子及 IFN-I 水平的系统分析对该模型进行了表征。该模型为研究 COVID-19 相关肺损伤的免疫-炎症机制以及肺组织修复过程提供了实验平台,同时也为评估旨在缓解免疫-炎症失调并促进肺功能恢复的治疗策略奠定了基础。
引言
自2019年底出现以来,SARS-CoV-2已引发全球公共卫生挑战,而病毒的持续进化不断对现有的疫苗和治疗策略构成挑战1,2,3。因此,进一步研究与COVID-19相关的肺损伤对于阐明疾病机制并推进治疗策略至关重要。
SARS-CoV-2 感染可导致严重的肺损伤,甚至可能进展为急性呼吸窘迫综合征(ARDS)和多器官功能障碍综合征4,5。越来越多的证据表明,与 COVID-19 相关的肺损伤发病机制极为复杂,其关键特征之一是免疫和炎症反应的失调6,7,8,9。一方面,SARS-CoV-2 感染可诱导过度的炎症反应,导致大量促炎性细胞因子(如白细胞介素-6(IL-6)、白细胞介素-1β(IL-1β)和肿瘤坏死因子-α(TNF-α))的释放,从而引发所谓的“细胞因子风暴”10,11,这被认为是肺损伤和疾病进展的主要驱动因素。另一方面,在感染早期,SARS-CoV-2 可通过多种机制抑制宿主的 I 型干扰素(IFN-I)反应,导致 IFN-I 介导的抗病毒免疫功能受损12,13,14。因此,干扰素反应延迟伴随促炎性细胞因子水平升高被认为是 COVID-19 的一个特征性表现6,15。
目前可用的 COVID-19 动物模型主要依赖于表达人 ACE2 的转基因小鼠、小鼠适应性病毒株,或其他物种如雪貂和非人灵长类动物16,17。然而,传统的小鼠 SARS-CoV-2 感染模型通常难以完全再现 COVID-19 的过度炎症特征18,19,20。脂多糖(LPS)是一种 TLR4 激动剂,可诱导强烈的炎症反应,广泛用于急性肺损伤模型21。因此,本研究中描述的 SARS-CoV-2 与 LPS 联合诱导模型旨在用于研究与 COVID-19 相关的肺损伤,特别是过度炎症激活和抗病毒免疫反应受损的机制。与仅使用 SARS-CoV-2 的模型相比,该方法在保留病毒感染背景的同时,更突出免疫-炎症特征。该模型在研究免疫-炎症机制方面具有重要潜力,但并不适用于模拟病毒传播或 SARS-CoV-2 感染的完整自然病程。
本方案概述了建立SARS-CoV-2与LPS诱导的小鼠模型以模拟与COVID-19相关的肺损伤的实验步骤。鉴于现有模型在再现与COVID-19相关的免疫-炎症失调方面存在局限性,该方法为研究疾病机制及评估潜在治疗策略提供了一个实用平台。该模型通过肺组织病理学、病毒载量、炎症性细胞因子及I型干扰素(IFN-I)反应进行了系统性评估。
方案
本研究通过鼻内滴注SARS-CoV-2和LPS建立了与COVID-19相关的肺损伤小鼠模型,为转基因小鼠模型提供了一种稳定且经济的替代方案。实验方案已获得四川省疾病预防控制中心批准,并通过动物伦理审查[四川CDC(动物伦理)批准号:005(2025)]。所有操作均严格遵循相关指南和生物安全法规进行。
主要试剂和设备的详细信息见材料表。
1. 研究方案设计
- 将 BALB/c 小鼠随机分为对照组和模型组。
- 在第 0 天,通过鼻内途径给予模型组小鼠 SARS-CoV-2。
- 在第 2 天,通过鼻内途径给予模型组小鼠 LPS。
- 在相应时间点,通过鼻内途径给予对照组小鼠等体积的生理盐水。
- 在感染 SARS-CoV-2 后第 3 天处死所有小鼠,并采集肺组织用于模型验证。
注:实验流程见图 1A。
2. 准备
- 动物准备
- 使用6–8月龄、体重约25–30 g的无特定病原体(SPF)雌性BALB/c小鼠。
- 采用随机数字表法将小鼠随机分为对照组和模型组,每组4只动物。
- 将小鼠饲养在标准实验室条件下,自由摄食和饮水。
注:既往研究表明,与年轻小鼠相比,老龄小鼠对鼻腔接种SARS-CoV-2更易感18,22。因此,本研究选用老龄BALB/c小鼠以利于建立SARS-CoV-2相关肺损伤模型。 - 每只小鼠经鼻腔接种100 µL病毒悬液,相当于每只小鼠最终感染剂量为4.5 x 10⁵ TCID₅₀。
注:SARS-CoV-2由四川省疾病预防控制中心提供。本研究所用毒株为SARS-CoV-2奥密克戎变异株,病毒储备液滴度为4.5 x 10⁶ TCID₅₀/mL。
注意:由于SARS-CoV-2属于高致病性微生物,所有与病毒相关的操作均须在动物生物安全三级(ABSL-3)实验室中进行。当使用不同病毒变异株或动物模型时,应根据预实验结果优化感染剂量。
- 工作液的配制
- 脂多糖(LPS)储备液的配制:称取3 mg LPS粉末,溶于1 mL生理盐水中,轻轻混匀或持续涡旋至完全溶解,得到浓度为3 mg/mL的储备液。给药前根据小鼠体重,用生理盐水进一步稀释至所需的工作浓度。
- 麻醉剂溶液的配制:使用Zoletil试剂盒中提供的注射用无菌水溶解粉末,配制成所需质量体积比的溶液,供后续使用。
- 病毒工作液的配制:使用前,在生物安全柜中将1 mL SARS-CoV-2病毒悬液置于冰上缓慢解冻。
注:配制和使用所有工作液时,应遵循各生产厂家的说明书。
3. 小鼠鼻内给药
- 给药前称量每只小鼠的体重并记录。
- 根据每只小鼠的体重计算 Zoletil 和 LPS 的给药剂量。
- 配制相应的使用液,并用合适的注射器吸取所需体积,以备后续给药。
- 小鼠固定:用左手拇指和食指轻轻抓住小鼠颈背部皮肤,固定耳后及颈部区域的皮肤。
- 将动物置于手掌中,用无名指和小指固定其背部和尾巴。使小鼠呈仰卧位,充分暴露腹部,并保持身体稳定。
- 消毒:使用无菌棉签蘸取75%乙醇对腹部注射部位进行消毒。
- 麻醉:将装有 Zoletil(25 mg/kg)的注射器针头插入下腹部中线旁约0.5 cm处。皮肤穿刺后,以45°角将针头推进腹腔,深度约为2–3 mm。回抽确认无血液后,缓慢注入麻醉剂。
注意:应根据预实验优化麻醉剂量,以确保充分麻醉并尽量减少死亡率。避免重复穿刺,以减少组织损伤。 - 麻醉状态确认:通过观察呼吸是否稳定且规律,有无呼吸困难或呼吸窘迫迹象,确认小鼠已进入麻醉状态。
- 鼻内接种 SARS-CoV-2(第0天):在呼吸平稳且处于吸气初期时,使用微量移液器或注射器将100 µL SARS-CoV-2病毒悬液(每侧鼻孔50 µL)缓慢、逐滴地滴加至外鼻孔。
- 交替滴入两侧鼻孔,以促进均匀吸入。对照组小鼠采用相同方法给予等体积的生理盐水。
注意:应逐滴给予溶液,确保每滴被吸入鼻腔后再滴入下一滴,直至达到目标体积。 - 给药后处理:鼻内接种后,将小鼠头部保持轻微抬高约30–60秒,以促进溶液进入下呼吸道。当观察到小鼠出现苏醒迹象后,将其放回笼中,并持续监测直至完全恢复意识。
- 记录与监测:记录每只小鼠的给药体积和编号。在整个实验期间持续监测动物的存活状态和一般生理状况。
- 鼻内接种 LPS(第2天):在 SARS-CoV-2 感染后的第2天对小鼠进行 LPS 鼻内给药。按照与 SARS-CoV-2 相同的操作流程,给予 LPS(5 mg/kg)。对照组小鼠采用相同方法给予等体积的生理盐水。
注意:此步骤中,LPS 和生理盐水的给药均参照 SARS-CoV-2 接种流程,包括麻醉和鼻内递送。
4. 小鼠解剖与肺组织采集
- 在感染 SARS-CoV-2 后第 3 天对小鼠实施安乐死以采集组织。先对动物进行麻醉,然后通过颈椎脱位法处死。对照组小鼠采用相同操作流程处理。
注意:有关颈椎脱位操作的详细步骤,请参见 补充文件 1。 - 将已处死的小鼠仰卧固定于解剖板上,充分暴露腹部和胸部区域。用 75% 乙醇润湿腹部毛发,以减少污染。
- 使用无菌剪刀沿两侧肋缘小心剪开胸骨,逐步打开胸腔。用镊子轻轻牵拉组织,逐步将肺组织从周围胸腔结构中分离,尽量减少对肺组织的机械性损伤。
注意:剪切过程中应仔细控制剪刀尖端方向,避免损伤心脏、肺脏及主要血管结构。 - 立即将切除的肺组织置于预冷的 PBS 或生理盐水中,并轻轻冲洗 2–3 次,以去除残留血液和碎片。使用无绒滤纸小心吸去表面多余液体,避免按压,以防组织结构受损。
- 使用电子天平迅速称量处理后的肺组织,并记录测量结果。
- 切除右侧尾叶,并立即用 10 倍于组织体积的 4% 多聚甲醛固定,用于后续组织病理学分析。
警示:多聚甲醛具有毒性,操作时须遵循机构安全指南。 - 收集剩余肺组织,分装至冻存管中,迅速在液氮中冷冻后,于 −80 °C 保存。将右侧尖叶、右侧中叶和副叶用于 SARS-CoV-2 病毒载量及促炎性细胞因子检测,左侧肺组织保留用于 ELISA 分析。
警示:液氮温度极低,操作时应佩戴适当的低温手套和护目镜,防止冻伤或冷灼伤。 - 解剖完成后,按照标准程序彻底清洁并灭菌所有器械。动物尸体和生物废弃物应依照机构及监管机构关于动物实验的规定进行处置。
5. 苏木精-伊红(HE)染色23
- 将新鲜肺组织在室温下用4%多聚甲醛固定24小时。
注意:严格控制固定时间。避免固定不足,以免导致组织保存不完全;同时避免固定时间过长,以免引起蛋白质过度交联而影响染色质量。 - 使用自动组织处理机对固定后的组织进行梯度脱水、透明和石蜡浸润处理。
注意:自动组织处理机的操作程序详见补充文件2。 - 将石蜡浸润后的组织放入包埋模具中,加入熔融石蜡,并仔细调整组织方向。
- 将模具置于冷台上使其凝固。待完全硬化后,从模具中取出石蜡包埋块。
- 将石蜡块安装到切片机上,调整切面与刀片平行,连续切片,厚度约为3–5 µm。
- 立即将切片转移至约45 °C的水浴中展片,使其充分展开。
- 用载玻片垂直浸入水中的一端捞取切片,并使用镊子辅助使切片完全贴附于载玻片表面。
- 将载玻片置于65 °C的烤片机中约1小时,以增强组织附着性。
注意:根据组织类型、切片厚度及设备条件调整烘烤时间。避免过热,以防组织受损。 - 使用自动染色机对干燥后的切片进行苏木精-伊红(HE)染色。
注意:自动染色机的操作程序详见补充文件3。 - 取出染色后的切片,自然晾干。滴加一滴中性树胶,盖上盖玻片。待封片剂完全凝固后,在光学显微镜下观察切片。
6. 肺组织中SARS-CoV-2病毒载量和促炎性细胞因子的表达
- 肺组织匀浆
- 通过在无RNase的匀浆管中加入4–5颗不锈钢珠(直径3 mm)和900 µL预冷的裂解缓冲液,制备匀浆介质。
注意:根据组织重量调整裂解缓冲液的体积,通常比例约为每1 g组织使用9 mL。 - 称取约50 mg肺组织,精细剪碎后转移至匀浆管中。
- 使用组织研磨器进行匀浆(60 Hz,60 s,进行2–3个循环,循环间间隔10 s)。
注意:根据仪器型号和组织类型优化匀浆参数。 - 匀浆后检查样品,确保组织完全破碎。若仍可见组织碎片,需重复匀浆过程,直至获得均匀的裂解液。
- 通过在无RNase的匀浆管中加入4–5颗不锈钢珠(直径3 mm)和900 µL预冷的裂解缓冲液,制备匀浆介质。
- 基于离心柱法从肺组织中提取总RNA
注意:按照试剂盒说明书使用离心柱纯化法提取肺组织中的总RNA。在适用情况下,根据相应产品的操作手册执行其他RNA提取方法。- 将匀浆液转移至新的2 mL无RNase的微量离心管中。加入100 µL gDNA消除液,盖紧管盖,剧烈振荡15–20 s。
- 短暂打开管盖,加入180 µL氯仿,充分涡旋振荡15 s。
注意:氯仿具有挥发性和毒性,应在通风良好的区域或化学通风橱中操作,并佩戴适当的个人防护装备,避免吸入和皮肤接触。 - 室温孵育2 min,随后在4 °C条件下以12,000 x g离心15 min。
- 小心转移上层水相至新管中,加入等体积的70%乙醇,通过涡旋充分混匀。
注意:收集水相时避免扰动中间相和有机相,以确保RNA纯度。加入70%乙醇后无需离心,直接进行下一步。 - 将混合液转移至离心柱中,在8,000 x g下离心15 s,弃去穿流液。
- 向离心柱中加入700 µL洗涤缓冲液,在8,000 x g下离心15 s,弃去穿流液。
- 向离心柱中加入500 µL洗涤缓冲液,在8,000 x g下离心15 s。重复此洗涤步骤一次。
- 将离心柱转移至新的收集管中,在12,000 x g下离心1 min,以去除残留的洗涤缓冲液。
- 将离心柱放入新的1.5 mL无RNase的微量离心管中,直接向膜中央加入30 µL无RNase水,在8,000 x g下离心1 min以洗脱RNA。
注意:根据下游应用调整无RNase水的体积(30–50 µL之间)。当需要较高RNA浓度时,使用较低的洗脱体积。
- 通过逆转录数字PCR(RT-dPCR)检测SARS-CoV-2病毒载量
注意:采用一步法RT-dPCR检测对SARS-CoV-2 RNA进行绝对定量。使用靶向核衣壳(N)基因的特异性引物-探针组合测定病毒RNA拷贝数。- 将RNA样本和试剂在冰上解冻。
- 根据试剂盒说明书配制RT-dPCR反应体系。
- 将20 µL RT-dPCR反应体系与20 µL RNA模板混合,短暂涡旋,短时离心后置于冰上保存。
- 将40 µL反应体系加载至数字PCR芯片孔中,并根据仪器操作规程密封芯片。
- 采用以下热循环条件进行扩增:50 °C孵育40 min(1个循环),95 °C预变性2 min(1个循环),随后进行40个循环的95 °C变性15 s和57 °C退火延伸60 s。设置检测通道为GREEN(250 ms)和RED(150 ms)。
- 通过逆转录定量PCR(RT-qPCR)检测炎症细胞因子表达
- 使用紫外分光光度计测定RNA浓度和纯度。
- 每反应使用1,000 ng总RNA,按照试剂盒说明书进行逆转录反应,合成互补DNA(cDNA)。
- 以每反应100 ng cDNA为模板,使用SYBR Green PCR主混合液和基因特异性引物进行RT-qPCR。采用以下循环条件:95 °C预变性2 min,随后进行40个循环的95 °C变性5 s和60 °C退火延伸10 s。引物序列见表1。
注意:根据所用的具体试剂和仪器优化反应条件,并遵循相应制造商的操作说明。 - 以GAPDH作为内参基因,采用2−ΔΔCt法计算相对基因表达水平。
7. 采用酶联免疫吸附测定法(ELISA)检测肺组织中的促炎性细胞因子24
注意:使用 ELISA 试剂盒时,应遵循不同制造商提供的特定操作规程。若使用其他供应商的试剂盒,必须严格遵守相应制造商的说明书。
- 按照上述方法匀浆肺组织。使用 PBS 或 ELISA 专用组织裂解缓冲液作为匀浆介质。
- 将匀浆后的样品离心(例如,12,000 × g,4 °C,10 分钟),收集上清液用于后续分析。
- 使用前将 ELISA 试剂盒平衡至室温 30 分钟。从铝箔袋中取出所需的微孔条。
- 根据制造商说明书准备标准品孔、样品孔和空白孔。向标准品孔中加入 50 µL 标准品,向样品孔中加入 10 µL 样品和 40 µL 样品稀释缓冲液。每个标准品和样品均设两个技术重复。
- 除空白孔外,向每个标准品孔和样品孔中加入 100 µL 辣根过氧化物酶(HRP)标记的检测抗体。用封板膜密封微孔板,并在 37 °C 下孵育 60 分钟。
- 孵育结束后弃去每孔中的液体,将微孔板轻轻在吸水纸上拍干以去除残留液体。
- 向每孔中加入洗涤缓冲液,静置 1 分钟后弃去缓冲液。用吸水纸拍干微孔板。总共重复此洗涤步骤五次。
- 依次向每孔中加入 50 µL 底物溶液 A 和 50 µL 底物溶液 B。轻轻混匀微孔板,并在 37 °C 避光条件下孵育 15 分钟,以使颜色充分显色。
- 向每孔中加入 50 µL 终止液以终止反应。在 10 分钟内使用酶标仪于 450 nm 处测定各孔的光密度(OD)值。
- 通过绘制标准品浓度(x 轴)与 OD 值(y 轴)的标准曲线并进行曲线拟合。将样品的 OD 值代入标准曲线方程,计算目标细胞因子的浓度,并乘以相应的稀释倍数。
- 使用 BCA 蛋白定量试剂盒测定肺组织中的总蛋白浓度。将最终的细胞因子水平归一化至总蛋白含量,并以每毫克总蛋白中目标细胞因子的含量表示结果(例如,pg/mg 蛋白)。
结果
通过评估对照组和模型组的肺部组织病理学变化、SARS-CoV-2病毒载量以及促炎性细胞因子和I型干扰素水平,进行模型验证。
统计学分析
数据以均值 ± 标准误(SE)表示。采用非配对 Student t 检验对模型组与对照组进行比较。选择该检验方法是因为其适用于比较两个独立组之间连续变量的均值。本研究中,小鼠被独立且随机地分配至两组,满足样本独立性的假设。以 p-值 < 0.05 为差异具有统计学意义。
小鼠体重和肺指数的变化
如图1B所示,与建模前的基线值相比,模型组小鼠感染后的体重显著降低,差异具有统计学意义(p < 0.05)。如图1C所示,与对照组相比,模型组小鼠的肺指数显著升高(p < 0.01),符合肺损伤的特征性表现。实验期间未观察到死亡情况,所有小鼠均存活至实验终点。
小鼠肺组织的组织病理学变化及SARS-CoV-2病毒载量
图2展示了两组小鼠肺组织中的组织病理学改变及病毒载量。HE染色显示,对照组小鼠肺组织结构完整,而模型组则表现出明显的肺部病理变化,包括肺泡间隔增厚、炎性细胞浸润以及肺泡结构破坏(图2A)。定量分析进一步证实,与对照组相比,模型组的肺损伤评分和肺泡炎症评分均显著升高(p < 0.001),表明肺损伤及炎症反应成功建立(图2B、C)。
此外,在模型组的肺组织中检测到高水平的 SARS-CoV-2 RNA 表达。感染后第 3 天,肺组织中的平均病毒载量达到 5.5 × 10⁸ 拷贝/g(图 2D),表明病毒在肺组织中成功复制并持续维持高水平存在。
小鼠肺组织中促炎性细胞因子和 I 型干扰素的变化
图3 展示了小鼠肺组织中炎性细胞因子和I型干扰素的变化。结果表明,与对照组相比,模型组肺组织中IL-6、IL-1β和TNF-α的mRNA表达水平和蛋白水平均显著升高(p < 0.05) (图 3A–F),表明炎症反应显著激活。相比之下,ELISA结果表明,模型组肺组织中IFN-α和IFN-β的水平较对照组显著降低(p < 0.001) (图3G,H),表明抗病毒免疫反应受到抑制。
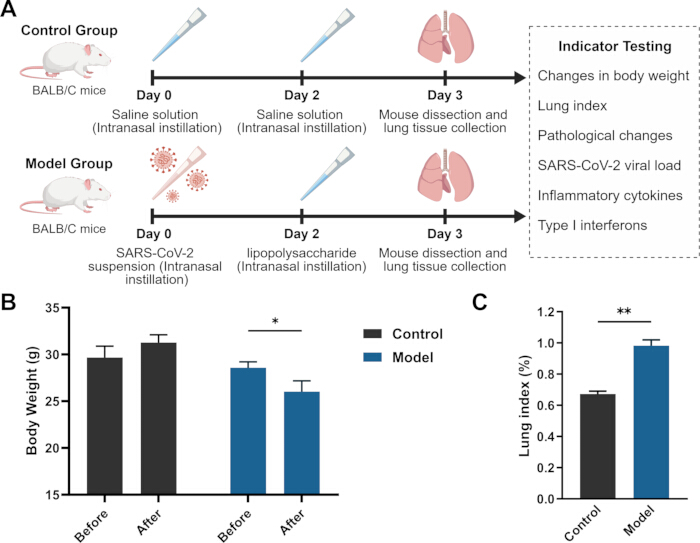
图1:小鼠实验流程图及体重和肺指数的变化。(A)实验流程图。(B)小鼠体重的变化。(C)小鼠肺指数的变化。数据以每组的均值±标准误表示。采用Student t检验评估组间统计学差异。*p < 0.05;**p < 0.01;***p < 0.001。图1A 使用 BioGDP.com25 制作。请点击此处查看该图的放大版本。
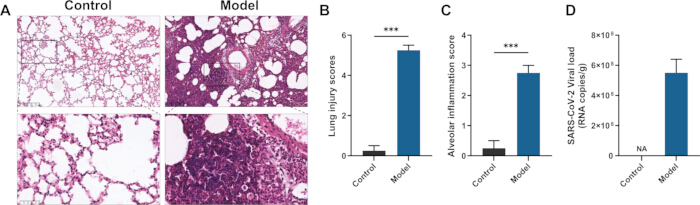
图2小鼠肺组织中的组织病理学改变与 SARS-CoV-2 病毒载量 (A小鼠肺组织HE染色 (B肺损伤评分(Smith评分) (C肺泡炎症评分(Szapiel 评分) (D) 肺组织中 SARS-CoV-2 病毒载量。数据以每组的均值 ± 标准误表示。采用 Student t 检验评估组间统计学差异。 *p < 0.05; **p < 0.01; ***p < 0.001. 请点击此处以查看此图的放大版本。
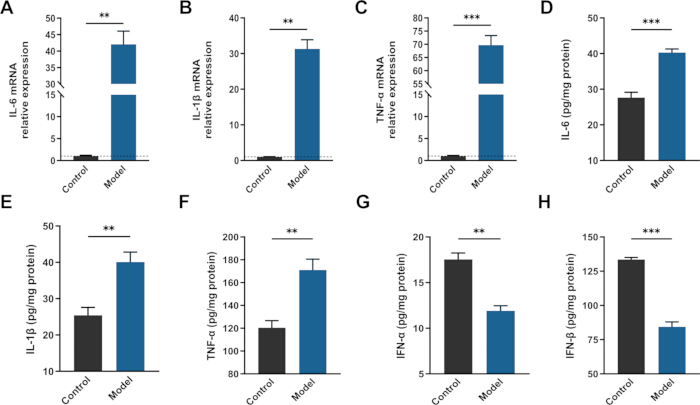
图3:小鼠肺组织中促炎性细胞因子和I型干扰素的变化。(A–C)小鼠肺组织中促炎性细胞因子IL-6、IL-1β和TNF-α的相对mRNA表达水平。(D–F)小鼠肺组织中IL-6、IL-1β和TNF-α的蛋白质水平。(G–H)小鼠肺组织中IFN-α和IFN-β的水平。数据以每组的均值±标准误表示。采用Student's t检验评估组间统计学差异。*p < 0.05;**p < 0.01;***p < 0.001。请点击此处查看该图的高清版本。
| 引物 | 正向序列 (5’ 至 3’) | 反向序列 (5’ 至 3’) |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
表1:本研究中使用的引物序列。 列出了目的基因和内参基因的正向与反向引物序列(5′至3′)。
补充文件 1 请点击此处下载该文件。
补充文件 2 请点击此处下载该文件。
补充文件 3 请点击此处下载该文件。
讨论
本研究通过鼻内滴注 SARS-CoV-2 和 LPS 建立了 COVID-19 相关肺损伤的小鼠模型。结果显示,鼻内联合给予 SARS-CoV-2 和 LPS 可诱导强烈的炎症反应,并伴随 I 型干扰素(IFN-I)信号通路的抑制。模型组小鼠表现出显著的体重下降和肺指数升高,提示存在全身性消耗和加重的肺部损伤。HE 染色进一步证实,模型组出现典型的弥漫性肺损伤,表现为肺泡结构破坏和大量炎性细胞浸润。此外,与对照组相比,模型组肺组织中关键促炎细胞因子(包括 IL-6、IL-1β 和 TNF-α)的表达显著上调,而 IFN-α 和 IFN-β 的水平则明显降低。这些发现提示存在一种免疫失衡状态,即促炎反应过度激活的同时抗病毒免疫受到抑制,进一步支持该模型在模拟疾病免疫病理特征方面的潜在价值。
SARS-CoV-2 感染被认为是导致 COVID-19 相关器官损伤的核心驱动因素26,27。在本研究中,模型小鼠的肺组织中检测到高病毒载量,同时伴有明显的弥漫性肺损伤和炎性细胞浸润,提示病毒感染可能是肺部炎症反应的关键触发因素。与既往报道一致,SARS-CoV-2 感染可诱导肺部病理改变和免疫系统激活28;然而,传统的小鼠 SARS-CoV-2 感染模型通常表现出有限的炎症反应,可能无法完全再现 COVID-19 患者中观察到的过度炎症表型18,19,20。因此,可能需要额外的先天免疫刺激,以更深入地研究与疾病相关的免疫-炎症失调机制。脂多糖(LPS)是先天免疫的经典激活剂,可结合 Toll 样受体 4(TLR4),并触发 MyD88 依赖性和 TRIF 依赖性信号通路,从而激活 NF-κB 等关键炎症转录程序,并诱导多种促炎细胞因子的表达29。既往研究也表明,LPS 刺激(单独或与 SARS-CoV-2 相关组分联合使用)可增强炎症反应,并促进类似急性肺损伤的表型,这支持了在 COVID-19 相关研究中将 LPS 作为炎症刺激因子的合理性30,31,32。在本研究中,模型组小鼠肺组织中 IL-6、IL-1β 和 TNF-α 水平显著升高,提示 LPS 在 SARS-CoV-2 感染背景下发挥的是炎症放大作用,而不仅仅是代表细菌共感染。与缺乏病毒感染背景的单纯 LPS 炎症模型相比,本研究建立的联合模型整合了 SARS-CoV-2 诱导的免疫改变与 LPS 介导的炎症激活,从而为研究 COVID-19 相关肺损伤提供了更为全面的平台。
I型干扰素(IFN-I)是宿主抗病毒免疫的关键效应分子,可通过诱导大量干扰素刺激基因(ISGs)发挥广泛的抗病毒功能33。然而,已有研究表明,SARS-CoV-2可通过多种机制拮抗IFN-I信号通路,包括干扰模式识别受体(PRR)介导的信号转导、抑制干扰素调节因子(IRF)的活化以及阻断下游JAK-STAT信号通路,从而削弱宿主的抗病毒防御能力14,34。本研究中,模型组小鼠肺组织中IFN-α和IFN-β的水平显著降低,表明在病毒感染与LPS刺激的协同作用下,宿主不仅表现出过度的炎症激活,同时还伴随抗病毒免疫的抑制。这种免疫失调被认为是COVID-19发生与进展过程中的关键免疫学特征之一8。因此,本模型部分重现了这一复杂的病理过程,为深入研究与COVID-19相关的免疫失调机制以及相关治疗策略的开发提供了有价值的实验工具。
本研究建立的 COVID-19 小鼠模型基于 SARS-CoV-2 与 LPS 联合给药,能够重现疾病病理的关键特征,包括促炎性细胞因子升高和 I 型干扰素(IFN-I)信号通路受抑制,从而部分模拟在 COVID-19 相关肺损伤中观察到的免疫失衡。与单一病毒感染模型相比,该联合方法引入了外源性先天免疫刺激,以增强与疾病相关的炎症反应,从而可研究过度炎症和抗病毒免疫受损相关的病理过程。因此,该模型可能适用于在体内评估候选的抗炎、免疫调节及肺修复策略,特别是针对免疫失调而非仅针对病毒复制的干预措施。
然而,本研究存在若干局限性,应予以承认。首先,脂多糖(LPS)主要通过激活 Toll 样受体 4(TLR4)诱导炎症反应,这并不能完全反映临床 COVID-19 中复杂的病毒-宿主相互作用,且可能改变炎症反应的特征。其次,尽管在初步优化阶段已进行了仅 SARS-CoV-2 感染组与仅 LPS 处理组的对照实验,但这些数据未包含在本文稿中;未来的研究将进一步评估 SARS-CoV-2 与 LPS 的单独及联合作用,以更明确地界定各组分的贡献。第三,该模型旨在模拟与 COVID-19 相关肺损伤的关键免疫病理学特征,特别是免疫-炎症调节紊乱,而非完整再现 SARS-CoV-2 感染的自然病程。最后,尽管 SARS-CoV-2 的接种剂量与 LPS 的浓度是基于初步优化实验确定的,但小鼠品系、病毒变异株、检测方法及实验条件的差异可能影响模型的可重复性,需在不同研究环境中进一步验证。在本方案所述的优化条件下,模型整体建立成功率约为 90%;然而,该成功率可能因实验条件不同而有所变化。未来的研究可通过引入不同的 SARS-CoV-2 变异株、基因修饰小鼠品系或先进的免疫图谱分析技术(如单细胞转录组分析),进一步优化该模型,以更深入地表征病毒-宿主相互作用并识别潜在治疗靶点。这些努力有望进一步提升该模型在 COVID-19 研究中的转化应用价值。
披露
作者声明无利益冲突。
致谢
本研究得到国家自然科学基金(82374291);四川省科技计划项目(2024NSFJQ0059);四川省中医药管理局科研专项课题(2024zd005);2022年“天府青城计划”天府科技领军人才项目(川青城号1090);成都市卫生健康委员会与成都中医药大学联合创新基金(WXLH202403091)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 全自动组织脱水机 | Dakewe Biotech Co., Ltd. | HP300 | 用于组织脱水。 |
| 全自动染色机 | Leica Biosystems | LEICA ST5010 | 用于HE染色。 |
| 离心机 | DLAB Scientific | D3024R | 用于样品或试剂的离心。 |
| 恒温水浴锅 | 上海立晨仪器科技有限公司 | HH-6 | 用于恒温水浴。 |
| 数字PCR系统 | QIAGEN | QIAcuity One | 用于RT-dPCR。 |
| TransScript一步法cDNA合成超混合液(含gDNA清除) | 全式金生物技术有限公司 | AT341 | 用于逆转录反应。 |
| 伊红溶液 | BASO | BA4024 | 用于组织学染色。 |
| 荧光定量PCR系统 | 北京洛奇医学科技有限公司 | Archimed X6 | 用于RT-qPCR。 |
| 苏木精溶液 | BASO | BA4041 | 用于组织学染色。 |
| IBM SPSS Statistics 软件 | IBM Corp., Armonk, NY, USA | version 22.0 | 用于统计分析。 |
| 大肠杆菌O55:B5脂多糖 | Sigma-Aldrich (上海)贸易有限公司 | L2880 | 用于小鼠模型构建。 |
| 酶标仪 | Molecular Devices | SpectraMax Plus 384 | 用于ELISA检测。 |
| 小鼠IFN-α ELISA试剂盒 | 泽溪生物技术有限公司 | ZC-37863W | 用于检测小鼠肺组织中IFN-α的水平。 |
| 小鼠IFN-β ELISA试剂盒 | 泽溪生物技术有限公司 | ZC-37887W | 用于检测小鼠肺组织中IFN-β的水平。 |
| 小鼠IL-1β ELISA试剂盒 | 泽溪生物技术有限公司 | ZC-37974W | 用于检测小鼠肺组织中IL-1β的水平。 |
| 小鼠IL-6 ELISA试剂盒 | 泽溪生物技术有限公司 | ZC-37988W | 用于检测小鼠肺组织中IL-6的水平。 |
| 小鼠TNF-α ELISA试剂盒 | 泽溪生物技术有限公司 | ZC-39024W | 用于检测小鼠肺组织中TNF-α的水平。 |
| 数字PCR一步法RT-PCR试剂盒 | QIAGEN | 4829104 | 用于数字PCR。 |
| 石蜡包埋机 | 湖北艾瑞生医疗工业有限公司 | ABM-7L | 用于小鼠肺组织的石蜡包埋。 |
| QuantiNova SYBR PCR Mix试剂盒 | QIAGEN | 1129280 | 用于RT-qPCR。 |
| RNeasy Plus Universal Mini试剂盒 | QIAGEN | 1062832 | 用于总RNA提取。 |
| 切片机 | Leica Biosystems | LEICA RM2235 | 用于石蜡切片。 |
| 组织匀浆用不锈钢珠 | 碧云天生物技术 | F6621 | 用于肺组织匀浆。 |
| 数字PCR用XG引物池1.0 | QIAGEN | 4828104 | 用于数字PCR。 |
| Zoletil 50 | VIRBAC | BN9VS7A | 用于小鼠麻醉。 |
参考文献
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.