本研究评估了透明细胞肾细胞癌中ARHGAP22的表达水平及其与预后、临床病理特征、肿瘤免疫微环境以及计算机预测药物敏感性的关联。
研究文章
ARHGAP22 作为透明细胞肾细胞癌潜在预后生物标志物的研究:对肿瘤免疫及共表达网络的深入解析
* These authors contributed equally
本文内容
摘要
摘要
透明细胞肾细胞癌(ccRCC)是肾癌中最常见的亚型,具有显著的临床异质性,凸显了对可靠预后生物标志物的需求。本研究利用癌症基因组图谱肾透明细胞癌队列(TCGA-KIRC)的转录组和临床数据,结合人类蛋白质图谱(HPA)的外部验证数据和蛋白质表达信息,评估了ARHGAP22在ccRCC中的表达模式、预后相关性及其与免疫的相关性。比较了ARHGAP22在肿瘤组织与邻近正常组织中的表达水平,并分析其与总生存期、临床病理特征、肿瘤微环境评分及估计的免疫细胞比例之间的关联。同时进行了共表达和功能富集分析,以阐明其潜在的生物学关联。在转录组水平上,ARHGAP22在ccRCC组织中显著上调,免疫组化图像也显示出相应的差异。高ARHGAP22表达与较短的总生存期、更晚期的临床病理特征以及更高的ImmuneScore、StromalScore和ESTIMATEScore值相关。基于CIBERSORT的分析显示,在经过假发现率校正后,高表达组中M2型巨噬细胞和调节性T细胞的估计比例较高,而初始B细胞、静息肥大细胞和活化树突状细胞的估计比例较低。功能富集分析表明,与ARHGAP22相关的基因富集于免疫相关过程、细胞迁移以及趋化因子和细胞因子介导的信号通路。这些结果提示,ARHGAP22可能作为ccRCC中一个潜在的预后和免疫相关生物标志物,但仍需进一步的独立临床和实验验证。
引言
透明细胞肾细胞癌(ccRCC)是肾细胞癌最常见的组织学亚型,约占所有病例的70%–80%,在肾癌相关死亡中占有重要比重1˒2。近年来,肾细胞癌的总体发病率呈上升趋势,且在不同地区表现出显著的流行病学差异。已明确的危险因素包括吸烟、肥胖、高血压和慢性肾脏病3˒4。透明细胞肾细胞癌具有明显的侵袭性和分子异质性。部分患者在确诊时已出现转移性疾病,术后复发和疾病进展仍较为常见2˒5。在分子水平上,Von Hippel–Lindau(VHL)基因失活以及缺氧诱导因子(HIF)信号通路的持续激活被认为是ccRCC发病过程中的关键事件,并伴随广泛的基因组和表观遗传学改变6˒7。尽管靶向治疗和免疫治疗已改善了晚期疾病的预后,但治疗反应仍存在高度异质性,凸显了对可靠的预后及免疫相关生物标志物的需求8,9,10。
Rho鸟苷三磷酸酶(Rho GTPases)是调控细胞骨架重塑、细胞极性、黏附、迁移和侵袭的分子开关,在肿瘤发生和癌症进展中具有多重作用11˒12。除了调控肿瘤细胞增殖、凋亡和运动性外,Rho GTPase信号通路还参与血管生成、炎症反应以及肿瘤免疫微环境的重塑13,14,15。Rho GTPase信号在肾透明细胞癌(ccRCC)中的生物学意义正受到越来越多的关注。已有报道指出,Rac信号可促进ccRCC的生长及血管生成转换,而由VHL/HIF驱动的ccRCC可能依赖于Rho GTPase/Rho相关卷曲螺旋蛋白激酶(ROCK)通路16˒17。此外,与Rho GTPase相关的基因特征也与ccRCC的不良预后、免疫抑制状态以及对免疫治疗的不同反应相关,提示该通路可能是肿瘤进展与肿瘤免疫之间的重要分子连接18˒19。
ARHGAP22 属于 Rho GTP 酶激活蛋白(RhoGAP)家族中的 FilGAP 相关亚家族,主要作为 Rac 特异性的 RhoGAP 参与 RhoA–Rac1 轴的拮抗调控20˒21。该蛋白包含一个 Pleckstrin 同源(PH)结构域和一个 RhoGAP 结构域,可通过内体定位及向细胞膜的转运来调节 Rac 活性,从而影响片状伪足的形成、细胞铺展和迁移过程20˒22˒23。既往研究已将 ARHGAP22 与细胞骨架动态、肿瘤细胞运动性、肿瘤免疫微环境以及多种恶性肿瘤中的潜在生物标志物作用相关联20,23,24,25。然而,ARHGAP22 在肾透明细胞癌(ccRCC)中的表达模式、预后意义、免疫相关性及其潜在治疗价值仍缺乏充分表征。因此,本研究旨在评估 ARHGAP22 的表达是否与 ccRCC 的临床病理进展、患者预后、免疫浸润、计算预测的药物敏感性以及共表达网络相关,以探讨其作为预后及免疫相关生物标志物的潜在价值。
方案
本研究使用了来自TCGA、HPA及其他开放获取数据库的公开、去标识化数据,未涉及新的人类受试者招募、动物实验或可识别的私人信息。因此,无需额外的机构伦理审批和知情同意。有关本方案所用工具的详细信息见于 材料表.
1. 公共数据集与生物信息学分析
本研究使用了公开可用的数据集,未开展涉及人类参与者或动物的直接研究。转录组学和临床数据来自癌症基因组图谱肾透明细胞癌项目(TCGA-KIRC),蛋白质表达数据则从人类蛋白质图谱(Human Protein Atlas)获取。该计算方法能够高效筛选大规模转录组学和临床数据集,支持候选生物标志物的初步鉴定,并为后续实验验证提供依据。所有计算分析均使用统计软件完成。
2. 数据获取与样本选择
访问了基因组数据公共平台(Genomic Data Commons Data Portal),并选定了 TCGA-KIRC 项目。下载了透明细胞肾细胞癌(ccRCC)的转录组测序数据及相应的临床信息。后续转录组分析采用每百万转录本数(TPM)标准化的信使 RNA 表达数据。从 TCGA-KIRC 转录组矩阵中提取 ARHGAP22 的表达值,并利用 TCGA 样本条形码与对应的临床记录进行匹配。纳入具有可用 ARHGAP22 表达数据和临床注释的原发性肿瘤组织及相邻正常肾组织。排除 ARHGAP22 表达值缺失、关键临床或生存信息不完整、记录重复或生存时间少于 30 天的样本。经过筛选后,共保留 533 个肿瘤样本和 72 个相邻正常组织样本用于后续分析。
3. 泛癌表达分析
使用 TIMER2.0 的 Gene_DE 模块(http://timer.cistrome.org/;访问日期:2026年4月12日)对 ARHGAP22 进行泛癌表达分析。利用 TCGA 的 RNA 测序数据,在多种癌症类型中比较肿瘤组织与相应正常组织之间 ARHGAP22 的表达水平。表达值以 log2(TPM) 表示,差异表达分析采用 TIMER2.0 中实现的 Wilcoxon 秩和检验进行评估。双侧 P 值小于 0.05 被认为具有统计学显著性。
4. 外部 GEO 验证
通过 BEST 在线平台(https://rookieutopia.hiplot.com.cn/app_direct/BEST/;访问日期:2026 年 7 月 9 日)使用 Gene Expression Omnibus 数据集 GSE167573 进行外部验证。利用该平台提供的标准化表达数据,通过非配对 Student's t 检验比较 ARHGAP22 在 ccRCC 和正常肾组织中的表达水平。在生存分析中,根据平台的最优截断值方法将患者分为高表达组和低表达组,并采用 Kaplan-Meier 法结合对数秩检验评估总生存期。以双侧 P 值小于 0.05 为具有统计学显著性。
5. ARHGAP22 表达分析
从 TCGA-KIRC 队列中提取经 TPM 标准化的 ARHGAP22 信使 RNA 表达数据,并在统计分析前转换为 log2(TPM + 1) 形式。评估了原发性肿瘤组织与相邻正常肾组织之间 ARHGAP22 的差异表达。对于肿瘤组织与正常组织的非配对比较,采用 Wilcoxon 秩和检验;对于配对分析,通过 TCGA 患者条形码识别匹配的肿瘤-正常配对样本,并应用 Wilcoxon 符号秩检验比较相邻正常组织与对应肿瘤组织中 ARHGAP22 的表达水平。双侧 P 值小于 0.05 被认为具有统计学显著性。
6. 生存分析与时间依赖性受试者工作特征分析
使用具有可用临床随访数据的 TCGA-KIRC 肿瘤样本进行生存分析和时间依赖性受试者工作特征(ROC)分析。总生存时间从天数转换为年数。根据 ARHGAP22 表达的中位值将患者分为高表达组和低表达组,并在所有基于表达分组的分析中一致地应用相同的截断值。使用 survival 包和 survminer 包生成 Kaplan-Meier 曲线。组间差异通过 log-rank 检验进行评估。采用 Cox 比例风险回归模型估算风险比及 95% 置信区间。使用 timeROC 包生成时间依赖性 ROC 曲线。采用 Aalen 加权法计算 1 年、3 年和 5 年时曲线下面积。双侧 P 值小于 0.05 被认为具有统计学显著性。
7. 临床病理学关联分析
使用 TCGA-KIRC 肿瘤样本分析 ARHGAP22 表达与临床病理学特征之间的关联。排除正常样本。年龄分为≤65 岁和>65 岁两组。在相应分析中排除注释未知或缺失的样本。两组间的比较采用 Wilcoxon 秩和检验,三组及以上的比较采用 Kruskal-Wallis 检验。使用 ggpubr 包、ggplot2 和 scales 生成小提琴图。在热图可视化中,根据中位数截断值将患者分为 ARHGAP22 高表达组和低表达组。使用卡方检验评估表达分组与临床病理学变量之间的关联。在使用 limma 进行预处理后,利用 ComplexHeatmap 生成热图。双侧 P 值小于 0.05 被认为具有统计学显著性。
8. 列线图构建
通过将 ARHGAP22 表达水平与 TCGA-KIRC 队列中可用的临床病理学特征整合到一个 Cox 比例风险回归模型中,构建了预后列线图。该模型用于估计 TCGA-KIRC 队列中患者 1 年、3 年和 5 年的总生存率。使用拟合的 Cox 模型计算每位患者的个体风险评分。采用 Kaplan–Meier 方法结合 1,000 次自助重采样生成 1 年、3 年和 5 年总生存率的校准曲线。评估列线图预测的生存概率与实际观察到的生存结果之间的一致性。Cox 回归分析使用 survival 软件包进行。列线图的可视化及校准分析通过 regplot 和 rms 工具完成。双侧 P 值小于 0.05 被认为具有统计学显著性。
9. 共表达分析
利用TCGA-KIRC肿瘤样本的转录组数据,通过皮尔逊相关性分析评估ARHGAP22与所有其他基因之间的共表达关系。将绝对皮尔逊相关系数大于0.6且P值小于0.001的基因定义为显著共表达基因。根据相关系数绝对值对显著共表达基因进行排序,选取排名最高的基因构建相关性矩阵,并生成弦图以可视化ARHGAP22相关的共表达网络。
10. 差异表达基因与功能富集分析
采用Wilcoxon秩和检验结合错误发现率(FDR)校正,对高ARHGAP22表达组与低ARHGAP22表达组之间进行差异表达分析。将绝对log2倍数变化大于1且FDR小于0.05的基因定义为显著差异表达基因。结果通过火山图和热图进行可视化展示。使用clusterProfiler进行基因本体(Gene Ontology)和京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes)富集分析。利用org.Hs.eg.db将基因符号转换为Entrez标识符。同时满足名义P值小于0.05且FDR校正后P值小于0.05的Gene Ontology条目和Kyoto Encyclopedia of Genes and Genomes通路被视为显著富集。基因集富集分析(Gene Set Enrichment Analysis)使用分子特征数据库(Molecular Signatures Database)文件c2.cp.kegg.v7.4.symbols.gmt中的Kyoto Encyclopedia of Genes and Genomes基因集进行。基因按log2倍数变化值排序,筛选名义P值小于0.05且FDR校正后P值小于0.05的显著富集基因集 < 0.05 被认为显著富集。
11. 免疫浸润与免疫检查点分析
使用 TCGA-KIRC 肿瘤样本进行免疫浸润和免疫检查点分析。StromalScore、ImmuneScore 和 ESTIMATEScore 值通过 estimate 软件包计算获得。采用 CIBERSORT R 脚本估算免疫细胞比例,设定 1,000 次置换检验并进行分位数归一化。仅保留 CIBERSORT 去卷积 P 值小于 0.05 的样本。根据 ARHGAP22 表达水平的中位数,将患者分为 ARHGAP22 高表达组和 ARHGAP22 低表达组。采用 Wilcoxon 秩和检验评估两组间 ESTIMATE 评分和免疫细胞比例的差异。使用 Pearson 相关性分析评估 ARHGAP22 表达与免疫检查点基因之间的相关性。对多个免疫细胞比较和免疫检查点相关性检验的 P 值采用 Benjamini–Hochberg FDR 方法进行校正,FDR 小于 0.05 被认为具有统计学显著性。将具有 FDR 显著性的免疫检查点基因通过 corrplot 生成的相关性热图进行可视化展示。数据预处理和可视化主要使用 limma、ggpubr 和 corrplot 完成。
12. 药物敏感性预测
在排除正常组织样本后,使用TCGA-KIRC肿瘤转录组数据。通过oncoPredict软件包及癌症药物敏感性基因组学2(Genomics of Drug Sensitivity in Cancer 2)参考数据集,计算获得半数最大抑制浓度(half-maximal inhibitory concentration)的预测值。根据ARHGAP22表达值的中位数,将患者分为ARHGAP22高表达组和ARHGAP22低表达组。采用Wilcoxon秩和检验比较两组间的预测半数最大抑制浓度值。对多个药物比较所得的P值,使用Benjamini–Hochberg方法进行多重检验校正,以FDR小于0.05为具有统计学显著性。结果应解释为计算预测的药物敏感性估计值,而非经实验验证或临床观察到的药物反应。
13. 人类蛋白质图谱验证
访问人类蛋白质图谱数据库,检索 ARHGAP22。浏览“组织”部分,评估 ARHGAP22 蛋白在正常肾组织中的表达情况。打开“病理”部分,选择透明细胞肾细胞癌,审查 ARHGAP22 蛋白在肿瘤组织中的表达。获取并选取正常肾组织和透明细胞肾细胞癌(ccRCC)组织的代表性免疫组化图像,用于论文中以比较 ARHGAP22 蛋白在正常组织与肿瘤组织间的表达差异。
结果
ARHGAP22 的泛癌表达谱分析
泛癌转录谱分析显示,ARHGAP22 在不同肿瘤类型及其相应正常组织中的表达具有显著异质性(图1)。在多种实体瘤中观察到 ARHGAP22 表达升高的总体趋势。在乳腺浸润性癌、胆管癌、头颈部鳞状细胞癌、肾嫌色细胞癌、肾透明细胞癌、肾乳头状细胞癌以及肝细胞癌中,肿瘤组织的 ARHGAP22 表达水平显著高于相应正常组织。这些结果表明,ARHGAP22 在多种癌症类型中差异表达,可能具有作为肿瘤相关生物标志物的潜在价值。
ARHGAP22 在透明细胞肾细胞癌中的表达模式及预后价值
通过转录组数据、生存分析、独立验证数据集以及免疫组织化学图像,评估了 ARHGAP22 在透明细胞肾细胞癌(ccRCC)中的表达模式及其临床相关性。在未配对和配对的癌症基因组图谱肾透明细胞癌(TCGA-KIRC)样本中,ccRCC 组织中的 ARHGAP22 表达水平均显著高于正常肾组织(图 1B、C)。Kaplan–Meier 分析显示,ARHGAP22 高表达患者的总生存期(OS)显著短于低表达患者(P = 0.013;图 1D)。时间依赖性受试者工作特征分析显示,1 年、3 年和 5 年总生存期的曲线下面积分别为 0.641、0.637 和 0.641,提示其具有一定的预后效能(图 1E)。研究进一步利用独立的 GSE167573 数据集进行验证。结果显示,ccRCC 组织中 ARHGAP22 的表达显著高于正常肾组织(图 1F),且 ARHGAP22 高表达与较短的总生存期相关(图 1G)。来自人类蛋白质图谱(Human Protein Atlas)的免疫组织化学图像显示,ccRCC 组织中 ARHGAP22 蛋白染色强度高于正常肾组织,为转录组学结果提供了额外的蛋白水平支持(图 1H、I)。
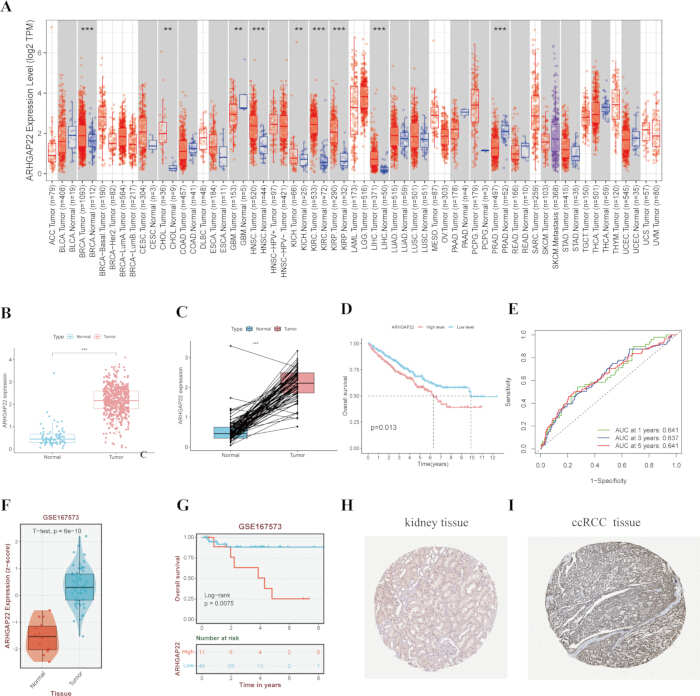
图 1:ARHGAP22 在透明细胞肾细胞癌中的泛癌表达、表达模式及预后价值。(A)ARHGAP22 在多种肿瘤类型及其对应正常组织中的泛癌表达谱。(B)非配对透明细胞肾细胞癌(ccRCC)与正常肾组织中 ARHGAP22 的表达情况。(C)配对的 ccRCC 与相邻正常肾组织中 ARHGAP22 的表达情况。(D)比较高 ARHGAP22 表达与低表达患者的 Kaplan–Meier 总生存曲线。(E)时间依赖性受试者工作特征曲线,用于评估 ARHGAP22 对 1 年、3 年和 5 年总生存期的预后效能。(F)在 GSE167573 数据集中验证 ARHGAP22 的表达。(G)在 GSE167573 数据集中的 Kaplan–Meier 总生存分析。(H, I)来自人类蛋白质图谱(Human Protein Atlas)的免疫组化图像,显示正常肾组织(H)和 ccRCC 组织(I)中 ARHGAP22 蛋白的表达。*P < 0.05;**P < 0.01;***P < 0.001。缩写:ccRCC,透明细胞肾细胞癌;OS,总生存期;ROC,受试者工作特征;DEG,差异表达基因;GO,基因本体;KEGG,京都基因与基因组百科全书;GSEA,基因集富集分析;FDR,错误发现率;IC50,半数抑制浓度。 请点击此处查看该图的放大版本。
ARHGAP22 与临床病理特征的关联性
为评估 ARHGAP22 表达是否随疾病严重程度变化,分析了其表达水平与临床病理特征之间的关系。在 T、M 和 N 分期较晚的患者中,包括转移性疾病患者,ARHGAP22 的表达水平显著升高(图 2A–C)。随着组织学分级和临床分期的进展,ARHGAP22 表达也呈上升趋势(图 2D,E)。热图分析进一步显示,ARHGAP22 高表达与较高的组织学分级、更晚的临床分期以及不利的肿瘤-淋巴结-转移(TNM)分类之间存在显著相关性(图 2F)。这些结果表明,在透明细胞肾细胞癌(ccRCC)中,ARHGAP22 表达升高与更具侵袭性的临床病理特征相关。
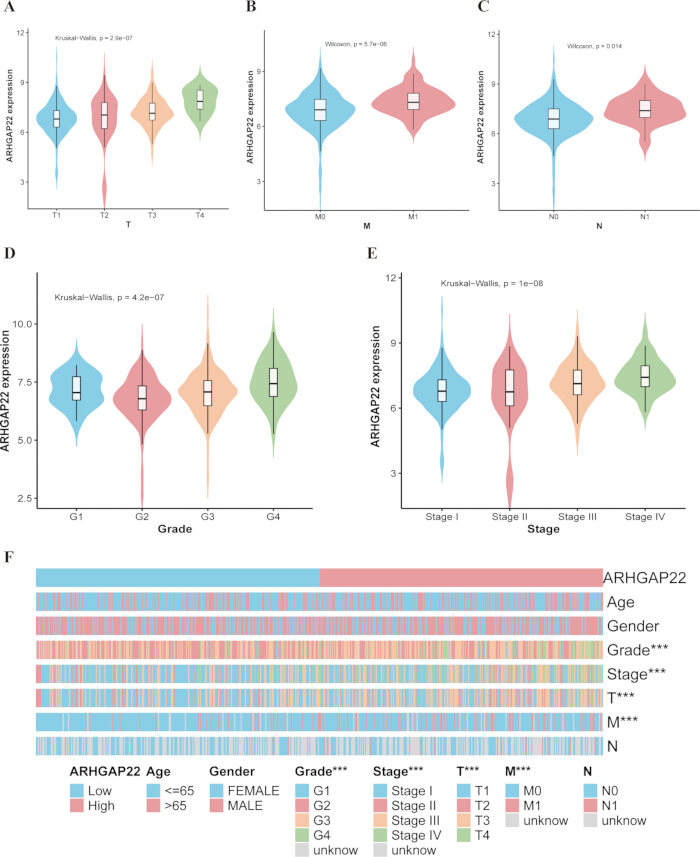
图 2:ARHGAP22 表达水平与肾透明细胞癌临床病理特征的关联性。(A–C) 分别为根据 T、M 和 N 分类的 ARHGAP22 表达水平。ARHGAP22 表达水平根据 T、M 和 N 分类情况。 (D) 根据组织学分级的 ARHGAP22 表达水平。 (E) 根据临床分期的 ARHGAP22 表达水平。 (F) ARHGAP22 表达水平与临床病理特征之间关联性的热图。*P < 0.05;**P < 0.01;***P < 0.001。请点击此处查看该图的高清版本。
临床病理学特征与总生存期
Kaplan–Meier 分析显示,不同临床病理亚组之间的总生存期(OS)存在显著差异(图3)。组织学分级较高(G3–G4)的患者总生存期显著短于分级较低(G1–G2)的患者(P < 0.0001;图3A)。III–IV期疾病的患者总生存期也显著短于I–II期疾病患者(P < 0.0001;图3B)。不同T分期亚组间的总生存期差异显著,晚期T分期与较差的预后相关(P < 0.0001;图3C)。伴有淋巴结转移(N1)或远处转移(M1)的患者,其总生存期亦显著短于无淋巴结或远处转移的患者(两者均 P < 0.0001;图3D、E)。这些结果证实,组织学分级、临床分期以及肿瘤-淋巴结-转移(TNM)分类与透明细胞肾细胞癌(ccRCC)患者的生存相关。
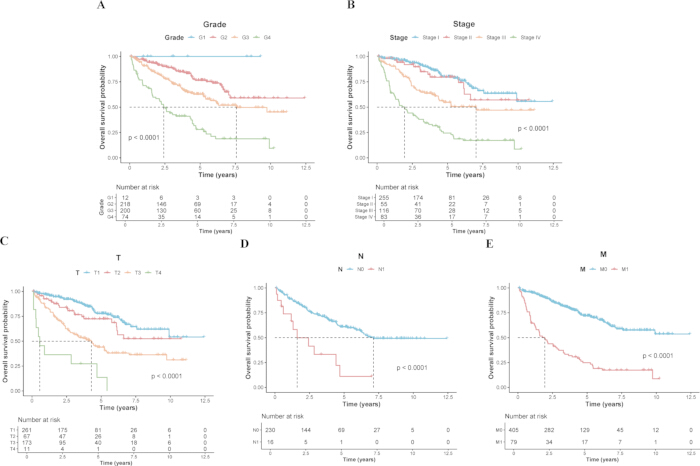
图3:根据透明细胞肾细胞癌的临床病理特征绘制的总生存率。(A–E)分别根据组织学分级、临床分期、T分类、N分类和M分类绘制的Kaplan-Meier总生存曲线。请点击此处查看该图的放大版本。
透明细胞肾细胞癌预后列线图
本研究构建了一个将ARHGAP22表达水平与现有临床病理特征相结合的预后列线图,用于预测透明细胞肾细胞癌(ccRCC)患者1年、3年和5年的总生存率(OS)(图4A)。校准分析显示,列线图预测的生存概率与实际观察到的生存概率在三个时间点均具有良好一致性。校准曲线接近理想参考线,表明该列线图具有良好的校准能力(图4B)。仅包含临床变量的模型一致性指数为0.779(95%置信区间:0.729–0.828),而加入ARHGAP22表达后,一致性指数为0.781(95%置信区间:0.735–0.827),提示其对预后判断的增量改善极为有限。
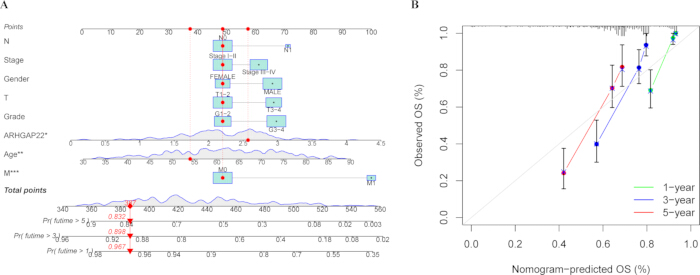
图4:基于ARHGAP22的预后列线图及透明细胞肾细胞癌的校准分析。(A) 用于估计1年、3年和5年总生存率的列线图。 (B) 校准曲线,比较列线图预测的与实际观察到的1年、3年和5年总生存率。 请点击此处查看该图的放大版本。
ARHGAP22的分子网络分析
通过相关性分析,对与ARHGAP22表达相关的分子网络进行表征。相关性网络显示了ARHGAP22在ccRCC中与多个基因之间的关联(图5A)。ARHGAP22的表达与GMIP、TRPM2、CARD9、FMNL1、STAC3和MYO9B呈显著正相关。与BSND、HEPACAM2、ATP6V1G3、TMEM38A和FOXI1则呈显著负相关(图5B–L)。这些结果表明,ARHGAP22的表达与ccRCC中复杂的共表达网络相关。
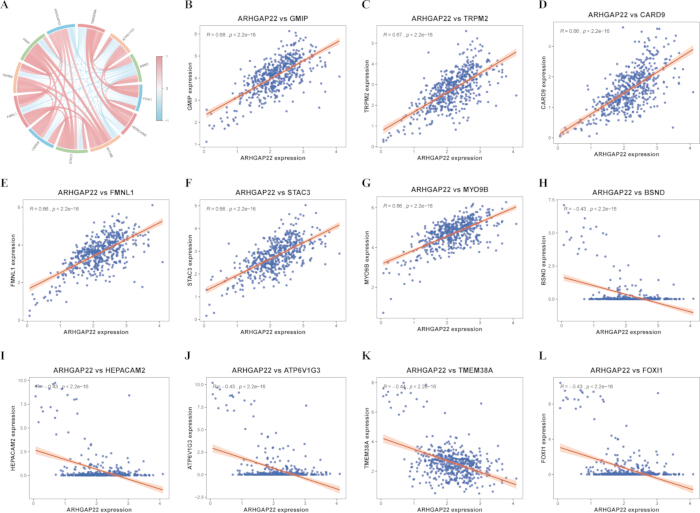
图5:透明细胞肾细胞癌中与ARHGAP22相关的分子特征。(A) 显示ARHGAP22与相关基因之间关联的共表达网络。 (B–G) 阳性 ARHGAP22 与 GMIP、TRPM2、CARD9、FMNL1、STAC3 和 MYO9B 之间的相关性分别。(H–L) ARHGAP22 与 BSND、HEPACAM2、ATP6V1G3、TMEM38A 和 FOXI1 之间分别呈负相关。 请点击此处以查看此图的放大版本。
ARHGAP22 相关的差异表达基因
根据中位表达值将透明细胞肾细胞癌样本分为 ARHGAP22 高表达组和低表达组,并进行差异表达分析。在高表达组中,共有 334 个基因上调,38 个基因下调(图 6A)。热图分析显示,ARHGAP22 高表达组与低表达组之间具有明显的表达模式差异,表明所鉴定的差异表达基因能够有效区分这两组样本(图 6B)。
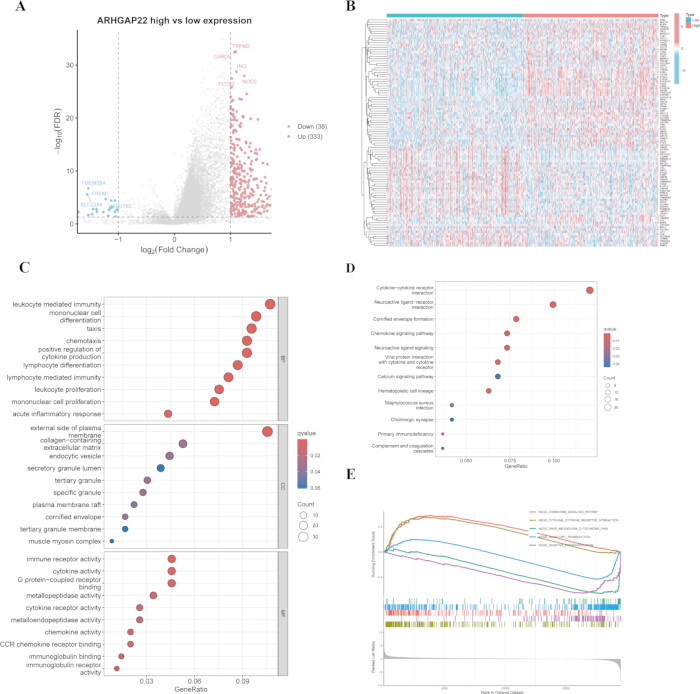
图6ARHGAP22 相关差异表达基因及功能富集分析。(A) 高表达与低表达ARHGAP22组间差异表达基因的火山图 (B) 差异表达基因的热图 (C) 基因本体富集分析 (D) 京都基因与基因组百科全书通路富集分析 (E) 高ARHGAP22表达组中富集通路的基因集富集分析。 请点击此处以查看此图的放大版本。
ARHGAP22 相关差异表达基因的功能富集
为阐明差异表达基因所参与的生物学过程,进行了功能富集分析。基因本体(Gene Ontology)分析显示,这些基因在免疫相关生物学过程中显著富集,包括白细胞介导的免疫、趋化作用、细胞因子生成以及淋巴细胞分化与增殖。在细胞组分层面,富集主要出现在细胞外基质、分泌颗粒及质膜相关结构中。在分子功能层面,富集于细胞因子活性、趋化因子受体结合以及金属肽酶相关活性(图 6C)。京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes)分析显示,细胞因子–细胞因子受体相互作用、趋化因子信号通路、钙信号通路以及感染和免疫相关通路均显著富集(图 6D)。基因集富集分析进一步发现,在 ARHGAP22 高表达组中多个免疫相关通路显著富集(图 6E)。
ARHGAP22 与透明细胞肾细胞癌中的免疫微环境
基于 CIBERSORT 的免疫细胞比例估算分析显示,ARHGAP22 高表达组与低表达组之间存在显著差异(图 7A)。经错误发现率校正后,ARHGAP22 高表达组中 M2 巨噬细胞和调节性 T 细胞的估算比例较高,而初始 B 细胞、静息态肥大细胞和活化树突状细胞的估算比例较低。相关性分析表明,ARHGAP22 表达水平与 M2 巨噬细胞和调节性 T 细胞呈正相关,与初始 B 细胞、静息态肥大细胞和活化树突状细胞呈负相关(图 7B)。这些基于 CIBERSORT 的估算结果提示,ARHGAP22 表达升高与 ccRCC 中的免疫抑制特征相关。
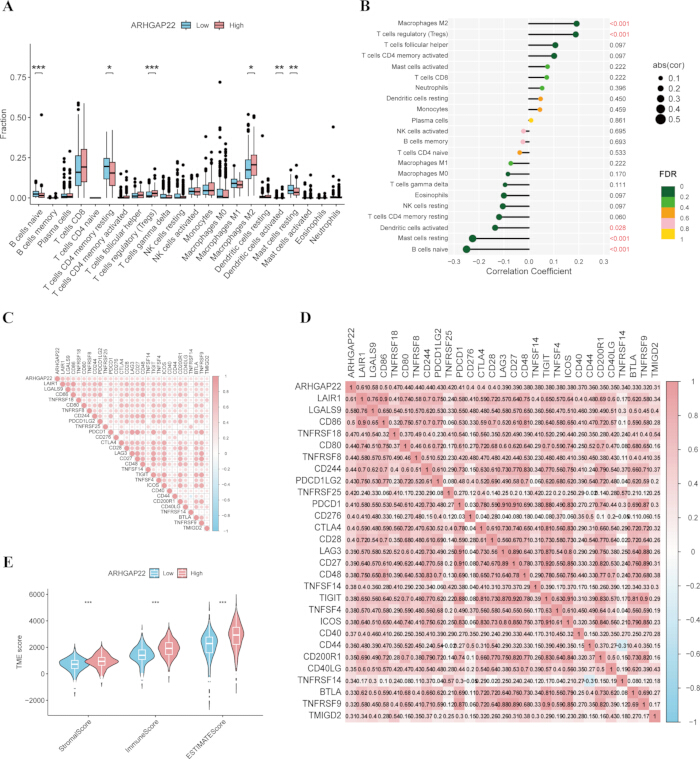
图 7:ARHGAP22 表达与透明细胞肾细胞癌免疫微环境特征之间的关联。(A) ARHGAP22 高表达组与低表达组之间通过 CIBERSORT 估算的免疫细胞比例差异。(B) ARHGAP22 表达水平与 CIBERSORT 估算的免疫细胞比例之间的相关性。 (C) 相关性热图显示 ARHGAP22 表达与免疫检查点基因之间的关联。 (D) ARHGAP22 与免疫检查点分子的相关性矩阵。 (E) 利用 ESTIMATE 算法计算的 ARHGAP22 高表达组与低表达组之间基质评分(StromalScore)、免疫评分(ImmuneScore)和综合评分(ESTIMATEScore)的差异。*P < 0.05;**P < 0.01;***P < 0.001。请点击此处查看该图的放大版本。
ARHGAP22、免疫检查点及肿瘤微环境组分
ARHGAP22 高表达与多个免疫检查点基因呈正相关,包括 PDCD1LG2、CTLA4、LAG3、TIGIT 和 ICOS(图 7C、D),提示其可能与免疫逃逸相关特征存在关联。ESTIMATE 分析还显示,ARHGAP22 高表达组的基质评分(StromalScore)、免疫评分(ImmuneScore)和综合评分(ESTIMATEScore)均显著升高(图 7E),反映出肿瘤微环境中基质成分和免疫成分的增加。这些结果表明,在透明细胞肾细胞癌(ccRCC)中,ARHGAP22 表达与 CIBERSORT 估算的免疫细胞比例、免疫检查点表达以及免疫抑制性肿瘤微环境特征相关。
ARHGAP22 与计算预测的靶向药物敏感性
通过比较高表达组与低表达组之间的预测半数抑制浓度值,评估了 ARHGAP22 表达水平与计算预测靶向药物敏感性之间的关联(图 8A–I)。低表达组在阿昔替尼(axitinib)、索拉非尼(sorafenib)、萨沃利替尼(savolitinib)、伏瑞替尼(foretinib)、西地尼布(cediranib)、阿培利司(alpelisib)、布帕利司(buparlisib)、阿呋利塞替比(afuresertib)和伊帕塞替比(ipatasertib)上的预测半数抑制浓度值显著更低。预测半数抑制浓度值越低,表明计算预测的敏感性越高。这些结果提示,ARHGAP22 表达水平越低,对所评估靶向药物的预测敏感性越高。需要强调的是,上述结果仅为计算预测结果,不代表经过实验或临床验证的药物反应。
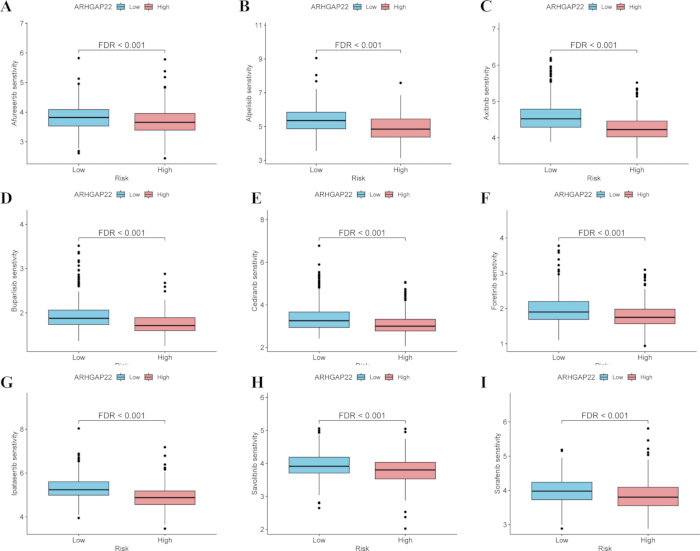
图8:ARHGAP22表达水平与透明细胞肾细胞癌中计算预测的靶向药物敏感性之间的关联。(A–I) 高表达组与低表达组之间对阿昔替尼、索拉非尼、萨沃利替尼、Foretinib、西地尼布、Alpelisib、Buparlisib、Afuresertib 和 Ipatasertib 的计算预测半数抑制浓度(IC50)值的比较。较低的预测半数抑制浓度值表示更高的预测药物敏感性。请点击此处查看该图的放大版本。
数据可用性:
本研究中分析的转录组学和临床数据来自公开可用的癌症基因组图谱肾透明细胞癌项目(TCGA-KIRC)(https://portal.gdc.cancer.gov/)。外部表达和生存验证数据来自基因表达综合数据库GSE167573。蛋白质表达数据从人类蛋白质图谱(https://www.proteinatlas.org/)获取。泛癌表达数据使用TIMER2.0进行分析,并通过BEST平台进行外部验证。药物敏感性参考数据来自癌症药物敏感性基因组学2数据集,富集分析所用的基因集来自分子特征数据库。原始数据集可通过相应的数据库和平台公开获取。用于数据处理、统计分析和可视化的R脚本作为补充文件1提供。处理后的结果作为补充表1(包含完整的差异表达分析结果)、补充表2(包含基因本体富集分析结果)和补充表3(包含京都基因与基因组百科全书通路富集分析结果)提供。
补充表 1:完整的差异表达分析结果。 本文件包含在高表达和低表达 ARHGAP22 组之间鉴定出的所有差异表达基因的完整列表,包括基因标识符、分组表达值、log2 倍数变化、P 值、经错误发现率校正的 P 值以及调控方向。请点击此处下载该文件。
补充表 2:基因本体富集分析结果。 本文件包含与 ARHGAP22 相关的差异表达基因的完整基因本体富集分析结果,涵盖生物过程、细胞组分和分子功能类别,以及富集统计值、P 值、校正后 P 值、基因数量和相关基因标识符。请点击此处下载该文件。
补充表3:京都基因与基因组百科全书通路富集分析结果。 本文件包含与ARHGAP22相关的差异表达基因的完整京都基因与基因组百科全书(KEGG)通路富集分析结果,包括通路编号和名称、富集统计量、P值、校正后P值、q值、基因数量以及相关基因编号。请点击此处下载该文件。
补充文件 1:用于数据处理、统计分析和可视化的 R 脚本。 该文件包含用于数据预处理、表达分析、生存分析、临床病理学关联分析、共表达分析、差异表达分析、功能富集分析、免疫浸润分析、药物敏感性预测以及图表生成的 R 脚本。请点击此处下载该文件。
讨论
肾细胞癌(RCC)是泌尿系统最常见的恶性肿瘤之一,其中透明细胞肾细胞癌(ccRCC)是最主要的组织学亚型,也是导致RCC相关死亡的主要原因。近年来,RCC的总体发病率呈上升趋势,且存在显著的地域差异。已确立的危险因素包括吸烟、肥胖、高血压和慢性肾脏病3˒4。尽管在诊断和治疗方面取得了进展,ccRCC在临床上仍具有高度异质性;部分患者初诊时即表现为晚期或转移性疾病,术后复发和远处转移仍较为常见2˒5˒26。因此,识别与肿瘤生物学行为及预后相关的分子生物标志物,仍是ccRCC研究的重要目标。本分析显示,ARHGAP22在ccRCC中表达上调,且与较差的总生存率、不利的临床病理特征、免疫相关转录组改变、免疫抑制性肿瘤微环境特征以及靶向药物计算预测敏感性的差异相关。这些发现支持ARHGAP22作为潜在的预后及免疫相关生物标志物的价值,但其临床应用价值和因果关系尚未确立。
ARHGAP22 编码一种参与细胞骨架调控和细胞运动的 Rho GTP 酶激活蛋白。该蛋白包含一个 Pleckstrin 同源结构域、一个 RhoGAP 结构域以及一个 C 末端卷曲螺旋区,并可与 14-3-3 蛋白相互作用,提示其在生长因子调控的细胞迁移中发挥作用22。作为 FilGAP 相关蛋白,ARHGAP22 参与 RhoA–Rac1 轴的拮抗调控以及细胞迁移模式的调控21˒27。ARHGAP22 主要定位于内体,可被转运至膜皱褶或质膜,在这些位置抑制 Rac 依赖性的片状伪足形成和细胞铺展;其亚细胞定位与 RacGAP 活性密切相关20˒23。已有研究报道其与肿瘤的相关性。在肾透明细胞癌(ccRCC)中,ARHGAP22 在含溴结构域蛋白 4 抑制相关的转录分析中被鉴定为候选分子,并与较差的总体生存率相关28。ARHGAP 家族其他成员也已被证实与膀胱癌中促进肿瘤的免疫浸润和疾病进展相关25,在急性髓系白血病中表现为表达改变和外显子变异24,以及在转移性结直肠癌中对贝伐珠单抗治疗产生差异性反应29。
本研究结果与上述观察一致。ARHGAP22 的表达随着 T、N 和 M 分期、组织学分级及临床分期的进展而升高,且高表达与较短的总生存期相关。既往研究表明,Rac 信号通路可促进透明细胞肾细胞癌(ccRCC)的生长及血管生成转换16,而 Rho GTP 酶/Rho 相关卷曲螺旋蛋白激酶通路则与 ccRCC 的恶性行为相关17。因此,ARHGAP22 的上调可能反映了与侵袭性肿瘤表型相关的分子改变。共表达及差异表达分析进一步显示,ARHGAP22 与广泛的转录调控网络相关。其表达与 FMNL1、CARD9 和 TRPM2 等基因呈正相关,而与 BSND 和 FOXI1 等基因呈负相关。基因本体(Gene Ontology)、京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes)及基因集富集分析(Gene Set Enrichment Analysis)结果显示,该基因富集于白细胞介导的免疫、趋化作用、细胞因子生成、淋巴细胞分化与增殖、细胞因子-受体相互作用以及趋化因子信号通路。趋化因子网络在肾细胞癌(RCC)的免疫细胞募集、肿瘤生长及转移过程中发挥重要作用30,而免疫相关通路的富集则与 ccRCC 的不良预后及肿瘤微环境的改变相关31。透明细胞肾细胞癌还表现出与临床结局及免疫微环境复杂性相关的独特免疫转录特征32。在其他恶性肿瘤中,异常基因表达、免疫通路富集、不良预后与复杂的共表达模式之间的类似关系亦有报道33。
ARHGAP22 的表达还与肿瘤免疫微环境的差异相关。在经过错误发现率校正后,高表达组显示出较高比例的调节性 T 细胞和 M2 巨噬细胞,以及较低比例的初始 B 细胞、静息态肥大细胞和活化树突状细胞。ARHGAP22 表达水平与多种免疫检查点分子呈正相关,同时伴有较高的 ImmuneScore、StromalScore 和 ESTIMATEScore 值。肾透明细胞癌的特征是存在显著的免疫细胞浸润,但这一特征并不一定意味着有效的抗肿瘤免疫应答34。功能失调的免疫细胞状态和免疫抑制性特征可能限制免疫检查点阻断疗法的效果35。已有研究报道,调节性 T 细胞和 M2 巨噬细胞与肾细胞癌(RCC)中的免疫抑制、肿瘤进展及不良预后相关36˒37,而免疫检查点分子表达升高可能反映了与免疫逃逸相关的过程38。因此,本研究结果提示,ARHGAP22 高表达不仅与更高的免疫细胞浸润程度相关,更与一种通常与免疫抑制特征相关的免疫图谱相关。由于免疫细胞比例的估算是基于批量 RNA 测序数据和单一的计算去卷积方法得出的,该解释仍属推论性质。
在ARHGAP22表达组之间也观察到计算预测的药物敏感性差异。既往研究已将高风险分子特征与免疫浸润改变、免疫通路富集以及差异性药物反应相关联39。在肾透明细胞癌(ccRCC)中,免疫相关基因特征也被报道可用于分层生存预后,并预测对免疫治疗和靶向治疗的差异性反应40˒41。在本项分析中,低ARHGAP22表达组对多种靶向药物的预测半数抑制浓度(IC50)值较低。这些结果提示ARHGAP22表达水平与计算预测的药物敏感性之间存在关联,但并未证明实际治疗反应或临床获益。多项方法学选择有助于保证分析的一致性,包括样本质量过滤、采用统一的基于中位数的表达截断值、对CIBERSORT结果进行置信度过滤,以及对多重比较进行错误发现率校正。尽管如此,预测的药物敏感性应被视为探索性结果,仍需通过实验测定或临床观察获得的药物反应数据进行独立验证。
应考虑若干局限性。尽管GSE167573数据集为ARHGAP22的表达及其与生存率的关联提供了外部验证,但仍需在更大规模、多中心的临床队列中进一步验证。分析主要基于回顾性公共数据集和批量RNA测序数据,因此无法区分ARHGAP22表达的细胞来源,即肿瘤细胞、基质细胞与浸润性免疫细胞之间的贡献。单细胞RNA测序、多重免疫荧光或空间转录组学技术将有助于解决这一局限。免疫细胞浸润、免疫检查点表达及药物敏感性均通过计算方法推断,可能无法直接反映生物学功能或临床治疗反应。本研究未纳入独立的免疫去卷积方法、机构内部的免疫组织化学队列或实验性扰动分析。此外,所观察到的关联性并不能确立ARHGAP22表达、共表达基因、免疫细胞浸润与药物反应之间的因果关系。因此,在实现临床转化之前,尚需开展机制性实验、前瞻性临床验证以及模型性能比较。总体而言,该工作流程为利用公共分子数据集评估候选生物标志物提供了一个可重复的框架,但ARHGAP22的生物学与临床相关性仍需进一步独立证实。
披露
作者声明无利益冲突。
致谢
本研究使用了来自癌症基因组图谱(The Cancer Genome Atlas, TCGA)的公开数据。谨此致谢TCGA研究网络生成并提供了这些资源。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| circlize R 包 | 版本 0.4.16 | CRAN | 用于绘制 circos 图和弦图。 |
| clusterProfiler R 包 | 版本 4.12.0 | Bioconductor | 用于 GO、KEGG 和 GSEA 富集分析。 |
| ComplexHeatmap R 包 | 版本 2.20.0 | Bioconductor | 用于复杂热图可视化及临床注释热图。 |
| e1071 R 包 | 版本 1.7.16 | CRAN | 用于 CIBERSORT 相关分析中的支持向量回归。 |
| enrichplot R 包 | 版本 1.24.0 | Bioconductor | 用于功能富集结果的可视化。 |
| estimate R 包 | 版本 1.0.13 | R 包/源码包 | 用于计算基质、免疫和 ESTIMATE 评分。 |
| ggExtra R 包 | 版本 0.10.1 | CRAN | 用于绘制带有边缘密度分布的散点图。 |
| ggplot2 R 包 | 版本 3.5.1 | CRAN | 用于通用数据可视化。 |
| ggpubr R 包 | 版本 0.6.0 | CRAN | 用于箱线图、小提琴图及统计比较。 |
| ggrepel R 包 | 版本 0.9.5 | CRAN | 用于火山图中避免文本标签重叠。 |
| limma R 包 | 版本 3.60.4 | Bioconductor | 用于表达数据预处理及差异表达相关分析。 |
| oncoPredict R 包 | 版本 1.2 | CRAN | 用于基于转录组数据预测药物敏感性。 |
| org.Hs.eg.db R 包 | 版本 3.19.1 | Bioconductor | 用于基因注释及基因符号与 Entrez ID 之间的转换。 |
| pheatmap R 包 | 版本 1.0.12 | CRAN | 用于热图可视化。 |
| preprocessCore R 包 | 版本 1.68.0 | Bioconductor | 用于 CIBERSORT 相关分析中的分位数标准化。 |
| R 软件 | 版本 4.4.0 | R 统计计算基金会 | 用于统计分析与可视化。 |
| RColorBrewer R 包 | 版本 1.1.3 | CRAN | 用于可视化中的调色板生成。 |
| regplot R 包 | 版本 1.1 | CRAN | 用于列线图可视化。 |
| reshape2 R 包 | 版本 1.4.4 | CRAN | 用于可视化前的数据重塑。 |
| rms R 包 | 版本 6.8.1 | CRAN | 用于构建预后模型、校准分析及列线图相关分析。 |
| scales R 包 | 版本 1.4.0 | CRAN | 用于尺度调整和颜色透明度设置。 |
| survival R 包 | 版本 3.5.8 | CRAN | 用于 Cox 回归和 Kaplan-Meier 生存分析。 |
| survminer R 包 | 版本 0.4.9 | CRAN | 用于 Kaplan-Meier 生存曲线的可视化。 |
| timeROC R 包 | 版本 0.4 | CRAN | 用于时间依赖性 ROC 曲线分析。 |
参考文献
- Winter TD et al. Using Mendelian randomization to investigate etiologic heterogeneity across renal cell carcinoma subtypes. Int J Epidemiol. 2025;54(6):dyaf177. https://doi.org/10.1093/ije/dyaf177
- Hsieh JJ et al. Renal cell carcinoma. Nat Rev Dis Primers. 2017;3:17009. https://doi.org/10.1038/nrdp.2017.9
- Capitanio U et al. Epidemiology of renal cell carcinoma. Eur Urol. 2019;75(1):74-84.
- Siegel RL, Miller KD, Fuchs HE, Jemal A. Cancer statistics, 2022. CA Cancer J Clin. 2022;72(1):7-33.
- Wiechno P et al. Contemporary treatment of metastatic renal cell carcinoma. Med Oncol. 2018;35(12):156. https://doi.org/10.1007/s12032-018-1217-1
- Chen W et al. Targeting renal cell carcinoma with a HIF-2 antagonist. Nature. 2016;539(7627):112-117.
- Rydzanicz M, Wrzesiński T, Bluyssen HA, Wesoły J. Genomics and epigenomics of clear cell renal cell carcinoma: recent developments and potential applications. Cancer Lett. 2013;341(2):111-126.
- Barata PC, Rini BI. Treatment of renal cell carcinoma: current status and future directions. CA Cancer J Clin. 2017;67(6):507-524.
- Chowdhury N, Drake CG. Kidney cancer: an overview of current therapeutic approaches. Urol Clin North Am. 2020;47(4):419-431.
- Gulati S, Vaishampayan U. Current state of systemic therapies for advanced renal cell carcinoma. Curr Oncol Rep. 2020;22(3):26. https://doi.org/10.1007/s11912-020-0892-1
- Haga RB, Ridley AJ. Rho GTPases: regulation and roles in cancer cell biology. Small GTPases. 2016;7(4):207-221.
- Sahai E, Marshall CJ. RHO-GTPases and cancer. Nat Rev Cancer. 2002;2(2):133-142.
- Bustelo XR. RHO GTPases in cancer: known facts, open questions, and therapeutic challenges. Biochem Soc Trans. 2018;46(3):741-760.
- Crosas-Molist E et al. Rho GTPase signaling in cancer progression and dissemination. Physiol Rev. 2022;102(1):455-510.
- Li H, Peyrollier K, Kilic G, Brakebusch C. Rho GTPases and cancer. BioFactors. 2014;40(2):226-235.
- Goka ET, Chaturvedi P, Lopez DTM, Lippman ME. Rac signaling drives clear cell renal carcinoma tumor growth by priming the tumor microenvironment for an angiogenic switch. Mol Cancer Ther. 2020;19(7):1462-1473.
- Thompson JM, Landman J, Razorenova OV. Targeting the RhoGTPase/ROCK pathway for the treatment of VHL/HIF pathway-driven cancers. Small GTPases. 2020;11(1):32-38.
- Feng J et al. RhoJ promotes the progression of clear cell renal cell carcinoma via .the TNF-α/NF-κB axis. Transl Androl Urol. 2025;14(7):1849-1864.
- Guo K et al. Activation of RHO-GTPase gene pattern correlates with adverse clinical outcome and immune microenvironment in clear cell renal cell carcinoma. Clin Exp Med. 2025;25(1):67. https://doi.org/10.1007/s10238-025-01593-3
- Mori M, Saito K, Ohta Y. ARHGAP22 localizes at endosomes and regulates actin cytoskeleton. PLoS One. 2014;9(6):e100271. https://doi.org/10.1371/journal.pone.0100271
- Nakamura F. FilGAP and its close relatives: a mediator of Rho-Rac antagonism that regulates cell morphology and migration. Biochem J. 2013;453(1):17-25.
- Hu SH et al. The weak complex between RhoGAP protein ARHGAP22 and signal regulatory protein 14-3-3 has 1:2 stoichiometry and a single peptide binding mode. PLoS One. 2012;7(8):e41731. https://doi.org/10.1371/journal.pone.0041731
- Mori M et al. Endosomal localization of RacGAP protein ARHGAP22 regulates its GAP activity in human melanoma cells. Anticancer Res. 2022;42(12):5763-5771.
- El-Masry OS, Alamri AM, Alzahrani F, Alsamman K. ADAMTS14, ARHGAP22, and EPDR1 as potential novel targets in acute myeloid leukaemia. Heliyon. 2022;8(3):e09065. https://doi.org/10.1016/j.heliyon.2022.e09065
- Yang C et al. Transcriptomic analysis identified ARHGAP family as a novel biomarker associated with tumor-promoting immune infiltration and nanomechanical characteristics in bladder cancer. Front Cell Dev Biol. 2021;9:657219. https://doi.org/10.3389/fcell.2021.657219
- Schiavoni V et al. Recent advances in the management of clear cell renal cell carcinoma: novel biomarkers and targeted therapies. Cancers (Basel). 2023;15(12):3207. https://doi.org/10.3390/cancers15123207
- Sanz-Moreno V et al. Rac activation and inactivation control plasticity of tumor cell movement. Cell. 2008;135(3):510-523.
- Sakaguchi T et al. Bromodomain protein BRD4 inhibitor JQ1 regulates potential prognostic molecules in advanced renal cell carcinoma. Oncotarget. 2018;9(33):23003-23017.
- Stránská J et al. Copy number variation and clinical response to chemotherapy and bevacizumab in Czech patients with metastatic colorectal cancer. Klin Onkol. 2024;37(4):277-285.
- Parihar JS, Tunuguntla HS. Role of chemokines in renal cell carcinoma. Rev Urol. 2014;16(3):118-121.
- Chen Z, Wu R, Ma J, Zheng J. C chemokines are prognostic biomarkers correlated with diverse immune cell infiltrations in clear cell renal cell carcinoma. Transl Cancer Res. 2022;11(8):2501-2522.
- Şenbabaoğlu Y et al. Tumor immune microenvironment characterization in clear cell renal cell carcinoma identifies prognostic and immunotherapeutically relevant messenger RNA signatures. Genome Biol. 2016;17(1):231. https://doi.org/10.1186/s13059-016-1092-z
- Song DM et al. LIG1 is a novel marker for bladder cancer prognosis: evidence based on experimental studies, machine learning, and single-cell sequencing. Front Immunol. 2024;15:1419126. https://doi.org/10.3389/fimmu.2024.1419126
- Vuong L, Kotecha RR, Voss MH, Hakimi AA. Tumor microenvironment dynamics in clear-cell renal cell carcinoma. Cancer Discov. 2019;9(10):1349-1357.
- Burgers FH et al. Immunological features of clear-cell renal-cell carcinoma and resistance to immune checkpoint inhibitors. Nat Rev Nephrol. 2025;21(10):687-701.
- Davidsson S et al. Infiltration of M2 macrophages and regulatory T cells plays a role in recurrence of renal cell carcinoma. Eur Urol Open Sci. 2020;20:62-71.
- Zhang X et al. Tumor-associated M2 macrophages in the immune microenvironment influence the progression of renal clear cell carcinoma by regulating M2 macrophage-associated genes. Front Oncol. 2023;13:1157861. https://doi.org/10.3389/fonc.2023.1157861
- Tronik-Le Roux D et al. Comprehensive landscape of immune checkpoints uncovered in clear cell renal cell carcinoma reveals new and emerging therapeutic targets. Cancer Immunol Immunother. 2020;69(7):1237-1252.
- Hong J et al. A zinc metabolism-related gene signature for predicting prognosis and characteristics of breast cancer. Front Immunol. 2023;14:1276280. https://doi.org/10.3389/fimmu.2023.1276280
- Xu W et al. Prognostic immunophenotyping clusters of clear cell renal cell carcinoma defined by the unique tumor immune microenvironment. Front Cell Dev Biol. 2021;9:785410. https://doi.org/10.3389/fcell.2021.785410
- Gu J et al. A novel immune-related gene signature for predicting immunotherapy outcomes and survival in clear cell renal cell carcinoma. Sci Rep. 2023;13(1):18922. https://doi.org/10.1038/s41598-023-45966-8