本研究证实,急性呼吸窘迫综合征(ARDS)新生儿的肺部超声(LUS)评分和血清miR-486-3p水平均升高。联合评估这两项指标可提高对疾病严重程度和预后的预测能力,且发现miR-486-3p通过靶向Delta-Like Canonical Notch Ligand 4调控ARDS模型细胞功能。
研究文章
肺部超声评分和血清miR-486-3p在新生儿急性呼吸窘迫综合征中的预后价值
* These authors contributed equally
本文内容
摘要
摘要
本研究旨在评估肺部超声评分(LUS)和血清miR-486-3p在新生儿急性呼吸窘迫综合征(ARDS)中的预后价值,并探讨其潜在机制。研究共纳入112例ARDS新生儿作为病例组,另选取同期出生的100例健康婴儿作为健康对照组。所有新生儿在进入重症监护室后6小时内接受肺部超声检查,并进行LUS评估。采用实时定量PCR检测基因表达水平,通过受试者工作特征(ROC)曲线和Pearson相关性分析评估预后判断效能及变量间的相关性。此外,利用人肺微血管内皮细胞(HPMECs)建立体外ARDS模型,以探究miR-486-3p的潜在作用机制。通过双荧光素酶报告基因实验验证miR-486-3p与Delta-Like Canonical Notch Ligand 4(DLL4)之间的靶向关系。结果显示,ARDS新生儿的LUS评分和血清miR-486-3p水平均显著升高。ROC曲线分析表明,miR-486-3p和LUS均可有效预测新生儿ARDS的预后(AUC分别为0.883和0.873,敏感度分别为96.4%和89.3%,特异度分别为77.4%和73.8%),而miR-486-3p联合LUS的预测效能更优(AUC = 0.929,敏感度92.9%,特异度84.5%)。机制上,miR-486-3p通过靶向DLL4调控ARDS模型细胞的生物学功能。综上所述,联合检测LUS与血清miR-486-3p可能成为评估新生儿ARDS病情严重程度及预测预后的有效手段,但仍需进一步多中心研究验证其广泛适用性。
引言
新生儿急性呼吸窘迫综合征(ARDS)是一种危及生命的严重呼吸系统疾病,主要特征为肺泡表面活性物质功能受损,对新生儿存活构成重大风险1,2。尽管已发展出多种治疗手段,但患病新生儿的整体预后仍不理想3。因此,早期识别疾病严重程度并进行准确的预后评估,对于优化临床干预措施和改善患者结局至关重要。一旦发生ARDS,新生儿肺功能将严重受损,并伴随通气功能和气体交换障碍4。肺部超声可被视为监测ARDS通气状况的首选影像学方法5.,已成为床旁监测ARDS肺部病变的首选影像工具,肺部超声评分(LUS)已广泛应用于新生儿急性呼吸道疾病的诊断,以及重症监护环境中对疾病严重程度和预后的评估6。然而,单一的影像学或实验室检测存在固有缺陷,无法完全满足临床评估需求7。因此,探索新型生物标志物以建立联合评估体系具有重要的临床意义。
microRNA(miRNA)是一类新型的基因调控因子,在急性呼吸窘迫综合征(ARDS)的发病机制中发挥关键作用8。例如,miR-141-3p 的下调与肺纤维化和肺损伤的疾病严重程度密切相关9。miR-124-3p 通过靶向 p65 发挥对 ARDS 的保护作用10。既往高通量测序研究已证实,miR-486-3p 在 ARDS 患者中显著上调11。近期研究强调 hsa_circ_0006892/miR-486-3p 轴可能是参与 ARDS 发生发展的潜在分子机制12。这些发现表明,miR-486-3p 与 ARDS 密切相关。然而,miR-486-3p 在新生儿 ARDS 严重程度及预后判断中的预测和预后价值仍有待进一步阐明。
目前,胸部X线摄影、血气分析和单一生物标志物检测是评估新生儿急性呼吸窘迫综合征(ARDS)的主流方法。胸部影像学检查存在辐射暴露问题,且无法提供实时、重复的监测。血气分析仅能反映急性呼吸功能,对长期预后缺乏预测价值。单一微小RNA(microRNA)检测虽可提供客观的定量结果,但无法反映肺组织的实时形态学变化。与这些传统方法相比,肺部超声(LUS)联合血清miR-486-3p检测整合了床旁影像学与分子检测的优势。
本研究关注符合急性呼吸窘迫综合征(ARDS)标准的新生儿,而非经典的表面活性物质缺乏性呼吸窘迫综合征(RDS)。因此,本研究旨在评估基线肺部超声(LUS)和血清miR-486-3p是否可预测新生儿ARDS的短期死亡率。该研究旨在提供有价值的数据,以增强对新生儿ARDS病情的临床评估及短期预后判断。
方案
本研究获得了永康市第一人民医院医学伦理委员会的伦理批准,严格遵守《赫尔辛基宣言》。
受试者
这项单中心、带有体外实验部分的观察性队列研究于2022年1月至2023年12月期间开展。研究在永康市第一人民医院连续纳入了112名被诊断为急性呼吸窘迫综合征(ARDS)的新生儿。为进行比较,同期在该院出生、无窒息史或宫内窘迫史的健康婴儿被招募作为对照组受试者。
纳入标准:
所有参与者均符合蒙特勒指南(2017年版)中规定的新生儿急性呼吸窘迫综合征诊断标准。诊断经影像学和临床评估证实:X线检查显示双肺弥漫性磨玻璃影,符合肺水肿表现;超声心动图未见左心房高压证据,从而排除心源性肺水肿。其他诊断标准包括症状急性起病、需要机械通气超过3天,且无严重肺外感染。已从新生儿家属处获得知情同意。
排除标准:
排除患有原发性肺泡表面活性物质缺乏、先天性心脏病、代谢性疾病或其他严重基础疾病的新生儿。此外,排除患有肺部或胸壁畸形及其他主要先天性异常的婴儿。排除新生儿呼吸窘迫综合征(RDS)。
临床数据
记录所有参与者的胎龄、性别、入院时出生体重及母亲特征。每名新生儿在进入重症监护室后6小时内接受肺部超声检查,并进行肺部超声评分(LUS)。LUS评分采用最高36分的量表进行,分数越高表示肺部症状越严重。入院后立即采集血样,作为初始临床评估的一部分,并在任何主要治疗干预(如表面活性物质重复给药、通气模式升级或血管活性药物启动)之前完成。健康新生儿的血样在其入组时采集。为分离血清,将全血置于血清分离管中,在室温下静置30分钟,以确保完全凝固。随后在4 °C条件下以1500 × g 离心15分钟。小心吸取上层澄清血清,分装至无菌冻存管中,并立即储存在-80 °C超低温冰箱中,用于后续实验。仅使用澄清且无溶血的血清样本进行后续实验。使用过的采血管及剩余血液均按照机构规定作为医疗生物废物处理。
分组
根据入院后24小时的初始胸部X线检查结果及病情严重程度评估,所有新生儿被分为两个不同组别:轻度组(I–II级)和重度组(III–IV级)。胸部X线解读显示,I级表现为双侧肺部透明度降低,肺实质内可见细小颗粒影及网状阴影;II级提示病变累及肺野中带和外带,并出现支气管充气征;III级表现为双肺透明度显著降低,导致心脏和膈肌边缘模糊不清;IV级则支气管充气征明显,肺部几乎完全实变,呈现“白肺”样改变。
被诊断为急性呼吸窘迫综合征(ARDS)的新生儿在收入新生儿重症监护室后接受了综合管理方案。该方案包括机械通气、镇静、肺表面活性物质给药、抗炎治疗、营养支持、排痰辅助以及液体补充措施。新生儿ARDS的诊断作为本研究的起点。研究终点定义为患者成功康复并出院,或因治疗无效导致死亡。根据临床结局,将研究对象分为两组:生存组与死亡组。
细胞培养与处理
人肺微血管内皮细胞(HPMECs)在添加了10%胎牛血清、100 U/mL青霉素和100 µg/mL链霉素的DMEM培养基中进行培养。细胞置于含5% CO₂的湿润培养箱中,于37 °C条件下维持培养。为建立急性呼吸窘迫综合征(ARDS)细胞模型,使用浓度为1 mg/L的脂多糖(LPS)处理细胞13,14。LPS处理后,在倒置显微镜下观察到细胞轻微收缩,表明模型建立成功。实验结束后,废弃的培养液、死亡细胞及一次性培养材料均作为生物危害废物予以丢弃。
细胞转染与分组
将HPMEC接种于培养板中,培养至70%融合度后进行转染。按照制造商说明书制备转染复合物。细胞分为以下各组:空白对照组、miR-486-3p模拟物组(mimic)、模拟物阴性对照组(mimic negative control)、miR-486-3p抑制剂组(inhibitor)、抑制剂阴性对照组(inhibitor negative control)、miR-486-3p模拟物+DLL4过表达质粒组(OE-DLL4)以及miR-486-3p模拟物+空载过表达质粒组(OE-NC)。将转染复合物加入相应孔中,孵育4–6小时。随后更换为新鲜完全培养基,继续培养24–48小时以进行后续实验。转染成功的标志为细胞融合状态稳定,且无明显细胞死亡。
实时定量 PCR
采用RNA提取试剂从血清样本和培养细胞中提取总RNA。使用分光光度计测定RNA浓度和纯度,A260/A280比值在1.8–2.1之间的样本被认为适合进行后续分析。使用逆转录试剂盒合成互补DNA(cDNA)。随后使用实时荧光定量PCR系统进行定量PCR,扩增条件如下:95 °C预变性3分钟,随后进行40个循环,每个循环为95 °C变性10秒,60 °C退火延伸30秒。对于microRNA的检测,以U6 snRNA作为内参,采用2-ΔΔCt法计算miR-486-3p的相对表达水平。对于mRNA的定量,采用相同的2-ΔΔCt算法,将DLL4的表达水平标准化至GAPDH mRNA。引物序列如下:miR-486-3p上游引物:5'-GTATGACGGGGCAGCTCAGTA-3',miR-486-3p下游引物:5'-CAGTGCGTGTCGTGGAGT-3';U6上游引物:5'-GGAACGATACAGAGAAGATTAGC-3',U6下游引物:5'-TGGAACGCTTCACGAATTTGCG-3';DLL4上游引物:5'-AGGTGCCACTTCGGTTACAC-3',DLL4下游引物:5'-GGGAGAGCAAATGGCTGATA-3';GAPDH上游引物:5'-GCAAATTCCATGGCACCGT-3',GAPDH下游引物:5'-TCGCCCCACTTGATTTTGG-3'。
CCK-8细胞增殖检测
将转染的细胞以每孔1 × 10³个细胞的密度接种至96孔板中,分别培养24、48和72小时。随后吸除培养基,用1× PBS洗涤细胞两次。接着每孔加入100 µL新鲜的1× PBS和10 µL CCK-8溶液,于37 °C孵育2小时。使用酶标仪在450 nm波长处测定吸光度,并根据吸光度值评估细胞增殖情况。实验组中吸光度随时间变化的趋势表明该检测成功实施。
流式细胞术检测细胞凋亡实验
细胞用0.25%胰蛋白酶消化后,收集所得细胞悬液,在4 °C条件下以1500 × g 离心5分钟。弃去上清液,用预冷的1× PBS洗涤细胞沉淀三次。随后将细胞重悬于500 µL的1×结合缓冲液中,加入5 µL Annexin V-FITC和5 µL碘化丙啶(PI)。轻轻混匀后,样品在室温避光条件下孵育40分钟。通过流式细胞术检测细胞凋亡,并使用相应的流式细胞术分析软件分析数据。正常对照组凋亡率较低,急性呼吸窘迫综合征(ARDS)模型组凋亡率显著升高,表明实验操作成功。
荧光素酶报告基因检测
使用在线 TargetScan 数据库(http://www.targetscan.org/vert_72/)鉴定 miR-486-3p 的潜在靶基因。在确定预测的结合位点后,构建了包含相应结合序列的野生型(DLL4-WT)和突变型(DLL4-MUT)荧光素酶报告质粒。将 DLL4-WT 和 DLL4-MUT 载体分别与 miR-486-3p 模拟物或抑制剂共转染至 HPMEC 细胞中。随后使用双荧光素酶报告基因检测试剂盒测定相对荧光素酶活性。根据制造商说明书,利用发光仪检测生物发光信号。在 miR-486-3p 过表达后,若 DLL4-WT 组的荧光素酶活性显著降低,则表明靶基因验证成功。
本研究中使用的所有试剂、耗材和实验室设备的详细信息见随附的材料表。
统计学方法
统计分析和数据可视化使用 SPSS 26.0 版本和 GraphPad Prism 9.0 版本进行。测量数据以均值 ± 标准差表示,两组独立样本均值之间的比较采用独立样本 t 检验。对于三组或更多组之间的比较,采用单因素方差分析(ANOVA)和重复测量方差分析(repeated-measures ANOVA),并随后进行 Tukey 事后多重比较检验以识别组间差异。分类数据以例数(百分比)表示,组间比较采用卡方检验进行分析。非参数数据采用 Wilcoxon Mann-Whitney 检验。此外,构建 ROC 曲线以评估血清 miR-486-3p 表达水平和肺部超声(LUS)在判断儿童急性呼吸窘迫综合征(ARDS)患者死亡风险中的预测价值。采用 Pearson 相关性分析检验相关性。所有实验组均设有三个独立的生物学重复和技术重复。统计学分析单元定义为一次独立实验,每个生物学重复代表来自不同传代次数的独立细胞培养批次,技术重复用于减少单次实验内的变异。技术重复的数据首先取均值,随后基于生物学重复的均值进行统计分析。统计学显著性设定为 p < 0.05。
结果
各组间具有可比性的基线数据
研究中纳入的婴儿的一般特征见表1。两组在基线人口学特征方面无显著差异:孕周(36.07 ± 2.71 vs. 35.72 ± 2.64 周,p = 0.347)、男性比例(59.0% vs. 66.1%,p = 0.290)、出生体重(3.39 ± 0.57 vs. 3.33 ± 0.55 kg,p = 0.437)、母亲年龄(29.18 ± 4.00 vs. 29.66 ± 4.05 岁,p = 0.387)以及分娩方式(经阴道分娩:54.0% vs. 58.0%;剖宫产:46.0% vs. 42.0%,p = 0.554),表明这两组具有可比性。根据胸部X线评估,在ARDS组中,72例(64.3%)被归类为轻度(I-II级),而40例(35.7%)被归类为重度(III-IV级)。
ARDS 严重程度与患者预后相关
存活组与死亡组儿童急性呼吸窘迫综合征(ARDS)生存结局的比较分析见表2。在112例诊断为ARDS的新生儿中,84例(75%)存活,28例(25%)死亡。值得注意的是,两组在婴儿年龄、性别、出生体重、母亲年龄、分娩方式、羊水特征、病因及其他变量方面均无统计学显著差异(p > 0.05)。然而,ARDS严重程度在两组间存在显著差异(p < 0.01),提示其为关键的预后因素。
ARDS 患者中 miR-486-3p 和肺部超声评分(LUS)升高。RT-qPCR 分析显示,与健康对照组相比,患有 ARDS 的新生儿血清 miR-486-3p 水平显著升高。此外,在 ARDS 队列中,重症组的水平明显高于轻症组(P < 0.001)(图 1A)。此外,重度 ARDS 组的 LUS 高于轻度 ARDS 组(p < 0.001)(图 1B)。根据临床结局对 ARDS 患者进行分组时,死亡组的 LUS 和 miR-486-3p 水平明显高于存活组(图 1C、D)。在非存活患者中,LUS 与血清 miR-486-3p 水平之间存在显著正相关关系(r = 0.832,p < 0.001)(图 1E)。
联合检测可提高预后预测的准确性
根据ROC分析方案,我们评估了单一指标和联合指标的预后效能。LUS和miR-486-3p预测短期死亡率的AUC值分别为0.873(95% CI:0.809-0.936)和0.883(95% CI:0.822-0.944)。其敏感性分别为89.3%和96.4%,特异性分别为73.8%和77.4%。LUS和miR-486-3p的最佳截断值分别为15.500和1.465。此外,联合预测模型的AUC为0.929(95% CI:0.883-0.975),在最佳截断值1.659时表现出92.9%的敏感性和84.5%的特异性(图1F)。
miR-486-3p 上调损害细胞功能
在完成细胞培养和LPS干预方案后,我们使用HPMECs构建了体外ARDS细胞模型。qPCR结果显示,LPS刺激后miR-486-3p的表达随时间逐渐升高(图2A)。通过过表达或敲低miR-486-3p,以研究其对ARDS模型细胞的影响(图2B)。根据CCK-8和流式细胞术检测方案,检测了细胞增殖和凋亡情况。miR-486-3p过表达显著抑制细胞增殖并促进细胞凋亡;相反,miR-486-3p敲低则缓解了LPS诱导的细胞损伤(图2C、D)。
miR-486-3p 下调 DLL4 的表达
根据质粒构建和双荧光素酶报告基因实验方案,我们验证了 miR-486-3p 与 DLL4 之间的相互作用。生物信息学预测证实,miR-486-3p 与 DLL4 的 3'UTR 区域之间存在一个保守的结合位点(图 3A)。在过表达 miR-486-3p 后,DLL4 野生型组的荧光素酶活性显著降低,而突变组则未观察到明显变化(图 3B),证明 DLL4 是 miR-486-3p 的直接靶基因。在细胞模型中,经 LPS 处理后,DLL4 的表达呈时间依赖性下降(图 3C)。调控 miR-486-3p 的表达也可负向调节 DLL4 的水平(图 3D)。
在临床样本中,ARDS新生儿的DLL4表达水平低于健康对照组,且在死亡组中进一步降低(图3E–F)。在非存活患者中观察到miR-486-3p与DLL4之间存在负相关关系(r = -0.795,P < 0.001)(图3G)。所有DLL4的qPCR检测均设置三个技术重复,结果稳定。
DLL4 可逆转 miR-486-3p 介导的细胞损伤
采用miR-486-3p模拟物与DLL4过表达质粒共转染方案后,我们进行了挽救实验。qPCR证实,转染OE-DLL4后DLL4的表达得到有效恢复(图4A)。功能实验显示,DLL4的过表达部分逆转了miR-486-3p对细胞增殖的抑制作用及其促凋亡效应(图4B、C)。这些结果表明,miR-486-3p通过靶向DLL4部分调控细胞活性。
数据可用性:
本研究中生成或分析的所有数据均作为补充文件1提供。
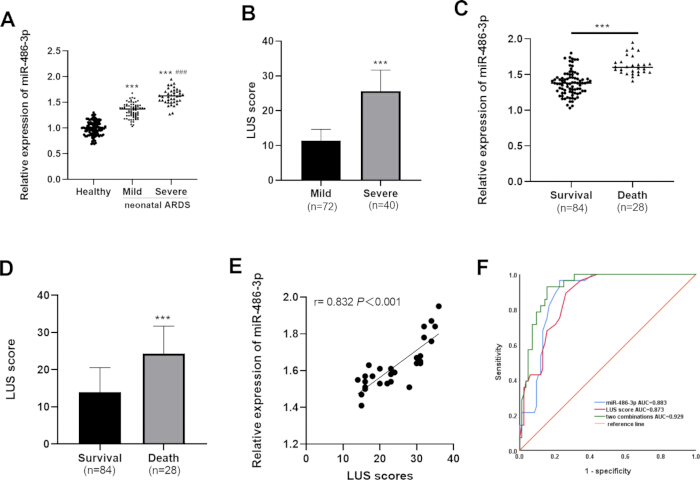
图1:各组间LUS与血清miR-486-3p水平的比较。(A)健康新生儿与ARDS新生儿血清miR-486-3p水平。(B)健康新生儿与ARDS新生儿的LUS值。(C)存活组与死亡组血清miR-486-3p水平。(D)存活组与死亡组的LUS值。(E)非存活ARDS新生儿血清miR-486-3p与LUS的相关性分析。(F)单独LUS、单独miR-486-3p及联合检测预测新生儿ARDS预后的ROC曲线。所有定量数据均以均值±标准差表示;误差线代表标准差。*** = p <0.001,与健康组比较;### = p <0.001,与轻度ARDS组比较。请点击此处查看该图的放大版本。
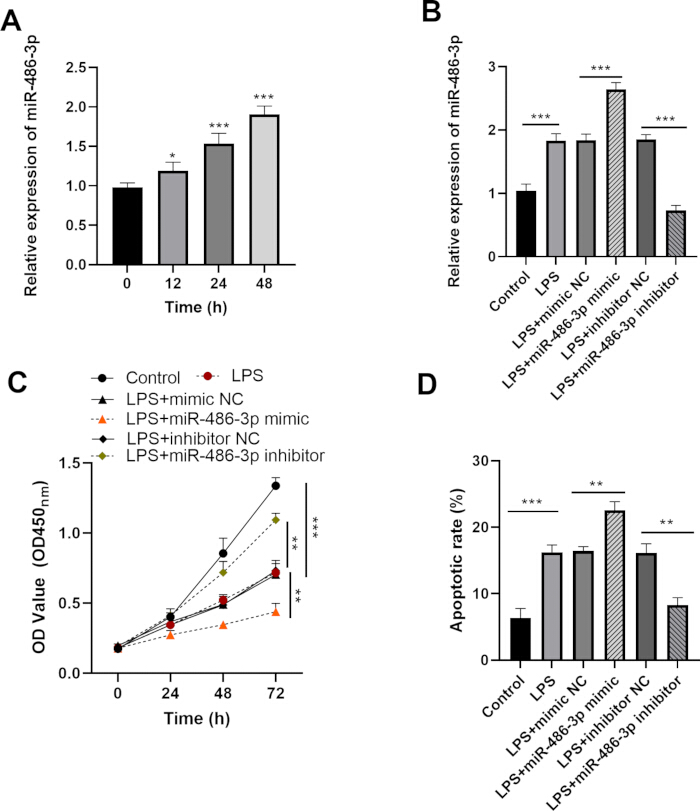
图 2:miR-486-3p 对急性呼吸窘迫综合征(ARDS)模型细胞的作用。(A)LPS 处理后 HPMEC 细胞中 miR-486-3p 表达的时程变化。(B)miR-486-3p 过表达与敲低干预后的相对表达水平。(C)通过 CCK-8 法检测 miR-486-3p 表达改变后的细胞增殖活性。(D)通过流式细胞术检测 miR-486-3p 表达改变后的细胞凋亡率。所有数据均以均值 ± 标准差表示;误差线代表标准差。统计学标记:* = p <0.05,** = p <0.01,*** = p <0.001。请点击此处查看该图的高清版本。
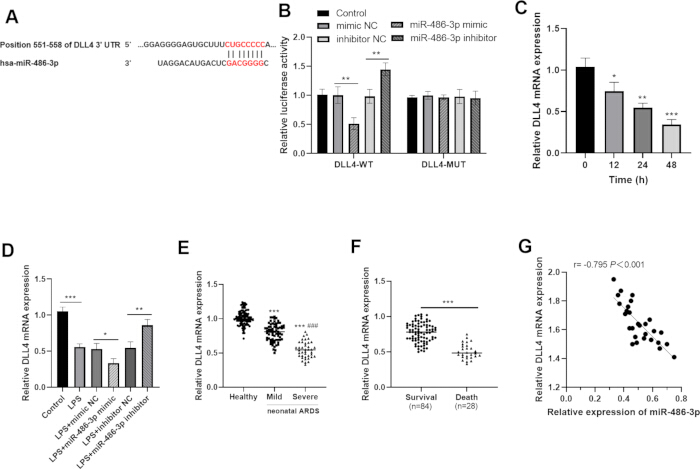
图3:miR-486-3p与DLL4之间靶向关系的验证。(A)miR-486-3p与DLL4的3'UTR之间预测结合位点的示意图。(B)双荧光素酶报告基因实验验证了miR-486-3p与DLL4之间的靶向关系。(C)LPS处理后HPMEC中DLL4表达的动态变化。(D)miR-486-3p过表达或敲低后DLL4的表达水平。(E)健康新生儿与ARDS新生儿血清中DLL4水平。(F)ARDS新生儿存活组与死亡组中DLL4水平。(G)非存活ARDS新生儿血清miR-486-3p与DLL4的相关性分析。所有定量数据均以均值±标准差表示;误差线代表标准差。统计学标记:* = p <0.05,** = p <0.01,*** = p <0.001,与健康组比较;### = p <0.001,与轻度ARDS组比较。请点击此处查看该图的放大版本。
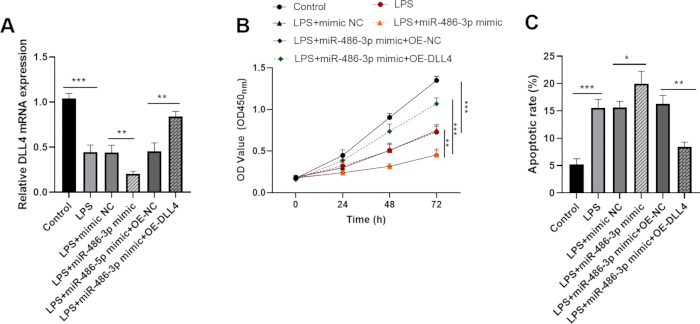
图4:miR-486-3p靶向DLL4对ARDS模型细胞的影响。(A)共转染miR-486-3p模拟物与DLL4过表达质粒后DLL4表达水平的检测。(B)DLL4回补后细胞增殖活性的变化。(C)DLL4回补后细胞凋亡率的变化。所有数据均以均值±标准差表示;误差线代表标准差。统计学标记:* = p <0.05,** = p <0.01,*** = p <0.001。请点击此处查看该图的放大版本。
| 变量 | 健康组 (n=100) | 新生儿 ARDS 组 (n=112) | p 值 |
| 妊娠周数(周) | 36.07 ± 2.71 | 35.72 ± 2.64 | 0.347 |
| 性别(男性,%) | 59 (59.0 %) | 74 (66.1 %) | 0.29 |
| 出生体重(kg) | 3.39 ± 0.57 | 3.33 ± 0.55 | 0.437 |
| 母亲年龄(岁) | 29.18 ± 4.00 | 29.66 ± 4.05 | 0.387 |
| 分娩方式 | 0.439 | ||
| 阴道分娩 | 54 (54.0 %) | 65 (58.0 %) | |
| 剖宫产 | 46 (46.0 %) | 47 (42.0 %) | |
| ARDS 分级 | --- | ||
| I-II 级 | --- | 72 (64.3 %) | |
| III-IV 级 | --- | 40 (35.7 %) |
表1:纳入婴儿的基线特征。 本表总结了健康新生儿和患有急性呼吸窘迫综合征(ARDS)新生儿的基线人口统计学信息。连续变量数据以均值±标准差表示,分类变量以例数(百分比)表示。P值表示组间统计学差异。缩写:ARDS = 急性呼吸窘迫综合征。
| 变量 | 存活组 (n=84) | 死亡组 (n=28) | p 值 |
| 妊娠周数(周) | 35.95 ± 2.58 | 35.04 ± 2.76 | 0.112 |
| 性别(男性,%) | 53 (63.1 %) | 21 (75.0%) | 0.253 |
| 出生体重(kg) | 3.37 ± 0.58 | 3.23 ± 0.42 | 0.248 |
| 母亲年龄(岁) | 29.49 ± 3.82 | 30.18 ± 4.74 | 0.438 |
| 分娩方式 | 0.444 | ||
| 阴道分娩 | 47 (56.0 %) | 18 (64.3 %) | |
| 剖宫产 | 37 (44.0 %) | 10 (35.7 %) | |
| 羊水异常 | 6 (9.5 %) | 4 (14.3 %) | 0.485 |
| ARDS 分级 | 0.001** | ||
| I-II 级 | 61 (72.6 %) | 11 (39.3 %) | |
| III-IV 级 | 23 (27.4 %) | 17 (60.7%) | |
| 病因 | 0.827 | ||
| 窒息 | 33 (39.3 %) | 12 (42.9 %) | |
| 肺炎 | 17 (20.2 %) | 6 (21.4 %) | |
| 败血症 | 12 (14.3 %) | 2 (7.1 %) | |
| 胎粪吸入综合征 | 22 (26.2 %) | 8 (28.6 %) |
表2:新生儿急性呼吸窘迫综合征(ARDS)存活组与死亡组临床数据比较。 本表比较了存活与非存活的ARDS新生儿之间的临床指标。连续性数据以均值±标准差表示,分类数据以例数(百分比)表示。p值表示两组间的统计学差异。** = p<0.01。缩写:ARDS = 急性呼吸窘迫综合征。
补充文件 1: 支持本研究结果的原始临床和实验数据集,包括肺部超声评分(LUS)、血清 miR-486-3p 表达、DLL4 表达以及基于细胞实验结果的个体水平测量数据。请点击此处下载该文件。
讨论
新生儿急性呼吸窘迫综合征(ARDS)是危重新生儿发生呼吸衰竭和早期死亡的主要原因15。早期且准确地评估疾病严重程度和预后,是实施个体化干预和降低病死率的前提。越来越多的证据证实,微小RNA(microRNA)参与ARDS的病理进展过程,并可作为有前景的循环生物标志物16。研究表明,在患有急性肺损伤/ARDS的脓毒症患者中,miR-155水平显著升高17。此外,研究发现被诊断为ARDS的儿童血清中miR-629-5p水平升高18。血清miR-34a与新生儿呼吸窘迫综合征(RDS)的严重程度和预后密切相关19。新近研究显示,miR-375可作为新生儿ARDS的诊断和预后生物标志物20。与上述已报道的分子类似,血清miR-486-3p可通过定量PCR在外周血中稳定检测,适用于新生儿重症监护病房(NICUs)的快速筛查。与主要反映疾病早期发生的miR-375和miR-34a相比,miR-486-3p的表达水平与肺部病变的严重程度相关性更强,并随着肺损伤的进展动态变化。当与肺部超声(LUS)联合应用时,其对短期死亡率的预测准确性更高。然而,miR-486-3p的疾病特异性相对较低,与已确立的miRNA生物标志物相比,相关的临床研究证据仍较为有限。总体而言,miR-486-3p有望作为新生儿ARDS辅助诊断或预后预测的标志物。
肺部超声(LUS)是一种成熟的床旁影像学指标,基于肺组织的超声特征来评估肺通气状况21。值得注意的是,LUS可作为评估肺泡通气程度的有效定量指标22。已有研究证实其在评估新生儿急性呼吸窘迫综合征(ARDS)严重程度及预后方面的价值23。与既往研究一致,本临床研究发现,患ARDS新生儿的LUS测量值显著高于健康新生儿。此外,在患病新生儿中,重度亚组的LUS值明显高于轻度亚组,表明LUS读数升高与肺不张、肺水肿和肺实变的严重程度呈直接相关关系24。我们的研究结果进一步显示,最终死亡的患儿其LUS值也显著高于存活者。在非存活新生儿中,LUS与血清miR-486-3p之间存在显著的正相关关系,进一步支持了这两个指标的协同应用价值。每种方法均有其固有特点:LUS无辐射、便携,适用于实时床旁监测,但其结果解读高度依赖操作者的经验,且易受主观偏倚影响;血清miR-486-3p检测则提供客观、可重复的定量结果,但无法反映肺组织的实时形态学变化。在临床实践中,建议在新生儿重症监护病房中常规联合使用这两种方法,适用于对疑似或确诊ARDS的新生儿进行早期风险分层、疾病进展的定期动态评估以及短期临床预后的辅助判断。然而,该方法不能替代确定性的影像学检查或病因学检查,在合并其他炎症性肺部疾病的新生儿中应用时特异性有限。此外,由于本研究为单中心研究,其对不同地区人群的适用性仍有待进一步验证。
临床上,我们观察到升高的肺部超声(LUS)评分联合高血清miR-486-3p水平与新生儿急性呼吸窘迫综合征(ARDS)的不良预后相关,提示miR-486-3p可能与未成熟肺组织中严重的肺血管损伤及血管修复能力受损密切相关。我们的体外细胞实验进一步支持了这一临床观察,结果显示miR-486-3p可直接调控内皮细胞的增殖与凋亡,而这两个核心过程正是新生儿肺血管完整性与修复的关键环节。此外,已有研究证实,miRNA在多种细胞过程中发挥重要作用25,26。目前普遍认为,miRNA主要通过转录后调控靶基因发挥作用,主要包括miRNA剪接及对蛋白质翻译的抑制27。DLL4基因在血管发育和血管生成过程中具有重要作用28。研究表明,microRNA-30家族可通过靶向DLL4调控血管生成过程中的内皮细胞行为29。这些发现提示,内皮细胞中DLL4的调控可能与新生儿ARDS中的肺血管损伤相关。在本研究中,我们鉴定并验证了miR-486-3p与DLL4之间的靶向关系。后续分析显示,miR-486-3p表达升高显著抑制脂多糖(LPS)诱导的人肺微血管内皮细胞(HPMEC)增殖,并促进其凋亡。重要的是,DLL4的表达可在一定程度上逆转miR-486-3p介导的上述效应。这表明miR-486-3p通过靶向DLL4影响HPMEC功能,进而调控新生儿ARDS的进展。然而,其是否直接导致肺血管功能障碍并参与ARDS的发生,仍有待进一步验证。值得注意的是,DLL4仅能部分逆转miR-486-3p诱导的细胞变化。作为一种典型的miRNA,miR-486-3p可调控多个下游靶基因。未来的研究将聚焦于鉴定更多靶基因,以阐明miR-486-3p在新生儿ARDS中的完整作用机制。
最后需要指出的是,关键实验步骤的严格标准化可确保数据的可靠性和可重复性。我们统一了样本采集流程,采用标准化的细胞培养和转染方案,并设置独立重复实验以尽量减少实验误差。常见的操作问题及解决方案总结如下:对于肺部超声(LUS)评估,应标准化12区域扫描方案和统一评分规则,并调整新生儿体位以获得清晰图像。对于血清miRNA检测,应避免反复冻融,验证RNA纯度(A260/A280 = 1.8–2.1),并设置技术重复。对于LPS诱导的细胞模型,应使用新鲜配制的1 mg/L LPS并保持稳定的培养条件。转染过程中应优化细胞融合度和试剂比例,并更换培养基以降低细胞毒性。双荧光素酶检测应确保细胞完全裂解并执行标准化操作。
总体而言,与传统的胸部影像学、血气分析和单一生物标志物检测等方法相比,联合使用肺部超声(LUS)和miR-486-3p的策略具有无辐射、成本低、操作简便的优点,并且预测效能更优。该方法可作为新生儿急性呼吸窘迫综合征(ARDS)可靠的辅助预后评估工具。在临床实践中,该方法可用于新生儿重症监护病房中的早期风险分层和病情动态监测,也可作为多中心研究的统一评估指标。在机制层面,经验证的miR-486-3p/DLL4轴为探索病理机制及靶向治疗提供了新的研究方向。然而,该联合策略也存在固有的技术局限性:LUS结果受操作者间差异影响,miR-486-3p对炎性肺部疾病缺乏特异性。此外,该方法仅支持单时间点检测,不能替代确诊性的影像学检查或病因学检查。
尽管研究结果令人鼓舞,但仍存在若干局限性值得重视。首先,单中心研究设计限制了我们结论的普适性。其次,缺乏外部验证队列来确认LUS/miR-486-3p组合预测性能的稳健性。第三,血清miR-486-3p仅在单一时间点进行检测,未能捕捉其与疾病进展之间的动态关联。第四,缺乏补充性的蛋白分析以及体外/体内验证,限制了我们对机制推论的可靠性。最后,miR-486-3p在新生儿急性呼吸窘迫综合征(ARDS)病理生理过程中的具体作用仍尚未完全阐明,有待进一步研究。综上所述,诊断为ARDS的新生儿中升高的LUS评分及血清miR-486-3p水平在临床实践中具有重要的参考价值。联合评估这两种生物标志物可能有助于准确预测新生儿ARDS的病情严重程度及预后,因而具备一定的临床应用价值。
披露
Grammarly 用于英文表达优化、语法检查和格式标准化。所有研究思路、实验、数据和结论均为作者的原创工作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 mL PCR管 | Axygen | PCR-02-C | |
| 0.25% 胰蛋白酶-EDTA溶液 | Gibco (Thermo Fisher) | 25200056 | |
| 1.5 mL 微量离心管 | Axygen | MCT-150-C | |
| 5% CO2 恒湿细胞培养箱 | Thermo Fisher | 3111 | |
| 6孔细胞培养板 | Corning | 3516 | |
| 96孔细胞培养板 | Corning | 3599 | |
| 无水乙醇 | Sigma-Aldrich | E7023 | |
| Annexin V-FITC 凋亡检测试剂盒 | BD Biosciences | 556547 | |
| 台式离心机 | Eppendorf | 5810R | |
| 生物安全柜 | Thermo Fisher | 1300 Series A2 | |
| CCK-8 细胞计数试剂盒 | Dojindo Molecular Technologies | CK04 | |
| 一次性无菌采血管 | BD Vacutainer | 367815 | |
| DLL4 过表达质粒 (OE-DLL4) | GenePharma | EX-M02151 | |
| DLL4-MUT 荧光素酶报告质粒 | GenePharma | PGL3-DLL4-MUT | |
| DLL4-WT 荧光素酶报告质粒 | GenePharma | PGL3-DLL4-WT | |
| DMEM 高糖培养基 | Gibco (Thermo Fisher) | 11965092 | |
| 双荧光素酶报告基因检测试剂盒 | Biolab | BL101A | |
| 酶联免疫吸附测定(ELISA)读板仪 | Thermo Fisher | Multiskan FC | |
| 胎牛血清(FBS) | Gibco (Thermo Fisher) | 10099141C | |
| 滤芯吸头(10 μL, 200 μL, 1000 μL) | Axygen | TF-10-R-S, TF-200-R-S, TF-1000-R-S | |
| 流式细胞仪 | BD Biosciences | FACSCalibur | |
| 流式细胞术专用管 | BD Biosciences | 352054 | |
| 高速冷冻离心机 | Eppendorf | 5424R | |
| 大肠杆菌O111:B4来源脂多糖(LPS) | Sigma-Aldrich | L2630 | |
| 肺部超声系统 | Mindray | M9 | |
| 微量分光光度计 | Thermo Fisher | NanoDrop 2000 | |
| miR-486-3p 抑制剂 | RiboBio | HmiR0000486-AS | |
| miR-486-3p 模拟物 | RiboBio | HmiR0000486 | |
| miR-486-3p qPCR 引物组 | RiboBio | HmiRQP0486 | |
| 阴性对照抑制剂(NC) | RiboBio | HmiR0001-AS | |
| 阴性对照模拟物(NC) | RiboBio | HmiR0001 | |
| 阴性对照过表达质粒(OE-NC) | GenePharma | EX-NEG | |
| 青霉素-链霉素溶液(100×) | Gibco (Thermo Fisher) | 15140122 | |
| 磷酸盐缓冲液(PBS)1× | Gibco (Thermo Fisher) | 10010023 | |
| 移液器套装(10 μL, 20 μL, 200 μL, 1000 μL) | Eppendorf | Research Plus | |
| 碘化丙啶(PI)染色液 | BD Biosciences | 556463 | |
| 实时定量PCR系统 | Applied Biosystems (Thermo Fisher) | 7500 Fast | |
| 无RNase水 | Invitrogen (Thermo Fisher) | 10977015 | |
| RT-PCR快速预混液 | Toyobo | FSQ-101 | |
| 一次性无菌移液管 | Corning | 4487, 4488, 4489 | |
| SYBR Green实时PCR预混液 | Toyobo | QPK-201 | |
| Trizol试剂 | Invitrogen (Thermo Fisher) | 15596026 | |
| U6 snRNA qPCR引物组 | RiboBio | HmiRQP0001 | |
| 涡旋混合器 | Scientific Industries | Vortex-Genie 2 |
参考文献
- Chi M, Mei YB, Feng ZC. A review on neonatal acute respiratory distress syndrome. Zhongguo Dang Dai Er Ke Za Zhi. 2018;20(9):724-728.
- Garcia MJ, Amarelle L, Malacrida L, Briva A. Novel opportunities from bioimaging to understand the trafficking and maturation of intracellular pulmonary surfactant and its role in lung diseases. Front Immunol. 2023;14:1250350.
- Wu H, et al. The value of oxygen index and base excess in predicting the outcome of neonatal acute respiratory distress syndrome. J Pediatr (Rio J). 2021;97(4):409-413.
- Coppola S, et al. Respiratory mechanics, lung recruitability, and gas exchange in pulmonary and extrapulmonary acute respiratory distress syndrome. Crit Care Med. 2019;47(6):792-799.
- Bello G, Blanco P. Lung ultrasonography for assessing lung aeration in acute respiratory distress syndrome: a narrative review. J Ultrasound Med. 2019;38(1):27-37.
- Wu HL, et al. Lung ultrasound score for monitoring the withdrawal of extracorporeal membrane oxygenation on neonatal acute respiratory distress syndrome. Heart Lung. 2024;63:9-12.
- King A, Blank D, Bhatia R, Marzbanrad F, Malhotra A. Tools to assess lung aeration in neonates with respiratory distress syndrome. Acta Paediatr. 2020;109(4):667-678.
- Zhu Z, et al. Whole blood microRNA markers are associated with acute respiratory distress syndrome. Intensive Care Med Exp. 2017;5(1):38.
- Long G, Zhang Q, Yang X, Sun H, Ji C. Diagnostic and predictive significance of serum miR-141-3p in acute respiratory distress syndrome patients with pulmonary fibrosis. Tohoku J Exp Med. 2024;262(3):157-162.
- Liang Y, et al. MiR-124-3p helps to protect against acute respiratory distress syndrome by targeting p65. Biosci Rep. 2020;40(5).
- Najafipour R, et al. Screening for differentially expressed microRNAs in BALF and blood samples of infected COVID-19 ARDS patients by small RNA deep sequencing. J Clin Lab Anal. 2022;36(11):e24672.
- Zhang S, et al. Clinical significance and potential mechanism of hsa_circ_0006892 in acute respiratory distress syndrome complicated with pulmonary fibrosis. Mol Biol Rep. 2024;51(1):1120.
- Yao MY, et al. Long non-coding RNA MALAT1 exacerbates acute respiratory distress syndrome by upregulating ICAM-1 expression via microRNA-150-5p downregulation. Aging (Albany NY). 2020;12(8):6570-6585.
- Zhang C, Ji Y, Wang Q, Ruan L. MiR-338-3p is a biomarker in neonatal acute respiratory distress syndrome and has roles in the inflammatory response of ARDS cell models. Acta Med Okayama. 2022;76(6):635-643.
- Shi S, et al. Evaluation of the neonatal sequential organ failure assessment and mortality risk in neonates with respiratory distress syndrome: a retrospective cohort study. Front Pediatr. 2022;10:911444.
- Martucci G, et al. Identification of a circulating miRNA signature to stratify acute respiratory distress syndrome patients. J Pers Med. 2020;11(1).
- Wang ZF, Yang YM, Fan H. Diagnostic value of miR-155 for acute lung injury/acute respiratory distress syndrome in patients with sepsis. J Int Med Res. 2020;48(7):300060520943070.
- Zhang C, Ji Y, Wang Q, Ruan L. MiR-629-5p may serve as a biomarker for pediatric acute respiratory distress syndrome and can regulate the inflammatory response. Pediatr Neonatol. 2024. doi:10.1016/j.pedneo.2024.05.003.
- Li Q, Chen Y, Lin L. Value of serum miR-34a and Ang-1 in severity evaluation and prognosis of neonatal respiratory distress syndrome. Emerg Med Int. 2022;2022:5480026.
- Deng Y, Zhang R, Jiang X. Association of umbilical cord blood miR-375 with neonatal respiratory distress syndrome and adverse neonatal outcomes in premature infants. Acta Biochim Pol. 2022;69(3):605-611.
- Ostras O, Shponka I, Pinton G. Ultrasound imaging of lung disease and its relationship to histopathology: an experimentally validated simulation approach. J Acoust Soc Am. 2023;154(4):2410-2425.
- Soliman RM, et al. Prediction of extubation readiness using lung ultrasound in preterm infants. Pediatr Pulmonol. 2021;56(7):2073-2080.
- Huang L, Ye D, Wang J. Analysis of diagnosing neonatal respiratory distress syndrome with lung ultrasound score. Pak J Med Sci. 2022;38(5):1101-1106.
- Chardoli M, et al. Lung ultrasound in predicting COVID-19 clinical outcomes: a prospective observational study. J Am Coll Emerg Physicians Open. 2021;2(6):e12575.
- Jafari N, Abediankenari S. Role of microRNAs in immunoregulatory functions of epithelial cells. BMC Immunol. 2024;25(1):84.
- Sun LL, Li WD, Lei FR, Li XQ. The regulatory role of microRNAs in angiogenesis-related diseases. J Cell Mol Med. 2018;22(10):4568-4587.
- Hynes C, Kakumani PK. Regulatory role of RNA-binding proteins in microRNA biogenesis. Front Mol Biosci. 2024;11:1374843.
- Chowdhury TA, Li K, Ramchandran R. Lessons learned from a lncRNA odyssey for two genes with vascular functions, DLL4 and TIE1. Vascul Pharmacol. 2019;114:103-109.
- Bridge G, et al. The microRNA-30 family targets DLL4 to modulate endothelial cell behavior during angiogenesis. Blood. 2012;120(25):5063-5072.