本方案旨在评估鲁斯可皂苷元在鼻咽癌细胞中的抗肿瘤功效。文中详细介绍了包括细胞活力、迁移、凋亡和铁死亡检测在内的全面方法学,以系统阐明该化合物通过靶向并下调KDM1A诱导双重细胞死亡的作用机制。
本文内容
摘要
摘要
鼻咽癌(NPC)是一种高度侵袭性的恶性肿瘤。天然化合物鲁斯可根素(Rus)具有抗肿瘤潜力。本研究通过探讨鲁斯可根素对鼻咽癌细胞的作用及其潜在的分子通路,阐明其在鼻咽癌中的具体作用机制。采用不同浓度的鲁斯可根素处理人鼻咽癌(NPC)细胞系C666-1。进行一系列 体外 通过细胞活力、增殖、迁移、侵袭、凋亡和铁死亡等检测方法评估细胞功能。采用蛋白质印迹法和分子对接技术研究赖氨酸特异性去甲基化酶1A(KDM1A)的作用,并通过过表达挽救实验验证其介导作用。竹节参皂苷剂量依赖性地抑制C666-1细胞的增殖、克隆形成、迁移和侵袭能力。机制上,竹节参皂苷处理诱导了细胞凋亡,表现为效应caspase-3活化以及Bax/Bcl-2平衡向促凋亡信号偏移;同时诱导铁死亡,特征为脂质过氧化水平升高和细胞内铁含量增加。这些抗肿瘤效应与KDM1A的下调显著相关。关键的是,强制过表达KDM1A显著减弱竹节参皂苷诱导的凋亡和铁死亡,并逆转恶性表型的抑制作用,从而证实KDM1A在其中的关键介导作用。竹节参皂苷通过下调KDM1A抑制鼻咽癌的恶性进展,进而促进细胞凋亡和铁死亡。该研究结果揭示了Rus-KDM1A轴是鼻咽癌治疗中一个具有前景的治疗靶点。
引言
鼻咽癌(NPC)是一种由遗传因素和环境因素共同作用引起的癌症1。尽管放射治疗在临床治疗中已取得显著进展,但鼻咽癌患者的总体生存率仍不理想。这可能是因为鼻咽癌细胞增殖迅速,且极易向区域淋巴结和远端器官转移2。因此,深入探究促进鼻咽癌进展的分子机制至关重要。近年来,铁死亡(ferroptosis)作为一种新型的细胞死亡方式,其发生依赖于Fe2+和脂质过氧化物的铁依赖性调控,已被发现与鼻咽癌的发生发展密切相关3。现有证据表明,铁死亡在鼻咽癌中发挥着重要作用,诱导铁死亡可增强肿瘤的放射治疗效果4,5。
由于毒副作用小、不良反应较少,中药方剂已被广泛用于癌症治疗达数千年之久6,7。作为一类多组分、多靶点且具有协同作用的药物,中医处方已被用作预防和治疗癌症(包括鼻咽癌)的有效辅助疗法8,9,10。麦冬(RO)是百合科多年生草本植物 Ophiopogon japonicus 的根,据报道可作为辅助治疗手段有效缓解鼻咽癌11,12。麦冬中的主要活性成分鲁斯可皂苷元(Rus)已被报道具有显著的抗肿瘤作用13。在结直肠癌小鼠模型中,Rus 可改善紧密连接损伤并抑制肿瘤迁移14。更重要的是,Rus 还可通过诱导铁死亡降低胰腺癌细胞的存活率。然而,Rus 对鼻咽癌的作用尚不明确。
表观遗传学是癌症发病机制研究的主要领域,并提供了多种有效的治疗方法15。组蛋白甲基化是研究较为深入的表观遗传修饰之一,参与癌症的发生发展,同时也是药物设计的重要靶点16。组蛋白甲基化的动态调控由甲基转移酶和去甲基化酶共同介导17。KDM1A 是一种组蛋白赖氨酸去甲基化酶,因其参与表观遗传调控,被发现与肿瘤发生密切相关18。此外,KDM1A 被发现是一种在多种癌症(如肺癌和胰腺癌)中高表达的癌蛋白19。Guo 等报道,KDM1A 水平升高可抑制磷酸酶和张力蛋白同源物(PTEN)的表达,促进鼻咽癌细胞增殖和迁移,同时抑制细胞凋亡20。同时,研究还发现 KDM1A 的上调可抑制肺癌中的铁死亡21。Super-PRED 数据库分析表明,KDM1A 是 Rus 的潜在作用靶点。
尽管木犀草素(Rus)在其他癌症中已显示出公认的抗肿瘤潜力,但其在鼻咽癌中的具体作用及分子机制仍完全未被阐明,这构成了一个重要的研究空白。此外,尽管先前的研究分别将KDM1A与肿瘤增殖和铁死亡抵抗联系起来,但尚无研究探讨靶向KDM1A是否能够在鼻咽癌(NPC)中同时触发多种细胞死亡通路。因此,本研究为提出以下假设提供了有力依据:木犀草素可能通过直接下调KDM1A来抑制NPC细胞的恶性进展。
本研究旨在通过系统评估Rus对NPC细胞增殖、迁移和侵袭的影响,填补这一研究空白。本研究的主要创新之处在于揭示了一种双重作用机制策略,重点在于Rus能够同时诱导经典的细胞凋亡和铁依赖性的铁死亡。通过验证新型的Rus-KDM1A信号轴,本研究显著推进了当前认知,阐明了一种天然化合物如何通过同时阻断多条通路来克服肿瘤耐药性,为靶向NPC治疗提供了有前景的临床前理论依据。
方案
细胞培养、处理与转染
人鼻咽癌(NPC)细胞系 C666-1(RRID: CVCL_M597)和非恶性人鼻咽上皮细胞系 NP69(RRID: CVCL_F755)购自商业供应商。两种细胞系均通过短串联重复序列(STR)分型进行鉴定,并在使用前确认无支原体污染。常规培养时,C666-1 细胞在 RPMI 1640 培养基中培养,添加 10% 胎牛血清(FBS)和 1% 青霉素-链霉素。NP69 细胞则在角质形成细胞无血清培养基中培养,添加 10% FBS、10 ng/mL 重组表皮生长因子以及 1% 青霉素-链霉素。鲁斯可皂苷元(Rus;纯度 ≥ 98%)购自商业供应商。两种细胞系均在 37 °C、5% CO₂ 的加湿培养箱中培养。处理实验中,细胞在不同浓度(10、20、50 µM)的鲁斯可皂苷元(Rus)中处理 24 h22。转染实验中,当细胞融合度达到 70–80% 时,将购自商业供应商的编码赖氨酸特异性去甲基化酶 1A 的过表达质粒(oe-KDM1A)及相应的阴性对照空载体(oe-NC)转染至 C666-1 细胞。具体操作为:将 2.5 µg 质粒 DNA 和 5 µL 脂质转染试剂分别用 150 µL 低血清培养基稀释,轻轻混匀,室温孵育 20 分钟后,按照生产商说明书加入 6 孔板的每孔中。细胞在 37 °C 培养 48 小时后,检测转染效率。
细胞计数试剂盒-8(CCK-8)检测
采用CCK-8法检测Rus处理后细胞的存活率。实验中,首先将细胞接种于96孔板中,过夜培养。随后每孔加入10 µL CCK-8溶液启动检测,经2 h孵育后,使用酶标仪在450 nm波长处测定反应产生的比色变化,以光密度(OD)值表示。
集落形成实验
为评估克隆形成存活率,将 C666-1 细胞接种至 6 孔板中,培养 14 天。孵育结束后,用 100% 甲醇固定形成的克隆 10 分钟,随后用 0.5% 结晶紫染色 30 分钟以显色。通过显微成像并计数染色的克隆数量进行定量分析。
蛋白质印迹
进行蛋白质印迹分析时,首先使用 RIPA 缓冲液从细胞中提取总蛋白,将所得裂解物离心(12,000 × g)以收集上清液。采用 BCA 法测定蛋白浓度。将等量的总蛋白(每泳道 30 µg)上样,并通过 10% 十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)进行分离。分离后,在冰上以恒定电压 100 V 转移蛋白至聚偏二氟乙烯(PVDF)膜上,持续 90 分钟。随后将膜置于含 0.1% Tween 20 的 Tris 缓冲盐水(TBST)中配制的 5% 牛血清白蛋白(BSA)封闭液中,室温封闭 2 小时。然后,将膜在 4°C 下与以下用封闭缓冲液稀释的一抗(均为 1:1000)孵育过夜:Ki67、PCNA、MMP2、MMP9、Bcl-2、Bax、KDM1A、SLC7A11、GPX4、ACSL4、TFR1 和 β-actin。最后,加入辣根过氧化物酶(HRP)标记的二抗孵育 2 小时后,使用增强型化学发光(ECL)检测试剂显影免疫反应条带,并采用图像分析软件进行密度测定分析。
伤口划痕实验
在伤口愈合实验中,将 C666-1 细胞在 6 孔板中培养至 80% 汇合度。使用 200 µL 移液枪头刮划单层细胞,形成均一的伤口。用 PBS 洗涤去除脱落的细胞后,更换为无血清培养基,继续培养 24 小时。在 0 小时和 24 小时使用光学显微镜拍摄伤口区域的图像,以评估细胞迁移能力。
Transwell 实验
采用预先包被50 µL基底膜基质的Transwell小室(8-µm孔径)评估细胞侵袭能力。使用Transwell小室检测C666-1细胞的侵袭能力。将悬浮于无血清培养基中的细胞接种至上方插入式小室中,下室则加入含10%胎牛血清(FBS)的DMEM培养基。经24小时孵育后,小心去除膜上表面未侵袭的细胞。为进行定量分析,对穿过膜至基底侧表面的细胞用甲醇固定,0.1%结晶紫染色,随后通过光学显微镜拍摄图像并计数。
流式细胞术
采用流式细胞术定量细胞凋亡。样品制备时,收集 C666-1 细胞,用预冷的 PBS 洗涤,随后重悬于 100 µL 结合缓冲液中。细胞随后用 Annexin-V-FITC(20 µg/mL)和碘化丙啶(PI)进行共染色。染色过程在冰上避光孵育 15 分钟完成。立即使用流式细胞仪采集数据,以确定凋亡细胞的百分比。
检测caspase-3活性
根据制造商说明书,使用商用检测试剂盒检测 Caspase-3 活性。简言之,裂解 C666-1 细胞,14,000 × g 离心后收集上清液。加入试剂孵育 2 小时后,在 405 nm 处测定各上清液的吸光度。
RT-qPCR
使用商业化的RNA提取试剂从C666-1细胞中纯化总RNA。根据生产商说明书,使用商业化试剂盒将获得的RNA逆转录为第一链cDNA。随后在实时荧光定量PCR系统中,采用基于SYBR Green的预混液进行定量PCR(qPCR)分析基因表达。相对转录水平通过比较Ct值法(2⁻△△Ct)进行计算。扩增所用引物序列如下:β-actin(正向:5'-CATGTACGTTGCTATCCAGGC-3';反向:5'-CTCCTTAATGTCACGCACGAT-3')和KDM1A(正向:5'-TGACCGGATGACTTCTCAAGA-3';反向:5'-GTTGGAGAGTAGCCTCAAATGTC-3')。
硫代巴比妥酸反应性物质(TBARS)检测
为检测脂质过氧化,首先通过沉淀法(15% 三氯乙酸,500 mM 抗坏血酸)和在 10,000 × g 条件下离心 10 分钟,从 C666-1 细胞中制备上清液。随后,上清液与 0.375% 硫代巴比妥酸反应,并在 100 °C 加热 10 分钟以生成丙二醛-硫代巴比妥酸(MDA-TBA)加合物。通过酶标仪在 532 nm 处测定该加合物的吸光度,以评估脂质过氧化水平23。
脂质活性氧(ROS)的检测
采用脂质过氧化荧光探针检测脂质过氧化反应。将C666-1细胞接种于6孔板中,培养过夜后加入荧光探针(2 µM)。该探针在氧化后荧光由红色转变为绿色。使用激光扫描共聚焦显微镜和图像分析软件分析绿色/红色荧光比值。所绘制的绿色/红色荧光比值清晰明确,被用作脂质过氧化水平的定量指标24。
Fe2+ 的检测
使用细胞内铁荧光探针检测细胞内亚铁离子(Fe2⁺)水平。将 C666-1 细胞与 10 µM 荧光探针共同孵育 10 分钟。用 PBS 洗涤以去除未结合的探针后,通过荧光显微镜分析细胞。
分子对接分析
分子对接是一种关键的计算方法,通过评估配体与其靶标蛋白之间的结合模式,预测其结合亲和力及相互作用,从而促进新药设计25。从 RCSB PDB 网站(https://www.rcsb.org/)获取了 KDM1A 的三维结构(PDB ID: 6NQU)。在准备 KDM1A 蛋白结构时,去除了水分子以及无关的小分子配体。采用拉马克遗传算法,通过分子对接软件进行分子对接模拟,并利用分子可视化软件进行结果的可视化分析26。
统计学分析
所有实验均使用至少三个独立的生物学重复进行,结果以均值 ± 标准差(SD)表示。采用统计分析软件进行统计分析。多个组之间的差异通过单因素方差分析(ANOVA)进行评估,随后进行Tukey多重比较事后检验。P值小于0.05被认为具有统计学显著性差异。
结果
鲁斯可皂苷元选择性抑制鼻咽癌细胞的活力和增殖
本研究首先探讨了鲁斯可皂苷元(Rus)对正常鼻咽上皮细胞(NP69)和鼻咽癌(NPC)细胞(C666-1)活力的影响。CCK-8实验结果显示,在10、20和50 µM浓度下,Rus对正常NP69细胞无明显细胞毒性。相反,鲁斯可皂苷元(Rus)以浓度和孵育时间依赖的方式显著抑制C666-1癌细胞的存活。在50 µM时观察到最显著的细胞毒性作用(p < 0.001)(图1B-C)。接下来,通过克隆形成实验评估Rus处理后C666-1细胞的克隆形成能力,结果表明,Rus以高度显著的剂量依赖方式显著抑制C666-1细胞的克隆形成能力(图1D)。为在分子水平上验证这些结果,通过Western blot分析了增殖相关蛋白Ki67和PCNA的表达水平(图1E)。这些结果表明,与正常鼻咽上皮细胞相比,鲁斯可皂苷元对鼻咽癌细胞具有选择性抗增殖作用。这一选择性进一步通过C666-1细胞中Ki67和PCNA蛋白水平的显著剂量依赖性降低得到证实(50 µM时,p < 0.001)(图1E)。
鲁斯可皂苷元抑制 C666-1 细胞的迁移和侵袭
鉴于转移是恶性肿瘤的关键特征,本研究进一步探讨了Rus对C666-1细胞迁移和侵袭能力的影响。划痕实验结果显示,Rus处理以剂量依赖性方式显著抑制C666-1细胞的伤口愈合能力(50 µM时p < 0.001),提示细胞迁移能力下降(图2A)。同样,Transwell实验显示,经Rus处理后侵袭细胞数量显著减少,且在较高浓度下效应极为显著(50 µM时p < 0.001)(图2B)。该抑制效应进一步得到基质金属蛋白酶(Matrix Metalloproteinases, MMPs)的Western blot分析结果的支持。Ruscogenin以剂量依赖性方式下调C666-1细胞中MMP2和MMP9的表达水平,在50 µM浓度下达到高度统计学显著性(p < 0.001)(图2C)。上述结果表明,Rus能够以高度统计学显著性有效抑制鼻咽癌(NPC)细胞的迁移与侵袭能力。
鲁斯可皂苷元诱导 C666-1 细胞凋亡
为了确定观察到的细胞活力下降是否由程序性细胞死亡引起,本研究检测了细胞凋亡水平。流式细胞术证实,竹节参皂苷元(ruscogenin)以剂量依赖性方式显著促进C666-1细胞的凋亡,其中50 µM浓度下的效应极为显著(p < 0.001)(图3A)。该效应伴随caspase-3活性出现相应且具有统计学意义的升高,而caspase-3是凋亡级联反应中的关键执行酶(50 µM时,p < 0.001)(图3B)。为进一步探究凋亡机制,研究评估了关键调控蛋白的表达。Western blot结果表明,竹节参皂苷元处理显著诱导了促凋亡状态的剂量依赖性转变,具体表现为抗凋亡蛋白Bcl-2的表达显著降低,同时促凋亡蛋白Bax的表达显著升高(50 µM时,p < 0.001)(图3C)。这些蛋白表达的显著变化进一步证实,Rus可在C666-1细胞中诱导凋亡。
鲁斯可皂苷元通过下调KDM1A促进C666-1细胞的铁死亡
该研究随后探讨了铁死亡及其与蛋白KDM1A的关联。首先观察到,Rus处理以剂量依赖的方式显著降低了C666-1细胞中KDM1A的表达水平(p < 0.001 对于 50 µM) (图4A),分子对接分析预测了Rus与KDM1A蛋白之间的直接相互作用(图4B)。为了建立因果关系,对C666-1细胞进行转染以实现显著过表达 KDM1A (p < 0.001) (图 4C)。结果表明,Rus 处理单独作用显著增加了铁死亡的标志物,包括 TBARS 的生成(p < 0.001),脂质活性氧积累(p < 0.001),以及细胞内亚铁离子(Fe²⁺)水平2⁺)。关键的是,KDM1A 的过表达显著逆转了这些效应,降低了Rus处理细胞中这些铁死亡标志物的水平(p < 0.001,适用于所有比较)(图4D–F).
此外,对关键铁死亡相关蛋白的分析显示,Rus处理显著降低了SLC7A11和GPX4水平,同时升高了ACSL4和TFR1水平(p < 0.001)。KDM1A 的过表达显著抵消了这些变化(p < 0.001),使这些蛋白的表达恢复至其基础水平图 4G这些数据强烈表明,Rus 通过下调 KDM1A 在 NPC 细胞中促进铁死亡。
KDM1A 过表达可逆转鲁斯可皂苷元对鼻咽癌细胞增殖、迁移和侵袭的抑制作用
为了证实Rus的抗肿瘤作用是通过KDM1A介导的,我们进行了挽救实验。过表达KDM1A可显著抵消Ruscogenin对C666-1细胞的抗增殖作用,细胞活力检测和克隆形成实验均证实了这一点(图5A–B)。同样,Rus诱导的Ki67和PCNA蛋白水平显著降低也因KDM1A的过表达而得到部分但显著的恢复(p < 0.001)(图5C)。类似地,Ruscogenin显著的抗迁移和抗侵袭活性(p < 0.001)在KDM1A过表达后被逆转。划痕实验和Transwell实验均显示,过表达KDM1A的细胞其迁移和侵袭能力显著恢复(p < 0.001)(图5D)。同时,MMP2和MMP9蛋白表达水平也显著恢复(p < 0.001)(图5E)。
KDM1A 过表达减弱竹节参皂苷IVa诱导的C666-1细胞凋亡
最后,该研究探讨了KDM1A是否也在鲁斯可皂苷元(Rus)诱导的细胞凋亡中发挥作用。流式细胞术和caspase-3活性检测结果表明,KDM1A处理显著减弱了Rus的促凋亡效应(p < 0.001),与单独使用Rus处理的细胞相比,细胞凋亡率降低且caspase-3活性下降(图6A–B)。Western blot实验也证实,Rus过表达显著改变了鼻咽癌细胞中Bcl-2和Bax的表达水平,而KDM1A过表达则明显逆转了Rus引起的Bcl-2和Bax表达变化(p < 0.001)(图6C),使细胞命运从存活向死亡转变(图6C)。因此,挽救实验表明,鲁斯可皂苷元可抑制鼻咽癌细胞的增殖和侵袭,并诱导细胞凋亡和铁死亡,而这些由鲁斯可皂苷元介导的效应在很大程度上依赖于KDM1A的下调。
数据可用性:
支持本文结论的原始数据在 Zenodo 仓储库中公开获取,网址为 https://doi.org/10.5281/zenodo.21852421。
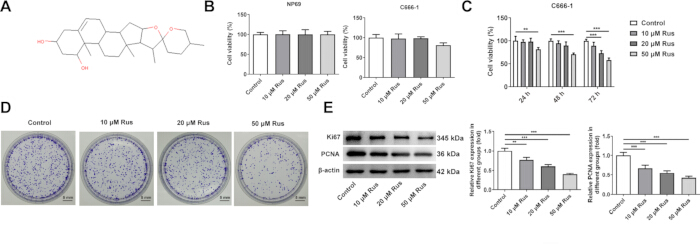
图1:鲁斯可皂苷元选择性抑制鼻咽癌细胞的活力和增殖能力(n = 3)。(A)鲁斯可皂苷元(Rus)的化学结构。(B)采用细胞计数试剂盒-8(CCK-8)检测正常NP69鼻咽上皮细胞在不同浓度Rus处理24小时后的细胞活力。(C)C666-1鼻咽癌细胞经指定浓度的Rus处理24、48或72小时后,通过CCK-8实验测定其细胞活力。(D)C666-1细胞在Rus中暴露14天后的克隆形成能力。该图显示代表性图像及相应的定量结果。(E)经24小时Rus处理后,通过Western blot分析C666-1细胞中增殖相关蛋白Ki67和PCNA的表达水平,下方为定量结果。数值表示三次独立实验的均值±标准差(SD)。数据以三次独立实验的均值±标准差(SD)表示(n = 3)。组间差异的统计学显著性采用单因素方差分析(one-way ANOVA)结合Tukey事后检验确定。* p < 0.05,** p < 0.01,*** p < 0.001。 请点击此处查看该图的放大版本。
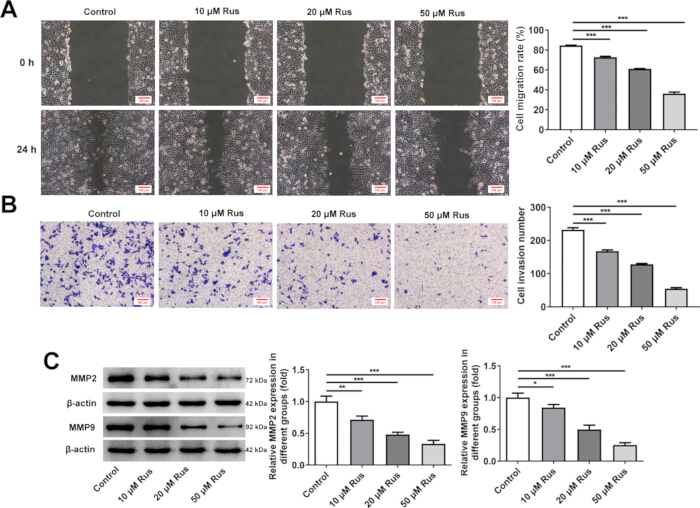
图 2:Ruscogenin 抑制 C666-1 细胞的迁移和侵袭能力(n = 3)。(A)采用划痕愈合实验评估 C666-1 细胞的迁移能力。在使用不同浓度的 Rus 处理后 0 和 24 小时拍摄代表性图像。图表显示细胞迁移率的定量结果。(B)采用 Transwell 实验评估经 Rus 处理的 C666-1 细胞的侵袭能力。代表性图像显示穿过 Matrigel 涂层膜的已染色侵袭细胞。图表显示侵袭细胞数量的定量结果。(C)C666-1 细胞中与迁移和侵袭相关的蛋白基质金属蛋白酶 2(MMP2)和基质金属蛋白酶 9(MMP9)的 Western 印迹分析及其定量结果。数据以三次独立实验的均值 ± 标准差(SD)表示(n = 3)。组间差异的统计学显著性采用单因素方差分析(one-way ANOVA)结合 Tukey 事后检验确定。* p < 0.05,** p < 0.01,*** p < 0.001。 请点击此处查看该图的放大版本。
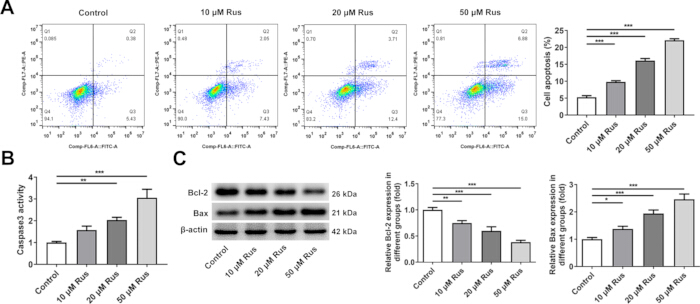
图3:鲁斯可皂苷元诱导C666-1细胞凋亡(n = 3)。 (A采用Annexin-V-异硫氰酸荧光素/碘化丙啶(Annexin-V-FITC/PI)染色法,通过流式细胞术分析经不同浓度Rus处理的C666-1细胞中的凋亡情况。图中显示凋亡细胞百分比的定量结果(总凋亡率计算为早期凋亡和晚期凋亡细胞群之和,即Q3 + Q2)。B) 在Rus处理的C666-1细胞中检测了caspase-3(一种凋亡执行型caspase)的活性。C) Bcl-2(抗凋亡蛋白)和Bax(促凋亡蛋白)的Western印迹分析及定量。Bax与Bcl-2表达水平的相反变化趋势表明具有促凋亡作用。数据以三次独立实验的均值±标准差(SD)表示(n = 3)。采用单因素方差分析(one-way ANOVA)结合Tukey事后检验进行统计学显著性分析。* p < 0.05, ** p < 0.01,以及 *** p < 0.001,在指定组之间。 请点击此处以查看此图的放大版本。
图4:鲁斯可皂苷元通过下调赖氨酸特异性去甲基化酶1A(KDM1A)促进C666-1细胞的铁死亡(n = 3)。 (AWestern blot 显示 Rus 对 KDM1A 蛋白的剂量依赖性下调。B分子对接模拟显示 Ruscogenin 与 KDM1A 之间的预测结合相互作用。C) 分别通过逆转录定量聚合酶链式反应(RT-qPCR)和蛋白质印迹分析验证KDM1A过表达质粒(oe-KDM1A)在mRNA和蛋白质水平的转染效率。D–GC666-1 细胞用 Rus 处理(50 µM)在有或无KDM1A过表达的情况下。D硫代巴比妥酸反应物(TBARS)法测定脂质过氧化程度 (E) 使用BODIPY 581/591 C11探针检测脂质过氧化。图中所示的绿/红荧光比值反映脂质过氧化水平。F细胞内铁的检测2⁺ 使用Phen Green SK探针检测。(G) 关键铁死亡调控蛋白(SLC7A11、GPX4、ACSL4和TFR1)的蛋白质印迹分析。数据以三次独立实验的均值±标准差(SD)表示(n = 3)。采用单因素方差分析(one-way ANOVA)结合Tukey事后检验进行统计学显著性分析。* p < 0.05, ** p < 0.01,以及 *** p < 0.001,在指定组之间。
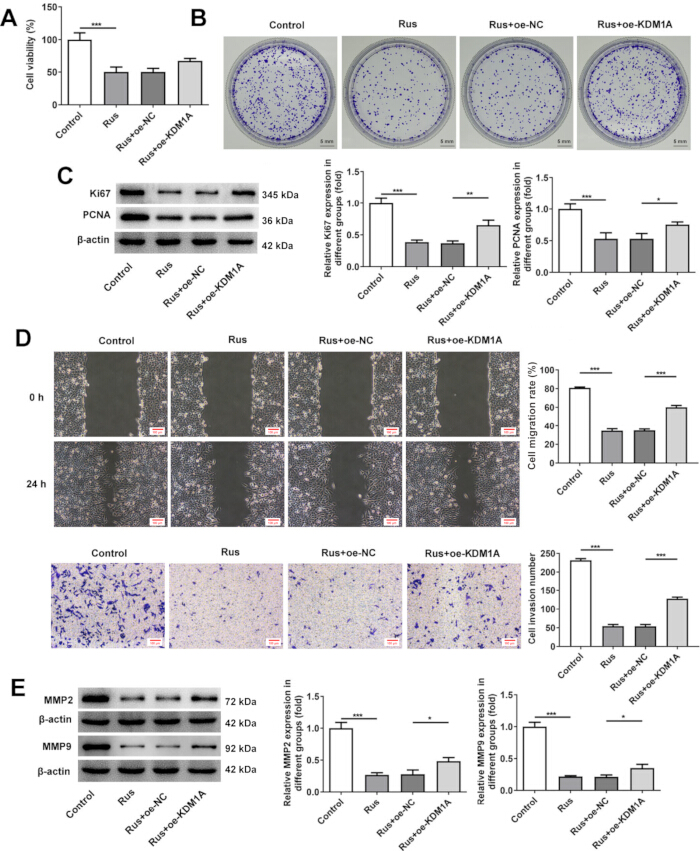
图5:KDM1A过表达可逆转竹节参皂苷IVa对鼻咽癌(NPC)细胞增殖、迁移和侵袭的抑制作用(n = 3)。C666-1细胞分为四组:对照组(Control)、竹节参皂苷IVa处理组(Rus,50 µM)、Rus + oe-NC(空载体)组和Rus + oe-KDM1A组。 (A) 采用CCK-8法检测细胞活力。(B) 通过克隆形成实验评估增殖能力。(C) 利用Western blot检测增殖标志物Ki-67(Ki67)和增殖细胞核抗原(PCNA)的表达水平。(D) 分别通过划痕愈合实验和Transwell实验评估细胞迁移和侵袭能力。(E) Western blot检测迁移相关蛋白MMP2和MMP9的表达。数据以三次独立实验的均值±标准差(SD)表示。采用单因素方差分析(one-way ANOVA)结合Tukey事后检验进行统计学分析。* p < 0.05,** p < 0.01,*** p < 0.001,表示组间差异具有统计学意义。请点击此处查看该图的放大版本。
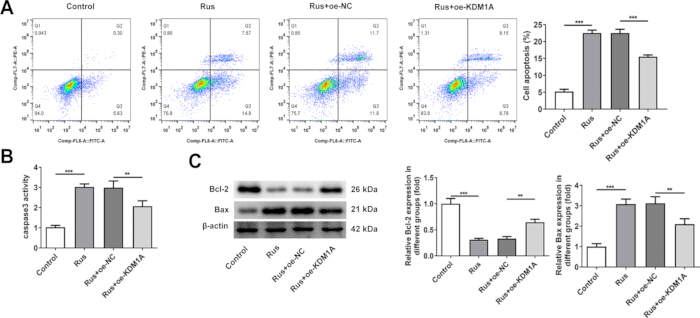
图 6:KDM1A 过表达减弱竹节参皂苷IVa诱导的 C666-1 细胞凋亡(n = 3)。细胞处理方式如图 5 所述。 (A)通过 Annexin-V/PI 染色后流式细胞术定量凋亡细胞。总凋亡细胞百分比为早期和晚期凋亡细胞群(Q3 + Q2)之和。(B)检测 caspase-3 活性以评估细胞凋亡执行水平。(C)通过蛋白质印迹分析检测凋亡相关蛋白 Bcl-2 和 Bax 的表达水平。数据以三次独立实验的均值 ± 标准差(SD)表示(n = 3)。组间差异的统计学显著性采用单因素方差分析(one-way ANOVA)结合 Tukey 事后检验确定。* p < 0.05,** p < 0.01,*** p < 0.001。 请点击此处查看该图的放大版本。
讨论
鼻咽癌(NPC)是一种严重的恶性肿瘤,具有较高的转移发生率,因此迫切需要更有效的干预措施27。本文研究表明,麦冬皂苷元(Rus)是一种源自麦冬根(Radix ophiopogonis)的天然产物,对NPC细胞具有显著的抗肿瘤作用。研究还发现,Rus通过抑制组蛋白去甲基化酶KDM1A,从而阻断NPC的进展,并进一步诱导两种不同类型的程序性细胞死亡,即细胞凋亡和铁死亡。本文阐述了NPC中一条 previously unknown 的Rus-KDM1A信号轴,揭示了一种双重作用机制,有助于提升其治疗潜力。
癌细胞的侵袭与迁移能力是决定肿瘤转移的关键因素。癌细胞的迁移和侵袭能力是导致转移的主要原因之一,且与不良临床预后密切相关。在大多数情况下,这一过程由基质金属蛋白酶等蛋白水解酶介导,如基质金属蛋白酶2(MMP 2)和MMP 9,这些酶在此类情况下高表达28。这些发现有力地支持并拓展了既往关于鲁斯可皂苷元抗肿瘤特性的研究。结果与先前报道中其在肝细胞癌中表现出的抗转移作用一致22 及其在胰腺癌中诱导铁死亡的能力14这些结果证实了该天然化合物具有广谱抗癌潜力。然而,本研究通过揭示鼻咽癌(NPC)中一种独特的双重死亡机制,显著推进了当前的认知。传统化疗常因肿瘤细胞对凋亡产生获得性耐药而遭遇临床瓶颈。Ruscogenin 能够同时触发经典的凋亡和铁依赖性铁死亡——两种截然不同且无重叠的细胞死亡模式,从而有效克服这种耐药性。这种双管齐下的攻击在 NPC 细胞中造成了严重的合成脆弱性,为其作为难治性或化疗耐药肿瘤治疗药物的开发提供了有力的转化依据。通过实施划痕实验、Transwell 实验和蛋白质印迹实验,数据显示 Ruscogenin(Rus)处理抑制了 C666-1 细胞的迁移和侵袭能力,并伴随基质金属蛋白酶 MMP2 和 MMP9 水平的降低。细胞增殖与凋亡之间精细平衡的破坏是肿瘤发生的关键驱动因素。29因此,在抑制细胞增殖的同时诱导细胞凋亡,是阻止肿瘤进展的核心治疗策略30。已知Bcl-2蛋白通过阻断程序性细胞死亡的早期启动环节来抑制细胞凋亡,而Bax蛋白则可通过与Bcl-2蛋白形成二聚体,使Bcl-2失活,从而促进细胞凋亡31Ki67 和 PCNA 是广泛采用的癌细胞增殖标志物32结果表明,Rus 能有效阻滞细胞周期并诱导细胞凋亡,表现为增殖标志物 Ki67 和 PCNA 表达下调,抗凋亡蛋白 Bcl-2 减少,以及促凋亡蛋白 Bax 增加。Bax/Bcl-2 比值的升高,伴随 caspase-3 活性上升,证实 Rus 可将鼻咽癌(NPC)细胞的细胞命运导向凋亡性死亡,这是有效癌症治疗的关键机制。
本研究中另一个较新的方面是Rus在诱导铁死亡(ferroptosis)中的作用。目前,铁死亡作为一种依赖铁和脂质过氧化物累积的特殊类型的调控性细胞死亡,已成为抑制鼻咽癌(NPCs)进展的重要治疗靶点33。因此,通过诱导铁死亡来治疗该疾病现被认为是一种有效的治疗策略34。这一过程由多种核心酶严格调控。值得注意的是,GPX4是一种关键的抗氧化酶抑制剂,它以铁依赖的方式抑制毒性脂质过氧化物的积累。此外,GPX4的活性依赖于胱氨酸/谷氨酸逆向转运体System Xc⁻,其中SLC7A11是其主要亚基之一。SLC7A11有助于胱氨酸的摄取,从而合成谷胱甘肽(glutathione),降低脂质过氧化水平并抑制铁死亡的发生35。研究数据显示,Rus处理引发了铁死亡的典型特征,包括脂质活性氧(ROS)的累积、细胞内Fe²⁺水平升高以及TBARS生成增加。从机制上看,Rus通过重塑关键铁死亡调控因子的表达来实现这一效应。它抑制了负责抵御脂质过氧化的主要防御系统——System Xc⁻转运体亚基SLC7A11和谷胱甘肽过氧化物酶GPX4的表达;与此同时,Rus上调了ACSL4和TFR1的表达,这两种蛋白分别为脂质代谢和铁吸收的关键蛋白,从而使细胞更易发生铁死亡。这些结果再次表明,Rus能够高效地激活铁死亡通路,为克服传统基于凋亡机制药物的耐药性问题提供了一种良好的策略。
在本项研究中,组蛋白去甲基化酶 KDM1A 是竹节香附素 A(Rus)作用机制的关键环节。KDM1A 作为一种在鼻咽癌(NPC)及其他癌症中公认的癌蛋白,可促进细胞增殖与存活。异常的 KDM1A 表达普遍参与多种恶性肿瘤的发生发展,包括胶质瘤、子宫内膜腺癌以及鼻咽癌36。此外,KDM1A 已被证实参与多种促进癌症进展的生物学过程,如多药耐药、细胞增殖和上皮-间质转化(EMT)37。值得注意的是,近期研究报道 KDM1A 的过表达可抑制肺癌中的铁死亡21,并促进胰腺癌中的细胞周期进程。本研究在鼻咽癌中所得结果与上述研究高度一致,表明靶向下调 KDM1A 足以解除对铁死亡的阻断并抑制细胞增殖。更重要的是,本研究提供了新的生物学证据,显示通过竹节香附素 A(Rus)药理学靶向单一表观遗传调控因子(KDM1A),可同时瓦解癌细胞的凋亡逃逸和铁死亡抵抗。这突显了表观遗传干预的深远生物学意义,确立 KDM1A 通路作为决定癌细胞命运的主控开关。分子对接分析显示 Rus 与 KDM1A 之间可能存在直接相互作用,随后的实验进一步证实,Rus 处理显著下调了 KDM1A 的表达水平。挽救实验结果毋庸置疑地证明了 KDM1A 的关键作用:KDM1A 的过表达显著逆转了细胞增殖、迁移和侵袭能力,并抵消了 Rus 诱导铁死亡和促进凋亡的效应。这些结果强有力地表明,KDM1A 是 Rus 抗肿瘤作用核心下游的关键效应分子,因此 Rus-KDM1A 轴是当前治疗策略的核心靶点。
尽管这些发现颇具前景,但本研究仍存在若干局限性,指明了未来研究的重要方向。首先,当前的证据主要基于单一的鼻咽癌细胞系(C666-1),且完全 体外 实验。尽管这为机制概念验证提供了有力的基础,但鉴于鼻咽癌(NPC)的生物学异质性,未来的研究仍需在多种NPC细胞系及患者来源的类器官模型中验证Rus-KDM1A轴的作用。其次,为了将这些初步的治疗意义充分转化为临床潜力,迫切需要利用小鼠异种移植模型开展严格的体内研究。此类研究对于评估鲁斯可皂苷元在复杂活体肿瘤微环境中的系统毒性、药代动力学特征及其真实的抗肿瘤疗效至关重要。最后,尽管KDM1A被确定为主要的中介分子,但作为天然化合物,鲁斯可皂苷元可能还作用于其他类型的分子靶点,从而介导其广泛的抗癌活性。未来可借助蛋白质组学或转录组学方法开展前瞻性研究,以更全面地阐明其作用机制。
综上所述,本研究显示,鲁斯可皂苷元在抑制鼻咽癌恶性进展方面具有显著疗效。其作用机制是通过抑制KDM1A,从而对癌细胞产生双重攻击效应,同时诱导细胞凋亡和铁死亡。研究结果不仅为将鲁斯可皂苷元开发为鼻咽癌治疗药物提供了有力依据,同时也支持KDM1A是一个重要靶点的观点,并表明通过合适的药物可实现这一效应。
本研究提供了证据,表明鲁斯可皂苷元(Ruscogenin)是一种潜在的治疗药物候选物,可通过抑制细胞增殖、迁移和侵袭来阻断鼻咽癌的恶性转化。该抗肿瘤作用的主要实现途径是特异性抑制组蛋白去甲基化酶KDM1A。鲁斯可皂苷元对KDM1A的抑制会触发一条双向促死亡信号通路,导致经典凋亡(涉及caspase-3的激活)和铁死亡(涉及铁依赖性脂质过氧化)同时升高。挽救实验明确显示,鲁斯可皂苷元-KDM1A轴发挥着关键作用,因为KDM1A的过表达可逆转鲁斯可皂苷元的抗肿瘤效应。本研究结果还具有重要价值,因为除了阐明鲁斯可皂苷元的一种新作用通路外,还指出了通过同时激活两种不同的细胞死亡通路来克服治疗耐药性的可能策略。因此,这些结果有力地表明鲁斯可皂苷元具有持续开发的潜力,并证实KDM1A通路是鼻咽癌中的一个新治疗靶点。
披露
作者声明不存在竞争性财务利益。作者声明,在本研究的构思、数据收集、数据分析或图像生成过程中,未使用任何生成式人工智能工具。人工智能辅助技术仅在本稿件撰写过程中用于轻微的语言编辑和语法校正。作者对已发表作品的内容和完整性承担全部责任。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 7500 Fast 实时荧光定量 PCR 系统 | 应用生物系统公司 | 4351106 | RT-qPCR 分析 |
| Annexin-V-FITC/PI 凋亡检测试剂盒 | BD 生物科学 | 556547 | 流式细胞术凋亡检测 |
| 抗ACSL4抗体 | Abcam | ab155282 | Western blot 一抗 |
| 抗Bax抗体 | Cell Signaling Technology (CST) | 5023 | Western blot 一抗 |
| 抗Bcl-2抗体 | Cell Signaling Technology (CST) | 15071 | Western blot 一抗 |
| 抗体 | |||
| 抗GPX4抗体 | Abcam | ab125066 | Western blot 一抗 |
| 抗KDM1A(LSD1)抗体 | Cell Signaling Technology (CST) | 2139 | Western blot 一抗 |
| 抗Ki67抗体 | Abcam | ab16667 | Western blot 一抗 |
| 抗MMP2抗体 | Abcam | ab92536 | Western blot 一抗 |
| 抗MMP9抗体 | Abcam | ab76003 | Western blot 一抗 |
| 抗PCNA抗体 | Cell Signaling Technology (CST) | 13110 | Western blot 一抗 |
| 抗兔 IgG,HRP 标记 | Cell Signaling Technology (CST) | 7074 | 二抗 |
| 抗SLC7A11(xCT)抗体 | Abcam | ab175186 | Western blot 一抗 |
| 抗TFR1抗体 | Abcam | ab84036 | Western blot 一抗 |
| 抗-β-肌动蛋白抗体 | Cell Signaling Technology (CST) | 4970 | 内参蛋白一抗 |
| 检测试剂盒 | |||
| Autodock 4.2 | 斯克里普斯研究所 | N/A | 分子对接模拟 |
| BCA 蛋白检测试剂盒 | 碧云天生物技术 | P0012 | 蛋白质定量 |
| BODIPY 581/591 C11 探针 | Invitrogen(Thermo Fisher Scientific) | D3861 | 脂质活性氧检测(2 μM) |
| C666-1 细胞系 | iCell Bioscience Inc. | iCell-h378 | 人鼻咽癌细胞系 |
| Caspase-3 活性检测试剂盒 | 碧云天生物技术 | C1115 | 细胞凋亡评估 |
| CCK-8 检测试剂盒 | Dojindo Molecular Technologies | CK04 | 细胞活力测定 |
| 化学品 & 试剂 | |||
| CytoFLEX 流式细胞仪 | 贝克曼库尔特 | CytoFLEX | 细胞凋亡分析 |
| ECL 检测试剂 | MilliporeSigma | WBKLS0500 | Western blot 显色(Immobilon) |
| 仪器设备 | |||
| 胎牛血清(FBS) | Gibco (Thermo Fisher Scientific) | 10099141 | 细胞培养添加剂 |
| GraphPad Prism 8.0 | GraphPad Software | N/A | 统计分析与作图 |
| ImageJ 软件 | 美国国立卫生研究院 | N/A | 图像密度测定分析 |
| 无血清角质形成细胞培养基 | iCell Bioscience Inc. | iCell-019 | 用于NP69细胞培养 |
| 激光扫描共聚焦显微镜 | 卡尔·蔡司 | LSM 880 | BODIPY C11 荧光成像 |
| 光学/荧光显微镜 | Olympus | IX73 | 划痕实验,Transwell & Fe2+成像 |
| LightCycler 480 SYBR Green I Master | 罗氏诊断 | 4887352001 | 定量实时聚合酶链式反应 |
| Lipofectamine 2000 试剂 | Invitrogen(Thermo Fisher Scientific) | 11668019 | 细胞转染试剂 |
| Matrigel | Corning | 356234 | 用于侵袭实验的基底膜基质 |
| 酶标仪 | Molecular Devices | SpectraMax M5 | 吸光度测量(405、450、532 nm) |
| NP69细胞系 | iCell Bioscience Inc. | iCell-h431 | 正常人鼻咽上皮细胞系 |
| oe-KDM1A & oe-NC 质粒 | 上海吉凯基因化学有限公司 | 定制合成 | 用于KDM1A过表达的质粒 |
| Phen Green SK(PGSK)探针 | Invitrogen(Thermo Fisher Scientific) | P14312 | 细胞内 Fe2+ 检测(10 μM) |
| Pymol 3.0 | 施ödinger | N/A | 分子对接可视化 |
| 逆转录试剂盒 | 罗氏诊断 | 4379012001 | Transcriptor 第一链 cDNA 合成试剂盒 |
| RIPA 裂解缓冲液 | Solarbio(北京,中国) | R0010 | 总蛋白提取 |
| RPMI 1640 培养基 | iCell Bioscience Inc. | iCell-0002 | 用于C666-1细胞培养 |
| 鲁斯可皂苷元(Rus) | MedChemExpress (MCE) | HY-N0193 | 药物处理,纯度 ≥ 98% |
| 软件 | |||
| TBARS 检测试剂盒 | Cayman Chemical | 10009055 | 脂质过氧化测定 |
| TRizol 试剂 | Invitrogen (Thermo Fisher Scientific)* | 15596026 | 总RNA提取 |
参考文献
- Zhou R, Qiu L, Zhou L, Geng R, Yang S, Wu J. P4HA1 activates HMGCS1 to promote nasopharyngeal carcinoma ferroptosis resistance and progression. Cell Signal. 2023;105:110609.
- Cao JY, Liu L, Chen SP, Zhang X, Mi YJ, Liu ZG, et al. Prognostic significance and therapeutic implications of centromere protein F expression in human nasopharyngeal carcinoma. Mol Cancer. 2010;9:237.
- Dixon SJ, Lemberg KM, Lamprecht MR, Skouta R, Zaitsev EM, Gleason CE, et al. Ferroptosis: an iron-dependent form of nonapoptotic cell death. Cell. 2012;149(5):1060-72.
- Liu S, Zhang HL, Li J, Ye ZP, Du T, Li LC, et al. Tubastatin A potently inhibits GPX4 activity to potentiate cancer radiotherapy through boosting ferroptosis. Redox Biol. 2023;62:102677.
- Amos A, Jiang N, Zong D, Gu J, Zhou J, Yin L, et al. Depletion of SOD2 enhances nasopharyngeal carcinoma cell radiosensitivity via ferroptosis induction modulated by DHODH inhibition. BMC Cancer. 2023;23(1):117.
- Jiang H, Li M, Du K, Ma C, Cheng Y, Wang S, et al. Traditional Chinese medicine for adjuvant treatment of breast cancer: Taohong Siwu decoction. Chin Med. 2021;16(1):129.
- Shang L, Wang Y, Li J, Zhou F, Xiao K, Liu Y, et al. Mechanism of Sijunzi decoction in the treatment of colorectal cancer based on network pharmacology and experimental validation. J Ethnopharmacol. 2023;302(Pt A):115876.
- Yang CH, Tung KL, Wu YT, Liu C, Lin SC, Yang CC, et al. Qing Yan Li Ge Tang, a Chinese herbal formula, induces autophagic cell death through the PI3K/Akt/mTOR pathway in nasopharyngeal carcinoma cells in vitro. Evid Based Complement Alternat Med. 2021;2021:9925684.
- Ren T, Bai XY, Yang MZ, Xu N, Guo XZ, Qin LJ, et al. Gambogic acid suppresses nasopharyngeal carcinoma via rewiring the molecular network of cancer malignancy and immunosurveillance. Biomed Pharmacother. 2022;150:113012.
- Zhou T, Zhao S, Tang S, Wang Y, Wu R, Zeng X, et al. Guggulsterone promotes nasopharyngeal carcinoma cells' exosomal Circfip1L1 to mediate miR-125a-5p/VEGFA, affecting tumor angiogenesis. Curr Mol Pharmacol. 2023;16(8):870-80.
- Feng X, Shi H, Chao X, Zhao F, Song L, Wei M, et al. Deciphering the pharmacological mechanism of the herb Radix Ophiopogonis in the treatment of nasopharyngeal carcinoma by integrating iTRAQ-coupled 2-D LC-MS/MS analysis and network investigation. Front Pharmacol. 2019;10:253.
- Kim W, Lee WB, Lee J, Min BI, Lee H, Cho SH. Traditional herbal medicine as adjunctive therapy for nasopharyngeal cancer: a systematic review and meta-analysis. Integr Cancer Ther. 2015;14(3):212-20.
- Zhao J, He B, Seshadri VD, Xu S. Anticancer effect of ruscogenin in B(a)P-induced lung cancer in mice via modulation of proinflammatory cytokines and mitochondrial enzymes. Appl Biochem Biotechnol. 2022;194(12):5862-77.
- Rabitha R, Shivani S, Showket Y, Sudhandiran G. Ferroptosis regulates key signaling pathways in gastrointestinal tumors: underlying mechanisms and therapeutic strategies. World J Gastroenterol. 2023;29(16):2433-51.
- Feinberg AP, Koldobskiy MA, Göndör A. Epigenetic modulators, modifiers and mediators in cancer etiology and progression. Nat Rev Genet. 2016;17(5):284-99.
- Song Y, Wu F, Wu J. Targeting histone methylation for cancer therapy: enzymes, inhibitors, biological activity and perspectives. J Hematol Oncol. 2016;9(1):49.
- Zhang W, Ruan X, Li Y, Zhi J, Hu L, Hou X, et al. KDM1A promotes thyroid cancer progression and maintains stemness through the Wnt/β-catenin signaling pathway. Theranostics. 2022;12(4):1500-17.
- Ismail T, Lee HK, Kim C, Kwon T, Park TJ, Lee HS. KDM1A microenvironment, its oncogenic potential, and therapeutic significance. Epigenetics Chromatin. 2018;11(1):33.
- Hou X, Li Q, Yang L, Yang Z, He J, Li Q, et al. KDM1A and KDM3A promote tumor growth by upregulating cell cycle-associated genes in pancreatic cancer. Exp Biol Med (Maywood). 2021;246(17):1869-83.
- Guo D, Liu F, Zhang L, Bian N, Liu L, Kong L, et al. Long non-coding RNA AWPPH enhances malignant phenotypes in nasopharyngeal carcinoma via silencing PTEN through interacting with LSD1 and EZH2. Biochem Cell Biol. 2021;99(2):195-202.
- Lu C, Cai Y, Liu W, Peng B, Liang Q, Yan Y, et al. Aberrant expression of KDM1A inhibits ferroptosis of lung cancer cells through up-regulating c-Myc. Sci Rep. 2022;12(1):19168.
- Hua H, Zhu Y, Song YH. Ruscogenin suppressed the hepatocellular carcinoma metastasis via PI3K/Akt/mTOR signaling pathway. Biomed Pharmacother. 2018;101:115-22.
- Sun Q, Zhen P, Li D, Liu X, Ding X, Liu H. Amentoflavone promotes ferroptosis by regulating reactive oxygen species (ROS) /5'AMP-activated protein kinase (AMPK)/mammalian target of rapamycin (mTOR) to inhibit the malignant progression of endometrial carcinoma cells. Bioengineered. 2022;13(5):13269-79.
- Carlsen CU, Kurtmann L, Brüggemann DA, Hoff S, Risbo J, Skibsted LH. Investigation of oxidation in freeze-dried membranes using the fluorescent probe C11-BODIPY(581/591). Cryobiology. 2009;58(3):262-7.
- Liu J, Yuan S, Yao Y, Wang J, Scalabrino G, Jiang S, et al. Network pharmacology and molecular docking elucidate the underlying pharmacological mechanisms of Houttuynia cordata in treating SARS-CoV-2 pneumonia. Viruses. 2022;14(7).
- Zhu W, Li Y, Zhao J, Wang Y, Li Y, Wang Y. The mechanism of triptolide in the treatment of connective tissue disease-related interstitial lung disease based on network pharmacology and molecular docking. Ann Med. 2022;54(1):541-52.
- Lee AWM, Ng WT, Chan JYW, Corry J, Mäkitie A, Mendenhall WM, et al. Management of locally recurrent nasopharyngeal carcinoma. Cancer Treat Rev. 2019;79:101890.
- Li BH, Ma H, Zhu J, Chen J, Dai YQ, Zhang XJ, et al. Semisynthesis and anti-cancer properties of novel honokiol derivatives in human nasopharyngeal carcinoma CNE-2Z cells. J Enzyme Inhib Med Chem. 2023;38(1):2244694.
- Qiao H, Zhang W, Liu P, Zhu R, Zhang J, Gao J, et al. Ropivacaine inhibits proliferation and invasion and promotes apoptosis and autophagy in bladder cancer cells via inhibiting the PI3K/AKT pathway. J Biochem Mol Toxicol. 2023;37(1):e23233.
- Zhao L, Han S, Hou J, Shi W, Zhao Y, Chen Y. The local anesthetic ropivacaine suppresses the progression of breast cancer by regulating miR-27b-3p/YAP axis. Aging (Albany, NY). 2021;13(12):16341-52.
- Ghasemi A, Khanzadeh T, Zadi Heydarabad M, Khorrami A, Jahanban Esfahlan A, Ghavipanjeh S, et al. Evaluation of BAX and BCL-2 gene expression and apoptosis induction in acute lymphoblastic leukemia cell line CCRFCEM after high-dose prednisolone treatment. Asian Pac J Cancer Prev. 2018;19(8):2319-23.
- Wadey KS, Johnson JL, George SJ. Monitoring cellular proliferation and apoptosis in atherosclerotic plaques and intimal thickenings. Methods Mol Biol. 2022;2419:507-19.
- Chen P, Wang D, Xiao T, Gu W, Yang H, Yang M, et al. ACSL4 promotes ferroptosis and M1 macrophage polarization to regulate nasopharyngeal carcinoma tumorigenesis. Int Immunopharmacol. 2023;122:110629.
- Forcina GC, Dixon SJ. GPX4 at the crossroads of lipid homeostasis and ferroptosis. Proteomics. 2019;19(18):e1800311.
- Zhao Y, Li Y, Zhang R, Wang F, Wang T, Jiao Y. The role of erastin in ferroptosis and its prospects in cancer therapy. Onco Targets Ther. 2020;13:5429-41.
- Sareddy GR, Nair BC, Krishnan SK, Gonugunta VK, Zhang QG, Suzuki T, et al. KDM1 is a novel therapeutic target for glioma treatment. Oncotarget. 2013;4(1):18-28.
- Ferrari-Amorotti G, Fragliasso V, Esteki R, Prudente Z, Soliera AR, Cattelani S, et al. Inhibiting the interactions between the lysine demethylase LSD1 and snail/slug blocks cancer cell invasion. Cancer Res. 2013;73(1):235-45.