本文概述了一种利用四杯行为实验范式来测量新建立的短期关系和长期关系之间社会识别能力的完整实验流程。 我们阐述了该实验范式的优点和潜在应用,并提供了准确解读实验结果所需的重要信息。
本文内容
摘要
摘要
社会记忆是指记住和识别他人 同种个体。这是哺乳动物行为的一个基本方面,在社会性较强的哺乳动物(如小鼠和人类)中已证明具有生存优势。 啮齿类动物,尤其是小鼠,是研究社会记忆及其潜在机制的成熟动物模型。 大多数现有的 社会记忆 范式主要评估短期社会识别能力,其中关系持续时间和熟悉程度 受试者与施动者之间 为5–15分钟。因此,现有的范式 以及以往的研究 不捕捉长期关系中的社交记忆,而是关注新奇性与短期熟悉性之间的二分法, 留下一个 我们在社会记忆的机制理解方面仍存在巨大空白。为填补这一空白,我们设计了一种简单的行为检测方法,用以捕捉小鼠对不同程度熟悉性的反应,将复杂的社会记忆提取过程置于可观察和可量化的实验框架中。在四杯实验范式中,一只受试小鼠 自由探索 一个 竞技场 含有 四个带孔的杯子分别置于四个角落,这些杯子容纳三个 试剂 不同熟悉程度的小鼠(社会刺激):长期熟悉的同笼小鼠(共同饲养1个月)、短期熟悉的小鼠(先前接触10分钟)、陌生同种小鼠,以及作为空白对照的空杯子。CD-1雄性小鼠表现出更倾向于探究陌生小鼠和长期熟悉的同笼小鼠 在此范式中,相较于短期熟悉的实验小鼠,更侧重于研究长期熟悉的实验小鼠。该任务 演示 熟悉度识别水平的提升,同时减少攻击性行为,但仍 控制 暴露史。该新型检测方法提供了一个可直接比较的平台 社会行为的神经机制 长期、短期和新奇记忆 个体。四杯范式作为一种新颖的方法 测量 用于 长期熟悉性识别,以补充现有的短期识别检测方法。
引言
社会记忆是哺乳动物社会行为的核心特征,在小鼠和人类等高度社会化的物种中尤为发达。在啮齿类动物中, 对他人的识别 构成家庭及同种群体内生存所依赖的关键行为动态,包括群体凝聚力、优势等级、交配行为和亲代抚育1,2. 除了在动物生存中具有进化上的优势作用外,人类社交记忆的受损是多种神经精神疾病和神经系统疾病中普遍存在的标志性特征,包括自闭症谱系障碍、精神分裂症和阿尔茨海默病3,4,5,6由于社会识别对社会性物种的日常功能至关重要,且具有明确的临床意义,因此开发能够准确反映其多维度特征及神经基础的行为检测方法至关重要。尽管现有的实验范式可测量小鼠社会识别的某些方面,但大多数检测方法旨在 通过比较新奇关系与短期关系来评估新奇偏好 在数分钟或数小时内形成,而非定量分析 识别 长期社会关系
现有的方法,例如三室实验范式或习惯化-去习惯化范式,仅在短暂的先前暴露后评估新奇偏好,暴露时间通常限于5–15分钟7,8,9,10,11这些方法 已提供 对……有深入的了解 神经机制 的 这些 短期社交 小鼠的记忆12,13. 然而, 自然主义的社会记忆与社会功能必须纳入长期关系中发挥作用的独特机制, 通过共同生活建立,长期 社会等级或交配伙伴。 尽管一些研究确实采用三室范式并使用同窝幼鼠14 或与受试小鼠同笼饲养长达72小时的熟悉小鼠15,16,该范式的主要应用仍局限于简单的“新异与熟悉”二分法。这限制了在多个不同熟悉小鼠之间进行比较的可能性。现有的社会识别范式倾向于 研究 短期关系方面,我们对长期关系社会识别背后的神经机制仍存在明确的知识空白。
为了解决这一局限性, 我们开发了四杯范式:一种简单且灵活的检测方法 用于区分 识别 在单次测试过程中评估多个社交熟悉程度。在此范式中,实验小鼠探索开放旷场的四个角落, 每个 含有 a 穿孔的 杯 持握 a 同种的 或一个对照用的空杯。 杯中包含长期熟悉的同种个体(笼伴)、一个 短期熟悉 同种的 先前接触有限 (10 分钟),a 新颖的 小鼠,和一个 空 对照。探究时间可作为社会识别和社会偏好的定量指标。该设置可在最小化直接身体接触和潜在攻击性互动的同时,实现不同熟悉程度水平的同步比较。
方案
所有涉及动物的操作均须执行 根据 机构指南,并经佛罗里达大学机构 动物护理与使用委员会(IACUC)
1. 动物准备与饲养
- 使用成年个体 同性 群养小鼠 所有实验。 实验测试前至少 handling 小鼠 2 天,以使其适应操作并降低焦虑。
- 将小鼠饲养在 在反向光暗循环条件下,使用标准实验室笼具饲养,食物和水随意供应。
注意:代表性实验使用了3–4月龄的成年CD-1和C57BL/6小鼠。小鼠以每笼3–4只进行群养。代表性数据集包括10只雄性CD-1小鼠、12只雌性CD-1小鼠和31只雄性C57BL/6小鼠。行为学实验应在动物的活跃期(暗期)进行。本研究中的小鼠在上午9点至下午6点之间进行实验,并维持在反转的光暗循环条件下(暗期为上午8点至晚上8点)。 - 将长期熟悉的个体定义为 同品系同性别同笼饲养个体 与实验小鼠在同一笼中共同饲养至少 测试前3–4周。
- 选择短期熟悉的和新异的同种个体 试剂 与实验小鼠相同品系和性别的小鼠
- 确保新引入的小鼠之前未与目标小鼠发生任何身体或嗅觉接触。
- 从不同的家庭笼中选择一种新异个体和一种短期熟悉个体,以避免这两个个体之间产生相似的嗅觉线索。
注意: 记录所用所有动物的近似年龄,并尽量避免在同一天内多次重复使用相同的新型短效试剂。若需重复使用这些试剂,请提供 >两次测试之间在饲养笼中休息 2 小时,以避免应激因素。
2. 实验区域设置
- 放置一个 洁净 方形开放场区域(49.5 cm × 49.5 cm × 49.5 cm; 材料清单在安静的行为测试室内。
- 使用一盏较高的或顶置的灯照亮该区域,并调节至 约 8–20 勒克斯。
- 在实验区域的每个角落放置四个重量相同的带孔塑料杯(图1A).
- 尽可能使用外观相同的杯子。若使用不同颜色的杯子,应在各次试验中对杯子的分配和位置进行平衡。
- 按压每个杯子的两侧 冲洗 紧贴竞技场壁以限制活动范围,减少躲藏行为,并标准化探究角度。
- 使用足够重且足够高的杯子,以防止逃逸和攀爬。
注意:在本研究中,通过在被试间顺时针旋转彩色塑料杯的位置,同时逆时针轮换施动者类型,对代表性数据杯和施动者位置进行伪随机化。
- 放置 相机 足够高,以至于 整个检测 盒子应置于画面内,以避免行为编码时出现盲区。保持盒底光照均匀,尽量减少反光。图1A).
- 在每次试验之间,使用彻底清洁竞技场地板和杯子 一种合适的消毒剂, 随后用清水冲洗以去除残留气味。
- 在重新引入之前,让实验区域完全干燥 动物
3. 第0天在实验区域进行适应性训练
- 将实验小鼠及其同笼伙伴放入含有四个带孔空杯的实验区域,允许其自由探索20分钟。
注意:对于需要固定记录的实验,应单独对小鼠进行适应性训练。根据需要可增加适应次数。若小鼠在一天适应后仍未充分探索整个实验区域,建议进行多天适应。 - 将所有小鼠从实验区域中移出,并放回原笼。
- 将所有社交刺激小鼠分别置于杯下10分钟,使其适应受限状态。来自同一笼子的刺激小鼠可同时进行适应,每杯放置一只(图1B)。
- 在引入新笼小鼠前,清洁实验区域和杯子。
注意:小鼠转运至实验房间后,应在开始实验前至少静置15分钟。
4. 基线
- 根据第2节设置实验区域 。在所有实验日中保持相同的实验区域配置。
- 将受试对象放入含有 四个空杯子的实验区域中,允许其自由探索10分钟。
注意: 在当前试验的所有阶段, recording 不得暂停,应持续进行记录。
5. 短期获取
- 使用带配重的穿孔杯固定受试对象,同时放置指定 "短期熟悉" 试剂 或者,将受试对象置于洁净的笼子中,暴露于短期作用的试剂。
- 若选择进行场所暴露实验,需将指定的短期熟悉的 试剂 在实验区域的一个带孔杯下方放置,其余三个杯保持空置 空。
- 释放 受试者 和 允许自由探索 10 分钟(图1B).
注意:若采用在实验区域内暴露于短期作用因子的方法,应在不同受试对象间交替使用短期熟悉因子所在的角落,以避免空间偏差。
6. 试验间间隔(ITI)
- 取出 短期熟悉 试剂 并将其放回其居住笼中。让实验小鼠独自停留在实验区域内 自由活动10分钟。
- 收集 新颖的 长期熟悉 用于测试的实验小鼠 相
注意:将短期熟悉剂放回短期获取阶段(第5节)中使用的同一杯子中。如果在实验 arena 中进行短期获取,建议这样做以避免空间位置的新异性。
7. 社会识别阶段
- 在实验小鼠身上放置一个额外的带孔加重杯。
- 将一只小鼠分别置于三个带重物的穿孔杯下方: 长期熟悉的同笼伙伴、短期熟悉的个体以及陌生的同种个体 留出一个指定的第四只杯子作为空白对照。
注意:在进行行为学评分时,标记杯盖以识别试剂位置。 - 从实验小鼠身上取下穿孔杯 在 arena 中央放置并允许自由探索 10 分钟(图1A).
- 在实验结束时移除所有小鼠 10 min 间隔并停止记录。
- 将所有小鼠放回其原代饲养笼中。
- 在下一次试验前,彻底清洁实验区域和杯子。
注意:请准备备用杯,以防损坏。
8. 行为学评分
- 将所有录制的视频导入能够进行人工注释的行为分析软件中,例如行为观察研究交互式软件(Behavioral Observation Research Interactive Software, BORIS)。
注意:由于每个杯子上方贴有标注实验动物编号的标签且在视频中可见,笼位信息也可被推断,因此行为评分无法对笼伴位置设盲。评分人员并未主动关注这些可见标签,且对新个体和短期同伴的身份信息设盲。所有评分人员均遵循预先定义的探究行为操作定义和标准化评分标准。 - 在开始评分前确定行为矩阵。
- 将一次探究行为定义为:实验小鼠将鼻尖置于距离杯子 1 cm 范围内,同时 表现出 持续的探究姿态。
注意: 将针对杯子的咀嚼和啃咬行为纳入探究行为事件中。 - 在10分钟的社会识别测试阶段,人工标注每只杯子对应的总探究持续时间。 可根据需要对基线期和学习获得阶段进行评分。
注意:可使用自动化姿态追踪技术,以每个杯子周围1 cm的半圆形区域作为兴趣区。 - 导出已标注的数据,用于 后续 统计分析。
结果
根据四杯实验范式方案,CD-1雄性小鼠在长期熟悉的同笼伙伴、短期熟悉以及陌生同种个体之间表现出差异性的社交探究行为(图2)。针对每个社交对象,计算其辨别指数(DI),该指数基于小鼠探究该对象的时间与探究空杯时间的比值,公式为(对象时间 − 空杯时间)/(对象时间 + 空杯时间),计算时段为10分钟的社交识别阶段。Shapiro-Wilk检验显示该指数呈正态分布;因此,我们采用基于数据正态性假设的统计检验方法。小鼠对陌生同种个体的辨别显著高于对短期熟悉同种个体的辨别(图2;陌生 vs. 短期熟悉,t(9) = 3.70,经Bonferroni-Holm校正后 p = 0.01)。该实验范式还显示,小鼠对长期熟悉的同笼伙伴的辨别显著高于对短期熟悉同种个体的辨别(图2;同笼伙伴 vs. 短期熟悉,t(9) = 2.87,经Bonferroni-Holm校正后 p = 0.04)。在对陌生同种个体与同笼伙伴之间的辨别指数比较中,差异无统计学意义(图2;陌生 vs. 同笼伙伴,t(9) = -1.13,校正后 p = 0.29),表明小鼠对陌生个体和长期熟悉的同笼伙伴的探究偏好均高于对短期熟悉个体的探究。在空场基线阶段,各杯位点的探究时间并不因后续将占据该位置的社交对象不同而存在显著差异,这证实实验结果并非由小鼠对特定杯位的预先偏好所致(陌生基线 vs. 同笼伙伴基线,t(9) = -1.99,p = 0.23;陌生 vs. 短期熟悉基线,t(9) = -1.97,p = 0.23;同笼伙伴 vs. 短期熟悉基线,t(9) = 0.54,p = 0.60)。
相比之下,CD-1 雌性小鼠在新异个体、短期熟悉个体和长期熟悉个体之间的辨别指数未表现出显著差异(图 3)。新异个体与短期熟悉个体之间(p = 0.35)、新异个体与笼伴个体之间(p = 0.69),以及短期熟悉个体与笼伴个体之间(p = 0.70)均未观察到显著差异。雌性小鼠普遍对所有个体的探索均超过对空杯的探索,在此任务中表现出明显不同的行为模式,可能反映了相较于雄性小鼠更强的社会性倾向。
类似地,C57BL/6雄性小鼠也表现出相同趋势,即对新同种个体的辨别能力高于对短期熟悉的同种个体。该差异在经过Bonferroni-Holm校正后接近显著性水平,但未达到显著性,提示在这一较大的C57BL/6群体(n = 31)中个体间变异大于CD-1雄性小鼠(图4;校正后p = 0.055)。在新个体与笼伴之间(p = 0.62),或在短期熟悉个体与笼伴之间(p = 0.62),均未观察到显著差异。这些结果表明,在CD-1雄性小鼠中观察到的对笼伴强烈的探究行为在不同品系和性别间存在差异。
为了确定社会优势地位是否影响笼内同伴探究行为,将尿液标记的David评分与笼内同伴辨别指数进行了相关性分析。在CD-1雄性小鼠(Pearson's r = 0.28,p = 0.44)或C57BL/6雄性小鼠(Pearson's r = 0.10,p = 0.57)中均未观察到显著相关性,表明社会等级并未影响笼内同伴辨别指数。
综上所述,这些结果表明,四杯实验范式能够在单次行为学实验中同时检测社会探究行为的差异,并评估长期和短期熟悉性以及社会新颖性。值得注意的是,性别和品系可能影响该检测中的行为表现。
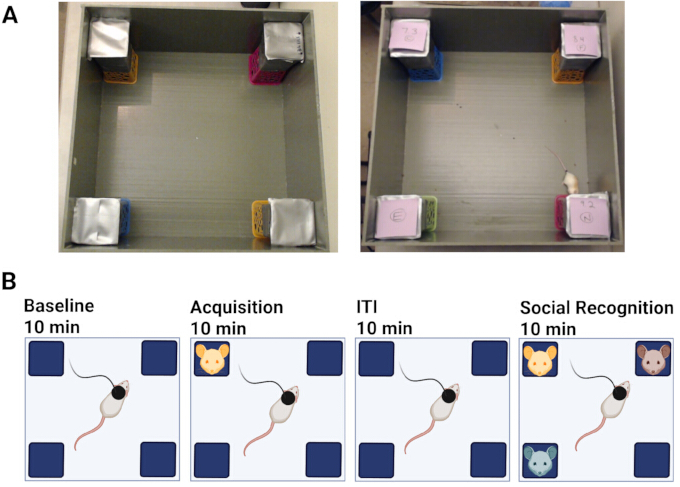
图1:四杯范式实验装置与操作流程。(A)左图,四杯范式实验箱,内含四个带孔的空杯;右图,实验小鼠探索四杯范式实验箱,其中四个带孔杯内已放置刺激物。标签用于标明社会刺激物的身份,以便准确进行行为评分。(B)范式第1天的行为流程示意图。小鼠颜色用于区分不同刺激物身份。请注意,图片拍摄时使用了相机闪光灯,因此呈现的明亮环境与实验所用8–20 lux的光照条件不同。请点击此处查看该图的放大版本。
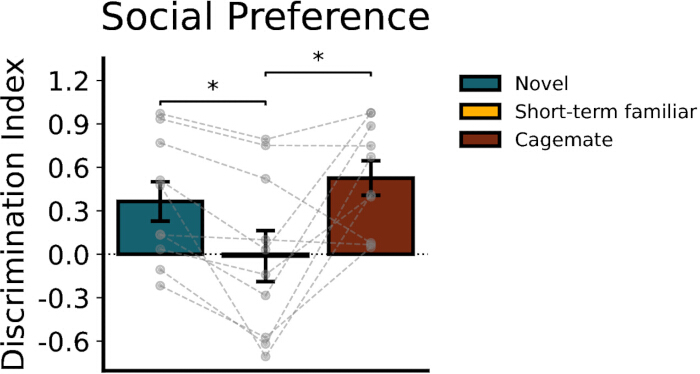
图 2: CD-1 雄性小鼠在四杯实验范式中的社交偏好。在10分钟的社交识别阶段,对新奇、短期熟悉和长期熟悉(同笼伙伴)同种个体探究行为的辨别指数(DI)。DI 的计算公式为(代理对象 – 空容器)/(代理对象 + 空容器)。与短期熟悉的同种个体相比,小鼠对新奇个体和同笼伙伴表现出显著更高的辨别能力(p < 0.05),而对新奇个体与同笼伙伴之间的辨别能力无显著差异。数据以10只小鼠的均值±标准误表示。统计比较采用配对t检验,并对多重比较进行Bonferroni-Holm校正。*p < 0.05。 请点击此处查看该图的放大版本。
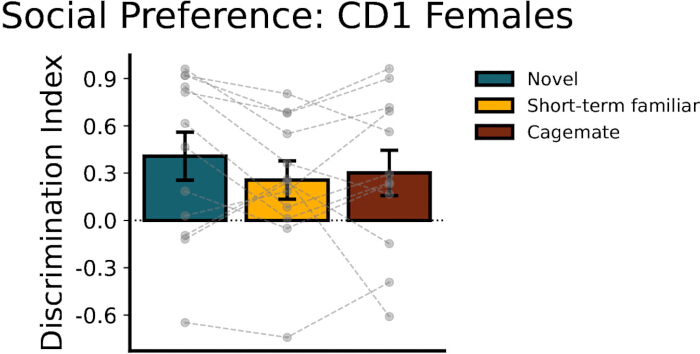
图3:CD-1雌性小鼠在四杯实验范式中的社会偏好。在10分钟的社会识别阶段,对新奇、短期熟悉和长期熟悉(同笼伙伴)同种个体的探究行为的辨别指数(DI)。DI的计算公式为(探查目标 – 空杯)/(探查目标 + 空杯)。三种社会刺激之间的辨别指数未观察到显著差异。数据以12只小鼠的均值±均值标准误表示。统计比较采用配对t检验,并对多重比较进行Bonferroni-Holm校正。*p < 0.05。 请点击此处查看该图的放大版本。
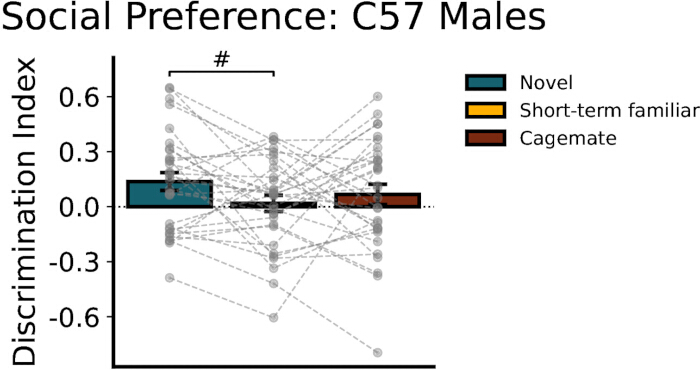
图4C57BL/6雄性小鼠在四杯实验范式中的社交偏好在10分钟的社会识别阶段,对新异同种个体、短期熟悉同种个体和长期熟悉(同笼伙伴)同种个体的辨别指数(DI)进行检测。DI计算公式为(实验对象-空区)/(实验对象+空区)。观察到对新异同种个体的辨别程度高于短期熟悉同种个体的趋势,但在经过Bonferroni-Holm校正后,差异不再具有统计学意义。p = 0.055)。新异同伴组与同笼伙伴组之间、短期熟悉组与同笼伙伴组之间均未观察到显著差异。数据表示为31只小鼠的均值 ± 均值标准误。统计比较采用配对检验 t采用Bonferroni-Holm法对多重比较进行校正的检验。 #p < 0.06. 请点击此处以查看此图的放大版本。
讨论
将四杯实验范式应用于其他实验室环境以有效且可靠地测量这些社会动态时,需考虑若干关键因素。第0天的适应性训练可减少由非社会性新奇刺激引发的对实验区域和杯子的探索行为,否则这种探索可能掩盖测试期间的社会性探究7,8,9。短期熟悉时间的精确控制同样至关重要,因为暴露时间的微小差异可能显著改变后续的偏好模式8,9,10。选择10分钟的熟悉期旨在建立稳定的短期社会记忆,同时与先前描述的社会识别范式保持一致,这些范式采用短暂暴露以区分熟悉与陌生的同种个体7,8,10。此外,选择3至4周的共同饲养期是为了通过长期共居建立稳定而持久的社会熟悉性,而非依赖多次短暂接触。该时长为持续的社会互动以及笼内同伴之间形成长期熟悉关系提供了充分的机会10。10分钟熟悉期与3至4周共同饲养期之间的区别被有意设计,以便在同一行为测试会话中创建两种性质不同的熟悉程度(近期熟悉与长期熟悉)。在实验过程中,必须在不同试验中对代理小鼠(agent mice)的身份在杯子位置间进行交叉平衡,以控制小鼠固有的空间偏好偏差7,8。在多个试验中重复使用同一代理小鼠可能改变其应激水平,从而影响被试小鼠的探究行为。为尽量减少潜在混杂因素,在可能的情况下,单个测试日内不重复使用同一代理小鼠,并在不同被试间对代理身份和杯子位置进行交叉平衡。此外,由于社会支配地位可能影响社会探究行为,本研究采用基于领地性的支配行为评估和David评分法来分析支配等级。在CD-1雄性小鼠和C57BL/6雄性小鼠中,David评分与笼内同伴辨别指数之间未观察到显著相关性,表明对长期熟悉的同种个体的偏好并非由支配地位所致。在数据分析过程中,必须采用一致的操作性定义来界定探究行为,特别是探究持续时间,以确保不同评分者及不同实验队列间的可重复性。所有基于探究行为的社会范式均可能面临一个潜在挑战,即“地板效应”——探究时间接近于零,导致无法进行有效比较。对于表现出较低社会探究水平的小鼠品系,进一步降低可见光照强度并采用红外视频追踪技术可能有助于减轻焦虑,增加探索行为。
该方案可根据实验目标进行灵活调整和修改,但某些改动需要仔细考虑。杯具材料是该实验中的一个关键变量。尽管本方案使用带孔的塑料杯,但与轻质塑料杯相比,使用带有较小金属穿孔的加重金属杯可能减少啃咬和逃逸尝试。使用塑料杯可能会增加操作行为,包括啃咬或攀爬,这些行为应在评分过程中加以监测和标注。另一种方法是用高而带孔的垂直隔板替代带孔杯具,这种隔板将每个角落与中央区域分隔开,同时保持嗅觉和有限的视觉交流。尽管这种设计可能进一步减少攀爬行为,但可移动的带孔杯具具有实用优势,可快速将标准的开放场装置转变为四杯范式,而无需进行永久性改造。可通过增加杯具重量、调整穿孔大小以及保持颜色一致来减轻对杯具的过度互动,从而减少偏差来源。此外,应进行施动小鼠的平衡设计,并避免在同一天的测试中重复使用,以减少无意的熟悉效应。
应认识到四杯实验范式存在若干局限性。由于社交互动受到带孔屏障的限制,该检测主要评估的是基于嗅觉和有限视觉线索的、由受试者主动发起的非互惠性探究行为,而非直接的身体接触8,9。此外,使用杯子作为物理和视觉屏障在解释探究行为时可能引入潜在的歧义。例如,在观察到对同笼伙伴的探究行为增加的情况下,特别是在CD-1雄性小鼠中,尚不明确这种行为反映的仅仅是社会识别,还是包含了探究行为与亲社会动机(例如,通过啃咬塑料杯试图帮助熟悉的同种个体逃脱)在内的综合表现。这些因素强调了谨慎解释结果的重要性,并在可能的情况下,应结合其他互补的行为检测方法。同笼伙伴之间既有的社会关系,包括等级优势、亲社会互动以及先前的社会经历,也可能影响探究偏好。然而,我们并未观察到优势等级与同笼伙伴探究行为之间存在明显的关联。尽管如此,这些因素可能因品系、饲养条件和实验范式不同而有所差异,在解释长期熟悉偏好时应予以考虑。
与现有的社会识别实验相比,四杯范式能够在单次行为学实验中同时比较多种实验对象,例如长期熟悉的、短期熟悉的以及全新的同种个体。传统的实验范式,如三箱实验和习惯化–去习惯化实验,主要评估在短暂暴露后对新异性的短期偏好7,8,9,10。以往的研究也已将长期同笼伙伴与全新同种个体结合使用,包括无限制社会互动范式以及经过改良的多腔室装置,用于评估社会熟悉性17,18。然而,这些方法并未在同一实验中同时比较长期熟悉、短期熟悉和全新的社会刺激。通过将长期同笼伙伴与短期接触个体结合使用,四杯范式为研究由长期共同生活所形成的持久社会记忆提供了一种手段。来自雄性和雌性CD-1小鼠的代表性数据表明,该四杯范式可在不同性别中成功应用,并展现出性别特异性的行为模式。同样,来自CD-1和C57BL/6小鼠的代表性数据进一步表明,该范式可在多种常用实验小鼠品系中成功实施。尽管社会识别能力和新异性偏好在不同小鼠品系间常存在差异7,19,但在两个品系的雄性小鼠中观察到的整体熟悉性辨别模式表明,该实验具有较广泛的适用性。然而,由于社会识别行为可能因品系、性别、年龄和实验环境的不同而变化,研究者应在与其科学问题相关的特定动物模型中对该实验方法进行验证。此外,尽管该范式可被适配于四臂或四腔室装置中,但在开放场装置中进行实验可更有效地将导航与空间记忆同社会记忆区分开来。在穿越不同隔室或臂时,空间记忆负荷更高;因此,在研究社会记忆机制时,空间记忆应作为一个重要变量加以评估。Netser等人(2017)在提出一种类似的双腔室替代方案时也讨论了典型三箱实验装置的这些局限性,该替代方案可最大限度减少对空间导航的需求20。该方法非常适合用于研究社会熟悉性的神经表征、社会认知的纵向变化,以及长期社会记忆可能被选择性改变的条件。
披露
作者无任何利益冲突需要披露。
致谢
本工作获得了 McKnight 神经科学奖和 Klingenstein 神经科学奖对 NPC 的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 行为评分软件 | 行为观察研究交互式软件 | Version 9.12.7 | 用于手动事件标注的软件 |
| 旷场实验箱 | Rafferty Machine and Tool | Custom made | 结构型FRP玻璃钢板材,方形实验箱(49.5 cm x 49.5 cm x 49.5 cm);非透明壁,若实验箱透明,需用纸张覆盖外壁以减少对动物的干扰 |
| 顶部摄像机 | Logitech | Logitech C920x HD Pro PC Webcam | 可连续视频录制的摄像机;安装于实验箱正上方 |
| 带孔杯 | Chinco Store | ONG-Chinco-0279 | 杯体尺寸:4.01"L x 4.01"W x 4.52"H;带孔的塑料或金属杯,可为方形或圆柱形 |
| Prism | Graph Pad | Version 10.6.0 | 数据分析软件;也可使用其他软件完成 |
参考文献
- Wolff JO, Sherman PW, editors. Rodent societies: an ecological and evolutionary perspective. University of Chicago Press; Chicago; 2008.
- Thor DH, Holloway WR. Social memory of the male laboratory rat. J Comp Physiol Psychol. 1982;96(6):1000-1006.
- Theory of mind and autism: A review. International Review of Research in Mental Retardation. Academic Press; 2000.
- Bediou B, et al. Impaired social cognition in mild Alzheimer disease. J Geriatr Psychiatry Neurol. 2009;22(2):130-140.
- Green MF, Horan WP, Lee J. Social cognition in schizophrenia. Nat Rev Neurosci. 2015;16(10):620-631.
- Bäckman L, Herlitz A. The relationship between prior knowledge and face recognition memory in normal aging and Alzheimer's disease. J Gerontol. 1990;45(3):P94-P100.
- Moy SS, et al. Sociability and preference for social novelty in five inbred strains: An approach to assess autistic-like behavior in mice. Genes Brain Behav. 2004;3(5):287-302.
- Engelmann M, Hädicke J, Noack J. Testing declarative memory in laboratory rats and mice using the nonconditioned social discrimination procedure. Nat Protoc. 2011;6(8):1152-1162.
- van der Kooij MA, Sandi C. Social memories in rodents: Methods, mechanisms and modulation by stress. Neurosci Biobehav Rev. 2012;36(7):1763-1772.
- Cum M, et al. A systematic review and meta-analysis of how social memory is studied. Sci Rep. 2024;14(1):2221.
- Oliva A, Fernández-Ruiz A, Leroy F, Siegelbaum SA. Hippocampal CA2 sharp-wave ripples reactivate and promote social memory. Nature. 2020;587(7833):264-269.
- Oliva A. Neuronal ensemble dynamics in social memory. Curr Opin Neurobiol. 2023;78:102654.
- Okuyama T. Social memory engram in the hippocampus. Neurosci Res. 2018;129:17-23.
- Hitti FL, Siegelbaum SA. The hippocampal CA2 region is essential for social memory. Nature. 2014;508(7494):88-92.
- Dykstra B, Kim P, Lin A, Berman GJ, Murugan M. The intermediate CA1 and CA3 subfields of the hippocampus differentially encode social recognition. bioRxiv. 2025; doi.org/10.1101/2025.10.27.684580.
- Rashid M, et al. A ventral hippocampal-lateral septum pathway regulates social novelty preference. eLife. 2025;13:RP97259.
- Phillips ML, Robinson HA, Pozzo-Miller L. Ventral hippocampal projections to the medial prefrontal cortex regulate social memory. eLife. 2019;8:e44182.
- Medeiros D, Polepalli L, Li W, Pozzo-Miller L. Altered activity of mPFC pyramidal neurons and parvalbumin-expressing interneurons during social interactions in a Mecp2 mouse model for Rett syndrome. J Neurophysiol. 2025;134(6):2070-2085.
- Netser S, et al. Distinct dynamics of social motivation drive differential social behavior in laboratory rat and mouse strains. Nat Commun. 2020;11(1):5908.
- Netser S, Haskal S, Magalnik H, Wagner S. A novel system for tracking social preference dynamics in mice reveals sex- and strain-specific characteristics. Mol Autism. 2017;8:53.
重印与许可
本文已发表
视频即将推出