与N6-甲基腺苷(m6A)相关的基因在乳腺癌中表达失调,但其表达变化与甲基化或拷贝数改变的相关性有限。包括YTHDF3在内的六个基因具有预后价值。YTHDF3 是一个独立的预后因子,参与RNA代谢、DNA修复、端粒稳定性以及免疫浸润过程。其在临床上的上调表达已得到验证,值得进一步研究。
研究文章
全面分析m6A调控因子鉴定YTHDF3为乳腺癌潜在预后生物标志物
* These authors contributed equally
本文内容
摘要
摘要
N6-甲基腺苷(m6A)相关基因的表达谱及其在乳腺癌中的预后价值迄今尚未充分阐明。本研究通过整合分析其表达谱与临床相关性,利用多组学数据集并结合实验验证,对乳腺癌中m6A相关基因进行了系统性探究。这些基因在乳腺癌中表现出显著的差异表达,但其与启动子甲基化、拷贝数变异等分子特征的相关性较为有限。单因素生存分析显示,RBM15B, METTL16, HNRNPC, YTHDF1, YTHDF3 和 IGF2BP1 的异常表达与患者预后显著相关。多因素Cox回归分析进一步证实,YTHDF3 表达升高是一个独立的预后因子。功能网络分析表明,YTHDF3 可能不仅参与RNA加工与代谢,还涉及DNA修复、初级miRNA加工、端粒稳定性以及免疫细胞浸润等过程。此外,临床乳腺癌样本中的实验结果也验证了YTHDF3 mRNA的上调表达。综上所述,m6A相关基因在乳腺癌中存在表达失调,并与患者临床结局相关,凸显其作为生物标志物的潜力,其中YTHDF3值得进一步深入研究。
引言
乳腺癌是一种高度异质性的恶性肿瘤,已成为全球最常见的癌症,是女性癌症相关死亡的主要原因,2020年估计有230万例新发病例和超过68万例死亡病例1,2。尽管治疗手段不断进步,但仍无法为所有患者提供明确的治愈方案,因此迫切需要鉴定用于早期诊断和预后评估的分子生物标志物。
异常的表观遗传修饰是癌症的一个标志性特征3。在多种RNA修饰中,N6-甲基腺苷(m6A)作为一种表观转录组标记,其在乳腺癌中的作用正日益受到关注4。m6A是一种可逆的修饰,主要存在于哺乳动物mRNA的3’非翻译区(3’-UTR),由“书写器”(甲基转移酶)、“擦除器”(去甲基化酶)和“阅读器”(结合蛋白)共同调控5。越来越多的证据表明,m6A相关基因参与了肿瘤的发生与发展6。然而,乳腺癌中m6A调控因子的整体图谱仍不明确,且缺乏全面的遗传学和表观遗传学分析。
本研究利用公共组学数据库和实验验证,鉴定了乳腺癌中差异表达的m6A相关基因。进一步通过生存分析和调控网络预测,评估了这些基因的临床预后价值并探讨了其潜在的分子机制。
方案
基因表达与生存数据
来自人类蛋白质图谱数据库的癌症基因组图谱(The Cancer Genome Atlas, TCGA)队列数据包含1,034例乳腺癌肿瘤样本和104例正常邻近组织(normal adjacent tissues, NATs),以及947例患者的临床信息7。这些数据用于分析m6A相关基因的mRNA表达谱及其与预后的关系。此外,我们使用Kaplan-Meier Plotter(KMplotter)在线工具,该工具整合了多个乳腺癌数据集,以验证YTHDF3表达与生存之间的关联8。为进一步验证表达模式,我们还通过乳腺癌基因表达挖掘器v4.7(Breast Cancer Gene-Expression Miner v4.7)纳入了基因型-组织表达(Genotype-Tissue Expression, GTEx)项目中的92例健康乳腺组织数据9,10。基于临床蛋白质组肿瘤分析联盟(Clinical Proteomic Tumor Analysis Consortium, CPTAC)和TCGA数据集,采用UALCAN分析了YTHDF3在不同乳腺癌亚型及正常组织中的蛋白和mRNA水平11。
遗传和表观遗传学评估
使用cBioPortal分析基因改变,重点关注侵袭性乳腺癌数据集(TCGA,临时数据,共1,108例)12。启动子甲基化数据来自MethHC,包含839例乳腺癌样本及部分配对的相邻正常对照样本13。
基因调控网络与免疫浸润分析
使用 STRING(置信度评分设为 0.4)分析蛋白质-蛋白质相互作用14。利用 Metascape 进行基因注释和通路富集分析(p < 0.01,最小计数为 3,富集因子 > 1.5)15。通过肿瘤免疫估计资源(TIMER)分析 YTHDF3 在乳腺癌中的表达与免疫浸润(包括 B 细胞、CD8+ T 细胞、CD4+ T 细胞、巨噬细胞、中性粒细胞和树突状细胞(DCs))的关联性。经肿瘤纯度归一化的基因表达水平显示在最左侧面板中16。
定量反转录聚合酶链式反应(qRT-PCR)
所有参与者均签署了书面知情同意书,研究经西南医科大学附属医院伦理委员会批准(批准号:KY2022124),并遵循《赫尔辛基宣言》的原则进行。采用冷冻的乳腺肿瘤组织样本及配对的相邻非肿瘤组织样本进行总RNA提取。使用分光光度计测定提取RNA的浓度和纯度,仅A260/A280比值在1.8–2.0之间的样本被纳入后续分析。RNA完整性通过1.5%琼脂糖凝胶电泳确认。随后,按照制造商说明书,以1 µg总RNA为模板,在20 µL反应体系中合成第一链cDNA。进行定量实时PCR,每个20 µL反应体系包含10 µL 2× SYBR Green预混液、0.4 µL正向引物和0.4 µL反向引物(均为10 µM)、2 µL稀释后的cDNA(1:10稀释)、以及7.2 µL无核酸酶水。qRT-PCR操作按先前所述方法进行17。引物序列如下:β-actin-F,GAAGATCAAGATCATTGCTCCT;β-actin-R,TACTCCTGCTTGCTGATCCA;YTHDF3-F,AAAAGACGGGCCTCTTCCTC;YTHDF3-R,TTGGCCGAGTGATTGTTCCA。扩增条件为:95 °C预变性3 min,随后进行40个循环,每个循环为95 °C变性10 s、55 °C退火20 s、72 °C延伸20 s(在72 °C采集荧光信号)。通过熔解曲线分析(95 °C至60 °C,升温速率为0.5 °C/s)确认引物特异性。相对表达量采用2−ΔΔCt法计算。
统计学方法
采用非配对 t 检验进行两组间的比较。使用 Kaplan-Meier 生存分析结合 log-rank 检验及多变量 Cox 回归分析评估预后因素。对于 qRT-PCR 验证,采用双尾配对 Student’s t 检验对 ΔCt 值进行配对样本的比较。对于图1,采用 Dunnett-Tukey-Kramer 检验进行两两比较。P < 0.05 被认为具有统计学显著性。
结果
乳腺癌中 m6A 相关基因的 mRNA 差异表达
对TCGA和GTEx数据(1,034个肿瘤样本、104个癌旁组织、92个健康组织)的分析显示,大多数m6A相关基因存在差异表达 (图1)与健康乳腺组织相比,有10个基因显著上调: KIAA1429、RBM15、RBM15B、HNRNPC、YTHDF1、YTHDF2、YTHDF3、IGF2BP1、IGF2BP3 和 ALKBH5 全部 P < 0.0001,除非 RBM15 P < 0.001)。8 个基因表达下调: WTAP、METTL3、METTL14、HNRNPA2B1、YTHDC1、YTHDC2、IGF2BP2 和 FTO (P < 0.05 至 P < 0.0001). METTL16 和 eIF3A 显示无显著差异。在比较肿瘤与邻近正常组织(NATs)时, HNRNPA2B1 呈上调,而 YTHDF3, eIF3A 和 ALKBH5 呈下调; RBM15,RBM15B 和 YTHDF2 未显示出差异 (图1)使用NAT作为对照的有效性受到质疑,这可能解释了其与健康组织比较时出现的差异18,19有趣的是,与正常组织相比,在CPTAC数据集中所有乳腺癌亚型均呈现出YTHDF3蛋白丰度升高的趋势(P < 0.0001)。此外,mRNA 表达水平显著升高 YTHDF3 仅在乳腺癌的管腔亚型中观察到,而正常组织中未见(P = 0.004, < 0.01) (补充图 S1)总体而言,乳腺癌中m6A相关基因的显著失调十分明显。
乳腺癌中m6A相关基因的启动子甲基化与基因扩增
DNA甲基化在基因转录的表观遗传调控中起重要作用,启动子区的高甲基化会抑制mRNA的表达20. MethHC 分析仅显示在启动子甲基化水平上存在显著差异 IGF2BP1,IGF2BP2 和 IGF2BP3 在肿瘤与对照组之间(P < 0.005)。下调的 IGF2BP2 mRNA 的部分原因可能归因于其高甲基化。cBioPortal 分析显示 WTAP 和 ALKBH5 表现出 mRNA 下调,而 KIAA1429(VIRMA)、YTHDF1、YTHDF3 和 IGF2BP1 显示与基因上调相关的基因扩增 (补充图S2,补充图S3, 和 补充图 S4) 这些结果表明,m6A相关基因的mRNA水平主要并非由启动子甲基化或基因扩增所驱动。
乳腺癌中 m6A 相关基因的生存分析
对947例患者的生存分析显示,低表达 RBM15B 表达和高表达 METTL16, HNRNPC, YTHDF1, YTHDF3 和 IGF2BP1 与总生存期缩短显著相关(图2 和 图3). 多变量Cox回归分析,在校正年龄、分期和种族因素后证实, YTHDF3 上调是总生存期较差的独立预测因子(HR:1.024,95% CI:1.003–1.046, P = 0.024) (表1)。 对于外部验证,使用 KMplotter 在线工具进行的分析表明,高表达 YTHDF3 表达预示着较差的疾病预后 (补充图S5)其他基因无独立显著性 (补充表 S1)
m6A相关基因YTHDF3的潜在分子网络及免疫浸润
YTHDF3 的 STRING 分析(限定相互作用分子数为 50)鉴定出一个包含 224 条边的网络,并显示出显著富集(P < 1e-16)。YTHDF3 与 METTL3、ALKBH5、WTAP、METTL14 等密切相关 (图4A)Metascape 富集分析鉴定了 13 个显著的功能簇(P < 0.01,最低计数为3,富集因子 > 1.5; 图4B)。排名最高的簇为 mRNA 代谢调控(GO1903311,22 个基因)。其他与癌症相关的簇包括 DNA 去烷基化修复(GO0006307)、初级 miRNA 加工(GO0031053)和端粒酶稳定化(GO1904356)等。完整的簇名称、相关基因及富集统计结果列表见于 补充表 S2此外,结果揭示了显著的正相关性 YTHDF3 表达与免疫细胞(全部 P < 0.01) (补充图 S6)因此, YTHDF3 上调可能与 mRNA 代谢、DNA 修复、端粒维持以及免疫浸润相关。
乳腺癌中 YTHDF3 mRNA 表达上调
2023年7月至2023年10月期间,从在西南医科大学附属医院乳腺外科接受手术的20名患者中采集了乳腺癌组织及配对的相邻正常乳腺组织。对这些配对样本进行的qRT-PCR分析显示,肿瘤组织中YTHDF3 mRNA的表达水平显著高于相邻正常组织(P = 0.001)(补充图S7和补充表S3)。
数据可用性
本研究中分析的所有数据集均可从以下开放获取的数据库公开获得。基因表达与临床数据:乳腺癌RNA-seq表达数据及相应的临床信息通过人类蛋白质图谱(The Human Protein Atlas, https://www.proteinatlas.org/)获取自癌症基因组图谱(TCGA-BRCA)。额外的正常乳腺组织表达数据通过乳腺癌基因表达分析工具v4.7(Breast Cancer Gene-Expression Miner v4.7, http://bcgenex.ico.unicancer.fr/)从基因型-组织表达(GTEx)项目(dbGaP编号phs000424.v8.p2)中获取。生存分析验证使用Kaplan-Meier Plotter(https://kmplot.com)完成。蛋白质和mRNA表达数据通过UALCAN(http://ualcan.path.uab.edu/)获取。基因组改变数据:侵袭性乳腺癌数据集(TCGA,Provisional,共1108个样本)的体细胞突变和拷贝数变异数据通过cBioPortal(https://www.cbioportal.org/)获取。DNA启动子甲基化数据:甲基化数据来自MethHC数据库(http://methhc.mbc.nctu.edu.tw/),该数据库包含839例乳腺癌样本及部分配对的相邻正常对照样本。蛋白质-蛋白质相互作用与通路富集分析:功能网络分析使用STRING v12.0(https://string-db.org/,置信度评分0.4)和Metascape(http://metascape.org/)进行。免疫细胞浸润分析使用TIMER(https://cistrome.shinyapps.io/timer/)完成。图中未展示的其他支持数据可在合理请求下从通讯作者处获取。
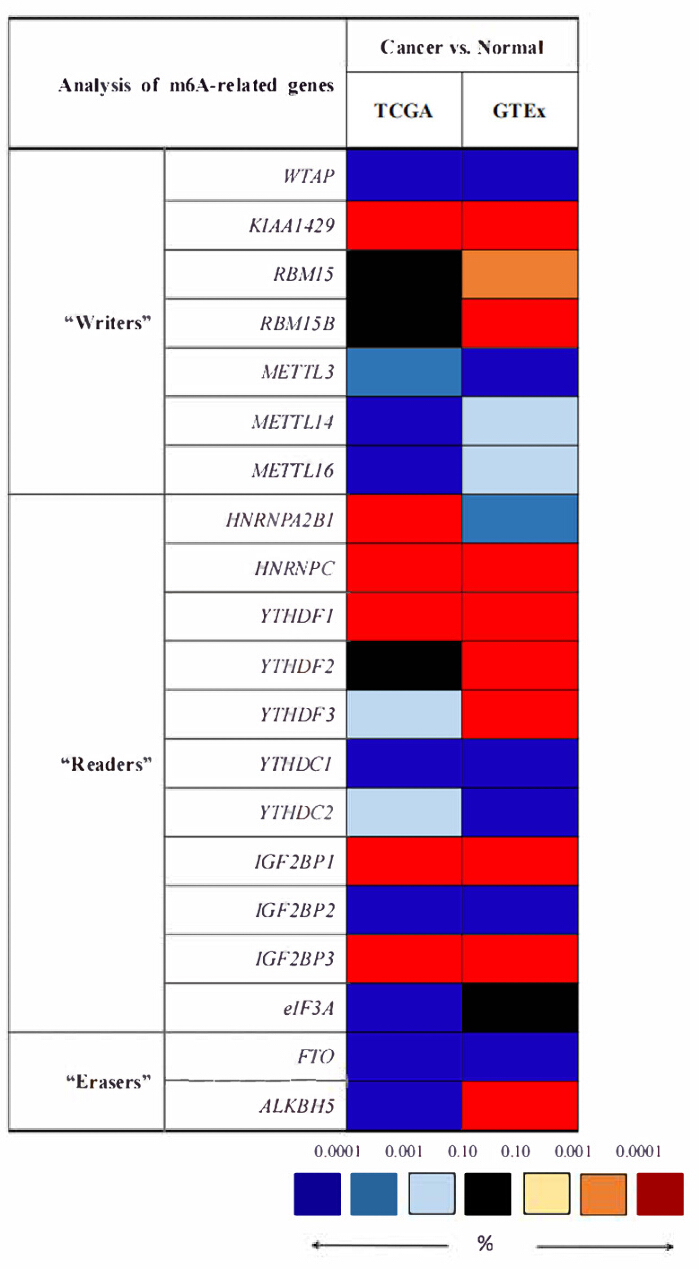
图1.乳腺癌中N6-甲基腺苷(m6A)相关基因的mRNA差异表达。红色表示上调;蓝色表示下调;黑色表示无表达差异;白色表示无基因表达数据。颜色编码反映统计学显著性。成对比较采用Dunnett-Tukey-Kramer检验。注:“正常”包括TCGA中肿瘤与癌旁正常组织(NATs)的比较,以及GTEx中肿瘤与健康组织的比较。缩写:NATs = 癌旁正常组织;TCGA = 癌症基因组图谱;GTEx = 基因型-组织表达。 请点击此处查看该图的放大版本。
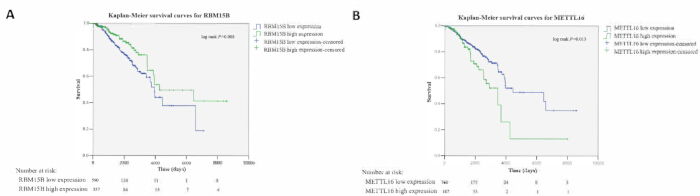
图2。m6A“书写蛋白”基因RBM15B和METTL16的mRNA异常表达与乳腺癌患者总生存期的关联。(A)RBM15B低表达与较短的总生存期相关(log-rank检验,P = 0.008,<0.01);(B)METTL16高表达与不良预后相关(log-rank检验,P = 0.013,<0.05)。根据最优截断值将患者分为高表达组和低表达组。n = 947(TCGA-BRCA队列)。蓝色和绿色曲线分别代表低表达组和高表达组。mRNA表达单位为每百万比对片段中每千碱基转录本的片段数(Fragments Per Kilobase of transcript per Million mapped reads)。缩写:TCGA-BRCA = 癌症基因组图谱乳腺浸润性癌;m6A = N6-甲基腺苷。请点击此处查看该图的放大版本。
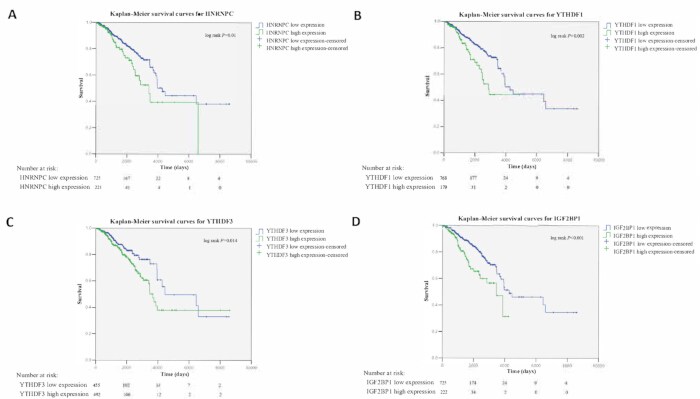
图3m6A“阅读蛋白”mRNA异常表达的相关性 HNRNPC, YTHDF1, YTHDF3 和 IGF2BP1 与乳腺癌患者的总生存期相关。 (A高 HNRNPC mRNA 表达与总生存期缩短相关(log-rank 检验, P = 0.01, <0.05). (B-D高表达 YTHDF1, YTHDF3 和 IGF2BP1 与较差的预后显著相关(log-rank 检验, P = 0.002, P = 0.014,且 P < 0.001)。根据最佳截断值将患者分为高表达组和低表达组。n = 947(TCGA-BRCA 队列)。蓝色和绿色曲线分别代表低表达组和高表达组。基因mRNA表达的单位为每百万映射读段中每千碱基转录本的片段数(Fragments Per Kilobase of transcript per Million mapped reads)。缩写:TCGA-BRCA = The Cancer Genome Atlas 乳腺浸润性癌;m6A = N6-甲基腺苷。 请点击此处以查看此图的放大版本。
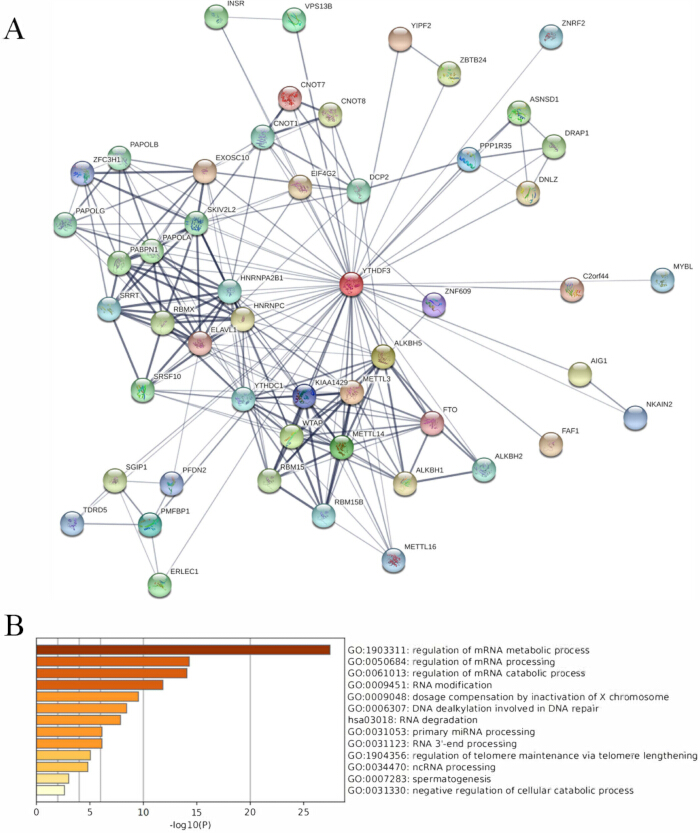
图4YTHDF3的潜在分子调控网络 (A) 以YTHDF3为诱饵,通过STRING数据库构建的蛋白质相互作用网络(置信度评分≥0.4,最大相互作用蛋白数=50)。边的宽度表示支持证据的强度。B) Metascape 分析鉴定了 13 个显著的功能簇(P < 0.01,最小计数 = 3,富集因子 > 1.5)本体来源包括京都基因与基因组百科全书通路(Kyoto Encyclopedia of Genes and Genomes pathways)和基因本体生物学过程(Gene Ontology Biological Processes)。 请点击此处以查看此图的放大版本。
| 参数 | HR | 95% CI | p值 |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| 年龄 | 1.036 | 1.023-1.050 | <0.001 |
| 种族 | 1.275 | 0.892-1.821 | 0.182 |
| 分期 | 2.263 | 1.796-2.851 | <0.001 |
表1:m6A相关基因YTHDF3的多变量Cox生存回归分析结果。 缩写:HR = 风险比;95% CI = 置信区间。
补充图 S1. 基于 CPTAC 和 TCGA 数据集,YTHDF3 在不同亚型乳腺癌及正常组织中的蛋白和 mRNA 表达水平。 YTHDF3 的蛋白表达水平在 (A) 原发性肿瘤和正常组织中,以及 (B) 乳腺浸润性癌亚型中。Z 值表示相对于相应癌症类型样本中位值的标准差倍数。CPTAC 的 log2 谱计数比值首先在每个样本谱图内进行标准化,然后在样本间进行标准化。(C) YTHDF3 在不同亚型乳腺浸润性癌中的 mRNA 表达水平(RNA-seq,每百万映射片段中每千碱基转录本的片段数)。缩写:CPTAC = 临床蛋白质组肿瘤分析联盟;TCGA = 癌症基因组图谱。请点击此处下载该文件。
补充图S2. 从MethHC数据库获取的m6A相关基因的启动子甲基化状态。 (A乳腺癌及正常对照中m6A“书写器”的启动子甲基化B) 乳腺癌及正常对照中m6A“erasers”的启动子甲基化。C) 乳腺癌与正常对照中m6A“阅读器”的启动子甲基化。红色,乳腺癌;绿色,正常对照。*P < 0.05, **P < 0.005。缩写:m6A = N6-甲基腺苷。 请点击此处下载此文件。
补充图 S3. 通过 cBioPortal 分析 m6A“书写器”和“擦除器”的基因突变与拷贝数改变(TCGA,临时数据,n = 1,108)。(A)m6A“书写器”的改变。(B)m6A“擦除器”的改变。柱状图表示每种改变类型的频率:错义突变、扩增、深度缺失及多重改变。仅显示改变频率 ≥ 1% 的基因。每个基因的总体改变频率显示在右侧。缩写:TCGA = The Cancer Genome Atlas;m6A = N6-甲基腺苷。请点击此处下载该文件。
补充图 S4. 通过 cBioPortal 分析 m6A“阅读蛋白”基因的突变和拷贝数改变情况(TCGA,预发布,n = 1,108)。柱状图显示了各类改变的频率:错义突变、扩增、深度缺失以及多种改变。仅展示改变频率 ≥ 1% 的基因。各基因的总体改变频率显示在右侧。缩写:TCGA = The Cancer Genome Atlas;m6A = N6-甲基腺苷。请点击此处下载该文件。
补充图S5. YTHDF3在KMplotter中与乳腺癌患者生存率的相关性 (A高 YTHDF3 mRNA 表达与总体生存率降低相关(P = 0.011, <0.05). (B-DYTHDF3 的高表达与较差的无复发生存率、无远处转移生存率及进展后生存率显著相关。P = 1.9e-09, P = 0.06,且 P = 0.029)。所有P值均通过log-rank检验计算得出。每个图下方显示了处于风险中的患者数量。最佳截断值由工具的自动选择最佳截断值功能确定。缩写:KMplotter = Kaplan-Meier Plotter。 请点击此处下载此文件。
补充图 S6. YTHDF3 表达与乳腺癌免疫浸润的相关性。 在 TIMER 数据集中,YTHDF3 表达与 B 细胞、CD4+ T 细胞、CD8+ T 细胞、巨噬细胞、中性粒细胞和树突状细胞(DCs)的浸润水平呈正相关。部分 Spearman 相关性分析中将肿瘤纯度作为协变量。缩写:DCs = 树突状细胞;TIMER = 肿瘤免疫估计资源。请点击此处下载该文件。
补充图 S7. 20 对乳腺癌组织及相邻正常组织中 YTHDF3 mRNA 表达的定量反转录聚合酶链式反应验证。 YTHDF3 mRNA 水平经 β-actin 标准化。数据以 2⁻ΔΔCt 值表示。采用双尾配对 Student t 检验对 ΔCt 值进行统计学比较(P = 0.001)。缩写:NC = 相邻正常乳腺组织;BrCa = 乳腺癌组织。请点击此处下载该文件。
补充表 S1. 与 m6A 相关基因的多变量生存分析汇总结果。缩写:HR = 风险比;95% CI = 置信区间。请点击此处下载该文件。
补充表 S2. 基于 Metascape 的 13 个 YTHDF3 相关基因的注释与富集结果。请点击此处下载该文件。
补充表 S3. 20 对乳腺癌配对样本的临床信息。请点击此处下载该文件。
讨论
尽管治疗手段不断进步,乳腺癌的早期诊断和个体化治疗仍然面临挑战,亟需发现新的分子靶点21。 本研究整合了多组学数据,系统表征了乳腺癌中与m6A相关的基因。研究结果表明,这些基因普遍存在失调现象,且大多独立于启动子甲基化或基因扩增;同时发现多个基因(尤其是YTHDF3)的异常表达与不良预后相关。我们进一步在临床样本中验证了YTHDF3的上调表达,并预测其参与多种癌症相关通路。
m6A 甲基化由包含“书写器”复合物催化完成 WTAP、KIAA1429、RBM15、METTL3 和 METTL1422。尽管 WTAP 在多种恶性肿瘤中具有致癌性23,24,25其在乳腺癌中的下调表明其功能具有情境依赖性。 KIAA1429 上调与其在乳腺癌中调控CDK1的已报道作用一致25. RBM15,已知会影响造血作用和肉瘤26,27,呈上调状态,而 RBM15B 上调与更好的生存率相关,这与其和BAP1的正相关性一致28. METTL3 尽管有报道称其会抑制 let-7g,但他人仍观察到下调现象29,30. METTL14 下调与其通过m6A修饰发挥的肿瘤抑制作用一致31. METTL16 表达仍存在争议,需要进一步研究29,32.
关于“擦除酶”,FTO 在我们的队列中表达下调,这与一些基于 TCGA 的研究结果相似29,尽管也有相反的报道表明其可通过 BNIP3 促进肿瘤进展33。ALKBH5 的表达水平则因对照组不同而有所差异,并已被证实参与缺氧条件下维持乳腺癌干细胞特性34,35 。
含有 YTH 结构域的“阅读器”识别 m6A,此外还包括 HNRNPC 和 HNRNPA2B136。HNRNPA2B1 表达上调,与其在 STAT3/ERK1/2 信号通路中的作用一致37,38。HNRNPC 的上调与其在调控双链 RNA 诱导的干扰素反应中的功能相符39。
YTHDF1 和 YTHDF2 在多种癌症中具有双重作用40,41。越来越多的证据表明 YTHDF3 参与促癌过程:它通过 EGFR/STAT3 通路促进肝细胞癌42,通过 EGFR/ATK/ERK/p21 通路促进胶质母细胞瘤43,并通过代谢重编程促进宫颈癌转移44。本研究发现,在乳腺癌组织中 YTHDF1, YTHDF2 和 YTHDF3 的表达较健康组织上调,其中 YTHDF3 的上调已通过实验进一步验证。这支持对 YTHDF3 在乳腺癌中的作用进行更深入的研究。YTHDC1 和 YTHDC2 在乳腺癌中表达下调,尽管其他研究报道其在子宫内膜癌和结肠癌中具有促转移作用45,46。
IGF2BP 蛋白还可作为 m6A 读取蛋白47. IGF2BP1 上调与其已知的支持克隆形成生长的作用一致48. IGF2BP2 表达下调,可能由于启动子甲基化所致,这与该基因具有促迁移作用的既往报道形成对比49. IGF2BP3 上调与其通过TRIM25促进增殖的作用一致50 IGF2BP2在三阴性乳腺癌中的协同转移作用51. eIF3A,尽管在此处表达下调,但仍被提议作为治疗靶点52,53. 拷贝数增加已被报道与其他癌症中 YTHDF1 和 IGF2BP1 的表达相关54. 这些发现进一步证实,m6A 调控异常在乳腺癌中普遍存在。
重要的是,我们确定 YTHDF3 是一个独立的预后因子,这与近期多项研究结果相一致55,56,57,58,59。其他 m6A 相关基因如 FTO 和 IGF2BP3 也已被证实与乳腺癌的不良预后及化疗耐药性相关33,60,61。
我们的通路富集分析突显了YTHDF3在RNA代谢中的预期作用62。更值得注意的是,它提示YTHDF3可能通过ALKBH家族成员参与DNA去烷基化修复过程63,64 。此外,YTHDF3与通过HNRNPA2B1、SRRT和METTL3介导的初级miRNA加工过程的关联65,66,67,68,以及与通过EXOSC10和DCP2介导的端粒酶稳定性的关联69,提示其可能具有多方面的分子机制。引人注目的是,YTHDF3的过表达已被证实可通过增强ST6GALNAC5和GJA1的翻译促进乳腺癌脑转移70。近期研究进一步拓展了其致癌功能谱:YTHDF3被证明可通过mTOR-HIF1α-LDHA轴增强糖酵解和细胞增殖71;通过m6A依赖性翻译ZEB1和SMAD5促进溶骨性骨转移72;在三阴性乳腺癌中,YTHDF3通过稳定CENPI mRNA驱动肿瘤发生73;并通过招募eIF4B促进Notch2翻译,从而促进上皮-间质转化及转移过程74。一致地,近期研究进一步强调了m6A调控网络在乳腺癌中的广泛作用,包括piR-1170/WTAP介导的脑转移中甲基化重编程75,以及POP1依赖、YTHDF2识别的CDKN1A mRNA在三阴性乳腺癌中的降解机制76。这些研究提示YTHDF3可能参与多种恶性生物学过程。因此,YTHDF3可能是一个有前景的预后生物标志物,但其在乳腺癌生长、凋亡及转移中的具体作用机制仍需进一步深入研究。
有趣的是,TIMER 分析表明,YTHDF3 表达水平与乳腺癌中多种免疫细胞亚群的浸润程度之间存在普遍的正相关关系。这一现象的生物学基础目前尚不清楚,可能反映了 YTHDF3 高表达肿瘤中肿瘤微环境的整体改变。要解析 YTHDF3 在塑造乳腺癌免疫格局中的具体作用,还需开展专门的免疫基因组学和功能研究。
本研究存在若干局限性。首先,分析主要依赖公共数据集;整合TCGA与GTEx数据可能因样本处理、测序平台及标准化流程的差异而引入批次效应,且这些数据库的回顾性特征带有固有的选择偏倚和注释偏倚。其次,临床验证队列样本量较小,随访时间有限,且未纳入新发现的m6A相关基因。第三,缺乏对YTHDF3预后价值的独立队列验证,且mRNA与蛋白表达之间的一致性问题尚未解决。此外,直接 体内 和 体外 目前尚无关于YTHDF3在乳腺癌中生物学功能的证据,未进行药物敏感性或治疗反应性分析,且YTHDF3介导其下游靶标m6A修饰的具体机制尚未被探索。这些局限性提示应对本研究结果的解读保持谨慎。未来需要采用标准化方案、更大样本量并结合功能实验的前瞻性研究,以验证YTHDF3作为生物标志物的潜力,并阐明其在乳腺癌中的分子作用机制。
综上所述,本项整合分析全面评估了乳腺癌中与m6A相关的基因。尽管基因和表观遗传改变对基因表达的影响有限,但这些基因普遍存在异常调控,并与预后相关。我们的研究结果表明,YTHDF3 可能作为独立的预后生物标志物,值得进一步开展针对乳腺癌的生物学研究。
披露
作者声明无利益冲突。
致谢
本工作由四川省自然科学基金(资助号:2022NSFSC1425)、四川省医学会肿瘤学专项研究项目(资助号:2024HR20)、泸州-西南医科大学联合科研项目(资助号:2024LZXNYDJ051)、北京希思科临床肿瘤学研究基金会(资助号:Y-SS2025MS-0009)和北京科创医学发展基金会(资助号:KC2023-JX-0288-BM74)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 乳腺癌基因表达 分析工具 v4.7 | 综合肿瘤学中心 组学数据科学单元 | http://bcgenex.ico.unicancer.fr/ | 用于获取GTEx正常乳腺 组织表达数据;见方法/ 数据可获得性部分 |
| cBioPortal | 不适用 | https://www.cbioportal.org/ | 基因改变和拷贝数 改变分析;见方法/ 数据可获得性部分 |
| 临床蛋白质组肿瘤分析 联盟(CPTAC) | 临床蛋白质组肿瘤分析 联盟 | 不适用 | 通过UALCAN使用的 蛋白质组数据集;见方法/ 数据可获得性部分 |
| 基因型-组织表达(GTEx) 项目 | GTEx联盟 | dbGaP登录号 phs000424.v8.p2 | 正常乳腺组织表达 数据来源;见方法/ 数据可获得性部分 |
| Hieff qPCR SYBR Green Master Mix (无Rox) | YEASEN | qPCR预混液;见作者 修订部分 | |
| Hifair III 1st Strand cDNA Synthesis SuperMix for qPCR | YEASEN | 第一链cDNA合成;见 作者修订部分 | |
| Kaplan-Meier Plotter(KMplotter) | 不适用 | https://kmplot.com | 在线生存验证工具;见 方法/数据可获得性部分 |
| Metascape | 由NIH基金 U19 AI106754 U19 AI135972 R01 DA03373支持 | http://metascape.org/ | 基因注释和通路 富集分析;见 方法/ 数据可获得性部分 |
| MethHC | 不适用 | http://methhc.mbc.nctu.edu.tw/ | DNA启动子甲基化数据/ 资源;见方法/数据 可获得性部分 |
| NanoDrop 2000分光光度计 | Thermo Fisher Scientific | RNA浓度和纯度 测定;见作者 修订部分 | |
| QuantStudio 7 Flex 实时PCR 系统 | Applied Biosystems | 定量实时PCR;见 作者修订部分 | |
| SPSS 13.0 | 稿件中未提供 | 版本 13.0 | 统计分析;见作者 修订部分 |
| STRING v12.0 | STRING联盟 | https://string-db.org/ | 蛋白质-蛋白质相互作用网络 分析;置信度评分0.4;见图4/ 数据可获得性部分 |
| 癌症基因组图谱(TCGA-BRCA) | 癌症基因组图谱 | TCGA-BRCA | 基因表达、临床数据、 基因改变/拷贝数 数据集来源;见方法/ 数据可获得性部分 |
| 人类蛋白质图谱 | 人类蛋白质图谱 | https://www.proteinatlas.org/ | 用于获取TCGA乳腺 癌RNA-seq表达和 临床数据的来源;见方法/ 数据可获得性部分 |
| TIMER | X Shirley Liu 实验室 | https://cistrome.shinyapps.io/timer/ | 免疫浸润分析;见 方法/数据可获得性部分 |
| TRIzol试剂 | Invitrogen | RNA提取;见作者 修订部分 | |
| UALCAN | 阿拉巴马大学伯明翰 分校 | http://ualcan.path.uab.edu/ | 基于CPTAC和 TCGA数据的蛋白质和mRNA 表达分析;见方法/数据 可获得性部分 |
参考文献
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.