本方案介绍了用于力-免疫调节研究的专利生物反应器的安装与操作。在此,我们使用一种可模拟生理力的定制生物反应器,证明巨噬细胞对机械刺激会产生显著的促炎性反应。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
炎症是一种复杂的生理过程,可驱动急性和慢性疾病的发生发展。该过程受到一系列级联的生化与生物物理信号调控,进而引发免疫细胞的活化。巨噬细胞是一类主要的免疫细胞,参与多种炎症相关疾病,包括癌症、纤维化以及自身免疫性疾病。传统研究巨噬细胞活化的方法通常采用特定的细胞因子或趋化因子进行生化刺激,使巨噬细胞向促炎或抗炎状态的极端表型转化。新兴证据表明,除组织内的生化信号外,生物物理信号也在巨噬细胞活化中发挥重要作用。其中一种常见的机械刺激是蠕动运动,表现为多轴应变与剪切应力,存在于胃肠道、子宫、发育中的气道以及输尿管等组织中。本研究旨在验证蠕动运动可能激活巨噬细胞的假设。本文描述了一种利用蠕动生物反应器研究巨噬细胞机械活化的方法。采用聚二甲基硅氧烷(PDMS)膜并以纤连蛋白包被,以增强巨噬细胞的黏附。将永生化小鼠骨髓来源巨噬细胞(iBMDM)接种于纤连蛋白包被的膜上,一部分作为静态对照组培养,另一部分则暴露于模拟蠕动环境4小时。结果显示,蠕动刺激可激活巨噬细胞,并在基因表达水平上观察到显著差异 Il6 (静态对照的50.9倍;) p < 0.0001, t检验)和 Nos2 (静态对照的19.8倍; p = 0.0046)。有趣的是,在以下情况中未观察到显著变化 Chil3 (静态对照的1.22倍; p = 0.9726)或 Mrc1 (静态对照的1.16倍; p = 0.9810) 与静态对照相比,表明力学因素主要是促炎性活化的主要驱动因素。当前的研究结果支持巨噬细胞的力-免疫调控概念,尤其是在响应遍布多种以平滑肌为基础的组织中的蠕动力学时。
引言
巨噬细胞是天然免疫细胞,通过吞噬作用和细胞因子分泌,在宿主防御、组织重塑和炎症调控中发挥关键作用1,2,3,4. 根据刺激的不同 在体 微环境,未分化的巨噬细胞(M0)可可塑性极化为促炎性(M1)或抗炎/促再生性(M2)表型5,6. 体外 模型通常用于分离这些不同的刺激因素,以更好地理解驱动巨噬细胞极化的复杂机制。经典激活的 M1 巨噬细胞通常被诱导产生 体外 通过生化刺激物如脂多糖(LPS)和干扰素γ(IFN-γ)诱导,导致炎症介质的表达增加,包括诱导型一氧化氮合酶(iNOS)、白细胞介素-6(IL6)和肿瘤坏死因子α(TNF-α)7,8. 通过暴露于白细胞介素-4(IL-4)和白细胞介素-13(IL-13)通常可诱导产生替代性活化的M2型巨噬细胞,促进组织重塑和伤口愈合反应8,9M2 巨噬细胞根据不同的激活通路和表面标志物表达谱,进一步分为 M2a、M2b 和 M2c 表型。10,11尽管巨噬细胞极化的生化调控已在体外和体内被广泛表征, 在体 和 体外 系统中,巨噬细胞存在于包含显著生物物理刺激的高度动态微环境中12除了可溶性细胞因子和趋化因子外,巨噬细胞还暴露于细胞外基质和细胞间相互作用、基质硬度、流体剪切应力、静水压力以及周期性组织形变之中。12,13,14作为机械敏感性细胞,巨噬细胞能够响应这些物理信号而改变其炎症表型,凸显了力学生物学在免疫调控中的重要性。
越来越多的文献表明,单独的机械刺激 体外 可显著影响巨噬细胞的活化状态(图1与较软基质相比,较硬基质的暴露增强了M1极化及炎症细胞因子的产生,而较软基质则诱导了促再生表型。15,16,17,18,19,20同样,流体剪切应力以幅度依赖的方式调节巨噬细胞表型,低水平的间质液流通常促进促再生性活化21,22 而较高的剪切应力(类似于动脉中观察到的数值)可能诱导促炎性反应23,24,25,26,27,28. 周期性拉伸 体外 旨在模拟肌肉骨骼、心肌、肺部和肠道组织力学特性的模型也显示出炎症介质表达的增加,但其结果因施加力的大小、持续时间、频率和作用维度的不同而有所差异29,30,31,32此外,巨噬细胞的机械敏感性在不同物种和细胞来源之间存在差异,凸显了在力生物学研究中选择合适实验模型的重要性13,14.
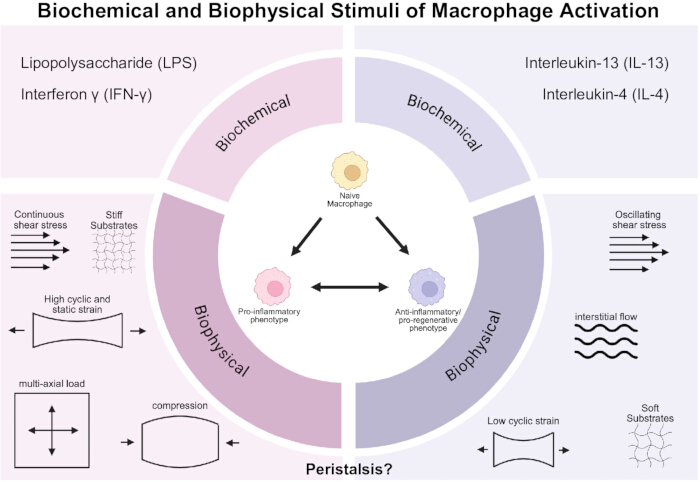
图1示意图展示 体外 巨噬细胞活化为促炎性或促再生状态的生化与生物物理刺激因素。 巨噬细胞可被刺激进入促炎状态 体外 通过添加化学刺激物脂多糖(LPS)、干扰素γ(IFN-γ),或暴露于机械刺激,包括剪切应力、刚度增加、高周期性和静态单轴拉伸诱导的应变、压缩以及多轴压缩诱导的应变,可将巨噬细胞刺激进入促再生状态。 体外 添加化学刺激物,白细胞介素-13(IL-13)和IL-4。当受到机械刺激(如振荡剪切应力、组织液流动、柔软基质或低水平单轴循环拉应变)作用时,它们也可转变为促再生表型。 请点击此处以查看此图的放大版本。
除了独立研究孤立的机械刺激外,还应在此基础上进一步探究复合物理力的影响,因为巨噬细胞 在体 常同时暴露于多种力的共同作用。蠕动便是这样一种复杂的力学环境,由平滑肌收缩产生的多轴循环应变和流体剪切应力同时存在而形成33这些机制存在于多个器官系统中,包括胃肠道、发育中的呼吸道、血管系统、子宫和输尿管。34,35,36重要的是,蠕动功能在包括纤维化、炎症性肠病、癌症和气道重塑性疾病等多种炎症性疾病中经常出现失调,这些疾病均涉及显著的巨噬细胞介导的炎症反应33,37,38,39尽管巨噬细胞在这些疾病中的作用已被认可,但关于蠕动产生的机械力如何直接影响巨噬细胞活化的机制,目前仍存在关键性的认知空白。
本方案描述了使用蠕动生物反应器系统在生理相关的力学条件下研究巨噬细胞力-免疫调控的方法。与传统的静态培养系统或单一力学刺激平台相比,该方法能够同时施加周期性多轴应变和流体剪切应力,更真实地模拟体内力学微环境 体内 基于平滑肌组织的力学微环境。在本方案中,将永生化小鼠骨髓来源巨噬细胞(iBMDMs)在生物反应器中培养并施加蠕动条件,结果显示其M1活化标志物显著升高,而未见M2活化趋势。这些结果表明,蠕动力学足以调节巨噬细胞的炎症行为,支持了在暴露于动态平滑肌驱动的组织中存在力-免疫调控(mechano-immunomodulation)的广泛概念。该方法特别适用于研究力学生物学、炎症、组织工程、胃肠道生理、肺发育、纤维化及其他巨噬细胞暴露于复杂力学微环境的疾病的研究人员。通过仔细组装、持续校准和实时监测,使用者可确保生物反应器性能的可重复性,并避免该技术常见的局限性。
访问受限。请登录或开始试用以查看此内容。
方案
本方案描述了一种用于力-免疫调节研究的专利40生物反应器系统的组装与操作方法。所用试剂和设备列于材料表中。
1. 细胞培养
- 在37 °C、5% CO2条件下,将永生化小鼠骨髓来源巨噬细胞(iBMDMs)培养于添加了10%热灭活胎牛血清(FBS)、1% HEPES缓冲液、1%丙酮酸钠和1%青霉素-链霉素的完全RPMI 1640培养基中。
2. 聚二甲基硅氧烷(PDMS)的制备
- 按10:1(w/w)的质量比称量并混合硅橡胶试剂盒的基料与固化剂。
- 搅拌混合物5分钟,确保均匀混合。
- 将混合好的PDMS小心倒入一个100 mm × 15 mm的方形培养皿中,直至PDMS高度达到3 mm。
- 将装有PDMS的培养皿放入真空干燥器中。
- 在真空条件下脱气1小时,以去除气泡。
- 从真空干燥器中取出PDMS,确认无残留气泡。
- 将未固化的PDMS膜转移至预热至60 °C的烘箱中,固化4小时。
- 从烘箱中取出PDMS膜,置于实验台面上过夜冷却。
- 18–24小时后,小心地将固化的PDMS膜从培养皿上剥离,并切割成70 mm × 40 mm × 3 mm的PDMS膜。
3. PDMS 膜的灭菌
- 在生物安全柜内,用70%乙醇冲洗PDMS膜,并将其直接放置在生物安全柜(BSC)表面(补充 图1)。
- 用紫外光灭菌10分钟,然后将PDMS膜转移至未经组织培养处理的90 mm培养皿中,紫外照射面朝上。
注意:操作时应仅从PDMS膜的边缘抓取,切勿将手交叉置于PDMS膜上方,以降低污染风险。 - 进行蠕动实验时,使用原始尺寸的PDMS膜。
- 在静态培养条件下,将每片70 mm × 40 mm的PDMS膜切成两个相等的35 mm × 40 mm半片。
4. PDMS 膜的纤连蛋白包被
- 在生物安全柜内,配制足量的无菌磷酸盐缓冲液(PBS)中含0.5 mg/mL纤连蛋白的溶液,每片膜加入100 µL。
- 将100 µL该包被溶液滴加至每片PDMS膜的中心位置,确保包被区域与PDMS膜和螺钉接触的区域精确对齐。
注意:使用移液器吸头轻轻将溶液铺展成一层薄而均匀的液膜。 - 将包被后的PDMS膜置于培养皿中,打开皿盖,静置45分钟以促进吸附。
注意:保持生物安全柜前窗开启,以维持持续的气流。 - 45分钟后,吸除每片膜上残留的纤连蛋白溶液。
- 用1 mL无菌PBS轻轻冲洗膜表面。
5. 在PDMS膜上接种iBMDM细胞
- 当T25培养瓶中的iBMDM细胞融合度达到70%–80%时,用胰蛋白酶消化细胞,使其从培养表面脱落。
- 使用血细胞计数板测定细胞浓度,并将细胞重悬于培养基中,调整细胞密度至100,000个细胞/mL。
- 在每张纤维连接蛋白包被的PDMS膜上接种1 mL上述制备的细胞悬液。
- 每次实验至少需接种一张静态膜和一张蠕动膜,以确保不同条件间的平行对照。
- 将接种后的PDMS膜置于37 °C、5% CO2的加湿培养箱中孵育至少24小时,使细胞在静态和蠕动条件下均充分贴壁(补充 图1B)。
6. 生物反应器
- 根据生物反应器专利(US12522795)40 中提供的计算机辅助设计(CAD)文件和规格制造生物反应器,或从作者处获取预组装的装置。
7. Arduino 电路组装与校准
- 电路构建
- 使用电位计、电阻、晶体管和导线,按照图示在面包板上组装控制电路 补充材料 图2.
- 在计算机上安装 Arduino IDE 并打开一个新草图。
- 将电机转速设为 5 转/分钟(RPM),蠕动泵流速设为 28 mL/min。
- 将 Arduino 开发板连接到计算机 通过 USB并上传所提供的代码 补充文件 1 使用 IDE 中的上传按钮。
注意:在上传过程中,Arduino 的 LED 会变为橙色,准备就绪后将恢复为绿色。上传完成后,Arduino 在通电时将自动运行程序。
- 电机校准
- 启动电机,使用秒表计时1分钟并记录转数。
注意:根据需要调整 Arduino 代码中的电机转速参数,以达到 5 RPM。 - 每次调整后重新上传代码,直至达到所需速度。
- 启动电机,使用秒表计时1分钟并记录转数。
- 泵的校准
- 运行泵30秒,称量收集到的质量,以确认流速为28 mL/min(30秒内约14 g)
- 调节电位计并重复操作,直至30秒时的输出稳定在14 g左右。
- 电机和泵均校准后,将其与生物反应器单元配对使用。
注意:校准后的电机-泵-生物反应器组件现已可进行实验使用(图2).
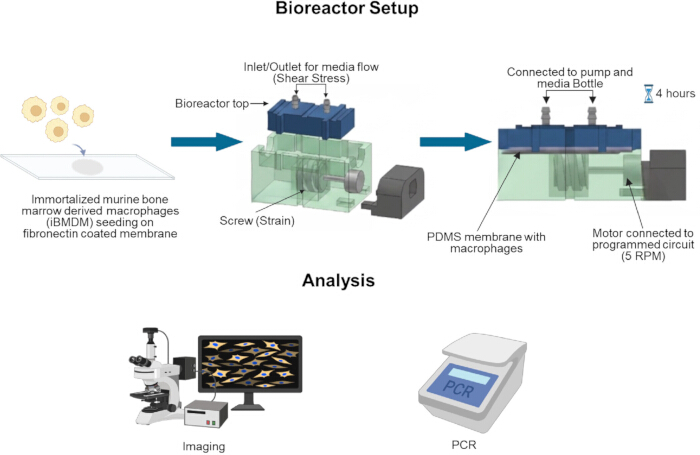
图2:蠕动生物反应器组装及下游分析示意图。iBMDM细胞接种于纤维连接蛋白包被的PDMS膜上,该膜置于生物反应器内部。经4小时蠕动刺激或作为静态对照维持后,收集细胞用于下游分析,包括qPCR、免疫荧光染色和成像。请点击此处查看该图的放大版本。
8. 蠕动生物反应器的组装与设置
- 组件的准备
- 收集所有所需组件,包括培养基瓶、培养基瓶盖、3D打印的培养基瓶顶盖、3D打印的生物反应器顶盖、3D打印的生物反应器底座、3D打印的螺杆驱动装置、扎带(每个生物反应器使用三条)、管钳、斜口钳、150 mm细胞培养皿、硅脂以及3D打印的电机支架。将各组件放入生物安全柜(BSC)前,先用70%乙醇喷洒表面进行消毒。
- 将直流电机、蠕动泵和一段额外的泵管置于生物安全柜内。
- 关闭生物安全柜盖子,打开紫外灯照射10分钟,以对所有组分进行灭菌(补充图1C).
- 细胞黏附与存活率的验证
- 在显微镜下观察接种后的静态和蠕动PDMS膜。确认 >在纤连蛋白包被的PDMS表面观察到80%的细胞贴壁,并检查细胞形态以评估活性。
- 根据需要,在组装前拍摄细胞的代表性图像。
- 静态对照的制备
- 从每张静态膜中吸出1 mL完全RPMI培养基。
- 向每个膜中加入 1 mL 新鲜的完全 RPMI 培养基。
- 将培养皿标记为静态,并放回培养箱中。
- 蠕动生物反应器的组装
- 向每个指定用于生物反应器的培养基瓶中加入15 mL培养基。
- 将装有3D打印瓶盖(含进/出液口)的培养基瓶盖连接到培养基瓶上,放置备用补充材料 图 1D).
- 组装生物反应器底座。
- 将3D打印的螺丝驱动器插入生物反应器底部的中央孔中。
- 将直流电机插入生物反应器底部的电机插槽中。
- 确保电机驱动轴牢固地插入3D打印螺杆驱动器的中心孔中。
- 将电机支架滑动至指定位置以固定电机。
- 将部分组装好的生物反应器放入一个150 mm的组织培养皿中,以便在组装完成后更方便地从生物安全柜转移至培养箱补充材料 图1E).
- 在PDMS膜将与螺杆驱动接触的螺杆驱动槽上涂抹一层薄薄的硅脂。这可使螺杆易于旋转,减少摩擦。
- 加载接种细胞的PDMS膜
- 将接种细胞的蠕动PDMS膜从培养箱小心转移至生物安全柜中。
- 吸出每张膜上的培养基,将膜放入生物反应器中,使接种细胞的一面朝上,与涂有润滑剂的螺杆驱动接口相对。
- 将生物反应器上部放置到位,使细胞培养腔的凹槽与PDMS膜对齐。将上部沿生物反应器底部的导引槽滑入。
- 固定生物反应器
- 使用扎带和斜口钳固定生物反应器的顶部和底部。
- 用钳子剪去多余的扎带长度。
- 流体连接与系统设置
- 将蠕动泵对齐,使其金属连接端与电机连接端朝向相同方向。
- 将最靠近生物反应器的泵管连接到生物反应器顶部靠近电机的进样口。将管路完全推入进样接头。
- 将该管路的另一端浸入培养基瓶中。
- 使用一段额外的泵管,将一端连接至生物反应器顶部的出口喷嘴,另一端置于培养基瓶内液面之上,以实现循环流动并防止倒流补充材料 图1F).
- 孵育与操作
- 将整个生物反应器组件(置于150 mm培养皿内)放入培养箱中补充材料 图1G并将电路板/Arduino 置于外部,连接电源。
- 连接鳄鱼夹
- 泵:正极对正极,负极对负极。
- 电机:根据电路设计反转极性。
- 将无菌空培养皿放入培养箱中,以备后续样品采集。
- 让蠕动生物反应器系统运行 4 小时(或所需时长)补充 图1H在培养箱中标准培养条件下。
9. 生物反应器的拆卸
- 打开培养箱,将进液管从培养基瓶中提起,使空气进入系统,并将生物反应器中的残留培养基完全排净。
- 待培养基流动停止后,断开电机和/或泵的导线与电路板的连接,以停止机械运动。
- 将整个生物反应器组件移入生物安全柜,拆除管路,剪断扎带,然后取下生物反应器顶部。
- 用移液法吸除聚二甲基硅氧烷(PDMS)膜上的残留培养基,并将该膜转移回准备过程中使用的同一培养皿中。
- 在细胞培养显微镜下评估细胞形态学,检查细胞贴壁情况和活力,然后根据需要进行后续分析。
10. 下游分析
- qPCR 样本收集
- 在生物安全柜内,用样本标识对 1.5 mL 微量离心管进行标记,包括细胞类型和实验条件。
- 使用细胞培养显微镜检查静态和蠕动条件下 PDMS 上是否仍有细胞存在。
- 吸除各 PDMS 膜上的残留培养基。
- 新鲜配制 RNA 裂解缓冲液:按 1:100 的比例将 β-巯基乙醇加入 Buffer RLT 中。
- 向每张 PDMS 膜中加入 370 µL Buffer RLT + β-巯基乙醇,以裂解细胞。
- 使用无菌细胞刮刀,用力刮取 PDMS 上接种细胞的区域,使所有细胞脱落。
- 将约 350 µL 裂解液转移至相应的 1.5 mL 管中。
- 立即进行 RNA 提取,或在 -80 °C 下保存样本以备后续使用。
- 对生物安全柜进行去污染处理。
注意:Buffer RLT 和 β-巯基乙醇应根据各自的安全数据表(SDS)进行操作,并置于指定的废液容器中处理。
- 免疫荧光染色
- 向每张膜中加入 1 mL 4% 多聚甲醛(PFA),室温孵育 20 分钟。
- 吸除 PFA 并将其弃入指定的危险废物容器中。
- 向每张膜中加入 1 mL PBS,以去除残留的固定剂。
- 继续按照目标标记物对应的免疫荧光染色方案进行操作。
11. 生物反应器及相关组件的清洗
- 使用70%乙醇喷洒所有接触培养基、细胞或PDMS膜的生物反应器组件,包括生物反应器的进样口和出样口。
- 吸除培养基瓶中残留的培养基,然后充分喷洒70%乙醇冲洗内部,并再次吸除液体。
- 将所有已消毒的组件从生物安全柜中取出,并存放于指定的洁净区域。
- 对于培养基瓶:
- 用20%次氯酸钠溶液清洗,摇晃后将内容物倒入水槽,同时开启自来水冲洗。
- 用1:10稀释的醋酸溶液擦洗,并用肥皂和超纯水清洗,随后用70%乙醇冲洗并倒置晾干。
- 用70%乙醇清洁培养基瓶盖和泵用插件。
- 蠕动泵的清洁
- 准备250 mL烧杯,分别装有(1)70%乙醇、(2)超纯水,或(3)作为空废液收集容器。
- 将泵通过管路连接成闭合流路,并使用Arduino控制的电路板供电运行。
- 先以70%乙醇运行泵1分钟,再以超纯水运行1分钟,冲洗液排入空废液烧杯中。
访问受限。请登录或开始试用以查看此内容。
结果
本方案旨在演示一种可重复的方法,用于确定蠕动性机械力如何直接调控巨噬细胞的活化。在进行生物反应器实验之前,已确认iBMDMs能够对标准生化刺激条件作出适当的极化反应。按照本方案,将PDMS膜用纤连蛋白包被,并接种iBMDMs。细胞接种后孵育24小时,随后进行显微观察,以确认细胞成功贴附、在膜表面分布均匀,并具有活性,表现为厂商描述中的不规则“煎蛋样”形态(图3A,B)。若膜上出现贴附不良、接种不均或细胞脱落现象,则排除该样本,因为这些情况可能导致机械刺激不一致以及下游信号通路的变异性。成功接种的膜被用于组装至生物反应器系统以接受蠕动刺激,或作为静态对照组维持培养。培养4小时后,重新评估样本,以确认细胞在机械刺激后仍保持贴附状态(图3C,D)。在确认所有实验条件下细胞均保持附着后,通过qPCR和免疫荧光染色检测巨噬细胞的活化情况。
采用qPCR分析评估促炎性M1相关基因Il6、
访问受限。请登录或开始试用以查看此内容。
讨论
尽管肠道蠕动失调在炎症性疾病中普遍存在,但目前对蠕动作用力如何影响巨噬细胞功能的理解仍然有限。虽然已知剪切应力和周期性应变等单一机械刺激能够调节巨噬细胞的活化状态,但在巨噬细胞力学生物学背景下,同时包含多轴应变与流体流动的复合机械刺激(即蠕动)的影响尚未得到充分研究。本文所述的实验方案提供了一个可重复的研究平台,用于在生理相关条件下探究这些复合机械力如何调控巨噬细胞的炎症行为。利用该系统,研究发现暴露于蠕动刺激4小时可促进巨噬细胞呈现以Il6和Nos2基因表达显著上调为主要特征的促炎表型。
重要的是,巨噬细胞的机械敏感性高度依赖于施加力的大小、频率和持续时间12,13,14。以往针对单一机械刺激的研究表明,巨噬细胞的活化状态会因这些参数的不同而发生显著变化。因此,未来的研究应探索更广泛的蠕动条件,包括改变的应变和剪切应力,以及延长机械刺激的时间,以更全面地界定蠕...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
本工作由美国国家科学基金会资助,项目编号为2440798。图1 和 图2 使用 BioRender.com 的授权版本制作。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.25% 胰蛋白酶-EDTA | Fisher | 25200056 | |
| 1.5 mL 微量离心管 | USA Scientific | 1615-5510 | |
| 100 mm × 15 mm 培养皿 | Fisher | 50-190-0276 | |
| 150 mm 培养皿 | Fisher | FB012925 | |
| 4% 多聚甲醛 | Santa Cruz | sc-281692 | |
| 90 mm 培养皿 | Fisher | FB012923 | |
| Alexa Fluor 488 抗 F4/80 抗体 | Abcam | ab204266 | |
| Alexa Fluor 647 抗 CD40 抗体 | Abcam | ab275158 | |
| Arduino Uno | Amazon | B008GRTSV6 | |
| 面包板 | Amazon | ||
| Buffer RLT | Qiagen | 79216 | |
| 细胞刮刀 | Fisher | 353087 | |
| DAPI | MilliporeSigma | 50-874-10001 | |
| 干燥器 | MilliporeSigma | Z119008 | |
| 斜口钳 | Amazon | ||
| 胎牛血清 | Innovative Biosciences | 11-01-500 | |
| 纤连蛋白 | MilliporeSigma | F1141-1MG | |
| HEPES 缓冲液 | Fisher (Gibco) | 15630080 | |
| iBMDM | Applied Biological Materials Inc. (abm) | T0673 | |
| 电机 | Robotshop | FT-SPARK16-360 | |
| PE 抗 Ym-1 + Ym-2 抗体 | Abcam | ab211621 | |
| 青霉素-链霉素 | Fisher | 15140122 | |
| 蠕动泵 | DigiKey | 1150 | |
| 磷酸盐缓冲液 | Fisher | 14190250 | |
| PLA 丝材 | Amazon | B0D7ZYCVTY | |
| 电位器 B1K 1K 欧姆 | Amazon | B0CZ747F6F | |
| RPMI 1640 | Fisher | 11875085 | |
| 硅脂 | Amazon | B000XBH9HI | |
| 管接钳 | Amazon | ||
| 丙酮酸钠 | Cytiva Hyclone | SH3023901 | |
| Sylgard 184 硅橡胶试剂盒 | Fisher | NC9285739 | |
| T-25 培养瓶 | Fisher | 229331 | |
| 晶体管 | DigiKey | IRF520NPBF-ND | |
| 导线/鳄鱼夹 | Amazon | ||
| 18 英寸扎带 | Amazon | ||
| β-巯基乙醇 | Fisher | AC125472500 |
参考文献
- Mass E, Nimmerjahn F, Kierdorf K, Schlitzer A. Tissue-specific macrophages: how they develop and choreograph tissue biology. Nat Rev Immunol. 2023;23(9):563-579.
- Kumar V, Kumar V. Macrophages: the potent immunoregulatory innate immune cells. In: Macrophage Activation - Biology and Disease. London: IntechOpen; 2019. doi:10.5772/intechopen.88013.
- Ross EA, Devitt A, Johnson JR. Macrophages: the good, the bad, and the gluttony. Front Immunol. 2021;12:708186.
- Sreejit G, Fleetwood AJ, Murphy AJ, Nagareddy PR. Origins and diversity of macrophages in health and disease. Clin Transl Immunology. 2020;9(12):e1222.
- Locati M, et al. Diversity, mechanisms, and significance of macrophage plasticity. Annu Rev Pathol. 2020;15:123-147.
- Mosser DM, Edwards JP. Exploring the full spectrum of macrophage activation. Nat Rev Immunol. 2008;8(12):958-969.
- Boutilier AJ, Elsawa SF. Macrophage polarization states in the tumor microenvironment. Int J Mol Sci. 2021;22(13):6995.
- Orecchioni M, Ghosheh Y, Pramod AB, Ley K. Macrophage polarization: different gene signatures in M1 (LPS+) versus classically and M2 (LPS−) versus alternatively activated macrophages. Front Immunol. 2019;10:1084.
- Huang X, Li Y, Fu M, Xin HB. Polarizing macrophages in vitro. Methods Mol Biol. 2018;1784:119-126.
- Gharavi AT, et al. The role of macrophage subtypes and exosomes in immunomodulation. Cell Mol Biol Lett. 2022;27(1):83.
- Peng Y, et al. Regulatory mechanism of M1/M2 macrophage polarization in the development of autoimmune diseases. Mediators Inflamm. 2023;2023:8821610.
- Clevenger AJ, Jha A, Moore E, Raghavan SA. Manipulating immune activity of macrophages: a materials and mechanics perspective. Trends Biotechnol. 2025;43(1):33-49.
- Khanmohammadi M, Mirzaalikhan Y, Baratchi S. Immunity in motion: the role of mechanics in macrophage biology. Cell Chem Biol. 2025;32(12). doi:10.1016/j.chembiol.2025.11.004.
- Adams S, et al. Mechano-immunomodulation: mechanoresponsive changes in macrophage activity and polarization. Ann Biomed Eng. 2019;47(11):2213-2231.
- Meizlish ML, et al. Mechanosensing regulates tissue repair program in macrophages. Sci Adv. 2024;10(11):adk6906.
- Lee M, Du H, Winer DA, Clemente-Casares X, Tsai S. Mechanosensing in macrophages and dendritic cells in steady-state and disease. Front Cell Dev Biol. 2022;10:1044729.
- Chen M, et al. Substrate stiffness modulates bone marrow-derived macrophage polarization through NF-κB signaling pathway. Bioact Mater. 2020;5(4):880-890.
- Blakney AK, Swartzlander MD, Bryant SJ. The effects of substrate stiffness on the in vitro activation of macrophages and in vivo host response to poly(ethylene glycol)-based hydrogels. J Biomed Mater Res A. 2012;100A(6):1375-1386.
- Sridharan R, Cavanagh B, Cameron AR, Kelly DJ, O'Brien FJ. Material stiffness influences the polarization state, function and migration mode of macrophages. Acta Biomater. 2019;89:47-59.
- Previtera ML, Sengupta A. Substrate stiffness regulates proinflammatory mediator production through TLR4 activity in macrophages. PLoS One. 2015;10(12):e0145813.
- Song C, et al. Microfluidic three-dimensional biomimetic tumor model for studying breast cancer cell migration and invasion in the presence of interstitial flow. Chin Chem Lett. 2019;30(5):1038-1042.
- Li R, et al. Interstitial flow promotes macrophage polarization toward an M2 phenotype. Mol Biol Cell. 2018;29(16):1927-1940.
- Son H, et al. Shear stress induces monocyte/macrophage-mediated inflammation by upregulating cell-surface expression of heat shock proteins. Biomed Pharmacother. 2023;161:114566.
- Zhou H, Scatena M, Tu LN, Giachelli CM, Nigam V. Monocyte adhesion to and transmigration through endothelium following cardiopulmonary bypass shearing is mediated by IL-8 signaling. Front Cardiovasc Med. 2024;11:1454302.
- Jui E, et al. Shear stress induces a time-dependent inflammatory response in human monocyte-derived macrophages. Ann Biomed Eng. 2024;52(11):2690-2705.
- Castro-Núñez L, Dienava-Verdooold I, Herczenik E, Mertens K, Meijer AB. Shear stress is required for the endocytic uptake of the factor VIII-von Willebrand factor complex by macrophages. J Thromb Haemost. 2012;10(9):1929-1937.
- Cheng C, et al. Atherosclerotic lesion size and vulnerability are determined by patterns of fluid shear stress. Circulation. 2006;113(23):2744-2753.
- Seneviratne AN, et al. Low shear stress induces M1 macrophage polarization in murine thin-cap atherosclerotic plaques. J Mol Cell Cardiol. 2015;89(Pt B):168-172.
- Bonito V, de Kort BJ, Bouten CVC, Smits AIPM. Cyclic strain affects macrophage cytokine secretion and extracellular matrix turnover in electrospun scaffolds. Tissue Eng Part A. 2019;25(17-18):1312-1325.
- Ballotta V, Driessen-Mol A, Bouten CVC, Baaijens FPT. Strain-dependent modulation of macrophage polarization within scaffolds. Biomaterials. 2014;35(18):4919-4928.
- Dziki JL, et al. The effect of mechanical loading upon extracellular matrix bioscaffold-mediated skeletal muscle remodeling. Tissue Eng Part A. 2018;24(1-2):128-139.
- Wehner S, et al. Mechanical strain and TLR4 synergistically induce cell-specific inflammatory gene expression in intestinal smooth muscle cells and peritoneal macrophages. Am J Physiol Gastrointest Liver Physiol. 2010;299(5):G1187-G1197.
- Clevenger AJ, et al. Rapid prototypable biomimetic peristalsis bioreactor capable of concurrent shear and multiaxial strain. Cells Tissues Organs. 2023;212(1):57-72.
- Huizinga JD. Gastrointestinal peristalsis: joint action of enteric nerves, smooth muscle, and interstitial cells of Cajal. Microsc Res Tech. 1999;47(4):239-247.
- Kunz G, Leyendecker G. Uterine peristaltic activity during the menstrual cycle: characterization, regulation, function and dysfunction. Reprod Biomed Online. 2002;4(Suppl 3):5-9.
- Hosseini G, et al. A computational model of ureteral peristalsis and an investigation into ureteral reflux. Biomed Eng Lett. 2018;8(1):91-101.
- Clevenger AJ, et al. Peristalsis-associated mechanotransduction drives malignant progression of colorectal cancer. Cell Mol Bioeng. 2023;16(4):315-330.
- Leyendecker G, Kunz G, Wildt L, Beil D, Deininger H. Uterine hyperperistalsis and dysperistalsis as dysfunctions of the mechanism of rapid sperm transport in patients with endometriosis and infertility. Hum Reprod. 1996;11(7):1542-1551.
- Iwakiri K, et al. Mechanisms underlying excessive esophageal acid exposure in patients with gastroesophageal reflux disease. Esophagus. 2017;14(3):213-218.
- Raghavan S, Crawford LZ. 3D rapid prototypable tunable peristalsis bioreactor. United States patent. 2022: US12522795.
访问受限。请登录或开始试用以查看此内容。