本方案描述了体内和体外研究N-乳酸-苯丙氨酸如何影响糖尿病性心肌病、心脏脂质代谢及胆固醇合成的方法,重点聚焦于单磷酸腺苷激活的蛋白激酶α1/3-羟基-3-甲基戊二酰辅酶A还原酶通路。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
糖尿病心肌病(DCM)是糖尿病最严重的并发症之一。N-乳酸-苯丙氨酸(Lac-Phe)是一种内源性代谢物,能够促进体重减轻并改善葡萄糖稳态。本研究旨在探讨Lac-Phe对DCM的治疗作用,并进一步探索其潜在机制。采用Lac-Phe处理患有DCM的2型糖尿病小鼠。结果显示,Lac-Phe可增强心脏收缩功能,改善病理性重塑,并减少心脏中的脂质积聚。在体外实验中,研究了Lac-Phe在高糖和棕榈酸刺激的H9c2细胞中的作用。Lac-Phe通过降低H9c2细胞中的胆固醇合成,减少了脂质积聚。机制上,Lac-Phe促进了腺苷单磷酸激活的蛋白激酶α1(AMPKα1)的磷酸化及其活化。随后,活化的AMPKα1磷酸化并抑制其下游靶点——3-羟基-3-甲基戊二酰辅酶A还原酶(HMGCR),从而减少胆固醇合成,最终改善H9c2细胞中的脂质代谢失衡。这些结果表明,Lac-Phe通过AMPKα1/HMGCR通路改善DCM中H9c2细胞的脂质代谢,进而增强心脏收缩功能并缓解病理性重塑。Lac-Phe可能成为治疗糖尿病心肌病的一种潜在策略。
引言
糖尿病是一种以持续性高血糖为特征的代谢性疾病1。在过去二十年中,糖尿病已成为全球十大死亡原因之一,每年有超过六百万人死于糖尿病及其并发症2。糖尿病心肌病(DCM)是由糖尿病引起的心脏病理状态,是糖尿病最严重的并发症之一3,4。它作为心力衰竭的独立危险因素,其特征是心肌结构和功能的改变5,6,包括心肌纤维化和心肌细胞肥大,最终导致舒张功能和收缩功能障碍。尽管目前临床上已采用多种传统心血管治疗手段,如β受体阻滞剂、血管紧张素转换酶抑制剂和血管紧张素II 1型受体阻滞剂来管理DCM7,8,但其疗效在临床实践中仍不理想。由于DCM的发病机制尚未被充分研究9,目前尚无明确针对该疾病的治疗策略10,11。DCM的临床表现从早期无症状的舒张功能障碍,进展至晚期的收缩功能障碍和临床心力衰竭,甚至死亡12,13。因此,迫切需要探索并开发针对该病的有效治疗方案。
脂质代谢失衡是糖尿病性心肌病(DCM)的关键特征之一14。在DCM中,血液中游离脂肪酸(FFAs)水平升高可导致心肌细胞对脂肪酸的过度摄取15,16。心肌细胞中的脂肪酸代谢主要依赖于脂肪酸氧化。随着时间推移,心肌细胞中的脂肪酸氧化不足以完全代谢所摄入的全部脂肪酸,导致过量的脂肪酸及其中间代谢产物在心肌细胞内积聚17。这种过量的脂质负荷会引发脂毒性,破坏心肌能量供应,并促进心脏氧化应激和炎症反应,最终对心肌细胞造成严重损伤18,19。因此,积极调控心脏脂质代谢可能成为DCM的一种潜在治疗靶点20。
N-乳酰基-苯丙氨酸(Lac-Phe)是一种内源性代谢物,其浓度在运动后迅速升高21。从机制上讲,Lac-Phe由细胞质酶肌肽二肽酶2(CNDP2)通过乳酸与苯丙氨酸的缩合反应合成。该生物合成途径广泛分布于多种细胞类型中,包括巨噬细胞、上皮细胞和间充质干细胞,这些细胞在体力活动后将Lac-Phe分泌到循环系统中22。长期给予Lac-Phe已被证明可有效减少食物摄入,降低肥胖程度和体重,并改善葡萄糖稳态21。最近一项研究表明,Lac-Phe可在脊髓损伤后增强小胶质细胞/巨噬细胞的脂质代谢能力23。有趣的是,研究显示,无论是急性还是慢性使用二甲双胍(2型糖尿病的一线治疗药物),均可提高Lac-Phe水平,且Lac-Phe介导了二甲双胍的抗肥胖作用22。此外,Sha等人最近证实,Lac-Phe通过缓解线粒体功能障碍,减轻心肌细胞死亡,从而改善横主动脉缩窄(TAC)诱导的心力衰竭24。长期高血糖和肥胖是导致糖尿病心肌病(DCM)中脂质代谢紊乱的重要因素25。综上所述,这些证据提示Lac-Phe可能对DCM具有潜在的治疗作用。然而,迄今为止,Lac-Phe在DCM中的具体作用尚未被研究。
在本研究中,我们发现对患有糖尿病心肌病的小鼠外源性给予Lac-Phe可有效改善心脏收缩功能,并减轻心脏病理重塑。我们发现Lac-Phe通过调节脂质代谢失衡,改善了糖尿病性心肌病(DCM)小鼠的心脏功能。Lac-Phe减少了DCM小鼠心肌细胞中脂滴(LD)的积聚,并降低了心脏组织中的胆固醇含量。机制上,Lac-Phe促进了腺苷单磷酸活化蛋白激酶α1(AMPKα1)的磷酸化及其活化,进而促进3-羟基-3-甲基戊二酰辅酶A还原酶(HMGCR)的磷酸化。HMGCR的磷酸化会降低其活性,从而减少胆固醇的合成,改善心肌细胞中脂质代谢的失衡。这些结果为Lac-Phe在糖尿病性心肌病潜在治疗中的应用提供了理论基础。
访问受限。请登录或开始试用以查看此内容。
方案
本研究动物实验方案经南京鼓楼医院机构伦理委员会批准(批准号:2025AE1065,2025年9月26日),并严格遵循《 实验室动物护理与使用指南 (第八版),由美国国立卫生研究院出版。
实验动物
本研究使用30只5周龄雄性C57BL/6J小鼠。经过1周适应性饲养后,所有小鼠均在12小时昼夜交替循环、温度22°C ± 2°C、湿度40%–60%的条件下饲养,自由获取食物和水。采用高脂饮食联合低剂量链脲佐菌素建立糖尿病心肌病小鼠模型(图 1A)。开始高脂饮食喂养4周后,小鼠禁食过夜,随后连续三天通过腹腔注射给予链脲佐菌素,剂量为35 mg/kg/天。对照组小鼠饲喂对照饮食,并接受等体积的柠檬酸盐缓冲液。再经过15周的高脂饮食维持后,同时满足随机血糖≥13.3 mmol/L和左心室射血分数<55%两项标准的小鼠被定义为成功建立的糖尿病心肌病模型。这些验证后的糖尿病心肌病小鼠进行编号,并使用随机数字表随机分配到糖尿病心肌病组和糖尿病心肌病+Lac-Phe组。大约一半的小鼠未能成功建模;这些动物根据动物伦理要求被实施安乐死。简而言之,小鼠分为三组:对照组、糖尿病心肌病组和糖尿病心肌病+Lac-Phe组。每组10只小鼠均接受超声心动图检查、体重测量和口服葡萄糖耐量试验。经过28天的治疗期后,收集心脏用于后续分析。每组有10只小鼠。其中,每组3只用于转录组测序,3只用于透射电子显微镜和组织学染色,3只用于蛋白质表达分析。每组剩余的1只小鼠留作备用。成功建立糖尿病心肌病模型后,将Lac-Phe溶解于生理盐水中,终浓度为10 mg/mL。糖尿病心肌病+Lac-Phe组小鼠每天一次连续28天腹腔注射Lac-Phe,剂量为50 mg/kg/天,注射体积为5 mL/kg。对照组和糖尿病心肌病组小鼠则注射等体积的生理盐水作为载体对照。
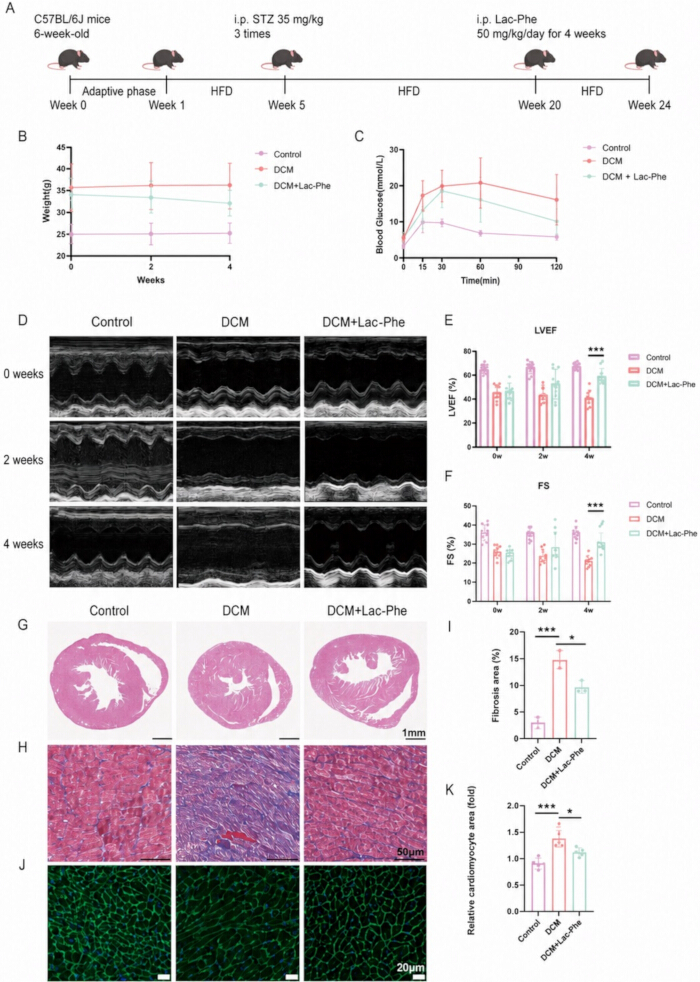
图 1. Lac-Phe 改善糖尿病心肌病小鼠的心脏功能与病理性重构。 (A) HFD/STZ 诱导的 DCM 小鼠模型及 Lac-Phe 给药方案示意图。(B) 对照组、DCM 组及 DCM + Lac-Phe 组小鼠在 4 周治疗期间的体重变化;每组 n = 10。(C) 指定组别的口服葡萄糖耐量试验 (OGTT) 结果;每组 n = 10。(D) 治疗 0、2 和 4 周时的代表性超声心动图图像。(E,F) 左心室射血分数 (LVEF) (E) 和短轴缩短率 (FS) (F) 的定量分析;每组 n = 10。(G) 代表性苏木精和伊红 (H&E) 染色的心脏切片。比例尺 = 1 mm。(H,I) 心脏切片的代表性马松三色染色 (H) 及纤维化面积定量分析 (I);每组 n = 3。比例尺 = 50 μm。(J,K) 心脏切片的代表性麦胚凝集素 (WGA) 染色 (J) 及相对心肌细胞面积定量分析 (K);每组 n = 3。比例尺 = 20 μm。数据以平均值 ± 标准差表示。P < 0.05, **P < 0.001。请点击此处查看此图的放大版本。
心脏功能
小鼠经异氟烷吸入麻醉后,以仰卧位固定于温控平台(37°C)上。使用配备 40 MHz 探头的超声心动图仪测量舒张期和收缩期的左心室尺寸及二尖瓣血流速度,并据此计算左心室射血分数(LVEF)和缩短分数(FS)。每只小鼠连续采集三个心动周期。
细胞处理
H9c2细胞在补充有10%胎牛血清和1%青霉素-链霉素的Dulbecco改良Eagle培养基中,于37°C、含5% CO₂的湿润气氛中培养。细胞在达到70%–80%汇合度时,每2–3天传代一次。实验时,将细胞接种于10 cm培养皿中,然后分为三组:对照组、高葡萄糖/棕榈酸组以及高葡萄糖/棕榈酸 + Lac-Phe组。高葡萄糖/棕榈酸组和高葡萄糖/棕榈酸 + Lac-Phe组的细胞首先暴露于0.25 mM棕榈酸和50 mM葡萄糖中24小时。此后,高葡萄糖/棕榈酸 + Lac-Phe组的细胞在维持高葡萄糖/棕榈酸暴露的同时,用10 μg/mL Lac-Phe处理额外的24小时;高葡萄糖/棕榈酸组细胞在相同的高葡萄糖/棕榈酸条件下接受等体积的PBS。在p-AMPK抑制实验中,10 μM AMPK-IN-3(溶解于DMSO中)与Lac-Phe同时加入处理24小时,相应的对照组接受等体积的DMSO。在阿托伐他汀实验中,处于高葡萄糖/棕榈酸条件下的H9c2细胞用10 μM阿托伐他汀处理24小时,单独使用或与10 μg/mL Lac-Phe联合使用。
组织学染色
在 Lac-Phe 给药 28 天后,采集小鼠心脏,并在 4% 多聚甲醛(pH 7.4)中浸没固定 24 小时。将固定的心脏组织进行石蜡包埋,并切片成 6-μm-厚切片。组织切片采用苏木精-伊红、麦胚凝集素和马松三色法进行染色。所有染色步骤均严格遵循制造商提供的操作流程。全玻片成像在20倍镜下进行。× 使用配备数码相机系统的高分辨率明场显微镜进行放大观察。
蛋白质印迹分析
蛋白质浓度采用 Bradford 法测定。组织裂解物通过 SDS-PAGE 在 10% (w/v) 丙烯酰胺凝胶上分离,并电转移至聚偏二氟乙烯膜上。非特异性结合位点用 5% 牛血清白蛋白在室温下封闭 2 小时。随后,膜在 4°C 下与一抗(稀释比例 1:1,000)孵育过夜,然后在摇床上用 TBST 洗涤六次(每次 5 分钟)。接着,膜在室温下与辣根过氧化物酶标记的二抗(稀释比例 1:5,000)孵育 2 小时,随后再用 TBST 洗涤六次(每次 5 分钟)。蛋白质条带使用增强化学发光试剂盒进行显影。Western blot 结果通过使用 ImageJ 软件进行光密度分析来定量。本研究中使用的所有抗体均列于材料表中。
转录组学
使用 TRIzol 试剂和 RNeasy 微量试剂盒从 C57BL/6J 小鼠的心脏组织中分离总 RNA。使用 2100 生物分析仪评估 RNA 质量,结果显示 RNA 纯度和完整性均较高。根据 VAHTS Universal V10 RNA-seq 建库试剂盒说明书制备 RNA-seq 文库,并使用 Illumina NovaSeq 6000 系统进行测序(单端读长,150 bp)。使用 DESeq2 鉴定差异表达基因,校正后 P 值 < 0.05 且绝对 log₂ 倍数变化 > 1 被认为具有统计学显著性。对差异表达基因进行基因本体论(GO)富集分析,并使用超几何分布算法计算差异表达基因在 GO 条目中富集的显著性。
油红 O 染色与 LD540 脂质染色
心脏组织包埋于 OCT 复合物中,随后切成 10 μm 厚的切片。冰冻切片在室温下平衡 30 分钟,并用 4% 多聚甲醛固定 10 分钟。PBS 洗涤后,切片置于 60% 异丙醇中 15 秒,并用油红 O 工作液覆盖 30 分钟。随后,切片用 60% 异丙醇处理 15 秒,并用 PBS 洗涤三次。对于 LD540 脂质染色,H9c2 细胞用 PBS 洗涤,并在室温下用 4% 多聚甲醛固定 10 分钟。随后,细胞在室温下与 10 μM LD540 孵育 30 分钟。
透射电子显微镜 (TEM)
将新鲜小鼠心脏组织切成 1–2 mm3 的小块,于 4°C 在电子显微镜固定液中固定 4 小时,随后用双蒸水洗涤,并依次浸入浓度递增的乙醇溶液中。样品经包埋、切片后,在透射电子显微镜下观察。
总胆固醇 (TC) 含量
使用 Amplex Red 胆固醇与胆固醇酯检测试剂盒,按照制造商说明书,测定血清和 H9c2 细胞样本中的总胆固醇 (TC) 水平。
口服葡萄糖耐量试验 (OGTT)
小鼠禁食14小时(从19:00至9:00),并灌胃给予葡萄糖(20%储备液,2 g/kg)。在灌胃后0、15、30、60和120分钟,通过尾静脉采血测定血糖水平。
细胞计数试剂盒-8 (CCK-8) 检测
采用 CCK-8 法检测细胞活力。将 H9c2 细胞以 3 × 10⁴ 个细胞/孔的初始密度接种于 96 孔板中。在 HG/PA 条件下用不同浓度的 Lac-Phe 处理 24 小时后,每孔加入 10 μL 试剂盒试剂至 100 μL 培养基中,随后于 37°C 孵育 4 小时。使用多功能酶标仪在 450 nm 波长处测量吸光度,以获得光密度值。
分子对接
Lac-Phe 与 AMPKα1 的晶体结构均下载自 PubChem26。分子对接过程使用 CB-DOCK227 完成。
统计分析
所有超声心动图测量、组织学染色和图像定量分析均由对分组情况不知情的研究人员进行。所有数据分析均使用 Prism 和 SPSS 20.0 软件进行。每个实验至少重复三次,数据以平均值 ± 标准差表示。采用 Levene 检验评估方差齐性。通过残差图检验确认正态性。多组间比较采用单因素方差分析,随后使用 Tukey 事后检验进行两两比较。对于 OGTT 数据,采用双因素重复测量方差分析,其中组别作为受试者间因素,时间作为受试者内因素,随后进行 Bonferroni 事后检验。P < 0.05 被认为具有统计学意义。
访问受限。请登录或开始试用以查看此内容。
结果
Lac-Phe 改善糖尿病心肌病小鼠的心脏功能
我们通过高脂饮食(HFD)联合链脲佐菌素(STZ)注射在 C57BL/6J 小鼠中诱导糖尿病心肌病(DCM)(图 1A),并将成功建立 DCM 模型的小鼠随机分为未治疗组(DCM 组)和 Lac-Phe 治疗组,以正常 C57BL/6J 小鼠作为阴性对照。根据 Li 等人的研究21,我们选择 50 mg/kg 作为 Lac-Phe 的治疗剂量。模型成功建立后,Lac-Phe 治疗组接受为期四周的外源性 Lac-Phe 注射,未治疗组则注射等体积的生理盐水。与 DCM 组相比,经 Lac-Phe 治疗的糖尿病心肌病小鼠在四周后体重显著降低(图 1B)。口服葡萄糖耐量试验(OGTT)显示,与阴性对照组相比,DCM 组小鼠在所有检测时间点的血糖水平均显著升高,表明葡萄糖耐量受损;而接受 Lac-Phe 治疗的 DCM 小鼠葡萄糖耐量得到改善(...
访问受限。请登录或开始试用以查看此内容。
讨论
本研究提供了支持Lac-Phe对扩张型心肌病(DCM)具有治疗作用的证据。Lac-Phe可改善DCM中的心脏重构和心脏功能障碍,同时减少心肌细胞中的胆固醇生成,并改善脂质代谢失衡。在机制上,Lac-Phe增加了AMPKα1的磷酸化水平。随后,AMPKα1磷酸化的增加与其下游靶点HMGCR的磷酸化增强及活性抑制相关,从而导致胆固醇合成减少,最终改善心肌细胞中的脂质代谢失衡。综上所述,本研究证实Lac-Phe通过AMPK/HMGCR信号通路改善DCM中的心肌脂质代谢。主要研究结果及所提出机制的示意图见图7。
脂质代谢失衡是导致糖尿病心肌病(DCM)中心肌损伤的关键因素之一15。心肌细胞内过量的脂质积聚会引起脂毒性,导致心肌细胞功能障碍和病理性心脏重塑16。长期高血糖和肥胖是引起脂质代谢紊乱的重要因素25。Lac-Phe 已被证明是一种内源性物质,可有效减少食物摄入,降低肥胖程度和体重,...
访问受限。请登录或开始试用以查看此内容。
披露
利益冲突:
作者无任何利益冲突需要披露。
致谢
我们衷心感谢南京鼓楼医院临床学院、南京大学医学院附属医院的研究人员和工作人员提供的技术支持。本研究获得了国家自然科学基金(项目编号:81870291 和 82300384)、中国博士后科学基金(项目编号:2023M731625)以及江苏省自然科学基金(项目编号:BK20220175)的资助。同时,我们感谢南京工业大学先进合成研究院提供的资源和协作支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| AMPK-IN-3(p-AMPK 抑制剂) | MedChemExpress (MCE) | HY-132921 | 用于 10 μM 在Lac-Phe处理的细胞中进行AMPK抑制实验,以抑制AMPK信号通路。 |
| Amplex Red 胆固醇与胆固醇酯检测试剂盒 | Beyotime | S0211S | 用于测定血清和H9c2细胞样品中的总胆固醇水平。 |
| 抗AMPKα1 | 细胞信号技术公司 | 2532;RRID:AB_330331 | 用于AMPK蛋白免疫印迹分析的一抗α1. |
| 抗GAPDH | 细胞信号技术公司 | 5174;RRID:AB_10622025 | 用于GAPDH蛋白Western blot分析的一抗。 |
| 抗HMGCR | Abcam | ab174830;RRID:AB_2749818 | 用于HMGCR蛋白免疫印迹分析的一抗。 |
| 抗-p-AMPKα1(Thr172) | 细胞信号技术公司 | 2535;RRID:AB_331250 | 用于磷酸化AMPK蛋白免疫印迹分析的一抗α1. |
| 抗-p-HMGCR(Ser872) | Abcam | ab124350 | 用于磷酸化 HMGCR 蛋白质印迹分析的一抗。 |
| 抗兔 IgG,HRP 标记抗体 | 细胞信号技术公司 | 7074;RRID:AB_2099233 | 以1:5,000的稀释比例用于Western印迹检测。 |
| 抗-β-tubulin | Cell Signaling Technology | 2128;RRID:AB_823664 | 用于蛋白质印迹分析的一抗 β-tubulin |
| 阿托伐他汀 | MedChemExpress (MCE) | HY-17379 | 单独或与 Lac-Phe 联合使用,以评估对高糖/棕榈酸处理的 H9c2 细胞中脂质积聚、总胆固醇水平及 HMGCR 磷酸化的影响。 |
| 牛血清白蛋白 | Sigma-Aldrich | A7906 | 用于 Western 印迹分析中封闭非特异性结合,使用浓度为 5%。 |
| Bradford 法测定试剂/试剂盒 | 赛默飞世尔科技 | 23200 | 用于在 Western 印迹分析前测定蛋白质浓度。 |
| C57BL/6J小鼠(5周龄,雄性) | 南京大学模式动物研究中心 | N/A | 用于建立高脂饮食/链脲佐菌素诱导的糖尿病心肌病小鼠模型。 |
| 细胞计数试剂盒-8(CCK-8) | Sharebio | SB-CCK8S | 用于测定经处理后H9c2细胞的存活率。 |
| 柠檬酸盐缓冲液 | 自制 | N/A | 在 pH 4.5 条件下配制,用于溶解链脲佐菌素(STZ)及作为相应的溶剂对照。 |
| 对照饮食(10% 脂肪,20% 蛋白质,70% 碳水化合物) | Research Diets, Inc. | D12450J | 用作对照组小鼠的饲料。 |
| D-(+)-葡萄糖 | Sigma-Aldrich | N/A | 用于HG/PA细胞处理及口服葡萄糖耐量试验。 |
| 二甲基亚砜(DMSO) | Sigma-Aldrich | D2650 | 用作AMPK-IN-3的溶剂,并作为相应的溶剂对照。 |
| 杜尔贝科’改良型伊格尔’s 培养基 | Gibco,赛默飞世尔科技 | 11965092 | 用作H9c2细胞的基础培养基。 |
| 配备 40 MHz 换能器的超声心动图仪 | FUJIFILM VisualSonics | Vevo 3100 LT;40 MHz 探头 | 用于测量左心室尺寸和二尖瓣血流速度,并计算左心室射血分数(LVEF)和缩短分数(FS)。 |
| 电子显微镜固定剂 | ServiceBio | G1102 | 用于固定新鲜的小鼠心脏组织以进行透射电子显微镜观察。 |
| 乙醇 | Sigma-Aldrich | E7023 | 在透射电子显微镜样品制备过程中,用于脱水的试剂浓度逐步增加。 |
| 胎牛血清 | Gibco,赛默飞世尔科技 | 10099141 | 以10%的比例添加至H9c2细胞培养基中。 |
| H9c2 细胞系 | Sunncell | RRID: CVCL_0286 | 作为高糖/棕榈酸(HG/PA)和乳酸-苯丙氨酸(Lac-Phe)处理实验的体外心肌细胞模型使用。 |
| 苏木精-伊红染色 | ServiceBio | G1005-1/2 | 用于心脏组织的组织学评估。 |
| 高脂饮食(60 kcal% 脂肪) | 研究饮食公司 | D12492 | 与低剂量STZ联用以建立糖尿病心肌病小鼠模型。 |
| 高分辨率明场显微镜 | Leica | DM2500 | 用于染色心脏组织切片的全片成像,放大倍数为 20× 放大倍数 |
| ImageJ | 美国国立卫生研究院 | N/A | 用于蛋白质印迹结果的密度测定定量分析。 |
| 异氟烷 | Sigma-Aldrich | 792632 | 用于小鼠超声心动图检查期间的麻醉。 |
| 异丙醇 | Sigma-Aldrich | I9516 | 冷冻心脏切片进行油红O染色时,使用浓度为60%。 |
| LD540 脂质染色剂 | Beyotime | C2050S-1 | 使用于 10 μM 用于染色细胞内脂质。 |
| 马松’s 茜素红染色 | ServiceBio | G1006 | 用于心脏组织的组织学染色。 |
| N-乳酰-苯丙氨酸(Lac-Phe) | MedChemExpress (MCE) | HY-146098 | 给予DCM小鼠并用于治疗经HG/PA处理的H9c2细胞。 |
| 油红O工作液 | ServiceBio | G1015-100ML | 用于对冷冻心脏组织切片中的脂质进行染色。 |
| Omni-ECL 高效化学发光试剂盒 | EpiZyme | SQ203L | 用于蛋白质印迹后蛋白条带的化学发光显影。 |
| 棕榈酸 | Sigma-Aldrich | P0500 | 以0.25 mM浓度与高糖联合使用,建立高糖/棕榈酸处理的H9c2细胞模型。 |
| 多聚甲醛 | Sigma-Aldrich | P6148 | 配制成4%溶液,用于组织学或脂质染色前固定心脏组织和细胞。 |
| 青霉素-链霉素 | Gibco,赛默飞世尔科技 | 15140122 | 在H9c2细胞培养基中以1%使用。 |
| 磷酸盐缓冲液(PBS) | Gibco,赛默飞世尔科技 | 10010023 | 用于染色过程中的洗涤步骤,以及作为细胞处理实验中的相应溶剂。 |
| Prism | GraphPad Software | 版本 8.0 | 用于实验数据的统计分析。 |
| PVDF 转膜膜 0.45 μm | 赛默飞世尔科技 | 88518 | 用于 Western 印迹分析中蛋白质的电泳转膜。 |
| RNeasy Mini Kit | QIAGEN | 74104 | 用于从小鼠心脏组织中分离/纯化总RNA。 |
| 0.9% 氯化钠溶液(生理盐水) | Sigma-Aldrich | S8776 | 用于溶解 Lac-Phe,并作为对照组和 DCM 小鼠的溶剂对照。 |
| SPSS | IBM | 版本 20.0 | 用于实验数据的统计分析。 |
| 链脲佐菌素(STZ) | Sigma-Aldrich | S0130 | 通过高脂饮食喂养建立糖尿病心肌病小鼠模型。 |
| TBS Tween-20 缓冲液 (20×) | 赛默飞世尔科技 | 28360 | 用于 Western 印迹分析中一抗和二抗孵育后的膜洗涤。 |
| Tissue-Tek O.C.T. 化合物 | Sakura Finetek | 4583 | 用于在制备冰冻切片进行油红O染色前的心脏组织包埋。 |
| 透射电子显微镜 | HITACHI | HT7800 | 用于检测小鼠心脏组织的超微结构变化。 |
| TRIzol试剂 | Invitrogen | 15596026 | 用于从小鼠心脏组织中分离总RNA。 |
| VAHTS Universal V10 RNA-seq文库构建试剂盒 | Vazyme | NR616-01 | 用于制备转录组分析的RNA-seq文库。 |
| 小麦胚芽凝集素(WGA) | ServiceBio | W7024 | 用于心脏组织的组织学评估。 |
参考文献
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
访问受限。请登录或开始试用以查看此内容。
重印与许可
本文已发表
视频即将推出