本方案描述了通过评估脂质代谢、炎症反应、氧化应激、细胞凋亡以及AMP激活的蛋白激酶相关信号通路,研究芍药苷对氧化型低密度脂蛋白诱导的RAW264.7巨噬细胞功能障碍的影响,以支持巨噬细胞功能障碍的机制研究。
研究文章
芍药苷通过AMP激活的蛋白激酶参与减轻氧化型低密度脂蛋白诱导的RAW264.7细胞功能障碍
* These authors contributed equally
本文内容
摘要
摘要
本研究描述了一种整合网络药理学与体外实验的方案,用于评估黄芩汤(Huangqin Tang, HQT)及其一种生物活性成分芍药苷(paeoniflorin, PF)对氧化型低密度脂蛋白(ox-LDL)诱导的巨噬细胞功能障碍的保护作用,并探究AMP活化蛋白激酶(AMP-activated protein kinase, AMPK)相关信号通路。通过网络药理学分析鉴定出HQT与动脉粥样硬化(atherosclerosis, AS)相关的靶点及通路。采用ox-LDL诱导的RAW264.7巨噬细胞模型,评估脂质积聚、胆固醇外排、三磷酸腺苷(adenosine triphosphate, ATP)水平、炎症反应、线粒体功能、氧化应激、细胞凋亡以及巨噬细胞表型标志物。在无细胞毒性的浓度下比较HQT与PF的作用。通过细胞热迁移分析(cell thermal shift assay, CETSA)、药理学抑制及小干扰RNA(small interfering RNA, siRNA)介导的基因敲低来评估AMPK的参与作用。采用蛋白质印迹法检测ATP结合盒转运蛋白A1(ABCA1)、肝X受体α(liver X receptor alpha, LXRα)、核因子κB(nuclear factor kappa B, NF-κB)相关蛋白及凋亡相关蛋白的表达。网络药理学分析鉴定出12个交集靶点,包括TNF、PPARG和NOS3,富集于脂质代谢、炎症、动脉粥样硬化及AMPK信号通路。PF和HQT均能增强AMPK的磷酸化水平,减少ox-LDL诱导的脂质积聚和炎症因子分泌,并改善胆固醇外排。PF可恢复ATP水平和线粒体膜电位,降低活性氧生成和细胞凋亡,并上调ABCA1表达。CETSA结果显示,PF处理后AMPK的热稳定性增强。使用药理学抑制剂或siRNA敲低AMPK可减弱PF对ABCA1表达、胆固醇外排、脂质积聚、LXRα活化及NF-κB抑制的影响。PF减少CD86⁺巨噬细胞比例,增加CD206⁺巨噬细胞比例,而AMPK沉默部分逆转了这些变化。NF-κB抑制对胆固醇稳态和巨噬细胞表型标志物产生类似效应。该方案可用于评估PF和HQT对ox-LDL诱导的巨噬细胞功能障碍及AMPK相关信号通路的影响。在实验条件下,PF可保护RAW264.7细胞免受ox-LDL诱导的脂质代谢紊乱、炎症、氧化应激、线粒体功能障碍和细胞凋亡损伤,且PF与HQT在巨噬细胞相关指标上表现出方向一致的变化。
引言
心血管疾病是全球范围内发病率和死亡率的主要原因,动脉粥样硬化(AS)是多种心血管疾病的重要病理基础1,2,3,4。AS的特征是脂质积聚5、慢性炎症6以及动脉壁内斑块的进行性形成7。其起始和进展过程涉及内皮功能障碍、氧化应激、脂质代谢紊乱以及持续的免疫激活。氧化型低密度脂蛋白(ox-LDL)可促进内皮细胞活化,并上调黏附分子和趋化因子(如单核细胞趋化蛋白-1,MCP-1)的表达,从而促进单核细胞向动脉内膜募集8。这些细胞分化为巨噬细胞后,通过清道夫受体摄取ox-LDL,并逐渐转变为富含脂质的泡沫细胞9。该过程伴随活性氧(ROS)和促炎性细胞因子生成增加10,进一步加剧血管炎症和氧化损伤。在这些炎症介质中,肿瘤坏死因子-α(TNF-α)可通过激活核因子κB(NF-κB)通路,部分介导泡沫细胞的形成和炎症信号传导11。在静息状态下,NF-κB通过与核因子κB抑制蛋白α(IκB-α)结合而滞留在细胞质中12。受到刺激后,IκB激酶(IKK)被激活,导致IκB-α降解,NF-κB随之转位至细胞核13,促进包括TNF-α、白细胞介素-1β(IL-1β)和白细胞介素-6(IL-6)在内的炎症相关基因的转录14。尽管降脂和抗炎治疗已取得进展,但仍有显著的残余心血管风险存在,凸显出开发能够同时靶向AS多个病理过程的新型治疗策略的必要性。
中药方剂含有多种生物活性成分,这些成分可能通过与不同的分子靶点和信号通路相互作用而发挥治疗作用15,16。这种多组分、多靶点的作用模式在治疗动脉粥样硬化(AS)等复杂疾病方面可能具有潜在优势。黄芩汤(HQT)是一种经典的中药方剂,由四种药用植物组成:Scutellaria baicalensis(黄芩)、Paeonia lactiflora(白芍)、Glycyrrhiza uralensis(甘草)和Ziziphus jujuba(大枣)17,18。已有研究报道,这些药材中的生物活性成分可调节脂质代谢、缓解炎症反应并减轻氧化应激19。然而,HQT 潜在抗动脉粥样硬化作用所涉及的分子靶点和信号通路仍尚未完全阐明。
本研究结合网络药理学与体外实验,建立了一种研究黄芩汤(HQT)及其活性成分芍药苷(paeoniflorin, PF)对氧化型低密度脂蛋白(ox-LDL)诱导的巨噬细胞功能障碍保护作用潜在机制的方法。首先进行网络药理学分析,以鉴定与HQT及动脉粥样硬化(AS)相关的候选化合物、治疗靶点和信号通路。基于AMP活化蛋白激酶(AMPK)信号通路的预测结果及既往发表的研究证据,选择PF进行实验验证。在RAW264.7细胞中评估PF对脂质积聚、胆固醇外流、炎症反应、能量代谢、线粒体功能、氧化应激、细胞凋亡以及巨噬细胞表型标志物的影响,并在无细胞毒性条件下比较HQT与PF的作用。此外,采用药理学抑制剂及小干扰RNA(siRNA)介导的AMPK敲低实验,探讨AMPK依赖性调控ATP结合盒转运蛋白A1(ABCA1)以及肝X受体α(LXRα)/NF-κB信号通路是否参与PF的保护作用。该整合策略为评估HQT和PF对ox-LDL诱导的巨噬细胞功能障碍的影响提供了研究框架,并可用于判断该方法是否适用于类似体外模型中AMPK相关机制的研究。
方案
GSE100927 被分析为一个公开可获取的、不可识别的二次数据集。未招募任何参与者,未收集新的人体样本,也未访问任何直接的个人身份信息;因此,无需额外的机构审查委员会批准和知情同意。细胞实验仅使用了一种已建立的小鼠巨噬细胞系,未涉及活体动物、原代动物组织、人类参与者或原代人类材料;因此,不适用机构的人类或动物伦理审批。
HQT 生物活性化合物及靶点的鉴定
采用2026年7月16日可获取的版本,访问了传统中药系统药理学数据库与分析平台(TCMSP)、PubMed、中国知网(CNKI)以及UniProt数据库。Scutellaria baicalensis Georgi、Paeonia lactiflora Pall.、Glycyrrhiza uralensis Fisch. 和 Ziziphus jujuba Mill. 在TCMSP数据库中分别使用其拉丁名、英文名及中文药名进行独立检索。保留口服生物利用度(OB)≥30% 且类药性(DL)值≥0.18 的化合物。在多种植物材料中重复出现的化合物,依据化合物名称及其对应的TCMSP标识符进行合并。
使用术语(“Huangqin Tang” OR “Huang-Qin-Tang” OR “Huang Qin Tang”)AND(constituent OR compound OR ingredient OR phytochemical OR target)在 PubMed 中进行检索,并在 CNKI 中使用 “Huangqin Tang” AND(“chemical constituents” OR “active ingredients” OR “pharmacological targets”)进行检索。筛选截至 2025 年 12 月 16 日发表的文章。仅纳入明确报道与 HQT 或其四种植物成分之一相关的化合物或靶点。排除缺乏可追溯原始证据的综述、未具名的化合物以及无实验或数据库支持的预测靶点。
使用 UniProt 数据库中的标识符映射工具对蛋白质靶点进行映射,并将物种限定为智人(Homo sapiens,分类编号 9606)。保留经认可的人类基因符号,去除未映射及重复的条目。将去重后的化合物-靶点边列表导入 Cytoscape 网络可视化软件(版本 3.7.2),构建 HQT 化合物-靶点网络。
强直性脊柱炎相关靶点的鉴定与生物信息学分析
使用截至2026年7月16日可用的版本访问了GeneCards、在线人类孟德尔遗传数据库(OMIM)、比较毒物基因组学数据库(CTD)和基因表达综合数据库(GEO)。采用术语“动脉粥样硬化”在GeneCards、OMIM和CTD中进行检索。从GeneCards中检索到的基因,若其相关性评分≥1.163(相当于所有检索记录的中位评分),则予以保留。仅纳入OMIM和CTD中明确记录的直接相关的动脉粥样硬化(AS)关联基因。
GSE100927系列矩阵、样本注释文件和GPL17077平台注释文件均从GEO下载。根据数据库中的表型元数据,所有104个人类外周动脉样本被分类为动脉硬化(AS)或对照组(Control),且未根据动脉位置排除任何样本。
使用 R 统计软件(版本 4.3.2)及其中的 limma 包(版本 3.58.1)、ggplot2 包(版本 3.4.4)、ComplexHeatmap 包(版本 2.18.0)、clusterProfiler 包(版本 4.10.1)和 org.Hs.eg.db 包(版本 3.18.0)进行生物信息学分析。探针使用 GPL17077 平台注释文件进行注释,去除无公认基因符号的探针。对于映射到同一基因的多个探针,使用 avereps 函数计算其平均值。仅当第 99 百分位数超过 100 时,对数据进行 log2(x + 1) 转换;否则保留提供的对数值。采用分位数法对芯片数据进行标准化。
样本被编码为“Control”和“AS”,并使用model.matrix(~0 + group)生成了无截距的设计矩阵。采用lmFit、makeContrasts、contrasts.fit和eBayes函数拟合线性模型。通过topTable(number = Inf, adjust.method = “BH”)提取所有基因。差异表达基因定义为绝对log2倍数变化大于1且名义p值<0.05的基因,而Benjamini–Hochberg校正后的p值保留在完整输出结果中。
火山图使用log生成2 倍数变化值和 −log₁₀ 名义上的 p 值。热图在逐行标准化后构建 z- 所选基因的标准化评分。所有样本均采用相同的预处理和可视化设置。
从 GeneCards、OMIM、CTD 和 GEO 获得的基因通过 UniProt 数据库进行标准化。基因标识符被转换为大写的已批准基因符号,并在每个数据源内删除空白、未映射和重复的条目。共识的强心苷相关靶点定义为在四个数据源中至少两个中被识别出的基因。使用 R 中的 intersect() 函数来鉴定与标准化的强心苷靶基因集合共有的基因。
将重叠的HQT-AS靶基因提交至STRING数据库(版本12.0),访问时间为2025年12月16日。分析限定为Homo sapiens,最低相互作用得分为0.700,保留所有证据通道,未添加第一层或第二层相互作用蛋白。将相互作用表导出并作为无向网络导入Cytoscape。去除自环和重复边后,使用CentiScaPe插件(版本2.2)计算节点的度中心性、介数中心性和接近中心性。枢纽基因定义为三种中心性指标均超过相应网络平均值的基因。
使用 bitr 函数将已批准的基因符号转换为 Entrez 标识符。去除未匹配和重复的标识符,并将注释数据集中所有成功匹配的基因作为背景。对所有本体进行基因本体(Gene Ontology)富集分析,使用 enrichGO 函数(ont = “ALL”);使用 enrichKEGG 函数(organism = “hsa”)进行京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes)通路富集分析。采用 Benjamini–Hochberg 方法进行多重检验校正,保留调整后 p 值 <0.05 的富集条目。
完整的预处理、差异表达、可视化和富集分析脚本以TCMSP分析.R和转录组分析.R的形式提供。根据网络分析结果及已发表的证据,确定芍药苷(PF)、甘草苷、黄芩苷、汉黄芩苷和甘草酸为黄芪桂枝五物汤(HQT)的主要成分20。由于PF在调控脂质代谢和AMP激活的蛋白激酶信号通路中的作用已有报道,因此被选为代表性化合物。
HQT提取物的制备
将经过鉴定的黄芩(S. baicalensis Georgi)、白芍(P. lactiflora Pall.)、甘草(G. uralensis Fisch.)和大枣(Z. jujuba Mill.)按干重比3:2:2:3混合。按1:10(w/v)比例加入去离子水,回流提取1小时。趁热过滤后,药渣按1:8(w/v)比例再次加入去离子水,回流提取1小时,方法同前19。合并滤液,于60°C减压浓缩,并真空干燥至恒重,提取率为36.34%。 将干燥提取物溶于无菌水,配制成1 g/mL的溶液,经0.22 µm滤膜过滤,分装后于−20°C保存备用。实验浓度以每毫升培养基中含干燥提取物的微克数(µg/mL)表示。
细胞培养、转染与处理
RAW264.7 小鼠巨噬细胞在含 10% 胎牛血清、100 U/mL 青霉素和 100 µg/mL 链霉素的高糖 Dulbecco 改良 Eagle 培养基中培养,培养条件为 37°C、含 5% CO2 的湿润培养箱。细胞在约 80% 汇合度时进行传代,仅使用解冻后第 5 至第 20 代的细胞。细胞系身份经与保藏库证书比对验证,并常规监测细胞形态、贴壁性及生长特性。仅使用无支原体污染的培养物。出现污染、生长异常、明显空泡化、大量碎片、显著脱落或细胞分布不均的培养物均予以弃用。
为沉默AMPKα1,将细胞以每孔2 × 10⁵个细胞接种于6孔板中,每孔加入2 mL培养基,在细胞融合度达到50%–60%时进行转染。将总共100 pmol的si-AMPKα1或非靶向siRNA溶于125 µL低血清培养基中,同时将5 µL脂质转染试剂单独溶于125 µL低血清培养基中。室温孵育15分钟后,将两种溶液混合,逐滴加入细胞中,使siRNA终浓度为50 nM。si-AMPKα1序列如下:正义链为5′-CCCATCTTATAGTTCAACCAT-3′,反义链为5′-ATGGTTGAACTATAAGATGGG-3′。转染6小时后更换培养基,继续培养至总时长为48小时,随后进行ox-LDL和PF处理。通过qRT-PCR和蛋白质印迹法验证AMPKα1的敲低效果,仅将相对于阴性对照siRNA组显示出显著降低的实验结果纳入后续分析。
PF、dorsomorphin 和 BAY 11-7082 用二甲基亚砜(DMSO)配制,而 HQT 用无菌水配制。所有处理组中的终末 DMSO 浓度均维持在 ≤0.1%,对照组中加入相应的溶剂。
在浓度筛选实验中,细胞分别用0、1、5、10、20或40 µM的PF,或0、12.5、25、50、100或200 µg/mL的HQT处理24小时,随后检测细胞活力和AMPK磷酸化水平。根据这些结果,后续所有实验均选用20 µM PF和100 µg/mL HQT。
为比较PF与HQT的作用,实验分组包括对照组、50 µg/mL ox-LDL组、ox-LDL联合20 µM PF组以及ox-LDL联合100 µg/mL HQT组。所有组均孵育24 h。为进行AMPK的药理学抑制,ox-LDL联合PF组在24 h共处理前先用10 µM dorsomorphin预处理1 h21,22。
为了在基因水平上抑制AMPK,细胞分别转染si-NC或si-AMPKα1 48小时,随后分为对照组、ox-LDL组、PF组或si-AMPK联合PF组。PF组和si-AMPK联合PF组接受50 µg/mL ox-LDL与20 µM PF共同处理24小时。ox-LDL组仅接受ox-LDL处理,而对照组接受相应的溶剂处理。
为评估NF-κB信号通路的参与作用,额外设置一组处理,先用10 µM BAY 11-7082预处理1小时,随后暴露于50 µg/mL ox-LDL 24小时23,24,25。随后检测ABCA1表达、胆固醇外排、脂质积聚,以及CD86⁺和CD206⁺巨噬细胞的比例。
除非另有说明,细胞在处理前12–16小时接种,每个处理组使用三个重复孔。每项检测均在不同日期进行三次独立培养的细胞样本实验(n = 3),细胞活力筛选除外,该实验包含五次独立实验,每次实验每个浓度设置五个技术重复孔。技术重复、重复测量以及多个显微镜视野的数据通过分层取平均值,为每次独立实验获得一个单一数值。
仅使用贴壁均匀且融合度约为60%–80%的细胞进行处理;对于转染实验,则使用融合度为50%–60%的细胞。必需的材料、软件和仪器列于随附的材料表中。
细胞活力检测与定量实时聚合酶链式反应
将RAW264.7细胞以每孔5 × 10³个细胞的密度接种于96孔板中,过夜贴壁。根据第4节所述浓度,用PF和HQT处理细胞24小时。弃去培养基,每孔加入100 µL细胞活力检测试剂工作液,于37°C避光孵育2小时,通过测定450 nm处的吸光度来评估细胞活力。
设置了仅含试剂的空白孔,并从所有测量值中减去其吸光度值。每个浓度的五个技术重复孔的吸光度值取平均值。细胞活力计算公式为(处理组吸光度/对照组吸光度)× 100%,未处理对照组定义为100%。共进行了五次独立实验。
采用苯酚-胍盐法RNA提取试剂提取总RNA,仅使用A260/A280比值在1.8至2.0之间的样品。取1 µg总RNA进行逆转录,每个20 µL的定量PCR(qPCR)反应体系包含10 µL 2× SYBR Green预混液、0.4 µL 10 µM正向引物、0.4 µL 10 µM反向引物、2 µL cDNA以及7.2 µL无核酸酶水。
定量 PCR 的反应条件为 95°C 预变性 30 秒,随后进行 40 个循环,每个循环为 95°C 变性 10 秒、60°C 退火 30 秒。之后进行熔解曲线分析,温度从 65°C 升至 95°C。引物序列如下:Prkaa1 正向引物,5′-ACCAGAAGCGGTGCCGGAAAGCTGG-3′;Prkaa1 反向引物,5′-TGTAGTCGGTTTATGCAGCAACGAG-3′;Gapdh 正向引物,5′-CGACTTCAACAGCAACTCCCACTCTTCC-3′;Gapdh 反向引物,5′-TGGGTGGTCCAGGGTTTCTTACTCCTT-3′。
每个样本均进行三次技术重复检测,并设置无模板对照。只有当观察到单一熔解峰且无模板对照中未检测到扩增时,引物对才被接受。以 Gapdh 为内参基因,采用 2−ΔΔCt 法计算 Prkaa1 的相对表达量,并将 si-NC 组的表达量标准化为 1。
脂质积累、ATP 水平和胆固醇外流的测定
进行油红O染色时,将RAW264.7细胞以每孔5 × 10⁴个细胞接种于24孔板中,每孔加入500 µL培养基。处理结束后,用500 µL磷酸盐缓冲液(PBS)洗涤细胞两次,再用500 µL 10%中性缓冲甲醛固定20分钟,随后再次用PBS洗涤两次,接着用500 µL 60%异丙醇冲洗一次,最后加入500 µL新配制的油红O工作液,在室温下染色15分钟。染色后用蒸馏水洗涤细胞,直至背景清晰。按照第8节所述方法,从每孔采集五个显微视野,通过设定固定的颜色阈值,计算油红O阳性区域占总视野面积的百分比(阳性面积/总视野面积 × 100)。只有当对照组细胞几乎无染色、氧化低密度脂蛋白(ox-LDL)处理组细胞呈现清晰的胞内脂滴、且细胞外背景清晰时,染色结果方可被接受。若样本出现弥散性沉淀、染色不均或大量细胞脱落,则予以剔除,并重复染色步骤。
进行ATP检测时,将细胞以每孔5 × 10⁵个细胞的密度接种于6孔板中,每孔加入2 mL培养基。处理结束后,细胞用1 mL预冷的PBS洗涤两次,加入200 µL ATP检测试剂盒裂解缓冲液裂解,并在4°C下以12,000 × g离心5分钟。取10 µL上清液与100 µL ATP检测试剂混合,测定化学发光值。根据标准曲线计算ATP浓度。每份裂解液设两个复孔,在三次独立实验中各分析三个重复孔。
进行胆固醇外流分析时,将细胞以每孔5 × 10⁴个细胞接种于24孔板中,每孔加入500 µL培养基。处理后,细胞在含1 µg/mL NBD-胆固醇的培养基中孵育24小时,随后用500 µL PBS洗涤三次,并在500 µL无血清培养基中孵育4小时,培养基中加入10 µg/mL载脂蛋白A-I或50 µg/mL高密度脂蛋白作为胆固醇受体。收集培养上清液,于1,000 × g离心5分钟。细胞用PBS洗涤两次后,加入200 µL裂解缓冲液裂解。分别在激发波长485 nm和发射波长535 nm下,双份测定上清液和裂解液中的荧光强度。扣除未加NBD-胆固醇的对照孔荧光值后,按以下公式计算胆固醇外流率:上清液荧光强度 /(上清液荧光强度 + 裂解液荧光强度)× 100%,每种胆固醇受体均独立计算。
炎症细胞因子、线粒体膜电位、活性氧及细胞凋亡的检测
对于酶联免疫吸附测定(ELISA),将 RAW264.7 细胞以每孔 5 × 10⁵ 个细胞接种于 6 孔板中,每孔加入 2 mL 培养基。处理 24 小时后,收集培养上清液,在 4°C 下以 1,000 × g 离心 10 分钟,随后立即检测,或分装后于 −80°C 保存待测。避免反复冻融。使用夹心 ELISA 试剂盒检测小鼠 TNF-α、IL-6 和 IL-1β 的浓度。所有试剂在使用前均平衡至室温。标准品、空白孔和样品均以每孔 100 µL 量重复加样两份。每次抗体孵育后,用 300 µL 洗涤缓冲液洗涤 5 次。采用四甲基联苯胺底物显色,根据试剂盒说明书终止反应,并在 450 nm 处测定吸光度。细胞因子浓度通过四参数逻辑拟合标准曲线计算,结果以 pg/mL 表示。若重复测定的变异系数大于 15%,则重新检测;超出检测范围的样品经稀释后重新分析。
进行线粒体膜电位分析时,将细胞以每孔5 × 10⁴个细胞接种于24孔板中,每孔加入500 µL培养基。处理后,细胞洗涤两次,再与500 µL JC-1工作液在37°C避光孵育20分钟。随后用染色缓冲液洗涤细胞两次,在相同的显微镜视野下分别于激发/发射波长525/590 nm和490/530 nm处采集红色聚集态和绿色单体荧光信号。最后计算经背景校正后的绿色与红色荧光比值。
对于细胞内活性氧(ROS)分析,将细胞以每孔5 × 10⁴个细胞的密度接种于24孔板中。处理后,用无血清培养基洗涤细胞两次,并在避光条件下加入200 µL含10 µL 2′,7′-二氯二氢荧光素二乙酸酯的培养基,37°C孵育2小时。孵育期间每5分钟轻轻振荡一次培养板。随后将细胞洗涤三次,并在激发波长488 nm和发射波长525 nm下测定荧光强度。
进行细胞凋亡分析时,将细胞以每孔 5 × 10⁴ 个细胞的密度接种于 24 孔板中。处理后,细胞用 PBS 洗涤两次,用 4% 多聚甲醛固定 20 分钟,再洗涤三次,并用含 0.1% Triton X-100 的 PBS 溶液透化 10 分钟。每孔加入 250 µL 末端脱氧核苷酸转移酶 dUTP 缺口末端标记(TUNEL)反应混合液,在 37°C 湿润避光孵育箱中孵育 60 分钟。经三次洗涤后,细胞核用 4′,6-二脒基-2-苯基吲哚(DAPI)复染 5 分钟。每次实验均设置不含末端脱氧核苷酸转移酶的阴性对照。
线粒体膜电位的维持主要表现为点状红色JC-1荧光,而膜去极化则表现为弥散性绿色荧光增强。只有当绿色荧光位于细胞内且无沉淀物或信号饱和时,才接受ROS图像。只有当红色荧光主要位于细胞核内,且酶缺失对照组背景信号极低时,才接受凋亡染色结果。
图像采集与定量分析
使用配备数码相机和20×物镜的倒置荧光显微镜采集明场和荧光图像。每个孔采集五个无重叠的视野,包括一个中央视野和四个周边视野。在揭示处理分组信息之前,排除包含划痕、孔边缘、细胞片脱落或大量碎片的区域。关闭自动曝光和增益设置。使用代表性的对照组和氧化低密度脂蛋白(ox-LDL)处理孔确定照明强度、曝光时间、增益、物镜和图像尺寸,以确保最强的荧光信号未达到饱和。在同一独立实验中,所有处理组均保持相同的图像采集参数。在不重新移动显微镜载物台的情况下,连续采集配对的红色和绿色荧光通道图像。在研究者对处理分组设盲的情况下,使用ImageJ图像分析软件对未经调整的原始图像进行分析。扣除无细胞区域的背景信号,并利用代表性的对照组和ox-LDL图像设定图像阈值。同一实验中所有图像均应用相同的阈值。仅对用于图示的图像进行均匀的全图调整。JC-1结果以绿色荧光与红色荧光的比值表示。活性氧和细胞凋亡信号以扣除背景后、归一化到分析区域的平均荧光强度表示,并将对照组的平均值归一化为1,用于相对定量分析。每个孔的五个显微视野取平均值获得一个数据点,三个孔的数据再取平均值,得到每个独立实验的一个代表值。
蛋白质印迹分析
将RAW264.7细胞以每孔5 × 10⁵个细胞接种于6孔板中,每孔加入2 mL培养基,每孔制备一份蛋白裂解液。进行全细胞蛋白提取时,用预冷的PBS洗涤细胞两次,加入含有蛋白酶和磷酸酶抑制剂的放射免疫沉淀法(RIPA)裂解缓冲液,在冰上裂解30分钟,然后在4°C下以12,000 × g离心15分钟。进行核蛋白提取时,将细胞重悬于含有10 mM HEPES、10 mM KCl、1.5 mM MgCl2、0.5 mM二硫苏糖醇及蛋白酶/磷酸酶抑制剂的缓冲液中,冰上孵育15分钟。加入非离子型去污剂至终浓度0.5%,短暂涡旋混匀后,在4°C下以700 × g离心5分钟。将核沉淀物用含有20 mM HEPES、420 mM NaCl、1.5 mM MgCl2、0.2 mM EDTA、25%甘油、0.5 mM二硫苏糖醇及蛋白酶/磷酸酶抑制剂的缓冲液在冰上提取30分钟,期间间歇混匀。提取液随后在4°C下以14,000 × g离心15分钟。
采用二辛可宁酸法测定蛋白质浓度。每个泳道上样等量蛋白质(25–30 µg),于95°C加热5分钟,经8%–12%十二烷基硫酸钠-聚丙烯酰胺凝胶电泳分离后,在冷却条件下以100 V电压转移至0.45 µm聚偏二氟乙烯膜上,持续90分钟。总蛋白膜使用含5%脱脂奶粉的溶液封闭,而磷酸化蛋白膜则使用含0.05%吐温-20的Tris缓冲盐水配制的5%牛血清白蛋白溶液封闭1小时。膜与一抗在4°C孵育过夜,所用一抗包括AMPK、磷酸化AMPK、BAX、BCL-2、caspase-3、ABCA1、p65、磷酸化p65、LXRα、IκB-α、磷酸化IκB-α和组蛋白H3,除组蛋白H3以1:2,000稀释外,其余抗体均按1:1,000稀释。GAPDH和β-actin抗体稀释比例为1:5,000。一抗孵育后,膜用洗涤液清洗三次,每次10分钟,随后加入辣根过氧化物酶标记的羊抗兔或羊抗鼠二抗,按1:5,000稀释后室温孵育1小时。再次洗涤后,使用增强型化学发光检测试剂检测蛋白条带。选择所有目标蛋白条带均未饱和的最短曝光时间,并对同一膜上所有组别保持一致的曝光和图像采集参数。
使用ImageJ图像分析软件在扣除局部背景后对蛋白条带进行定量。总AMPK、ABCA1、BAX、BCL-2、caspase-3、IκB-α以及磷酸化的IκB-α均以GAPDH或β-actin为内参进行归一化处理。计算磷酸化AMPK与总AMPK、磷酸化p65与总p65的比值。核内LXRα、p65及磷酸化p65水平以组蛋白H3为内参进行归一化,每个独立实验中对照组或si-NC组的平均值被设定为1。仅纳入在预期分子量处呈现清晰条带、背景低、信号未饱和且上样对照相近的印迹结果进行分析。对于泳道扭曲、蛋白转膜不完全、背景过高或信号饱和的膜,将重新处理或予以剔除。所有实验使用独立制备的蛋白裂解液重复三次。
细胞热迁移分析
将RAW264.7细胞以每10 mL培养基接种3 × 10⁶个细胞的密度接种于100 mm培养皿中,过夜培养。收集细胞后,用预冷的PBS洗涤两次,加入含0.4% NP-40及蛋白酶/磷酸酶抑制剂的PBS冰上裂解30分钟,随后在4°C下以20,000 × g离心20分钟。上清裂解液经澄清后,调整蛋白浓度至2 mg/mL。取等体积澄清裂解液,分别与20 µM PF或0.1% DMSO在室温孵育1小时。每份样品分装为50 µL,分别在37°C、41°C、45°C、49°C、53°C、57°C、61°C、65°C、69°C或73°C加热3分钟。样品立即在4°C冷却3分钟,并在4°C下以20,000 × g离心20分钟。取等体积可溶性上清液进行Western blot分析,检测AMPK及磷酸化AMPK。各温度点信号均相对于37°C信号进行归一化处理,37°C信号定义为100%。以可溶性蛋白丰度对温度作图,整个实验使用独立培养的细胞重复三次。仅纳入分析显示可检测到37°C参考条带、随着温度升高可溶性AMPK逐步减少、且在最高温度下无明显条带扭曲或可溶性蛋白异常增加的实验结果。
流式细胞术分析
将RAW264.7细胞以每孔5 × 10⁵个细胞的密度接种于6孔板中,每孔加入2 mL培养基。处理后,用预冷的PBS洗涤细胞两次,再用含2%胎牛血清和2 mM EDTA的PBS,借助细胞刮轻轻刮下细胞。细胞悬液于4°C以400 × g离心5分钟,随后用PBS洗涤两次,并调整细胞浓度至每样本约1 × 10⁶个细胞。细胞在室温避光条件下,用可固定的胺反应性活死染料染色20分钟。洗涤后,在4°C下用抗小鼠CD16/32抗体封闭Fc受体15分钟。每1 × 106个细胞加入5 µL荧光素偶联抗体(针对CD45、CD11b、F4/80、CD86和CD206),于4°C避光孵育30分钟。
抗体染色后,细胞经两次洗涤,重悬于300 µL染色缓冲液中,并通过流式细胞术进行分析。每个样本至少采集50,000个总事件,若条件允许,则至少采集20,000个活的CD45⁺CD11b⁺F4/80⁺事件。实验中包括未染色对照、单染色补偿对照以及CD86和CD206的荧光减一对照。同一实验中所有处理组均应用相同的补偿矩阵。根据前向散射和侧向散射特征排除碎片,并通过前向散射面积与前向散射高度排除双联体。鉴定出活力染料阴性细胞,圈选CD45⁺细胞,并将巨噬细胞定义为CD11b⁺F4/80⁺细胞。在巨噬细胞门内,基于相应的荧光减一对照设定阈值,定量CD86⁺和CD206⁺细胞。所有样本均采用相同的设门层级。每个独立实验中的三个重复孔分别制备一份染色细胞悬液,取三个孔所得百分比的平均值作为该独立实验的一个数据点。实验使用独立培养的细胞重复三次。
安全与废弃物处理
所有细胞培养操作、氧化低密度脂蛋白(ox-LDL)的处理以及细胞来源材料的加工均在二级生物安全柜内进行,并遵循生物安全二级标准操作规范。所有操作过程中均穿戴实验服、手套和眼部防护装备。使用后对工作台面和设备进行去污染处理。由于甲醛和多聚甲醛具有毒性及潜在致癌性,操作时采取了适当的防护措施。固定剂、油红O溶液、含二甲基亚砜(DMSO)的溶液以及荧光染色溶液均在佩戴适当个人防护装备并确保良好通风的条件下操作。固定剂、染色液、含DMSO的溶液以及含ox-LDL的培养基被分别收集,并根据机构规定作为危险化学废物处置。含细胞的培养基、被污染的耗材以及流式细胞术样本均视为生物废物处理。液体生物废物使用新配制的10%次氯酸钠溶液消毒至少30分钟,固体生物废物经高压灭菌后,按照机构生物安全规程进行处置。
统计学分析
所有统计分析均使用 GraphPad Prism 统计软件(版本 10.1.2)进行。数据以均值 ± 标准差表示。n 值代表独立实验的次数,而非技术重复孔、仪器测量值或显微镜视野的数量。所有统计分析均采用如前文所述各独立实验所得的分层平均值。两组之间的比较采用非配对双尾 Student t 检验;三组或以上组间的比较采用单因素方差分析,随后进行 Tukey 多重比较检验。所有统计检验均为双侧检验,当 p 值 <0.05 时认为具有统计学显著性。
结果
HQT 的活性化合物及其靶点
通过筛选和整合TCM Systems Pharmacology数据库获得的数据,从HQT中鉴定出共计137种候选生物活性化合物。去除重复条目后,保留了与这些化合物相关的391个唯一假定靶点。随后使用Cytoscape 3.7.2版本构建了HQT–化合物–靶点相互作用网络,如图1所示。
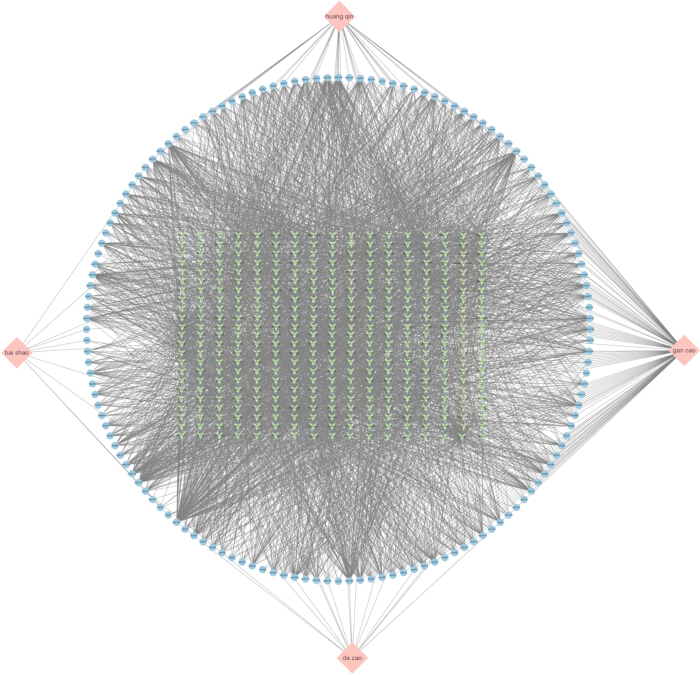
图1.黄芩汤成分与潜在靶点的预测相互作用网络。 该网络展示了黄芩汤(HQT)的四种草药成分、候选生物活性成分及其潜在分子靶点之间的预测相互作用关系。粉红色菱形节点代表四种草药成分,蓝色圆形节点代表候选化合物,绿色节点代表预测的靶点。边线表示预测的草药-化合物或化合物-靶点关联关系。请点击此处查看此图的放大版本。
鉴定与HQT干预在AS中相关的靶点
来自GSE100927数据集的基因表达数据从Gene Expression Omnibus数据库中获取。差异表达分析发现,在动脉粥样硬化动脉样本与对照动脉样本相比,有1,513个基因显著上调,922个基因显著下调。相应的火山图和热图分别显示在图2A和图2B中。随后,从GeneCards、在线人类孟德尔遗传数据库(Online Mendelian Inheritance in Man)以及比较毒物基因组学数据库(Comparative Toxicogenomics Database)中检索出与动脉粥样硬化(AS)相关的靶点。通过设定相关性评分阈值≥1.163,从GeneCards中获得600个潜在靶点,分别从在线人类孟德尔遗传数据库和比较毒物基因组学数据库中检索到188个和64个靶点,如图2C所示。将数据库来源的靶点与差异表达基因整合后,共识别出29个由至少两个数据源支持的AS相关靶点。随后将这些靶点与HQT的预测靶点进行比较,得到12个重叠靶点,这些靶点被认为是HQT可能作用于AS的候选靶点(图2D)。
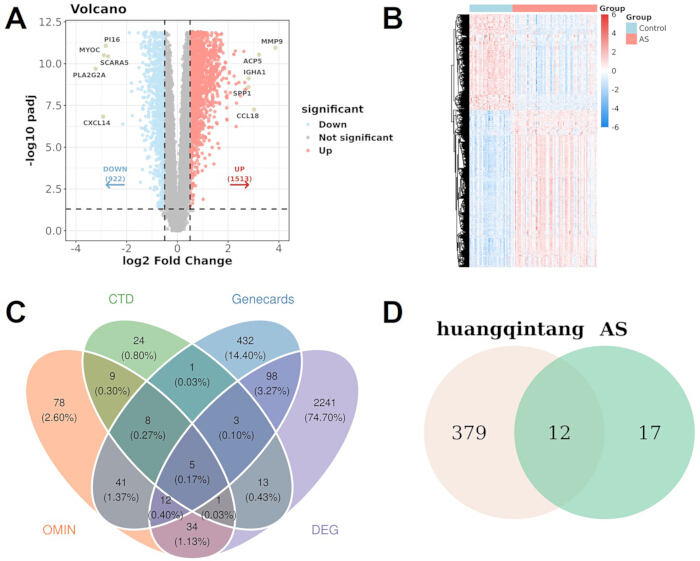
图2。动脉粥样硬化相关基因的鉴定及其与预测的黄芩汤靶点的重叠情况。(A)火山图显示在GSE100927数据集中动脉粥样硬化(AS)样本与对照动脉样本之间差异表达的基因(DEGs)。红色和蓝色点分别代表上调和下调的基因,灰色点代表无显著差异表达的基因。(B)热图显示DEGs在对照和AS样本中的表达模式。(C)维恩图显示从比较毒理基因组学数据库(Comparative Toxicogenomics Database)、GeneCards、在线人类孟德尔遗传数据库(Online Mendelian Inheritance in Man)以及GSE100927的DEG分析中获得的AS相关基因之间的重叠。(D)维恩图显示预测的黄芩汤(HQT)靶点与来自C图中至少两个来源保留的AS相关靶点之间的重叠。请点击此处查看该图的放大版本。
候选靶点的蛋白质-蛋白质相互作用网络及功能富集分析
为了表征这12个重叠靶点之间的相互作用及其生物学意义,利用STRING数据库构建了蛋白质-蛋白质相互作用(PPI)网络,并在Cytoscape中进行可视化与分析。该网络包含多个与脂质代谢、血管炎症及动脉粥样硬化(AS)密切相关的靶点,包括NOS3、OLR1、ALOX5、SPP1、ESR1、IL10、TNF和VCAM1(图3A)。节点越大且颜色越深,表示其在网络中的拓扑学重要性越高,提示这些蛋白可能在HQT抗AS的潜在靶点网络中处于相对核心的位置。为进一步阐明这些靶点相关的生物学功能和信号通路,进行了基因本体(GO)和京都基因与基因组百科全书(KEGG)富集分析。GO生物过程(BP)分析显示,这些靶点主要富集于类固醇代谢过程、对类固醇激素和营养水平的响应,以及脂质稳态的调控(图3B)。GO细胞组分(CC)分析表明,这些靶点主要富集于膜筏及相关的膜微结构域(图3C);而GO分子功能(MF)分析则揭示其在低密度脂蛋白颗粒受体活性、脂蛋白颗粒受体活性、蛋白酶结合、细胞因子活性、核受体活性、配体调控的转录因子活性、载体受体活性、转录共调节因子结合、核受体结合以及整合素结合等方面显著富集(图3D)。KEGG通路分析进一步显示,这些靶点在脂质代谢、动脉粥样硬化及代谢调控相关通路中显著富集,包括脂质与动脉粥样硬化通路、糖尿病并发症中的晚期糖基化终产物-晚期糖基化终产物受体(AGE–RAGE)信号通路以及AMPK信号通路(图3E)。综上所述,PPI网络与富集分析表明,这些候选靶点可能参与脂质稳态、炎症信号及能量代谢的调控。特别是AMPK信号通路的富集,为后续在体外研究PF对AMPK相关效应的作用提供了理论依据。
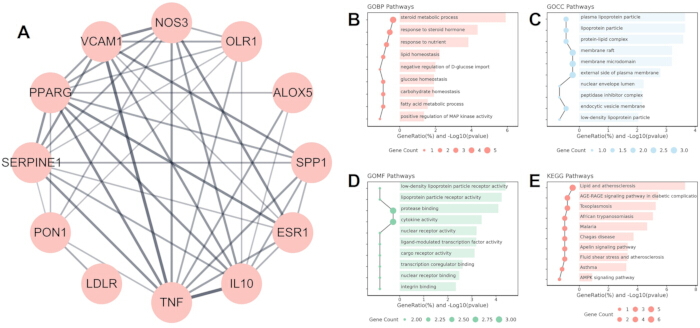
图3。黄芩汤与动脉粥样硬化共同靶点的蛋白质-蛋白质相互作用网络及功能富集分析。(A)黄芩汤(HQT)与动脉粥样硬化(AS)共同靶点的蛋白质-蛋白质相互作用网络。节点代表蛋白质,边代表预测或已报道的蛋白质-蛋白质相互作用关系。(B)基因本体论(Gene Ontology)生物过程富集分析。(C)基因本体论细胞组分富集分析。(D)基因本体论分子功能富集分析。(E)京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes)通路富集分析。点的大小表示富集基因的数量,横条表示相应的富集显著性及基因比例,具体数值见坐标轴标注。请点击此处查看该图的放大版本。
PF 和 HQT 激活 AMPK 并对 ox-LDL 诱导的巨噬细胞功能障碍发挥保护作用
为了确定后续实验的合适浓度,首先评估了PF和HQT对RAW264.7细胞活力的影响。与未处理的对照组相比,使用1至40 µM浓度的PF处理并未显著影响细胞活力(图4A)。同样,使用12.5至200 µg/mL浓度的HQT处理也未引起细胞活力的明显下降(图4B)。这些结果表明,所测试的PF和HQT浓度总体上被RAW264.7巨噬细胞良好耐受。随后进行Western blot分析,以评估PF和HQT对AMPK激活的影响。在不同处理组之间,总AMPK表达水平相对稳定,而PF以浓度依赖的方式增加了p-AMPK/AMPK比值。HQT处理在所测试的浓度下也增强了AMPK的磷酸化(图4C)。基于细胞活力的维持以及AMPK激活的观察结果,选择20 µM PF和100 µg/mL HQT用于后续的比较实验。油红O染色显示,ox-LDL暴露显著增加了RAW264.7细胞内的脂质积聚。与ox-LDL组相比,PF或HQT处理均显著减少了油红O阳性区域(图4D)。同时,ox-LDL暴露损害了ApoA-I介导和HDL介导的胆固醇外排。PF处理显著恢复了这两种形式的胆固醇外排,而HQT处理也对细胞胆固醇外排产生了类似的改善作用(图4E、F)。ox-LDL暴露还显著增加了促炎性细胞因子TNF-α、IL-6和IL-1β的分泌。PF处理显著降低了培养上清液中这三种细胞因子的浓度。HQT处理同样减轻了ox-LDL诱导的细胞因子分泌(图4G)。综上所述,这些结果表明,PF重现了完整HQT制剂所观察到的多种保护作用,包括AMPK激活、脂质积聚减少、胆固醇外排增强以及炎症反应的抑制。这些发现支持将PF作为HQT的生物活性成分,用于后续的机制研究。
进一步通过细胞热迁移分析(CETSA)评估PF是否影响AMPK的热稳定性。随着孵育温度升高,对照组和PF处理组中可检测到的AMPK及磷酸化AMPK水平均逐渐下降。然而,与相应的对照组相比,PF处理在多个温度下提高了AMPK和p-AMPK的保留量(图4H,I)。这些结果表明,PF可增强AMPK的热稳定性,提示PF与AMPK之间可能存在直接的靶点结合。基于上述结果,后续实验进一步探讨了药理学或遗传学抑制AMPK是否减弱PF在ox-LDL处理的巨噬细胞中的保护作用。
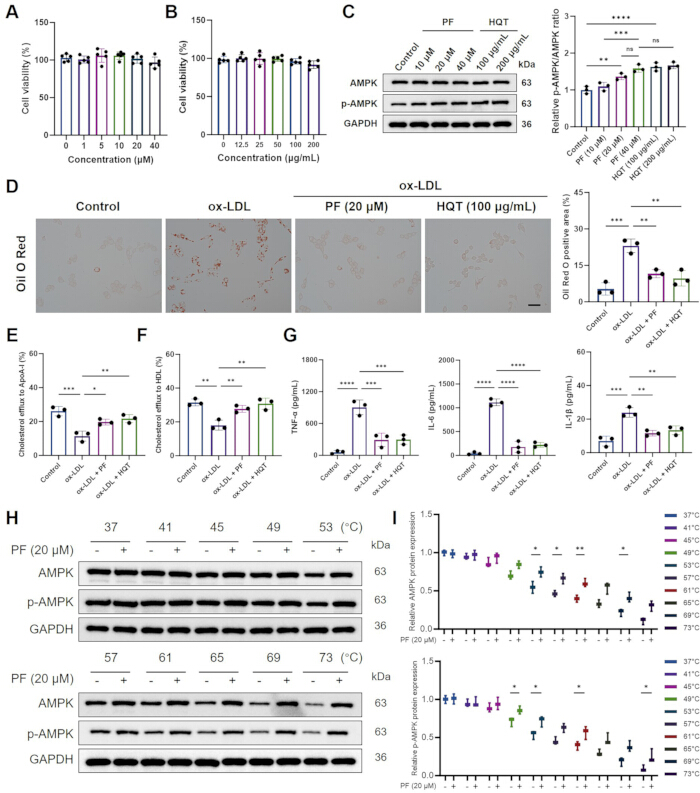
图4芍药苷和黄芩汤激活AMPK并缓解氧化型低密度脂蛋白诱导的巨噬细胞功能障碍。 (A) 经不同浓度芍药苷(PF; n = 5). (B) 经指定浓度的HQT提取物处理后的细胞活力(n = 5). (CAMPK 和磷酸化 AMPK 的代表性 Western 印迹,以及 PF 或 HQT 处理后 p-AMPK/AMPK 比值的定量分析n = 3)。GAPDH 用作上样对照。D代表性油红O染色图像及细胞内脂质蓄积的定量分析(n = 3)。比例尺 = 100 µm. (E载脂蛋白A-I介导的胆固醇外流n = 3). (F高密度脂蛋白介导的胆固醇外流n = 3). (G肿瘤坏死因子-α(TNF-α)α, IL-6 和 IL-1β 通过ELISA测定的培养上清液中的浓度(n = 3). (H) 在指定温度下孵育后,有或无 PF 存在时 AMPK 和 p-AMPK 的代表性细胞热迁移实验印迹。以 GAPDH 作为上样对照。IAMPK与p-AMPK热稳定性的定量分析n = 3)。数据以均值表示 ± SD。统计学显著性以 * 表示P < 0.05,**P < 0.01, ***P < 0.001,以及****P < 0.0001。水平条表示所检测的成对比较。在图C中,所示比较为对照组与PF组20 µM),PF(10 µM)与PF相比(40 µM),PF(20 µM)与PF(40 µM对照组与HQT(100 µg/mL),以及PF(40 µM)与高奎宁型(HQT)相比(200 µg/mL在图D–G中,所示比较分别为对照组与ox-LDL组、ox-LDL组与ox-LDL + PF组、ox-LDL组与ox-LDL + HQT组。在图I中,每个由水平条标注的温度下,分别比较了溶剂处理组与PF处理组的样本。 请点击此处以查看此图的放大版本。
PF 减少氧化型低密度脂蛋白处理的 RAW264.7 细胞中的脂质积聚和炎症性细胞因子释放,并恢复细胞内 ATP 水平
油红O染色显示,与对照组相比,ox-LDL处理显著诱导RAW264.7细胞内脂质积聚和泡沫细胞形成,表现为大量 intensely stained脂滴(图5A,B)。PF处理显著减少了脂滴的数量和染色面积,相较于ox-LDL组有所降低。与脂质积聚改善一致,PF还减轻了ox-LDL诱导的炎症反应。培养上清液中TNF-α、IL-6和IL-1β水平在ox-LDL暴露后显著升高,但经PF处理后明显下降(图5C–E)。此外,ox-LDL显著降低细胞内ATP水平,而PF部分恢复了ATP含量,表明细胞能量状态得到改善(图5F)。ox-LDL还损害了ApoA-I介导和HDL介导的胆固醇外排,而PF处理相较于ox-LDL组显著增强了这两种形式的胆固醇外排(图5G,H)。联合使用AMPK抑制剂dorsomorphin部分逆转了PF的上述各项效应,与单独PF处理相比,表现为脂质积聚增加、促炎性细胞因子水平升高,同时ATP含量和胆固醇外排减少(图5B–H)。综上所述,这些结果表明PF可缓解ox-LDL在RAW264.7细胞中引起的脂质代谢紊乱、炎症反应及细胞能量稳态失衡,AMPK信号通路可能介导了这些协调性的保护作用。
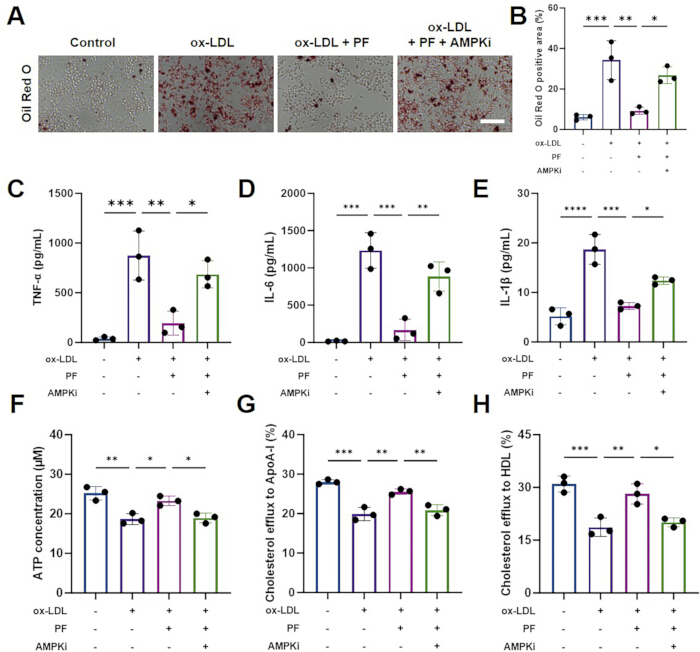
图5.AMPK抑制减弱芍药苷对炎症和脂质积聚的抑制作用,并削弱ATP含量和胆固醇外流的改善效果。(A)RAW264.7细胞的代表性油红O染色图像。比例尺 = 100 µm。(B)油红O阳性区域的定量分析(n = 3)。(C–E)ELISA法测定的培养上清液中TNF-α、IL-6和IL-1β浓度(分别为 n = 3)。(F)细胞内ATP浓度(n = 3)。(G)载脂蛋白A-I介导的胆固醇外流(n = 3)。(H)高密度脂蛋白介导的胆固醇外流(n = 3)。AMPKi表示AMPK抑制剂dorsomorphin。数据以三次独立实验的均值±标准差表示。统计学显著性标记为 *P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001。水平线表示所检验的成对比较。在图B–H中,所示比较分别为对照组与ox-LDL组、ox-LDL组与ox-LDL + PF组、ox-LDL + PF组与ox-LDL + PF + AMPKi组。请点击此处查看该图的放大版本。
PF 减轻氧化型低密度脂蛋白(ox-LDL)诱导的线粒体功能障碍、氧化应激和细胞凋亡
TUNEL 染色显示,ox-LDL 显著增加了 RAW264.7 细胞中的 TUNEL 荧光,表明细胞凋亡增强,而 PF 处理显著减轻了 ox-LDL 诱导的 TUNEL 荧光。同时使用 AMPK 抑制剂 dorsomorphin 则部分逆转了 PF 的抗凋亡作用(图 6A、B)。 一致地,ox-LDL 显著提高了细胞内 ROS 水平,表现为 DCFH-DA 荧光增强,而 PF 显著减少了 ROS 的积累;这一抗氧化作用可被 dorsomorphin 部分逆转(图 6C、D)。 JC-1 染色进一步显示,ox-LDL 处理降低了红色 JC-1 聚集体荧光,同时增加了绿色 JC-1 单体荧光,导致绿色/红色荧光比值显著升高,提示线粒体膜电位去极化。PF 处理显著降低了绿色/红色荧光比值,而与 dorsomorphin 共同处理则部分逆转了这一效应 (图 6E、F)。综上所述,这些结果表明 PF 可缓解 ox-LDL 诱导的 RAW264.7 细胞线粒体膜电位去极化、过量 ROS 产生及细胞凋亡,AMPK 信号通路可能介导了这些保护作用。
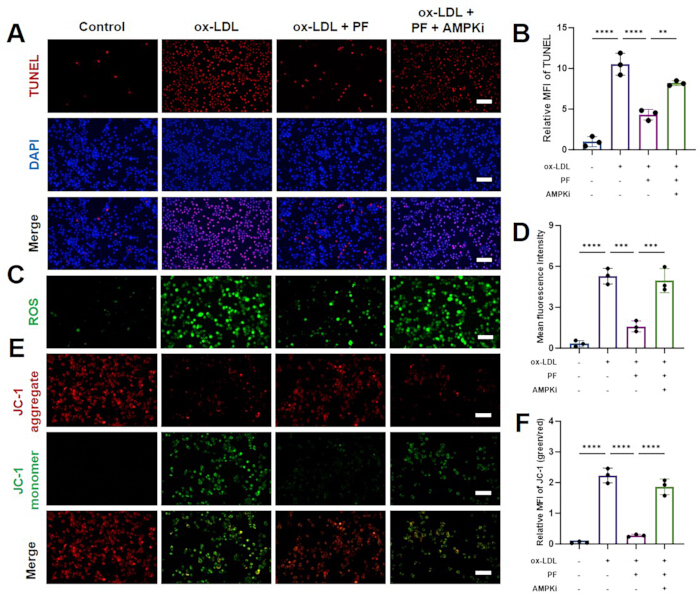
图6.AMPK抑制减弱芍药苷对氧化型低密度脂蛋白诱导的细胞凋亡、氧化应激及线粒体膜电位丧失的作用。(A)RAW264.7细胞的TUNEL法检测细胞凋亡 (比例尺 = 100 µm),以及 (B)相应的定量分析(n = 3)。 (C) RAW264.7细胞的活性氧染色(比例尺 = 100 μm)以及 (D)定量结果(n = 3)。(E)RAW264.7细胞的JC-1染色(比例尺 = 100 μm)以及(F)相应的定量分析(n = 3)。 数据以三次独立实验的均值±标准差表示。统计学显著性表示为 *P < 0.05,**P < 0.01,***P < 0.001,以及 ****P < 0.0001。水平线表示所检验的成对比较。在图B、D和F中,所标注的比较分别为:对照组与ox-LDL组、ox-LDL组与ox-LDL + PF组、ox-LDL + PF组与ox-LDL + PF + AMPKi组。请点击此处查看该图的放大版本。
AMPK 抑制可减弱与肺纤维化相关联的 ABCA1 及凋亡相关蛋白的变化
Western blot 分析显示,各处理组间总 AMPK 蛋白水平相对稳定,而 ox-LDL 显著提高了 p-AMPK/AMPK 比值,并降低 ABCA1 表达,与对照组相比差异显著。PF 处理进一步升高了 p-AMPK/AMPK 比值,并使 ABCA1 表达恢复至 ox-LDL 组以上水平。联合使用 AMPK 抑制剂 dorsomorphin 后,PF 引起的上述变化明显减弱,导致 p-AMPK/AMPK 比值和 ABCA1 表达均低于 ox-LDL + PF 组(图 7A,B)。凋亡相关蛋白分析显示,与对照组相比,ox-LDL 显著增加总 caspase-3 表达,并降低 BCL-2/BAX 比值。PF 处理显著降低总 caspase-3 表达,并提高 BCL-2/BAX 比值,较 ox-LDL 组有所改善。加入 dorsomorphin 共同处理后,PF 的上述作用被逆转,表现为总 caspase-3 表达升高,BCL-2/BAX 比值下降,与 ox-LDL + PF 组相比差异显著(图 7C,D)。这些结果表明,AMPK 抑制可削弱 PF 对 ox-LDL 处理的 RAW264.7 细胞中 ABCA1 表达及凋亡相关蛋白谱的影响。
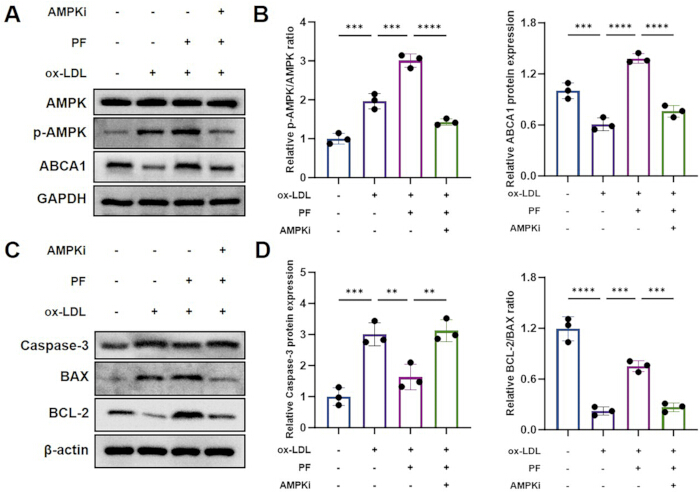
图7。AMPK抑制剂减弱芍药苷对AMPK磷酸化、ABCA1表达及凋亡相关蛋白的影响。(A)AMPK、p-AMPK和ATP结合盒转运蛋白A1(ABCA1)的代表性Western印迹图。GAPDH用作上样对照。(B)p-AMPK/AMPK比值和相对ABCA1蛋白表达水平的定量分析(n = 3)。(C)总caspase-3、BAX和BCL-2的代表性Western印迹图。β-Actin用作上样对照。(D)相对总caspase-3表达水平及BCL-2/BAX比值的定量分析(n = 3)。AMPKi表示AMPK抑制剂dorsomorphin。数据以三次独立实验的均值±标准差表示。统计学显著性标记为:*P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001。水平条表示所检验的成对比较。对于B和D两组中的定量结果,所标注的比较分别为:对照组与ox-LDL组、ox-LDL组与ox-LDL + PF组、ox-LDL + PF组与ox-LDL + PF + AMPKi组。请点击此处查看该图的放大版本。
AMPK 沉默减弱了苯并芘(PF)在氧化型低密度脂蛋白(ox-LDL)处理的 RAW264.7 细胞中诱导的核内 LXRα 水平升高以及 NF-κB 信号通路的抑制作用
为了进一步确定AMPK在PF作用中的参与,使用siRNA沉默AMPK的表达。与si-NC组相比,转染si-AMPK的细胞中AMPK的mRNA和蛋白水平均显著降低,证实了有效的基因敲低(图8A,B)。PF可增加经ox-LDL处理细胞中核内LXRα的表达,并降低核内p-p65/p65比值,而AMPK敲低显著减弱了这些效应(图8C,D)。一致地,ox-LDL显著提高了全细胞中p-p65/p65比值,PF可抑制该升高,但在AMPK敲低后该抑制作用部分恢复(图8E)。PF还能逆转ox-LDL诱导的IκB-α表达下降以及p-IκB-α表达上升,而这些效应在si-AMPK处理后被减弱(图8F)。综上所述,这些结果表明AMPK参与了PF介导的核内LXRα水平升高以及NF-κB信号通路的抑制。
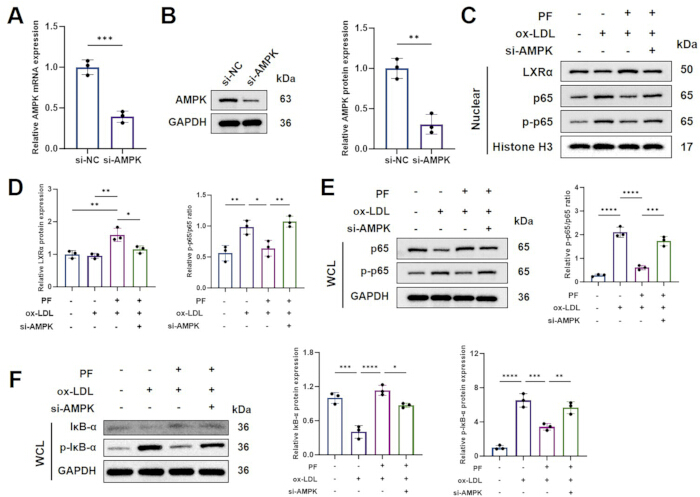
图8. AMPK 沉默减弱芍药苷介导的核内 LXRα 蛋白水平升高及 NF-κB 信号通路的抑制作用。(A)转染阴性对照 siRNA 或靶向 AMPK 的 siRNA 后 AMPK mRNA 的相对表达水平(n = 3)。(B)siRNA 转染后 AMPK 蛋白表达的代表性 Western 印迹图及定量分析(n = 3)。GAPDH 作为上样对照。(C)核内 LXRα、p65 和 p-p65 的代表性 Western 印迹图。组蛋白 H3 作为核蛋白上样对照。(D)核内 LXRα 相对表达水平及核内 p-p65/p65 比值的定量分析(n = 3)。(E)全细胞中 p65 和 p-p65 的代表性 Western 印迹图及 p-p65/p65 比值的定量分析(n = 3)。GAPDH 作为上样对照。(F)全细胞中 IκB-α 和 p-IκB-α 的代表性 Western 印迹图及相应的定量分析(n = 3)。GAPDH 作为上样对照。数据以三次独立实验的均值 ± 标准差表示。统计学显著性标记为:*P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001。水平条线表示所检验的成对比较。在图 A 和 B 中,si-NC 组与 si-AMPK 组进行比较。对于图 D 中的核内 LXRα 表达,所标注的比较为:对照组 vs ox-LDL + PF 组、ox-LDL 组 vs ox-LDL + PF 组、ox-LDL + PF 组 vs ox-LDL + PF + si-AMPK 组。对于图 D 中的核内 p-p65/p65 比值以及图 E 和 F 中的定量分析,所标注的比较为:对照组 vs ox-LDL 组、ox-LDL 组 vs ox-LDL + PF 组、ox-LDL + PF 组 vs ox-LDL + PF + si-AMPK 组。请点击此处查看该图的放大版本。
AMPK 沉默减弱了 PF 介导的胆固醇外流及巨噬细胞表型调控
为了确定NF-κB的药物抑制是否产生与PF类似的功能性变化,评估了ABCA1表达、胆固醇外流、脂质积累以及巨噬细胞表型标志物。PF恢复了ABCA1的表达,并增强了经ox-LDL处理的细胞中ApoA-I介导和HDL介导的胆固醇外流,而AMPK沉默显著减弱了这些效应(图9A–C)。一致地,PF减少了细胞内脂质积累,而si-AMPK部分逆转了这一效应(图9D、E)。使用BAY 11-7082处理产生了与PF类似的变化,包括ABCA1表达和胆固醇外流增加,以及细胞内脂质积累减少(图9A–E)。流式细胞术分析采用如图9F所示的设门策略。ox-LDL显著增加了CD86阳性巨噬细胞的比例,而PF降低了该细胞群比例;AMPK沉默减弱了这一效应(图9G、H)。相反,PF增加了CD206阳性巨噬细胞的比例,而si-AMPK部分逆转了这一变化(图9I、J)。BAY 11-7082同样减少了CD86阳性巨噬细胞的比例,并增加了CD206阳性巨噬细胞的比例(图9G–J)。这些结果表明,AMPK通过调控NF-κB信号通路,可能参与了PF对胆固醇稳态及巨噬细胞表型调节的作用。
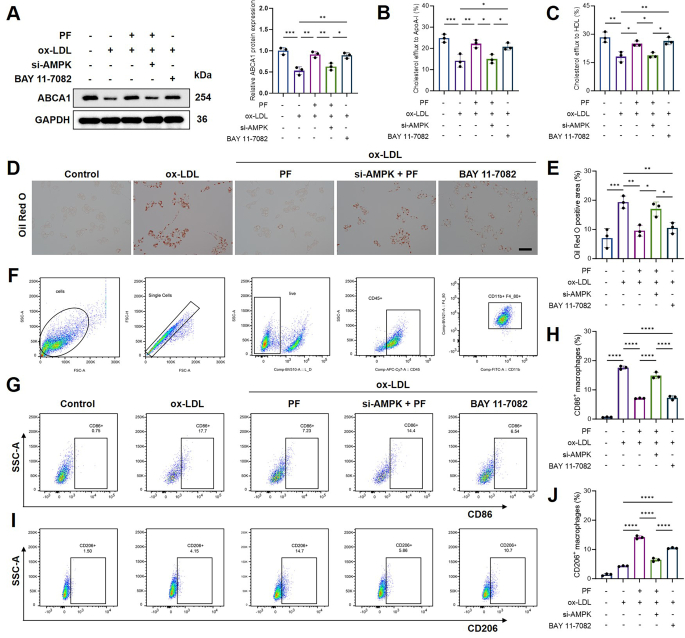
图9.AMPK 沉默与 NF-κB 抑制调节芍药苷相关的胆固醇外排、脂质积聚及巨噬细胞表型。(A)ABCA1 表达的代表性 Western 印迹图及定量分析(n = 3)。GAPDH 作为上样对照。(B)载脂蛋白 A-I 介导的胆固醇外排(n = 3)。(C)高密度脂蛋白介导的胆固醇外排(n = 3)。(D)代表性 Oil Red O 染色图像。比例尺 = 100 µm。(E)Oil Red O 阳性区域的定量分析(n = 3)。(F)用于鉴定细胞、单细胞、活 CD45 阳性细胞以及 CD11b 阳性/F4/80 阳性巨噬细胞的连续流式细胞术设门策略。(G)CD86 阳性巨噬细胞的代表性流式细胞术图谱。(H)CD86 阳性巨噬细胞的定量分析(n = 3)。(I)CD206 阳性巨噬细胞的代表性流式细胞术图谱。(J)CD206 阳性巨噬细胞的定量分析(n = 3)。BAY 11-7082 用作 NF-κB 抑制剂。数据以三次独立实验的均值 ± 标准差表示。统计学显著性表示为 *P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001。水平条表示所检测的成对比较。在图 A–C、E 和 H 中,所标注的比较分别为:对照组 vs ox-LDL 组、ox-LDL 组 vs ox-LDL + PF 组、ox-LDL + PF 组 vs ox-LDL + PF + si-AMPK 组、ox-LDL + PF + si-AMPK 组 vs ox-LDL + BAY 11-7082 组,以及 ox-LDL 组 vs ox-LDL + BAY 11-7082 组。在图 J 中,所标注的比较分别为:ox-LDL 组 vs ox-LDL + PF 组、ox-LDL + PF 组 vs ox-LDL + PF + si-AMPK 组、ox-LDL + PF + si-AMPK 组 vs ox-LDL + BAY 11-7082 组,以及 ox-LDL 组 vs ox-LDL + BAY 11-7082 组。请点击此处查看该图的放大版本。
数据可用性:
本研究中分析的公开可用微阵列数据集可通过美国国家生物技术信息中心基因表达综合数据库(GEO)获取,登录号为 GSE100927。本研究生成的所有原始数据和处理后数据均已作为补充文件随本文提供,并将在发表后无限制地公开。补充数据1 包含 图4–9 及相应统计分析所依据的源数值数据。补充数据2 包含未经裁剪的原始Western blot和CETSA图像。补充数据3 包含用于定量分析的原始全分辨率显微镜图像。补充数据4 包含原始流式细胞术FCS文件、对照文件、补偿信息、设门记录以及FlowJo工作区文件。补充数据5 包含用于网络药理学和转录组学分析的完整R脚本,涵盖数据预处理、差异表达分析、可视化、靶点整合及富集分析。
补充数据 1. 源数值数据与统计分析。 此 Excel 工作簿包含支持图 4–9的源数值数据及相应的统计分析,按图分为不同的工作表。该工作簿包括用于生成图表和进行统计比较的定量数据。请点击此处下载此文件。
补充数据 2. 原始未裁剪的 Western 印迹和 CETSA 图像。 该 PDF 文件包含论文中所有 Western 印迹和 CETSA 实验的原始未裁剪图像,按图和图面板进行组织,以记录图像制备和定量所用的源数据。请点击此处下载该文件。
补充数据 3:原始高分辨率显微图像。 该 PDF 文件包含用于定性展示和定量分析的原始高分辨率显微图像,其中包括与论文中所示图例相对应的代表性图像。请点击此处下载该文件。
补充数据 4。流式细胞术原始数据。 原始 FCS 文件、对照文件、补偿信息、设门记录以及用于流式细胞术分析的 FlowJo 工作区。完整数据集可通过 Microsoft OneDrive 获取:https://1drv.ms/f/c/8d1d81159583ae0f/IgA367Hi90R5CfjDR5uwoGARiUYsefUFv0_OKSUWT5jGY?e=caEpxo。另提供流式细胞术分析的 PDF 摘要作为备份。请点击此处下载该文件。
补充数据 5. 用于网络药理学和转录组学分析的 R 脚本。 两个包含用于网络药理学和转录组学分析的完整计算流程的 R 脚本文件。这些脚本包括软件包的加载与安装、数据预处理、差异表达分析、靶点整合、功能富集分析、数据可视化以及所报告分析结果的生成。请点击此处下载该文件。
讨论
巨噬细胞泡沫样细胞的形成不仅由修饰型脂蛋白的过度摄取所驱动,还与胆固醇外排功能受损及持续性炎症激活有关。本研究通过鉴定AMPK相关信号通路,揭示了PF可能通过该机制同时影响脂质代谢、炎症反应和细胞应激过程,其中多个效应可通过AMPK抑制或沉默而减弱。PF与HQT所产生的一致性广泛效应进一步表明,PF是该方剂中具有生物学意义的组成成分。然而,由于HQT含有多种可能具有相加或协同作用的活性化合物,这些发现仅支持PF作为HQT的代表性成分,而不足以确立其为主要活性物质。
AMPK 作为一种代谢检查点,能够抑制巨噬细胞的炎症活化。既往研究表明,AMPK 的活化可限制 IκB 的降解,减少炎症介质的产生,并促进巨噬细胞呈现较低炎症性的表型。另有报道指出,AMPK 活化可通过调控 PP2A/NF-κB/LOX-1 通路抑制氧化型低密度脂蛋白(ox-LDL)的摄取26,27。本研究的药理学与遗传学结果进一步拓展了这些发现,表明 AMPK 对于 PF 在胆固醇外排及炎症信号通路中的多种作用是必需的。因此,AMPK 可能并非仅介导 PF 的单一反应,而是整合了其在巨噬细胞中的代谢与免疫调节功能。AMPK、LXRα 与 ABCA1 之间的关系为观察到的胆固醇外流改善提供了合理的解释。LXRα 是 ABCA1 的核心转录调控因子,LXRα–ABCA1 通路的活化可促进巨噬细胞中过量胆固醇的清除28。在人巨噬细胞中的研究进一步表明,AMPK 可调控 LXRα 及其下游胆固醇转运蛋白,而 LXR 激发的胆固醇外流高度依赖于 ABCA129,30。在本研究中,AMPK 沉默减弱了 PF 对细胞核内 LXRα 水平、ABCA1 表达以及载脂蛋白 A-I 介导和高密度脂蛋白(HDL)介导的胆固醇外流的影响。这些结果支持一种模型,即 LXRα/ABCA1 相关的调控位于 AMPK 的下游。然而,由于未直接沉默 ABCA1,这些数据仅支持但并未完全确立 AMPK–LXRα–ABCA1 的因果序列关系。
研究结果还表明,胆固醇稳态与炎症信号通路之间存在相互调控关系。炎症可抑制ABCA1的表达及胆固醇外流,从而促进脂质在巨噬细胞中的滞留。相反,抑制NF-κB已被证明可恢复炎症状态下巨噬细胞中ABCA1的表达及胆固醇的外排31。本研究中PF与BAY 11-7082产生的相似效应支持这种串扰机制:NF-κB信号通路的抑制伴随着ABCA1表达的增加、胆固醇外流的增强以及脂质积聚的减少。AMPK的沉默削弱了PF对代谢和炎症的双重作用,提示AMPK可能协调这两个相互关联的过程,而非独立调控它们。先前的研究表明,PF可通过抑制NF-κB信号通路来抑制促炎性巨噬细胞的活化。含PF的治疗方案还被报道可增强ABCA1/ABCG1介导的胆固醇外排并减少泡沫细胞的形成32,33。本研究通过将这些已知的脂质调节和抗炎特性与AMPK联系起来,提供了更深入的机制解释。此外,与完整的HQT制剂进行比较,使本研究区别于仅单独研究PF的其他工作,并提示PF与HQT在所选的巨噬细胞实验中产生了部分重叠的效应。
AMPK 相关机制可能参与了 PF 对氧化应激和线粒体完整性的调节作用。氧化型低密度脂蛋白(Ox-LDL)诱导的脂质蓄积会对巨噬细胞造成显著的能量和氧化应激,从而促进线粒体去极化和细胞凋亡。PF 处理后观察到 ATP 水平、线粒体膜电位和抗氧化能力的同时恢复,这一现象与协调性的代谢保护作用一致,而非多个无关效应的叠加。此前一项关于巨噬细胞的研究同样发现,PF 通过调控线粒体质量控制,减少了活性氧(ROS)的积累,维持了线粒体膜电位,并改变了炎症表型34。这些结果提示,线粒体功能的维持可能有助于 PF 发挥抗炎和抗凋亡作用,尽管 AMPK 的具体下游效应分子仍有待鉴定。CETSA 的研究结果为 PF 与 AMPK 之间的关联提供了另一条证据。CETSA 技术旨在通过检测配体结合引起的蛋白质热稳定性变化,来评估细胞内药物与靶点的结合情况35。基于细胞裂解液的 CETSA 结果表明,PF 可能稳定了 AMPK 或含有 AMPK 的蛋白质复合物。然而,仅凭热稳定性增强无法区分配体的直接结合与由磷酸化改变、蛋白质相互作用或细胞环境变化引起的间接稳定作用。PF 与 AMPK 的直接结合仍需通过纯化蛋白或其他生物物理方法加以验证。
PF 还降低了 CD86 阳性细胞的比例,同时增加了 CD206 阳性细胞的比例,而 AMPK 沉默可减弱这些变化。这些发现与先前的研究证据一致,即 PF 能够改变巨噬细胞的炎症表型32,34。然而,巨噬细胞的活化存在于一个多维度的连续谱中,而非简单的两种固定状态——M1 和 M236。因此,CD86 和 CD206 应被理解为分别与炎症性和修复性程序相关的表型标志物,而非巨噬细胞由 M1 向 M2 完全转化的确凿证据。要更全面地表征巨噬细胞表型,还需结合其他转录、分泌及功能标志物进行分析。本研究存在若干局限性。首先,实验仅限于 RAW264.7 细胞,研究结果需在原代或人源巨噬细胞以及体内动脉粥样硬化模型中进一步验证。其次,尽管所选 PF 浓度无细胞毒性并可增强 AMPK 磷酸化,但尚未建立主要功能结局的完整浓度-反应关系。第三,未开展针对 ABCA1 的特异性功能缺失及功能挽救实验,因此所提出的 AMPK–LXRα–ABCA1 通路应被视为一个得到支持的机制模型,而非完全确立的线性级联反应。第四,PF 与 HQT 的比较采用了不同的浓度单位,且未对 HQT 制剂中的 PF 含量及植物化学成分的一致性进行定量评估。最后,CETSA 结果提示可能存在细胞内靶点结合,但尚不足以独立证明其直接的分子结合作用。
综上所述,本研究结果表明,PF 通过协调胆固醇外排、炎症信号传导、能量代谢以及线粒体稳态,缓解了氧化型低密度脂蛋白(ox-LDL)诱导的巨噬细胞功能障碍。药理学抑制及 siRNA 介导的 AMPK 沉默削弱了 PF 所介导的多种保护作用,并伴随细胞核内 LXRα 水平、ABCA1 表达、胆固醇外流以及 NF-κB 信号通路的改变。PF 表现出的巨噬细胞保护作用,在所测试条件下,与 HQT 处理后观察到的多种效应存在重叠。PF 对 HQT 整体活性的具体贡献仍有待阐明。
披露
利益冲突:
作者声明不存在任何竞争利益。
致谢
无。
作者贡献:
曾云杰:概念化、方法论、调研、形式分析、数据整理、可视化及撰写 – 初稿。
Huaying Wang:方法学、研究、形式分析、验证、数据管理、可视化与撰写 – 初稿。
Dong Liu:方法学设计、实验研究与结果验证。
Yunlu Jiang:调查、数据整理与形式分析。
彭程任:调研、形式分析与可视化。
宋文鑫:资源、验证与文稿撰写 – 综述 & 编辑。
Guopeng Huang:概念化、方法论、监督、项目管理、资金获取及文稿撰写 – 综述 & 编辑。
何晓娇:概念化、资源、监督、项目管理、资金获取及撰写 – 综述 & 编辑。
曾云杰与王华英对本研究贡献相当,共享第一作者身份。黄国鹏与何晓娇为共同通讯作者。所有作者均已审阅并批准最终稿件。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 化学发光成像系统 | Thermo Fisher Scientific | iBright Imaging System | |
| 流式细胞仪 | BD Biosciences | FACSCanto II | |
| 倒置荧光显微镜 | Olympus | IX73 | |
| 酶标仪 | PerkinElmer | VICTOR X3 | |
| 实时荧光定量PCR系统 | Bio-Rad | CFX Opus 96 | |
| 分光光度计 | Thermo Fisher Scientific | NanoDrop 8000 |
参考文献
- Zysman M et al. Risk of cardiovascular events according to the severity of an exacerbation of chronic obstructive pulmonary disease. Eur J Prev Cardiol. 2025;32(15):1436-1444. doi:10.1093/eurjpc/zwaf086.
- Zvintzou E et al. Context-dependent effects of apolipoprotein A2 on lipid metabolism and atherogenesis. FASEB J. 2026;40(12):e72032. doi:10.1096/fj.202600765R.
- Zuriaga MA et al. Colchicine prevents accelerated atherosclerosis in TET2-mutant clonal haematopoiesis. Eur Heart J. 2024;45(43):4601-4615. doi:10.1093/eurheartj/ehae546.
- Zhang Y et al. Effects and mechanisms of Zhizi Chuanxiong herb pair against atherosclerosis: an integration of network pharmacology, molecular docking, and experimental validation. Chin Med. 2024;19(1):8. doi:10.1186/s13020-023-00874-x.
- Zysset D et al. TREM-1 links dyslipidemia to inflammation and lipid deposition in atherosclerosis. Nat Commun. 2016;7:13151. doi:10.1038/ncomms13151.
- Zou Z et al. Recent advances in nanozymes for the treatment of atherosclerosis. Int J Nanomedicine. 2025;20:9447-9472. doi:10.2147/IJN.S540010.
- Zoubdane N et al. High tyrosol and hydroxytyrosol intake reduces arterial inflammation and atherosclerotic lesion microcalcification in healthy older populations. Antioxidants (Basel). 2024;13(1):130. doi:10.3390/antiox13010130.
- Zhong T et al. Adaptation of endothelial cells to shear stress under atheroprone conditions by modulating internalization of vascular endothelial cadherin and vinculin. Ann Transl Med. 2020;8(21):1423. doi:10.21037/atm-20-3426.
- Zhuo S et al. Inflammatory corpuscle AIM2 facilitates macrophage foam cell formation by inhibiting cholesterol efflux protein ABCA1. Sci Rep. 2024;14(1):10782. doi:10.1038/s41598-024-61495-4.
- Zheng H et al. Lp-PLA2 silencing protects against ox-LDL-induced oxidative stress and cell apoptosis via Akt/mTOR signaling pathway in human THP-1 macrophages. Biochem Biophys Res Commun. 2016;477(4):1017-1023. doi:10.1016/j.bbrc.2016.07.022.
- Zhou Y et al. Asperlin inhibits LPS-evoked foam cell formation and prevents atherosclerosis in ApoE(-/-) mice. Mar Drugs. 2017;15(11):358. doi:10.3390/md15110358.
- Zhong Y, Liu C, Feng J, Li JF, Fan ZC. Curcumin affects ox-LDL-induced IL-6, TNF-α, MCP-1 secretion and cholesterol efflux in THP-1 cells by suppressing the TLR4/NF-κB/miR33a signaling pathway. Exp Ther Med. 2020;20(3):1856-1870. doi:10.3892/etm.2020.8915.
- Zhu C et al. TRIM64 promotes ox-LDL-induced foam cell formation, pyroptosis, and inflammation in THP-1-derived macrophages by activating a feedback loop with NF-κB via IκBα ubiquitination. Cell Biol Toxicol. 2023;39(3):607-620. doi:10.1007/s10565-022-09768-4.
- Zhang G et al. OxLDL/β2GPI/anti-β2GPI Ab complex induces inflammatory activation via the TLR4/NF-κB pathway in HUVECs. Mol Med Rep. 2021;23(2):148. doi:10.3892/mmr.2020.11787.
- Zu YX et al. Jiang Gui Fang activated interscapular brown adipose tissue and induced epididymal white adipose tissue browning through the PPARγ/SIRT1-PGC1α pathway. J Ethnopharmacol. 2020;248:112271. doi:10.1016/j.jep.2019.112271.
- Zu X et al. Antidepressant-like effect of Bacopaside I in mice exposed to chronic unpredictable mild stress by modulating the hypothalamic-pituitary-adrenal axis function and activating BDNF signaling pathway. Neurochem Res. 2017;42(11):3233-3244. doi:10.1007/s11064-017-2360-3.
- Zong K et al. Explorating the mechanism of Huangqin Tang against skin lipid accumulation through network pharmacology and experimental validation. J Ethnopharmacol. 2023;313:116581. doi:10.1016/j.jep.2023.116581.
- Zou Y et al. Huangqin Tang ameliorates dextran sodium sulphate-induced colitis by regulating intestinal epithelial cell homeostasis, inflammation and immune response. Sci Rep. 2016;6:39299. doi:10.1038/srep39299.
- Zou Y et al. Huangqin Tang ameliorates TNBS-induced colitis by regulating effector and regulatory CD4(+) T cells. Biomed Res Int. 2015;2015:102021. doi:10.1155/2015/102021.
- Wang D et al. Huangqin tang alleviates colitis-associated colorectal cancer via amino acid homeostasis and PI3K/AKT/mTOR pathway modulation. J Ethnopharmacol. 2024;334:118597. doi:10.1016/j.jep.2024.118597.
- Zhu X, Zhou Y, Cai W, Sun H, Qiu L. Salusin-β mediates high glucose-induced endothelial injury via disruption of AMPK signaling pathway. Biochem Biophys Res Commun. 2017;491(2):515-521. doi:10.1016/j.bbrc.2017.06.126.
- Zhu J, Chen H, Guo J, Zha C, Lu D. Sodium tanshinone IIA sulfonate inhibits vascular endothelial cell pyroptosis via the AMPK signaling pathway in atherosclerosis. J Inflamm Res. 2022;15:6293-6306. doi:10.2147/JIR.S386470.
- Kim J et al. Inhibition of Toll-like receptors alters macrophage cholesterol efflux and foam cell formation. Int J Mol Sci. 2024;25(12):6808. doi:10.3390/ijms25126808.
- Zuo J, Guo S, Qin X. Bisdemethoxycurcumin suppresses the progression of atherosclerosis and VSMC-derived foam cell formation by promoting lipophagy. Naunyn Schmiedebergs Arch Pharmacol. 2023;396(12):3659-3670. doi:10.1007/s00210-023-02558-7.
- Zong P et al. TRPM2 deficiency in mice protects against atherosclerosis by inhibiting TRPM2-CD36 inflammatory axis in macrophages. Nat Cardiovasc Res. 2022;1(4):344-360. doi:10.1038/s44161-022-00027-7.
- Sag D, Carling D, Stout RD, Suttles J. Adenosine 5'-monophosphate-activated protein kinase promotes macrophage polarization to an anti-inflammatory functional phenotype. J Immunol. 2008;181(12):8633-8641. doi:10.4049/jimmunol.181.12.8633.
- Chen B, Li J, Zhu H. AMP-activated protein kinase attenuates oxLDL uptake in macrophages through PP2A/NF-κB/LOX-1 pathway. Vascul Pharmacol. 2016;85:1-10. doi:10.1016/j.vph.2015.08.012.
- Chawla A et al. A PPARγ-LXR-ABCA1 pathway in macrophages is involved in cholesterol efflux and atherogenesis. Mol Cell. 2001;7(1):161-171. doi:10.1016/S1097-2765(01)00164-2.
- Saenz J et al. Grapefruit flavonoid naringenin regulates the expression of LXRα in THP-1 macrophages by modulating AMP-activated protein kinase. Mol Pharm. 2018;15(5):1735-1745. doi:10.1021/acs.molpharmaceut.7b00797.
- Larrede S et al. Stimulation of cholesterol efflux by LXR agonists in cholesterol-loaded human macrophages is ABCA1-dependent but ABCG1-independent. Arterioscler Thromb Vasc Biol. 2009;29(11):1930-1936. doi:10.1161/ATVBAHA.109.194548.
- Zhao GJ et al. Antagonism of betulinic acid on LPS-mediated inhibition of ABCA1 and cholesterol efflux through inhibiting nuclear factor-kappaB signaling pathway and miR-33 expression. PLoS One. 2013;8(9):e74782. doi:10.1371/journal.pone.0074782.
- Zhai T et al. Unique immunomodulatory effect of paeoniflorin on type I and II macrophages activities. J Pharmacol Sci. 2016;130(3):143-150. doi:10.1016/j.jphs.2015.12.007.
- Mei J et al. Tetramethylpyrazine and Paeoniflorin Synergistically Attenuate Cholesterol Efflux in Macrophage Cells via Enhancing ABCA1 and ABCG1 Expression. Evid Based Complement Alternat Med. 2022;2022:4304790. doi:10.1155/2022/4304790.
- Cao Y et al. Paeoniflorin suppresses kidney inflammation by regulating macrophage polarization via KLF4-mediated mitophagy. Phytomedicine. 2023;116:154901. doi:10.1016/j.phymed.2023.154901.
- Martinez Molina D et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84-87. doi:10.1126/science.1233606.
- Xue J et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274-288. doi:10.1016/j.immuni.2014.01.006.