肾形线虫侵染显著降低棉花的产量和纤维品质。木质素可增强植物细胞壁,并参与抵御害虫的结构防御,但其在棉花抗肾形线虫中的作用尚未得到研究。本研究描述了一种组织化学实验流程,利用间苯三酚染色法对具有肾形线虫抗性与感性的棉花(Gossypium arboreum)基因型根部的木质素沉积进行可视化分析。
本文内容
摘要
摘要
肾形线虫(Rotylenchulus reniformis)是棉花生产的主要限制因素,尤其在美国南部地区影响显著。在已知的400多种线虫中,肾形线虫是第二大重要害虫,对全球粮食安全构成威胁。随着人们对环境与人类健康问题的关注日益增加,以及杀线虫剂成本的上升,抗性棉花种质资源的研究受到越来越多重视。植物细胞壁,尤其是木质素,是一种参与抵御生物胁迫的关键生物聚合物。由于线虫侵染根部组织,细胞壁成分如木质素可能在防御过程中发挥作用;然而,棉花根部中由木质素介导的屏障机制尚未被充分阐明。本研究采用标准化的间苯三酚-盐酸组织化学染色法,在未接种条件下,观察肾形线虫抗性棉花基因型(A2-514、A2-995)与感病棉花(Gossypium arboreum)在真叶期根部木质素沉积的差异。该染色剂可特异性结合 特别地 在酸的存在下,与木质素中的羟基肉桂醛(如松柏醛和芥子醛)反应,产生粉红色至紫色,以显色木质素。在抗性与感病基因型之间观察到明显的木质素染色模式差异,支持木质素相关结构防御的潜在作用。
引言
棉花因其纤维而在全球广泛种植,但极易受到土传害虫尤其是线虫的危害,可导致严重的产量损失。其中,肾形线虫(Rotylenchulus reniformis)是影响棉花及其他作物的主要病原线虫之一,在全球范围内均有分布,尤其在美国南部地区危害显著,侵染严重时可导致棉花减产超过50%1这种微小的土壤生物寄生在棉花根部2,通过破坏水分和养分吸收以及形成取食位点,影响植物长势、生物量和纤维产量图1)。肾形线虫侵染会通过延迟开花时间、减少棉铃大小和数量以及降低纤维品质来改变棉花植株的生长3密西西比州、阿拉巴马州和路易斯安那州已报告严重损失4杀线虫剂常被用于防治线虫侵染,但其高昂的成本以及对环境和人类健康的负面影响,使得寻找替代方法成为必要。5,6培育抗性种质是减轻肾形线虫危害的一种有前景的策略4由于线虫在根部组织内取食,人们推测基于细胞壁的防御机制,尤其是木质化,能够限制线虫侵入,抑制病原体分泌的细胞壁降解酶,并阻碍线虫取食位点的建立与扩展7,8,9增强的木质化与多种植物物种对病原体的易感性降低相关10,11,12,13,14先前在棉花中的研究已将木质素和漆酶基因的表达与对大丽轮枝菌(Verticillium dahliae)的抗性联系起来15 对镰刀菌抗性与感性品种的研究表明,抗性品种中的木质素水平更高16. 在类似观察中 拟南芥 而水稻中木质素生物合成基因的抑制会增加其感病性,这进一步强调了木质化在植物防御中的重要性。
木质素是一种复杂的酚类生物聚合物,存在于维管植物的次生细胞壁中,赋予其结构刚性、机械强度和疏水性17。木质素通过莽草酸途径和苯丙烷途径合成,是仅次于纤维素的地球上第二丰富的陆地生物聚合物,约占地球有机碳的30%18,19。通过增强纤维素-半纤维素网络,木质素强化了承重组织,并支持植物整体发育。木质素在高度特化的组织中尤为显著,如木质部、厚壁组织、韧皮部纤维和周皮,形成防水屏障,对水分和矿物质的高效运输至关重要。除了结构功能外,木质素还作为生化和物理防御屏障,限制病原体侵入,并减少生物和非生物胁迫造成的损伤20,21,22。木质化是一个动态过程,是抵抗多种病原体(包括坏死营养型、活体营养型和半活体营养型病原体)的核心机制。其由主要单体芥子醇、松柏醇和对香豆醇合成的过程因物种、组织类型和发育阶段而异,影响抗性程度。病原体侵染或非生物胁迫常触发局部木质素沉积,进一步增强植物防御能力23,24。
阐明木质素在抗肾形线虫中的作用,对于推进棉花管理策略至关重要。对木质素分布进行组织化学和生物化学表征,有助于揭示细胞壁修饰在空间和时间上的动态变化,这些变化是早期防御反应的基础。本研究采用间苯三酚组织化学染色法,分析在抗肾形线虫和感病棉花基因型中天然存在的木质素沉积模式,为评估与细胞壁相关的抗性性状提供实用的初步框架,并为旨在提高作物抗逆性的育种计划提供依据。
方案
实验在温室中进行,所用植物材料如下所述。本研究中使用的所有化学试剂、仪器和试剂均详见于材料表。
植物材料
获取了感病(A2‑20,PI 129742;A2‑40,PI 183202)和抗病种质资源(A2‑514,PI 616008;A2‑995,PI 629323)的种子。此外,本研究还纳入了感病品种Deltapine 16。将种子置于无菌水中,在室温下浸泡24小时。浸泡后,用新鲜的无菌水彻底冲洗种子,以去除残留污染物。将冲洗后的种子转移至铺有预先润湿并经高压灭菌的滤纸的无菌培养皿中,并在室温下培养2天以促进萌发(图2)。
温室种植
将预先润湿的控湿型育苗基质装入塑料盆中。移栽前两天对土壤进行预湿处理。将已萌发的幼苗小心移栽至预湿的土壤中,并在28 °C/25 °C(昼/夜)的可控温室条件下培养,直至进入真叶期(图2)。每种基因型设置三个生物学重复。
样品采集
处于真叶期的植株通过松动周围土壤基质小心地从土壤中取出,以尽量减少根系损伤。根部用清水冲洗2–3次,以去除附着的土壤颗粒。收集每种基因型的根和地上组织用于切片图3).
间苯三酚染色液的配制
在通风橱中,将0.45 g间苯三酚溶解于两份100%乙醇(10 mL)与一份浓盐酸(5 mL)的混合液中,配制3%的间苯三酚溶液。染色液的配制参照先前描述的方法16。
用于木质素组织化学分析的切片制备与染色步骤
使用无菌剃刀片对根和茎组织进行切片,以获得薄的横切面(图3)。将新鲜切片转移至载玻片上,加入20 µL 3%间苯三酚染色液,染色1分钟。随后用无菌水冲洗切片,盖上盖玻片,进行成像(图4、图5、图6)。茎组织采用相同的处理步骤(补充图1)。
显微成像
使用数码显微镜进行成像。将含有染色组织样本的制备好的玻片放置在显微镜载物台上进行成像。启动显微镜成像软件后,在明场模式下选择所需的100倍、200倍和300倍放大倍数。通过粗调和细调焦距,清晰观察组织切片中的木质素染色模式。记录并保存图像及其相应的样本编号。随后通过比较抗性与感性基因型的图像,评估木质素染色的差异,进行对比分析。使用ImageJ比较抗性与感性基因型的图像,通过统一的阈值确定染色面积百分比的差异。在完成全部三个重复样本的处理后,将结果导出为CSV文件。随后绘制图表以比较抗性与感性基因型。
结果
抗性与感性棉花基因型的组织化学分析
在真叶期对根和茎的横切面进行组织化学检测,结果显示抗性与感性基因型之间存在肉眼可见的差异,如图4、图5以及补充图1(茎横切面)所示。更高倍数(100x–300x)的观察提供了这些差异的详细图像(抗性基因型见图4A–C和图5A–C,感性基因型见图4D–F和图5D–F)。木质素染色模式因组织类型而异:抗性基因型在茎中的木质素染色较弱或相似,而感性基因型在茎中的木质化程度在视觉上相对更高(补充图1A–D)。
木质素染色的定量图像分析
本研究中包含的感病品种Deltapine 16表现出较低的木质素染色强度(图6A–C),其染色面积百分比分别为12、17.8和16.3(图6D)。感病基因型A2-40的染色面积百分比为25.2、19.9和28.75,而抗病基因型A2-995的染色面积百分比分别为54.95、58.71和69.85(图7)。然而,A2-20的染色面积百分比为16.6、21.3和20.4,而A2-514的染色面积百分比分别为49.8、34.1和43.38(图8)。该比较得到的p值为0.06。由于这些数值是使用不同阈值生成的,为确保各重复之间的可重复性,采用相同的色相、饱和度和亮度阈值进行了统一阈值的ImageJ分析。抗病基因型(A2-514)的染色强度相对高于感病基因型(A2-20)。染色面积百分比计算为切片中木质素阳性像素数与总组织像素数的比值。感病基因型A2-20与抗病基因型A2-514的统一阈值定量比较结果如图9所示。总体而言,统一阈值分析表明,这些基因型之间存在基因型特异性的木质化差异。
数据可用性:
原始数据作为补充文件提供。
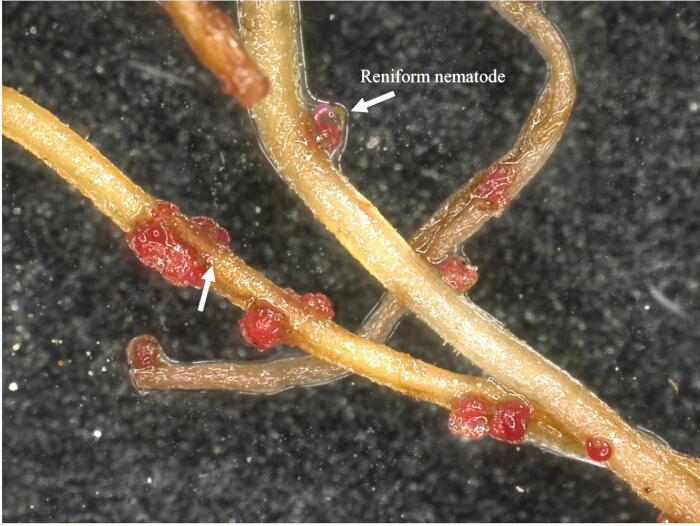
图1:根结线虫在棉花根部取食的显微图像。经红色食用染料染色后,在50倍放大下观察到根结线虫在棉花根部取食的情况。请点击此处查看该图的高清大图。
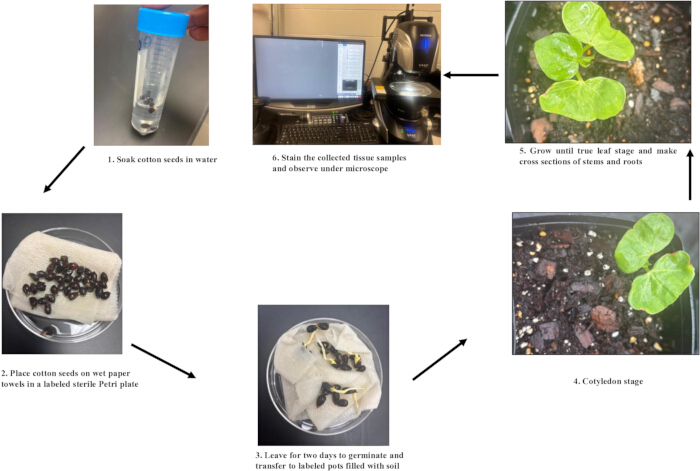
图 2:木质素组织化学分析用植物材料的制备。该实验流程包括以下步骤:(1)将棉花种子浸泡在水中;(2)将种子置于湿润的纸巾上,并放入已标记的无菌培养皿中;(3)让种子萌发2天,然后将幼苗转移至装有土壤的已标记花盆中;(4)将幼苗培养至子叶阶段;(5)继续培养植株至真叶阶段,并制备茎和根的横切面;(6)对采集的组织切片进行染色,并在显微镜下观察。 请点击此处查看该图的放大版本。
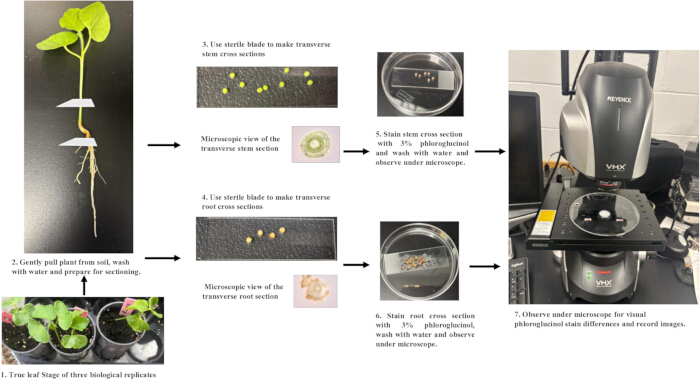
图3:利用间苯三酚盐酸法收集和染色棉花根和茎切片。该实验流程包括以下步骤:(1)将三个生物学重复样本培养至真叶期;(2)小心将植株从土壤中取出,用水清洗,并准备进行切片;(3)使用无菌刀片制备茎的横切切片;(4)使用无菌刀片制备根的横切切片;(5)用3%间苯三酚盐酸溶液对茎切片进行染色,用水冲洗后在显微镜下观察;(6)用3%间苯三酚盐酸溶液对根切片进行染色,用水冲洗后在显微镜下观察;(7)在显微镜下观察染色后的切片,以识别间苯三酚染色的差异并记录图像。请点击此处查看该图的放大版本。
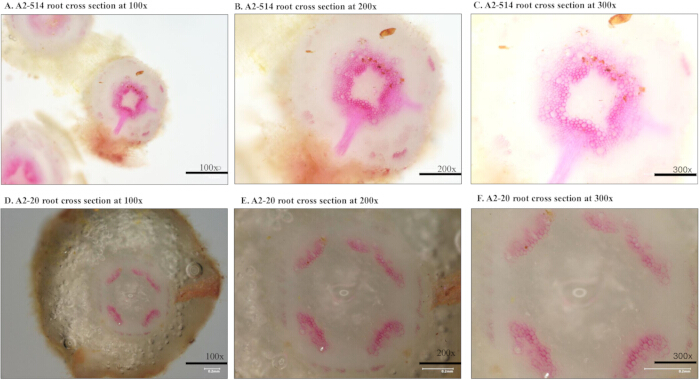
图4:A2-514 和 A2-20 棉花基因型根横切面中的木质素染色。抗性基因型 A2-514 的木质素染色根横切面,放大倍数分别为(A)100×、(B)200× 和(C)300×。感病基因型 A2–20 的木质素染色根横切面,放大倍数分别为(D)100×、(E)200× 和(F)300×。 请点击此处查看该图的高清版本。
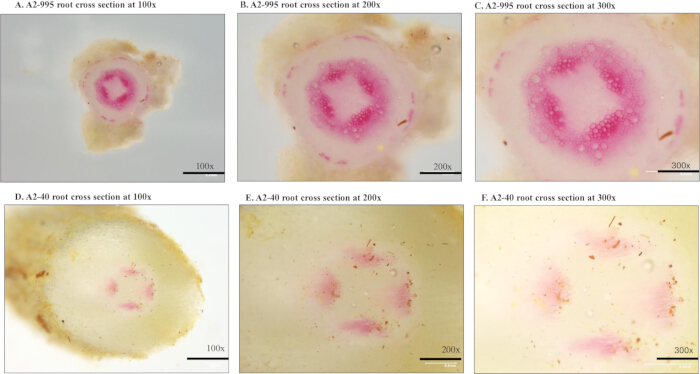
图5:A2-995 和 A2-40 棉花基因型根横切面中的木质素染色。抗性基因型 A2-995 的木质素染色根横切面,放大倍数分别为(A)100×、(B)200× 和(C)300×。感病基因型 A2-40 的木质素染色根横切面,放大倍数分别为(D)100×、(E)200× 和(F)300×。请点击此处查看该图的高清版本
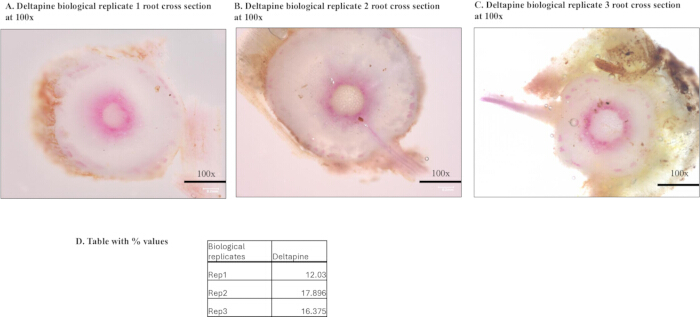
图6:Deltapine 16 根横切面的木质素染色及定量分析。感病品种 Deltapine 16 在100倍放大倍数下三个生物学重复的木质素染色根横切面图像:(A)生物学重复1,(B)生物学重复2,以及(C)生物学重复3。(D)通过 ImageJ 定量分析确定的三个生物学重复的染色面积百分比。请点击此处查看该图的放大版本
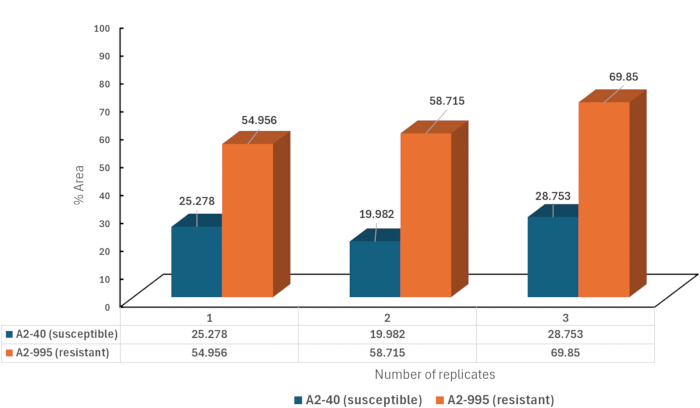
图7:A2-40 和 A2-995 棉花基因型中木质素染色的定量分析。通过 ImageJ 分析确定的感病基因型 A2-40 和抗病基因型 A2-995 三个生物学重复的染色面积百分比。请点击此处查看该图的放大版本。
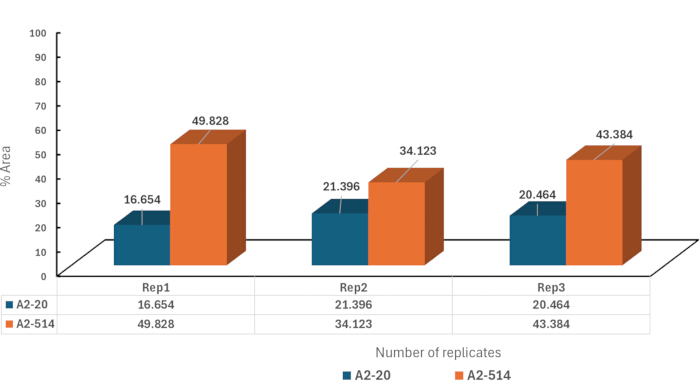
图8:A2-20 和 A2-514 棉花基因型中木质素染色的定量分析。通过 ImageJ 分析确定感病基因型 A2-20 和抗病基因型 A2-514 三个生物学重复的染色面积百分比。请点击此处查看该图的放大版本。
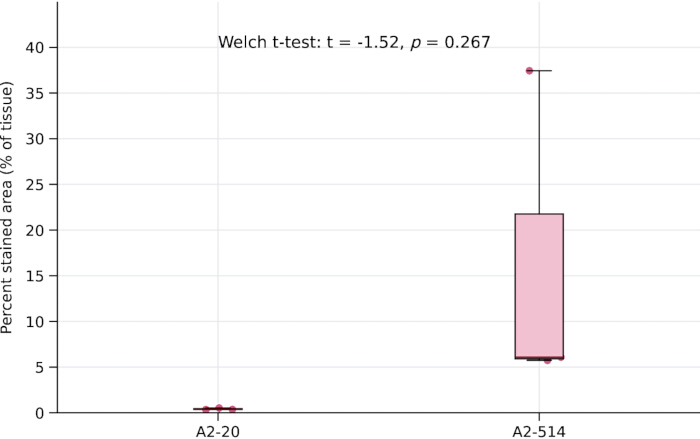
图9:A2-20 和 A2-514 棉花基因型中木质素染色的统一阈值定量分析。在采用统一阈值图像分析后,感病基因型 A2-20 和抗病基因型 A2-514 的染色面积百分比。统计比较采用 Welch t 检验进行(t = −1.52,p = 0.267)。请点击此处查看该图的放大版本。
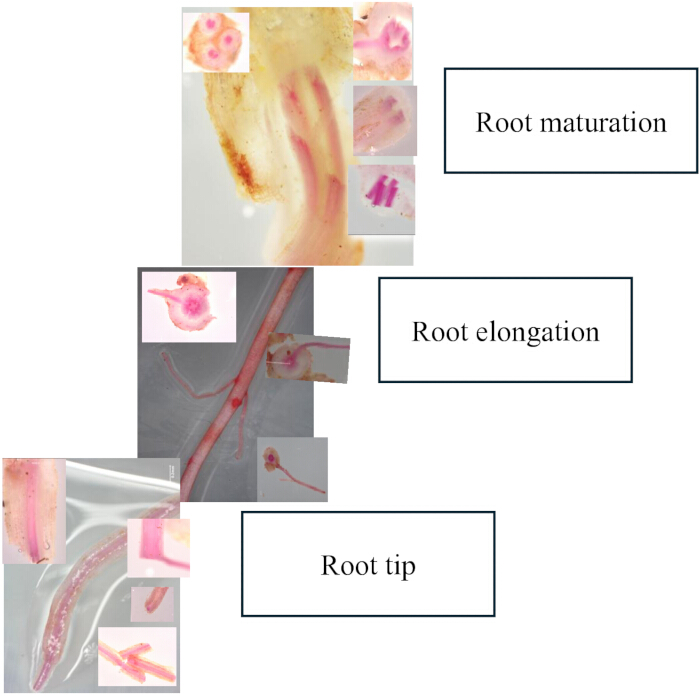
图10:不同根区木质素染色的可视化。代表性图像显示根成熟区、根伸长区和根尖区域的木质素染色情况。请点击此处查看该图的放大版本。
补充图1:抗性与感性棉花基因型茎横切面中的木质素染色。在100倍放大倍数下观察的木质素染色茎横切面,分别为(A)感性材料A2-20,(B)抗性材料A2-514,(C)感性材料A2-40,以及(D)抗性材料A2-995。 请点击此处下载该文件。
讨论
与植物细胞壁相关的木质素在抵御包括线虫在内的害虫方面起着重要的物理屏障作用。本研究中,抗性与感性棉花基因型在木质素染色上表现出明显的视觉差异,其分布模式与先前报道的抗枯萎病和感病品种中的模式相似。染色结果清晰地显示了木质素在根部不同区域——成熟区、伸长区以及根尖——的分布情况,其中木质素的强度从根的上部向根尖方向逐渐增强(图10)。尽管这些模式提供了有价值的解剖学信息,但本研究尚未评估木质素在响应线虫侵染过程中的动态变化,该问题需在未来的研究中进一步验证。以往研究表明,病原体的存在可诱导木质素的生物合成,这进一步强调了在根结线虫胁迫下研究木质素变化的必要性。结合对木质素含量和组分的生化分析,将有助于更深入地解读这些基因型中观察到的染色模式。总体而言,这些发现突显了木质素介导的结构防御在棉花抗肾形线虫过程中的作用,并证明了间苯三酚染色法在表征此类性状中的实用性。持续整合解剖学、生物化学与分子生物学研究方法,将有助于深入理解木质素的生物合成机制及其在培育持久抗肾形线虫品种中的贡献。
披露
作者无任何利益冲突需要披露。
免责声明
美国农业部是一个提供平等机会的供应商、雇主和贷款机构。本出版物中提及的贸易名称或商业产品仅用于提供具体信息,并不意味着美国农业部的推荐或认可。本文作者的观点和结论仅代表作者自身,不应被解释为代表任何美国农业部或美国政府的官方决定或政策。
致谢
作者感谢Katherine Parys博士提供本研究中使用的显微镜实验室设施。作者还感谢Junping Chen博士和Abdulraheem博士对改进稿件提出的建议和帮助。本研究由美国农业部农业研究局(USDA-ARS)项目6066-21000-053-00D提供支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 保湿控制型育苗基质 | Miracle-Gro | 073561005197 032247557832 | Amazon 网站 |
| 显微镜 | Keyence VHX | VHX3000 | 可使用任何性能相当的明场显微镜 |
| 无菌剃须刀片 | Workpro | W018057 | Amazon 网站 |
| 切菜板 | Freshware | 15.75"L x 9.8"W x 0.3"Th | Amazon 网站 |
| 载玻片和盖玻片 | Amscope | BS-50P-100S-22X4 | 可使用任何品牌,此产品可在 Amazon 购得 |
| 无菌水 / 蒸馏水 / 高压灭菌水 | Gibco | 15230147 | 可使用任意品牌 / 无菌高压灭菌水 |
| 间苯三酚染液 | Fischer Scientific | AC241761000 | 可在 Fischer Scientific 购得 |
| 浓盐酸 | Fischer Scientific | CAS: 7647-01-0 | 可在 Fischer Scientific 购得 |
| 无水乙醇 | Fischer Scientific | 64-17-5 | 可在 Fischer Scientific 购得 |
| 花盆 | BTPLASTIK | B0DSBQMXHN | 可使用任何塑料花盆,Amazon 有售 |
| 培养皿 | Kingdder | B0BS95MCGS | Amazon 有售,也可使用其他品牌 |
| 纸巾 | Tork | MB540A | Amazon 有售,也可使用其他品牌 |
| Image J | 软件 | 可在线获取 | 可免费使用的软件 |
参考文献
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.