本研究证实,启明颗粒(QMG)通过调控肠-视网膜轴改善糖尿病视网膜病变(DR)。QMG重塑了肠道菌群结构,抑制全身性炎症反应,并恢复以CMKLR1为核心的调控网络,从而逆转视网膜组织病理损伤。这些发现表明,QMG是一种具有前景的、针对DR的肠-视网膜治疗策略。
本文内容
摘要
摘要
糖尿病视网膜病变(DR)是一种由慢性高血糖和全身性炎症驱动的神经血管并发症,越来越多的证据表明肠-视网膜轴是一个关键但尚未被充分利用的治疗靶点。本研究探讨了启明颗粒(QMG)是否通过调节肠-视网膜轴发挥对DR的保护作用。将C57BL/6小鼠随机分为不同的实验组并接受相应的干预措施。采用苏木精-伊红(HE)染色评估视网膜组织病理学改变。通过酶联免疫吸附试验(ELISA)检测血清中炎症细胞因子(IL-1β、IL-6、TNF-α)水平。采用蛋白质印迹法(WB)检测视网膜和结肠组织中关键调控蛋白(CMKLR1、Wnt5a、PPAR-γ、AP-1、TP53)的表达。通过全长16S rDNA测序分析肠道微生物群的组成与多样性。进行相关性分析以评估肠道微生物群与炎症因子或关键蛋白之间的关系。QMG治疗改善了视网膜组织病理学异常,表现为视网膜层状结构的恢复、视网膜神经节细胞数量的部分恢复(P < 0.001),以及视网膜变薄的逆转(P < 0.01)。同时,QMG显著下调了血清中IL-1β、IL-6和TNF-α的水平(P < 0.0001)。在肠-视网膜轴上,QMG逆转了关键调控蛋白的异常表达,特别是以CMKLR1为核心的调控网络(Wnt5a、PPAR-γ、AP-1、TP53)。此外,QMG恢复了肠道微生物群的组成、多样性和功能,相关性分析显示,QMG通过将全身性炎症与这些调控蛋白相偶联,从而调节肠-视网膜轴。 本研究提供了初步的药理学证据,表明QMG通过肠-视网膜轴,将CMKLR1为核心的调控网络(包括Wnt5a、PPAR-γ、AP-1和TP53)与全身性炎症相偶联,从而改善DR,提示QMG是一种具有前景的针对DR的肠-视网膜治疗策略。
引言
糖尿病视网膜病变(DR)是糖尿病(DM)最常见的微血管并发症之一,也是全球工作年龄成人失明的主要原因1。在全球范围内,约有20%-30%的DM患者受到DR影响2。慢性高血糖通过引发一系列病理事件驱动DR的发病过程,包括神经血管耦合受损、炎症反应增强以及氧化应激3。最近的研究发现,与无视网膜病变的糖尿病患者相比,患有视网膜病变的糖尿病患者其肠道微生物群的多样性和组成发生了改变4,5。因此,肠-视网膜轴——一种连接肠道稳态与视网膜健康的双向通讯网络——已成为推动DR进展的新机制。然而,将肠-视网膜信号转化为视网膜病理变化的具体分子介质仍大多未被阐明,这限制了可靠生物标志物和治疗靶点的发现。
肠-视网膜轴通过免疫、代谢、神经内分泌和血管通路,介导肠道微生物群及其代谢产物与视网膜组织之间复杂的双向通讯网络,从而调节两者的稳态平衡6。在分子层面,肠-视网膜轴的特征是关键的应激反应和细胞命运决定蛋白(特别是AP-1和TP53)的失调7,8,9。此外,CMKLR1作为一种关键的趋化因子受体,在内皮功能障碍和代谢紊乱中发挥重要作用,建立了肠道微生物群改变与糖尿病视网膜病变发病机制之间的关键联系10。重要的是,Wnt信号通路在维持视网膜血管稳态和肠道上皮屏障功能中发挥双重调控作用11,而PPAR信号通路则是眼组织和肠道组织中炎症反应与代谢过程的主要调控因子12,13。这些分子组分共同构成了肠-视网膜轴内的相互连接的信号网络,为糖尿病相关并发症提供了新的机制见解和治疗机遇。因此,靶向该轴上的结构与功能改变,代表了一种管理糖尿病视网膜病变(DR)的有前景策略。
传统中医(TCM)在糖尿病及其相关视网膜病变的治疗中历来发挥着重要作用,其治疗决策基于辨证论治14. 启明颗粒(QMG),由 黄芪、葛根、地黄、枸杞子、钝叶决明、益母草、蒲黄 和 Whitmania pigra,广泛应用于糖尿病视网膜病变的治疗。芪明颗粒已获得中国国家药品监督管理局批准(批准文号:Z20090036),顺利完成临床试验并取得上市许可。芪明颗粒可通过防止视网膜毛细血管基底膜增厚发挥保护作用, 减少周细胞和视网膜微血管的损伤,并维持眼部局部的病理形态15,使其成为治疗糖尿病视网膜病变(DR)的一种有前景的疗法。通过靶向关键蛋白和炎症因子,QMG的活性成分发挥 抗炎、抗氧化和抗凋亡作用,为其调控相关机制提供了理论基础 肠-视网膜轴16这些特性为QMG可能调节肠-视网膜轴提供了机制基础,但目前探索这一关联的研究仍较少。因此,本研究旨在验证QMG在调节肠-视网膜轴方面的有效性,为其在糖尿病视网膜病变(DR)中的治疗潜力提供实验依据。
本研究通过将理论预测与体内实验数据相结合,验证了QMG在调节肠-视网膜轴方面的有效性。研究结果表明,QMG通过肠-视网膜轴将CMKLR1为核心的调控网络(包括Wnt5a、PPAR-γ、AP-1和TP53)与全身性炎症相偶联,从而改善糖尿病视网膜病变(DR),提示QMG是一种具有前景的、靶向肠-视网膜轴的DR治疗策略。图解摘要见图1。
方案
所有动物实验均按照 ARRIVE 指南进行。本研究已获得四川科学家生物技术有限公司伦理审查委员会批准(IACUC 批准号 SYST-2024-011)。 研究设计的详细实验时间线见补充图1。
动物准备与处理
小鼠通过吸入2%异氟烷进行深度麻醉。在深度麻醉状态下,通过眼球后摘除法采集血液。血液采集后立即摘除眼球以获取视网膜组织。随后在深度麻醉下实施颈椎脱位,以确保安乐死。紧接着立即解剖结肠组织。 出现不良事件的动物将被立即移出实验,并接受适当的兽医护理。
随机化与盲法
将5周龄、体重在20至30克之间的雄性C57BL/6小鼠饲养于温度与湿度严格控制的环境中。经过一周的适应性饲养后,由未参与动物操作及结果评估的研究人员使用计算机生成的随机数字序列,将C57BL/6小鼠随机分为三组(空白组、模型组和干预组)。
为确保盲法,所有动物护理、给药及数据收集均由不了解分组情况的研究人员执行。编码的分组信息仅在全部实验及统计分析完成后才予以揭盲。实施盲法的对象包括:进行灌胃操作的技术人员、评估视网膜组织病理学的病理学家,以及定量分析蛋白质印迹(WB)条带的分析人员。
样本量计算
样本量是根据一项初步实验确定的,该实验在相同的实验条件下评估了视网膜神经节细胞(RGC)的数量。假设双侧显著性水平(α)为0.05,统计功效(1-β)为0.80,为检测模型组与干预组之间RGC数量具有临床意义的差异,每组至少需要5只小鼠。考虑到约20%的潜在脱落率,每组设定为包含6只小鼠。
糖尿病动物模型的建立
空白组给予标准饮食,而干预组和模型组则给予高脂高糖饮食(HFHSD),持续四周。饮食处理结束后,干预组和模型组小鼠接受腹腔注射1%链脲佐菌素(STZ)溶液,剂量为35 mg/kg17,18,19,20。注射72小时后,非空腹血糖水平超过16.7 mmol/L的小鼠被认为糖尿病(DM)模型构建成功,被选入后续实验。糖尿病动物继续维持高脂高糖饮食额外四个月,而空白组则持续给予标准饮食。
分类学验证与质量评估
使用现代植物名称检索系统(MPNS,http://mpns.kew.org/mpns-portal/)对QMG中的八种成分进行了分类学验证。采用ConPhYMP工具评估了QMG组分报告的质量。
给药方法
在干预组中,动物通过口服给予 QMG。QMG 购自浙江三生曼地药业有限公司(中国国家药品批准文号:Z20090036)。QMG 悬液通过将 QMG 与蒸馏水均匀混合制备而成。 干预组小鼠通过灌胃给予该悬液,给药体积与模型组和空白组相当。给药剂量依据 FDA 和 Reagan-Shaw 推荐的体表面积(BSA)归一化方法,按照成人每 60 kg 体重临床单次治疗剂量 4.5 g(市售制剂的标准单位剂量)进行计算21。成人(Km = 37)与小鼠(Km = 3)之间的换算系数为 12.33,由此得出小鼠剂量为 0.9 g/kg 体重。模型组和空白组通过灌胃给予等体积的生理盐水。给药时间为每日上午 9 点至 11 点,连续进行 3 个月。
观察与检测指标
一般生命体征监测
系统观察并记录一般生命体征和生理指标,包括体重、血糖水平、饮水和进食量、尿量、活动水平和行为、体温,以及毛发和皮肤状况,以全面评估治疗干预效果并及时发现潜在并发症。
通过苏木精-伊红染色分析观察视网膜的形态学变化
所有标本经固定后,通过自动脱水机依次使用乙醇和二甲苯溶液进行脱水处理,随后包埋于石蜡中。之后切取4 µm厚的石蜡切片,经HE染色后用中性树胶封片。视网膜图像采用3DHISTECH Pannoramic SCAN扫描仪进行扫描。图像分析与数据测量由Image-Pro Plus软件完成。
采用ELISA分析法检测血清中IL-6、TNF-α和IL-1β
通过眶后摘除法采集血液样本。血清在 4 °C 条件下以 1,000 × g 离心 15 分钟分离,并储存于 -80 °C 直至分析。按照标准操作程序检测血清中 IL‑1β、IL‑6 和 TNF‑α 的水平,包括试剂平衡、加样、孵育、洗涤、加入偶联物和底物、终止反应、测定光密度以及根据标准曲线计算浓度。使用酶标仪在 450 nm 处读取光密度值,并依据标准曲线计算细胞因子浓度。
通过 WB 分析检测视网膜和结肠中的关键调控蛋白
在单张膜上进行了三次独立的生物学重复实验,并依次对目标蛋白进行检测。所有重复实验均来自同一批次同时处死的动物。当目标蛋白的分子量与GAPDH的分子量过于接近时<5 kDa 差异),为防止信号重叠,各蛋白在独立的膜上分别进行分析。每张膜仅用于检测目标蛋白或 GAPDH,以确保定量准确。所用一抗如下:GAPDH 多克隆 抗体(1:5000),CMKLR1 多克隆抗体(1:1000),Wnt5a 多克隆抗体(1:1000),TP53 多克隆抗体(1:1000),AP-1 单克隆抗体(1:5000),以及 PPAR gamma(PPAR-γ) 多克隆抗体(1:1000)。通过细胞裂解后离心获取总蛋白。采用以下方法测定蛋白浓度 采用BCA法测定。提取的蛋白质通过含12%分离胶的SDS-PAGE进行分离,随后转移至膜上。膜在含5%脱脂奶粉的TBST中封闭,并于4℃与相应的一抗孵育过夜 4 °C洗涤后,将膜与 HRP 标记的抗兔或抗小鼠二抗以 1:10,000 的稀释比例孵育。最后通过化学发光成像对蛋白条带进行可视化和分析。在可视化及数据处理过程中,对印迹图横向裁剪以去除无关的分子量区域,所有样品泳道均被保留,未去除泳道间的区域。为去除无关凝胶区域而进行裁剪时,边缘可能出现轻微变形。
通过16S rDNA测序分析检测肠道微生物群
在终末实验操作前,采集每只小鼠的新鲜粪便样本。将小鼠单独置于无菌笼中10–15分钟,以使其自然排便。使用无菌镊子立即收集粪便颗粒,转移至无菌的1.5 mL离心管中,于液氮中速冻后,保存于-80 °C,直至进行DNA提取。所有操作均在无菌条件下进行,以最大限度减少交叉污染。排便至冷冻的时间间隔控制在10分钟以内,以确保微生物组的完整性。采用粪便基因组DNA(gDNA)提取试剂盒对粪便样本中的基因组DNA进行纯化,随后使用通用引物8F(5’-AGAGTTTGATCATGGCTCAG-3’)和1492R(5’-CGGTTACCTTGTTACGACTT-3’)通过聚合酶链式反应(PCR)扩增全长16S rDNA基因。PCR产物经琼脂糖凝胶电泳分析后,进行纯化和定量,用于后续实验。高通量测序在Nanopore GridION测序平台上进行。数据分析流程包括碱基识别(basecalling)、数据质量控制、物种注释、系统发育树构建、群落分析、Alpha和Beta多样性分析、差异丰度物种 分析以及群落功能预测。分析过程中使用了多种工具和数据库,如NanoFilt、Usearch、R语言、Python以及SILVA数据库。
肠道-视网膜轴与全身性炎症及多层级肠道微生物群的关联性分析
为了探讨多层级肠道微生物群与血清炎症细胞因子及关键调控蛋白之间的潜在关联,采用洛宁生物云平台进行了相关性分析。首先,从测序结果中提取了界、门、纲、目、科、属和种水平的物种丰度数据。将血清炎症细胞因子和蛋白表达水平等理化因子整理为环境因子文件。为确保相关性分析的可靠性和可视化效果,对数据进行了标准化处理,以消除微生物丰度与临床检测指标在量纲上的差异。计算了相关系数(R值)及其对应的显著性水平(P值)。结果通过相关性热图进行可视化展示,其中颜色梯度表示相关性的强度与方向(红色代表正相关,蓝色代表负相关),星号(**)表示统计学显著性(P < 0.01)。
统计学方法
所有统计分析和可视化均使用 GraphPad Prism 完成。对于符合正态分布的数据,采用 t 检验比较均值;对于偏离正态分布的数据,则使用 Kruskal-Wallis 检验。变量间关系通过 Spearman 或 Pearson 相关性分析进行评估。所有统计检验均为双尾检验,显著性水平设定为 0.05。
结果
实验动物总体情况
模型组的血糖水平显著升高(27.21 ± 与空白组(6.03 mmol/L)相比,P < p < 0.001),表明糖尿病模型诱导成功。在研究期间,实验动物体重稳定,饮水和摄食持续,尿量、体温正常,皮毛和皮肤状况健康,实验期间行为正常。
QMG 的组成与验证
QMG是一种已通过III期临床试验的专有中药,包含 黄芪 (Fisch.) Bunge [豆科, 黄芪],葛根 (Willd.) Ohwi [豆科,葛根], 地黄 (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [列当科;地黄],Lycium barbarum L. [茄科;枸杞子], Senna obtusifolia (L.) H.S. 欧文 & Barneby [豆科;决明子], Leonurus japonicus Houtt. [唇形科,益母草] 狭叶香蒲 L. [香蒲科;香蒲花粉], Whitmania pigra 惠特曼 [水蛭科; 水蛭]15详细信息,包括中文名称、经MPNS验证的学名、物种、科属、使用部位、代表性生物活性化合物,已汇总于 表 1该文件定义了 QMG,并为所研究的公式提供了一个透明且科学依据充分的基础。
| 编号。 | 中文名称 | MPNS 验证的科学名称 | 物种 | 家庭 | 使用部位 | 代表性生物活性 化合物 | |||||||
| 1 | 黄芪 | 黄芪 (Fisch.) Bunge [豆科,黄芪] | 蒙古黄芪 (Fisch.) Bunge | 豆科 | Radix | 黄芪甲苷 IV, 毛蕊异黄酮 | |||||||
| 2 | 葛根 | 葛根 (Willd.) Ohwi [豆科,葛根] | 葛根 (Willd.) | 豆科 | 根 | 葛根素,大豆苷 | |||||||
| 3 | 地黄 | 地黄 (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. [列当科;地黄] | 地黄 (Gaertn.) Libosch. Ex Fisch. & C.A. Mey. | 列当科 | Radix | 梓醇,地黄苷 D | |||||||
| 4 | 枸杞子 | Lycium barbarum L. [茄科;枸杞子] | Lycium barbarum L. | Solanaceae | 果实 | 枸杞多糖,甜菜碱 | |||||||
| 5 | 爵明子 | Senna obtusifolia (L.) H.S. 欧文 & 巴尼比 [豆科;决明子] | Senna obtusifolia (L.) H.S. 欧文 & 巴尼比 | 豆科 | 精液 | 橙黄决明素,大黄素 | |||||||
| 6 | Chong WeiZi | Leonurus japonicus Houtt. [唇形科,益母草果实] | 益母草 Houtt. | 唇形科 | 果实 | 水苏碱,益母草碱 | |||||||
| 7 | 蒲黄 | 狭叶香蒲 L. [香蒲科;香蒲花粉] | 狭叶香蒲 (Typha angustifolia L.) | 香蒲科 | 花粉 | 异鼠李素, 山柰酚 | |||||||
| 8 | 水蛭 | Whitmania pigra 惠特曼 [水蛭科; 水蛭] | Whitmania pigra 惠特曼 | 水蛭科 | 躯体 | 水蛭素,卡林 | |||||||
表1:QMG 成分的组成与质量信息。 关于 QMG 成分的组成与质量信息详情,包括中文名称、MPNS 验证的科学名称、物种、科属、使用部位及代表性生物活性化合物。
QMG 改善视网膜形态
如图所示, 图 2A空白组的视网膜结构排列规整。各层细胞排列紧密有序,未见结构破坏、渗出或炎性浸润迹象。与空白组相比,模型组的视网膜切片显示图2B) 表现出显著的结构紊乱,其特征为细胞排列无序,视网膜神经节细胞数量大幅减少(P < 0.0001, 表 2, 图 3A以及视网膜总厚度的显著变薄P < 0.0001, 图 3B)。值得注意的是,观察到新生血管丛穿透内界膜(如红色箭头所示),证实了糖尿病视网膜病变模型成功建立。相比之下,干预组(图 2C)相对于模型组表现出组织病理学异常的显著减轻,具体表现为视网膜层状结构恢复、视网膜神经节细胞数量部分恢复。P < 0.001, 表 2, 图 3A),以及视网膜变薄的逆转(P < 0.01, 表 2, 图 3B这些数据为QMG作为糖尿病视网膜病变的有效干预措施提供了有力证据。
QMG 可减轻 DR 中的全身炎症反应
与空白组相比,IL-1β, IL-6, 和 TNF-α 模型组中表达显著上调 (P < 0.0001),证实建模程序成功诱导了显著的炎症反应。反之,与模型组相比,IL-1β、IL-6 和 TNF-α 干预组中这些指标的表达水平显著下调。p < 0.0001),表明QMG对全身性炎症具有强效抑制作用。血清IL-1β、IL-6 和 TNF-αα 三组间的数据汇总于 表 3 并图示于 图 4A–C.
QMG 调节 以 CMKLR1 为核心的肠道调控网络–视网膜轴
如图所示, 图 5, 图 6, 图 7以及 补充图 2, 本研究结果表明,在糖尿病视网膜病变模型小鼠中,五种关键调控蛋白的表达水平—AP-1、Wnt5a、CMKLR1、TP53 与 PPAR-γ—在结肠组织和视网膜组织中均呈现出一致的下降趋势。经QMG干预后,这些蛋白的表达显示出不同程度的恢复,部分蛋白的表达变化达到了统计学显著性。具体而言,QMG干预后,结肠组织中AP-1、Wnt5a和CMKLR1的表达水平显著高于模型组。P < 0.05),而在视网膜组织中,CMKLR1与TP53的表达量显著高于模型组(P < 0.01)。这些发现可能提示,AP-1 和 Wnt5a 在结肠中是更敏感的应答因子,而 TP53 作为凋亡调节因子,在视网膜神经保护中发挥着更为关键的作用。值得注意的是,CMKLR1 是唯一在两种组织中均实现显著恢复的蛋白,这表明 QMG 可能促进沿肠-脑轴的双向通讯。–视网膜轴通过系统性调控CMKLR1表达。
这五种蛋白质在结肠和视网膜组织中表达变化方向的一致性具有重要的生物学意义。结肠作为肠道菌群的主要栖息地,其蛋白质表达的变化反映了肠道微环境的状态,而视网膜是糖尿病视网膜病变的效应器官。这两种组织间表达模式的一致性有力地支持了肠道–视网膜轴作为糖尿病视网膜病变病理生理过程中的重要参与者。
QMG 可恢复并改善肠道菌群的组成、多样性与功能。
群落组成的结果
层次聚类分析揭示了在 QMG 干预后,肠道微生物组成在多个分类学水平上发生了显著变化并形成了不同的聚类。在门水平上,图 8A模型组则表现出显著下降。 厚壁菌门 丰度与显著富集 拟杆菌门 与空白组相比,表明存在糖尿病驱动的转变 厚壁菌门/拟杆菌门 比值;值得注意的是,干预措施恢复了二者的比例 厚壁菌门 以及 拟杆菌门 接近空白组的水平,同时伴随着相对丰度的升高。 变形菌门在纲的层面(图 8B模型组表现出升高趋势 拟杆菌纲 以及 梭菌 以及减轻 杆菌 以及 丹毒丝菌纲 与空白组相比;相反,干预组显示出恢复。 拟杆菌纲 以及 丹毒丝菌纲 接近空白组的水平,同时伴随着相对丰度的升高 梭菌 以及 Alphaproteobacteria在目级水平上,图 8C模型组表现出升高的比例 拟杆菌目且与空白组相比,Erysipelotrichales 目和 Lactobacillales 目的比例降低;相反,干预组恢复了这些比例。 拟杆菌目 和 丹毒丝菌目 接近空白组的水平,同时伴随着相对丰度的升高。 梭菌目在科的水平上,图 8D模型组呈现了增长趋势 气味杆菌科, 消化链球菌科, Rikenellaceae, 以及 坦纳氏菌科以及减少 丹毒丝菌科, 乳杆菌科, Muribaculaceae以及 瘤胃球菌科 与空白组相比;相比之下,干预组下调了 气味杆菌科 以及 消化链球菌科 与模型组相比;恢复了丹毒丝菌科(Erysipelotrichaceae)和 Ruminococcaceae 接近空白组的水平,同时伴随着相对丰度的升高。 毛螺菌科在属水平上图 8E模型组则呈现上升趋势。 Odoribacter, Paeniclostridium, Alistipes, Parabacteroides以及 艰难梭菌,以及下降趋势 Lactobacillus, Faecalibaculum, Ruminococcus, Bacteroides以及 Muribaculum 与空白组相比;值得注意的是,干预组下调了 Odoribacter, 艰难梭菌以及 艰难梭菌 与模型组相比;将粪杆菌属(Faecalibaculum)和瘤胃球菌属(Ruminococcus)的比例恢复至接近空白组的水平;并增加了……的相对丰度。 Lachnoclostridium, 鞘氨醇单胞菌, Flavonifractor以及 Blautia在物种层面图 8F模型组表现出增加 Odoribacter splanchnicus, 艰难梭菌 以及 Paeniclostridium sordellii,以及 Faecalibaculum rodentium, Bacteroides salanitronis, Muribaculum intestinale 与空白组相比;相反,干预组下调了 Odoribacter splanchnicus 与 艰难梭菌 与模型组相比;恢复了 Faecalibaculum rodentium,以及 Muribaculum intestinale,并伴随相对丰度的升高 Lachnoclostridium phocaeense以及 Flavonifractor plautii综上所述,这些研究结果表明,QMG 在多个分类学水平上恢复了肠道微生物组成,使群落结构向稳态转变。
Alpha 多样性与 Beta 多样性分析结果
如 Alpha 多样性结果所示(图 9A干预组表现出最高的Chao1、PD、Simpson和Shannon指数,而模型组最低,空白组则处于中间水平。这些发现强调了DR对肠道菌群多样性的不利影响,并证明QMG干预能有效恢复并增强DR小鼠的微生物丰富度和均匀度。
如Beta多样性代表性结果所示图 9B,主坐标分析(PCoA)图显示,三组间的微生物群落存在明显分离,这一结果得到了置换多元方差分析(PERMANOVA)的统计学支持。具体而言,基于Bray-Curtis距离的分析表明存在显著的结构差异(PERMANOVA:R2 = 0.67, P < 0.001),表明DR模型与QMG干预解释了微生物群落组成变异的相当大一部分。与此一致的是,基于加权唯一分数(UniFrac)距离的分析(该方法整合了分类群之间的系统发育关系)进一步证实了群落结构的显著变化(PERMANOVA:R2 = 0.58, P < 0.01).
如 Beta 多样性分析结果所示(图 9D非度量多维标度排序图显示,样本根据各自组别呈现清晰的空间聚类,其应力值为0.04。鉴于应力值低于0.05通常被认为能极佳地代表降维空间中的群落结构,这些结果共同表明,QMG干预显著改变了肠道菌群的总体组成。
差异丰度分析的结果
根据线性判别分析效应量(LEfSe)分析图 9E结果表明 梭菌, 梭菌目, 毛螺菌科以及 Lachnoclostridium 干预组中则显著富集了 气味杆菌科, Odoribacter, 消化链球菌科以及 Paeniclostridium 模型组中上述肠道微生物群显著富集。因此,这些肠道微生物群可能是导致模型组与干预组之间组间差异的主要差异微生物群。
群落功能预测结果
Level 2 和 Level 3 的预测功能谱在三个组别中显示出不同的聚类模式。图 9FG)。具体而言,与空白组相比,模型组在代谢通路的相对丰度上表现出显著偏离。值得注意的是,模型组中的这种功能扰动在干预组中得到了大幅改善。干预组的功能组成显示出向空白组观察到的特征谱显著回移的趋势,表明QMG干预有效调节了肠道微生物的功能结构。这些结果表明,该干预不仅重塑了肠道菌群的分类学组成与结构,还使其功能代谢能力向稳态方向恢复。
QMG调节肠道–视网膜轴通过耦合全身性炎症与关键调控蛋白
全球层面的关联
在界级分类水平上图 10A–C),QMG 主要通过调节 细菌 沿肠道-视网膜轴。具体而言细菌 与视网膜PPAR-γ表达呈正相关γ 在空白对照组中P < 0.01),但在模型组中未观察到这种关联。经QMG干预后,细菌丰度与视网膜CMKLR1和Wnt5a呈正相关,而与结肠TP53和PPAR-呈负相关。γ (P < 0.01).
在门水平上图 10D–F),QMG主要通过调节 Candidatus 以及 拟杆菌门 沿肠-视网膜轴。具体而言, Candidatus 空白组中观察到的回肠和结肠CMKLR1表达在DR诱导后消失,但经QMG干预得以恢复,且与血清指标呈负相关。 IL-1β 与 TNF-αα同时与视网膜PPAR-呈正相关γAP-1、TP53、结肠AP-1及血清IL-6P < 0.01). 变形菌门 在模型组中与结肠CMKLR1呈负相关P < 0.01),这一趋势在 QMG 干预后依然持续。同时, 厚壁菌门 与模型组视网膜CMKLR1呈正相关,而 拟杆菌门 以及 Tenericutes 与视网膜 CMKLR1 呈负相关P < 0.01)。在 QMG 干预后, 拟杆菌门 与视网膜 PPAR-γAP-1、TP53 与结肠 CMKLR1P < 0.01)。此外, 放线菌门 与视网膜 CMKLR1 和 Wnt5a 呈正相关P < 0.01).
在纲的层面图 10G–I), QMG 主要通过调节 CMKLR1 中心网络来改善其功能。 **Cytophagia** 以及 拟杆菌纲 沿肠道-视网膜轴。具体而言, 噬纤维菌纲 与 Chitinophagia 空白组中与视网膜CMKLR1呈负相关P < 0.01)。在模型组中, **Cytophagia**, 拟杆菌纲以及 支原体 视网膜 CMKLR1 呈负相关,而结肠 CMKLR1 呈正相关 黄杆菌纲 以及 ε-变形菌纲然而,负相关 Tissuerellia, Alphaproteobacteria, 梭菌以及 杆菌 (P < 0.01)。经QMG干预后, 拟杆菌纲 以及 噬纤维菌纲 与结肠CMKLR1、视网膜PPAR-呈正相关γ、AP-1、TP53、结肠AP-1与血清IL-6,而 支原体, Deltaproteobacteria, Alphaproteobacteria以及 γ-变形菌纲 呈现出相反的模式P < 0.01)。此外, 衣原体, 放线菌门, Tissuerellia, 芽孢杆菌, 以及 Negativicute 与视网膜 CMKLR1 和 Wnt5a 呈负相关,而 Coriobacteriia 呈现反向相关性P < 0.01).
在目级水平上图 10J–L),QMG 主要通过调节 拟杆菌目,芽孢杆菌目以及 梭菌目 沿肠道–视网膜轴。具体而言, 噬胞菌目 以及 几丁质噬菌目 在空白组中,视网膜 CMKLR1 与 Marinilabiliales 呈负相关,而结肠 CMKLR1 与 Marinilabiliales 呈正相关。P < 0.01)。在模型组中, 支原体目, 噬胞菌目, 拟杆菌目以及 Marinilabiliales 视网膜 CMKLR1 呈负相关,而结肠 CMKLR1 呈正相关 黄杆菌目 以及 弯曲菌目,却与……呈负相关 蒂西雷拉菌目, 芽孢杆菌目, 鞘脂单胞菌目, Clostridiales以及 乳杆菌目sP < 0.01)。经 QMG 干预后, 拟杆菌目 与 梭菌目 与结肠CMKLR1、AP-1、视网膜PPAR呈正相关γAP-1、TP53 及血清 IL-6 脱硫弧菌目, 根瘤菌目, 鞘脂单胞菌目以及 肠杆菌目 呈现出相反的模式P < 0.01)。此外, 埃格特氏菌目 以及 红杆菌目与视网膜CMKLR1和Wnt5a呈正相关,而与结肠TP53和PPAR呈负相关。γ,而 衣原体目, 热厌氧杆菌目, 棒杆菌目, 蒂西雷拉菌目以及 芽孢杆菌目 呈现出反向相关性P < 0.01).
精细水平关联
在科级水平上图 11A–C), QMG 主要通过改善 CMKLR1 为中心的网络 通过调节 毛螺菌科, Bacteroidaceae以及 乳杆菌科 沿肠道–视网膜轴。具体而言, 瘤胃球菌科 与视网膜 CMKLR1 呈负相关,而 毛螺菌科 空白组中与视网膜CMKLR1呈正相关P < 0.01)。在模型组中, 消化链球菌科 与视网膜 CMKLR1 呈正相关,而 坦纳氏菌科, Bacteroidaceae, 气味杆菌科以及 毛螺菌科 呈现出相反的模式P < 0.01)。与此同时,结肠 CMKLR1 与 Marinilabiliaceae, 理研菌科以及 黄杆菌科,却与……呈负相关 毛螺菌科 以及 乳杆菌科 (P < 0.01)。在QMG干预后, 肠杆菌科, 鞘氨醇单胞菌科以及 Oscillospiraceae 与结肠CMKLR1、AP-1及血清IL-6,以及视网膜PPAR-呈负相关。γ、AP-1和TP53,同时与血清IL-1呈正相关。β 和 TNF-αα,而 肽球菌科, Bacteroidaceae, Muribaculaceae以及 Rikenellaceae 呈现出相反的模式P < 0.01)。此外, 韦荣球菌科, 消化链球菌科, 乳杆菌科以及 Ruminococcaceae 与视网膜CMKLR1和Wnt5a呈负相关,但与结肠TP53和PPAR呈正相关。γ,而 Eggerthellaceae, 毛螺菌科以及 Hungateiclostridiaceae 呈现反向相关性P < 0.01).
在属水平上图 11D–F),QMG 主要通过调节 CMKLR1 为中心的网络来改善 Lachnoclostridium, 艰难梭菌, 和 拟杆菌 沿肠道–视网膜轴。具体而言, Ruminococcus 与视网膜 CMKLR1 呈负相关,而 Lachnoclostridium 空白组则呈现相反的模式。P < 0.01)。在模型组中, Lactobacillus 以及 鞘氨醇单胞菌 与结肠CMKLR1呈负相关,而 Alistipes 以及 Croceibacter 与结肠CMKLR1呈正相关P < 0.01)。与此同时,视网膜 CMKLR1 与 Paeniclostridium 以及 艰难梭菌然而呈负相关 Mucinivorans, Intestinimonas, Flavonifractor, Parabacteroides, Bacteroides, Odoribacter以及 Lachnoclostridium (P < 0.01)。在 QMG 干预后, 鞘氨醇单胞菌 与 Oscillibacter 与结肠 CMKLR1、AP-1 及血清 IL-6 呈负相关,同时与视网膜 PPAR-γAP-1 和 TP53,同时与血清 IL-1 呈正相关。β 与肿瘤坏死因子-αα,而 Bacteroides, Muribaculum以及 Alistipes 呈现出相反的模式P < 0.01)。此外, Dialister, Flavonifractor, 艰难梭菌, Ruminococcus以及 Paeniclostridium 与视网膜CMKLR1和Wnt5a呈负相关,而与结肠TP53和PPAR-呈正相关。γ,而 假梭菌属, Lachnoclostridium以及 Blautia 呈现反向相关性P < 0.01).
在物种层面图 11G–I),QMG 主要通过调节 CMKLR1 中心网络来改善 艰难梭菌, Alistipes shahii以及 产气荚膜梭菌 沿肠道–视网膜轴。具体而言, Ruminococcus bicirculans 以及 内共生体 'TC1' 旋毛虫(Trimyema compressum) 与视网膜 CMKLR1 呈负相关,而 Lactobacillus fermentum 以及 Lactobacillus 瑞士乳杆菌 空白组中则呈现出相反的模式。P < 0.01)。在模型组中, Croceibacter atlanticus, Alkalitalea saponilacus, Alistipes finegoldii以及 Alistipes shahii 与结肠 CMKLR1 呈正相关,而 Sphingomonas panacis, 产气荚膜梭菌, 艰难梭菌以及 鼠乳杆菌 与视网膜CMKLR1呈正相关,然而 Odoribacter splanchnicus, Mucinivorans hirudinis, Lachnoclostridium phocaense, Flavonifractor plautii以及 丁酸单胞菌 呈现出相反的模式P < 0.01)。经 QMG 干预后, Alistipes shahii 与 Muribaculum intestinale 与结肠 CMKLR1、AP-1 及血清 IL-6 呈正相关,也与视网膜 PPAR-γAP-1 和 TP53 呈正相关,而与血清 IL-1 呈负相关。β 与肿瘤坏死因子-αα,而 Sphingomonas panacis, Oscillibacter sp. PEA192以及 Oscillibacter valericigenes 呈现出相反的模式P < 0.01)。此外, 嗜热产琥珀酸假梭菌, Lachnoclostridium phocaense, Bacteroides salanitronis以及 Blautia sp. N6H1-15 视网膜CMKLR1与Wnt5a呈正相关,而与结肠TP53及PPAR呈负相关。γ,而 产气荚膜梭菌, Flavonifractor plautii, 内共生体 'TC1' 旋毛虫(Trimyema compressum), 艰难梭菌以及 Dialister pneumosintes 呈现反向相关性P < 0.01)。界、门、纲、目、科、属、种各分类水平上的详细相关性结果见 补充文件 1。
数据可用性:
本研究生成和分析的 16S rDNA 测序数据集可在国家生物技术信息中心(NCBI)序列读取档案(SRA)数据库中获取,BioProject 登录号为:PRJNA1281561。本研究中生成或分析的所有其他数据均包含在本文中。
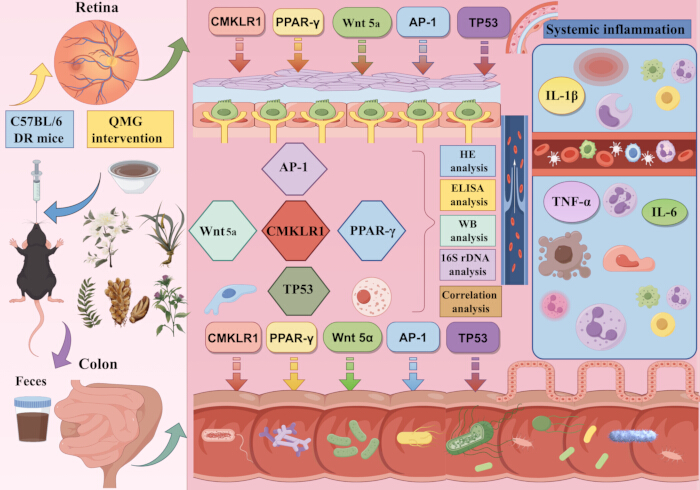
图 1: 图文摘要。 图文摘要展示了本研究的过程。 请点击此处查看此图的放大版本。
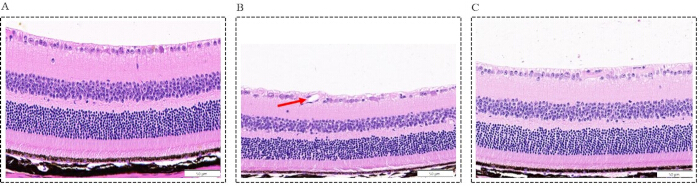
图 2三组视网膜的形态学变化(比例尺 = 50 μm) µm,放大倍数: ×400). (A) 空白对照组:苏木精-伊红(HE)染色视网膜切片的代表性显微照片,显示完整、结构良好的视网膜组织,细胞层排列整齐;B) 模型组:苏木精-伊红(HE)染色视网膜切片的代表性显微照片,显示显著的结构紊乱,其特征为细胞排列紊乱,视网膜神经节细胞(RGC)数量显著减少(P < 0.0001),视网膜厚度显著变薄(P < 0.0001),以及穿透内界膜的新生血管簇(由红色箭头指示);C) 干预组:苏木精-伊红(HE)染色视网膜切片的代表性显微照片,显示相对于模型组,组织病理学异常显著减轻,具体表现为视网膜层状结构恢复、视网膜神经节细胞(RGC)数量部分恢复P < 0.001),以及视网膜变薄的恢复(P < 0.01). 请点击此处查看此图的放大版本。
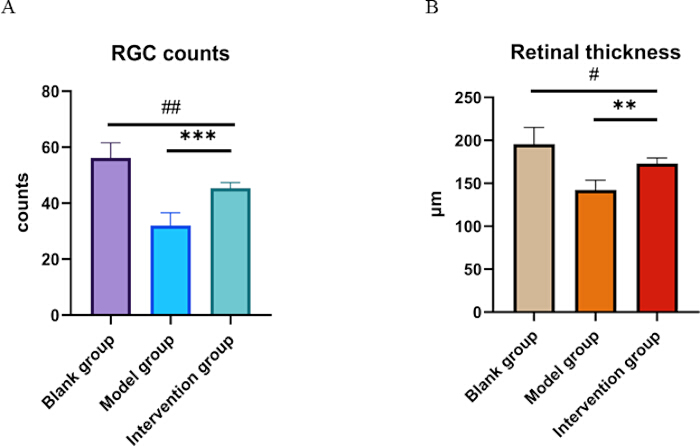
图 3: 视网膜神经节细胞计数与视网膜厚度的组织学定量分析。 (A) 视网膜神经节细胞层中 RGC 数量的定量分析。B) 全视网膜厚度测量µm)。数据以平均值表示 ± SDn = 每组6只)。与空白组相比: #P <0.05, ##P <0.01;与模型组相比: **P <0.01, ***P <0.001. 请点击此处查看此图的放大版本。
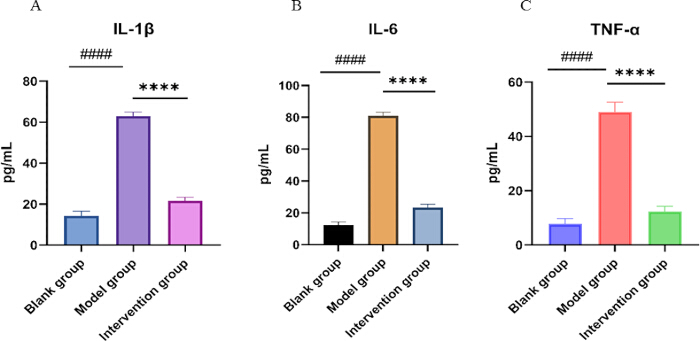
图 4: 三组受试者血清中炎症细胞因子的浓度。 显示 ELISA 结果的条形图‑基于血清IL的定量分析‑1β (A), 白细胞介素‑6 (B)和肿瘤坏死因子‑α (C空白对照组、模型组及干预组中的)水平。数据以均值表示 ± SDn = 每组6只. 与空白组相比: ####P < 0.0001;与模型组相比: ****P < 0.0001. 请点击此处查看此图的放大版本。
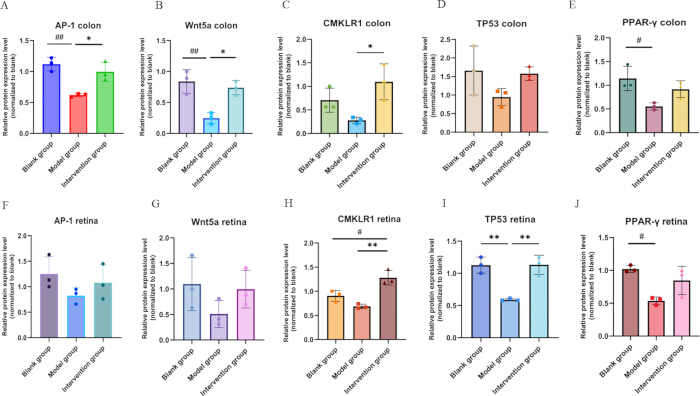
图 5视网膜与结肠中关键调控蛋白表达水平的条形图。 (A) 结肠中 AP-1 的相对蛋白表达水平(相对于空白组进行归一化)n = 3); (B) 结肠中 Wnt5a 的相对蛋白表达水平(以空白组为基准进行归一化)n = 3); (C) 结肠中 CMKLR1 的相对蛋白表达水平(相对于空白组标准化)n = 3); (D) 结肠组织中 TP53 的相对蛋白表达水平(以空白组为基准进行标准化)n = 3); (E) PPAR-γ 的相对蛋白表达水平(以空白组为基准进行归一化)γ 在结肠中n = 3); (F视网膜中AP-1的相对蛋白表达水平(相对于空白组进行归一化)n = 3); (G视网膜中 Wnt5a 的相对蛋白表达水平(以空白对照归一化)n = 3); (H) 视网膜中 CMKLR1 的相对蛋白表达水平(以空白组为基准进行归一化)n = 3); (I) 视网膜中 TP53 的相对蛋白表达水平(以空白组为基准进行归一化)n = 3); (JoVE) PPAR-γ 的相对蛋白表达水平(以空白对照归一化)γ 在视网膜中n = 3)。与空白组相比: #P < 0.05, ##P < 0.01;与模型组相比: *P < 0.05, **P < 0.01. 请点击此处查看此图的放大版本。
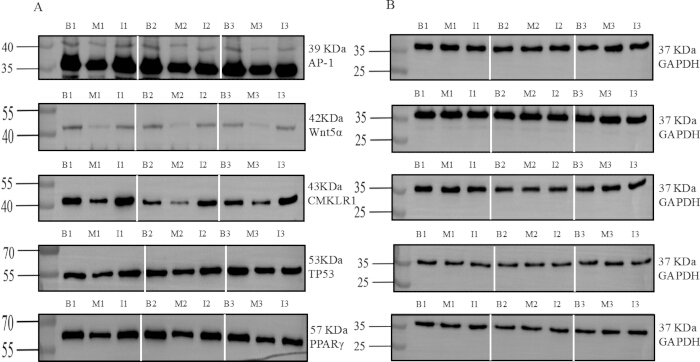
图 6: 结肠关键调控蛋白的代表性蛋白质印迹灰度图。 (A) 靶蛋白表达:AP-1、Wnt5a、CMKLR1、TP53 与 PPAR-γ; (B) 内参:GAPDH。垂直白线分隔重复组(Rep1、Rep2、Rep3);左侧标示分子量标记(kDa),右侧显示蛋白质名称及其对应分子量(kDa)。泳道标记为:B1(空白组1)、M1(模型组1)、I1(干预组1);B2(空白组2)、M2(模型组2)、I2(干预组2);B3(空白组3)、M3(模型组3)、I3(干预组3)。已提供显示分子量标记的完整、未裁剪蛋白质印迹(WB)图像。 补充图 2. 请点击此处查看此图的放大版本。
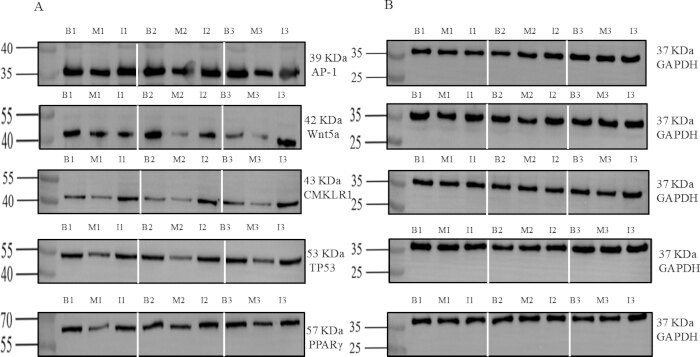
图 7: 视网膜关键调控蛋白的代表性蛋白质印迹灰度图。 (A) 靶蛋白表达:AP-1、Wnt5a、CMKLR1、TP53 与 PPAR-γ; (B) 内参对照:GAPDH。垂直白线分隔重复组(Rep1、Rep2、Rep3);左侧标注分子量标记(kDa),右侧显示蛋白质名称及其对应的 kDa。泳道标记为:B1(空白组 1)、M1(模型组 1)、I1(干预组 1);B2(空白组 2)、M2(模型组 2)、I2(干预组 2);B3(空白组 3)、M3(模型组 3)、I3(干预组 3)。已提供带有可见分子量标记的完整、未裁剪的蛋白质印迹原始图像。 Supplementary Figure 2. 请点击此处查看此图的放大版本。
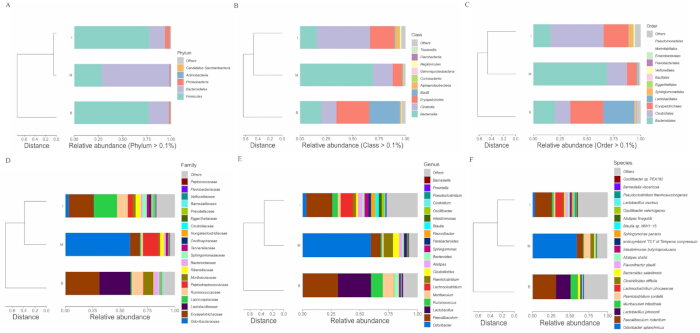
图 8肠道菌群组成在不同分类层级上的层次聚类分析。 基于Bray-Curtis相异性绘制的空白对照组(B)、模型组(M)与干预组(I)间层次聚类树状图。分支长度代表结构差异程度。堆叠条形图展示三组中优势菌门的相对丰度。低于设定阈值的菌门被合并为“其他”。 “其他”. (A) 芪明颗粒可重塑门水平肠道菌群结构;B) QMG 在纲水平上重新平衡肠道菌群组成;C) QMG 在目水平上重新平衡肠道菌群组成;D) QMG 在科水平上重新平衡肠道菌群组成;E) QMG在属水平上重新平衡肠道菌群组成;F) QMG 在物种水平上重新平衡肠道菌群组成。缩写:B,空白组;M,模型组;I,干预组。 请点击此处查看此图的放大版本。
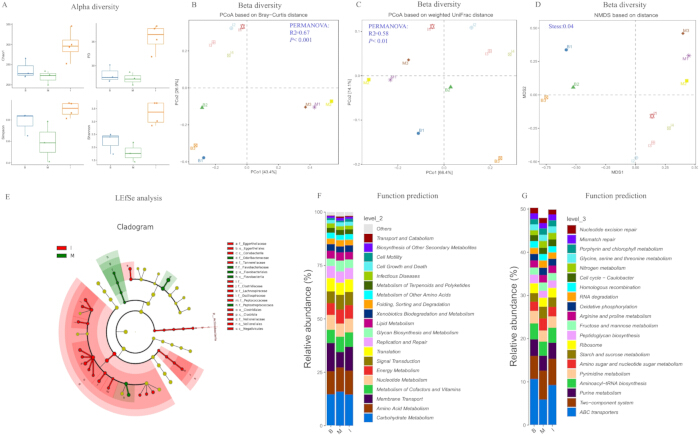
图9: 肠道菌群多样性、差异丰度与预测功能通路分析。 (A) 通过Chao1、PD、Simpson和Shannon指数评估的Alpha多样性分析显示,干预组表现出比模型组更高的微生物多样性,表明QMG治疗有效恢复了肠道微生物的丰富度和均匀度。B) 基于Bray-Curtis距离的主坐标分析(PCoA)评估的β多样性分析揭示了组间存在显著差异(PERMANOVA:R2=0.67, P < 0.001),表明DR模型与QMG干预解释了微生物群落组成变异的相当大部分。C) 基于加权唯一片段(UniFrac)距离的主坐标分析(PCoA)进行的β多样性分析进一步证实了群落结构的显著变化(PERMANOVA:R2= 0.58, P < 0.01). (D) 通过非度量多维尺度排序法进行的β多样性分析显示应力值为0.04,表明QMG干预显著改变了肠道菌群的总体组成。E) 通过线性判别分析效应量(LEfSe)评估的差异丰度分析系统发育树揭示了模型组与干预组间的主要差异微生物群。肠道微生物群在KEGG二级水平的功能预测F) 与 KEGG 第三级 (G) 表明该干预不仅重塑了肠道菌群的分类学组成与结构,还使其功能性代谢能力恢复至稳态水平。 请点击此处查看此图的放大版本。
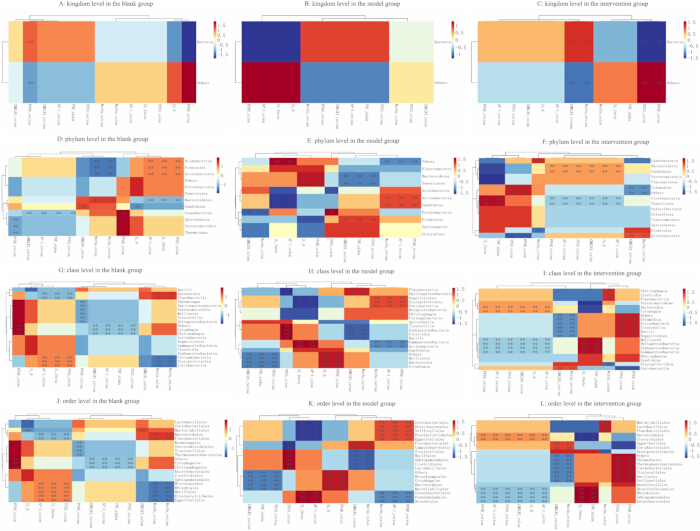
图 10全球肠道菌群与炎症及调节因子的关联性研究。 (A) 空白组肠道菌群在界水平上的关联;B) 模型组肠道菌群在界水平的关联分析;C) 干预组肠道菌群在界水平上的关联;D) 空白组门水平肠道菌群关联性分析;E) 模型组中门水平肠道菌群的关联;F) 干预组肠道微生物群在门水平上的关联;G) 空白组肠道菌群在纲水平上的关联;H) 模型组中肠道菌群在纲水平上的关联;I) 干预组肠道菌群在纲水平上的关联性;JoVE) 空白组肠道菌群在目水平上的关联;K) 模型组肠道菌群在目水平的关联分析;L) 干预组肠道菌群在目水平上的关联. 请点击此处查看此图的放大版本。
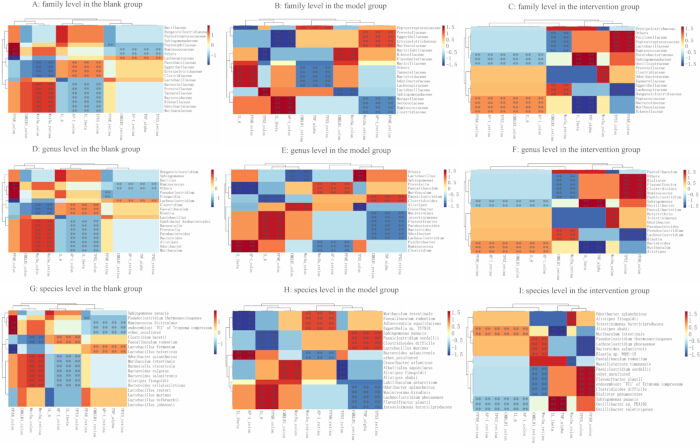
图 11: 肠道菌群与炎症及调节因子的精细关联。 (A) 空白组肠道菌群在科水平上的关联;B) 模型组肠道菌群在科水平上的关联性。C) 干预组肠道菌群在科水平上的关联;D) 空白组肠道菌群在属水平的关联性分析;E) 模型组肠道菌群在属水平的关联分析;F) 干预组肠道菌群在属水平上的关联;G) 空白组肠道菌群在物种水平上的关联;H) 模型组中肠道微生物群在物种水平上的关联;I) 干预组肠道微生物群在物种水平上的关联。 请点击此处查看此图的放大版本。
| 组别n = 6) | 视网膜神经节细胞计数 | 视网膜厚度 |
| 空白组 | 56.17 ± 5.382 | 195.50 ± 19.54 μm |
| 模型组 | 32.00 ± 4.561#### | 142.30 ± 11.34 μm#### |
| 干预组 | 45.33 ± 2.066 ##*** | 173.00 ± 6.575 μm#** |
| p | <0.0001 | <0.0001 |
表2:三个实验组中视网膜神经节细胞计数与视网膜厚度的定量分析。 数据以平均值表示 ± SD(每组 n = 6)。与空白组相比: #P <0.05, ##P <0.01, ####P <0.0001;与模型组相比: **P <0.01, ***P <0.001.
| 组别n = 6) | IL-1β | IL-6 | 肿瘤坏死因子-αα |
| 空白组 | 14.31 ± 2.28 | 12.48 ± 1.774 | 7.728 ± 2.048 |
| 模型组 | 62.88 ± 2.01#### | 80.95 ± 2.247#### | 49.00 ± 3.647#### |
| 干预组 | 21.7 ± 1.654**** | 23.27 ± 2.074**** | 12.35 ± 1.891**** |
| P | <0.0001 | <0.0001 | <0.0001 |
表3:IL-1的血清表达水平β、IL-6 和 TNF-α 在三个实验组中。 数据以平均值表示 ± SDn = 每组6只)。细胞因子浓度通过酶联免疫吸附测定法测定。‑酶联免疫吸附测定(ELISA),结果以 pg/mL 报告。与空白组相比: ####P < 0.0001;与模型组相比: ****P < 0.0001.
补充图1:实验设计与研究时间线。 实验设计示意图。请点击此处下载此文件。
补充图 2: 与图6对应的原始、完整、未经裁剪的蛋白质印迹图像 图 7原始未修改图像包含结肠和视网膜印迹中所有分子量标记物,用于检测AP-1、Wnt5a、TP53、CMKLR1、PPAR-γ。γ及内参 GAPDH。分子量标记(kDa)已标示。泳道标记为:B1(空白组1)、M1(模型组1)、I1(干预组1);B2(空白组2)、M2(模型组2)、I2(干预组2);B3(空白组3)、M3(模型组3)、I3(干预组3)。原始印迹未进行高对比度调整。请点击此处下载此文件。
补充文件1:肠道菌群与炎症及调节因子的详细相关性分析。请点击此处下载此文件。
讨论
糖尿病视网膜病变(DR)是一种由慢性高血糖、炎症和代谢紊乱驱动的复杂神经血管并发症22。美国眼科学会将DR分为非增殖性DR和增殖性DR,后者以新生血管形成为特征23。鉴于当前治疗策略的局限性,探索新的作用机制已成为应对DR的一个有前景的方向。值得注意的是,近年来的研究突破已确定肠-视网膜轴是DR的一个关键但尚未充分开发的治疗靶点。肠-视网膜轴最早由Sheldon Rowan于2017年提出并描述6,近年来在眼部疾病病理生理过程中的作用日益受到关注。然而,肠-视网膜轴在DR发病和进展中的具体分子机制仍不明确,这阻碍了针对该轴的治疗策略的开发与临床应用。
本研究系统评估了QMG对抗糖尿病视网膜病变(DR)的疗效及其潜在机制。这些发现提供了初步证据,表明QMG可减轻视网膜组织病理学损伤,抑制全身性炎症,恢复肠道菌群稳态,并双向调节结肠和视网膜中以CMKLR1为核心的调控网络中的关键调节蛋白,从而确立QMG作为肠-视网膜轴潜在调节剂的作用。慢性、低度全身性炎症是糖尿病(DM)的特征之一,也是视网膜微血管损伤和DR进展的主要驱动因素24。ELISA结果显示,DR模型小鼠血清中IL-1β、IL-6和TNF-α水平显著升高(P < 0.0001),证实了DR状态下存在强烈的全身性炎症反应。这些细胞因子的失控释放可破坏血-视网膜屏障,促进视网膜神经节细胞(RGC)凋亡,并驱动病理性新生血管形成。经QMG干预后,这些细胞因子水平显著下调(P < 0.0001),同时视网膜结构完整性得以恢复,RGC存活率提高,视网膜厚度得到维持。这些结果表明,QMG的视网膜保护作用与其强大的全身抗炎活性密切相关。值得注意的是,这种全身性抗炎效应并非孤立发生,而是与QMG对肠道菌群的调节以及结肠中关键调控蛋白的恢复相耦合,提示QMG可能通过“肠道-全身炎症-视网膜”轴发挥其治疗作用。
为了进一步阐明QMG通过肠-视网膜轴发挥抗糖尿病视网膜病变(DR)作用的分子机制,检测了以CMKLR1为核心的调控网络(包括CMKLR1、Wnt5a、TP53、AP-1和PPAR-γ)在结肠和视网膜组织中的蛋白表达。结果显示,在建立DR模型后,这五种蛋白在结肠和视网膜中均呈现一致的下调趋势,提示在DR状态下肠与视网膜之间的信号通讯可能被系统性阻断。经QMG干预后,结肠和视网膜中的CMKLR1 表达均显著上调(P < 0.05 和 P < 0.01),表明QMG可能通过系统性激活CMKLR1恢复肠-视网膜轴的双向通讯。此外,QMG显著恢复了结肠中AP-1和Wnt5a的表达,以及视网膜中TP53的表达,提示这些蛋白在该轴线上可能发挥组织特异性的功能作用:AP-1和Wnt5a在结肠中对QMG的响应更为敏感,而作为凋亡调节因子的TP53则在视网膜神经保护中发挥更为关键的作用。进一步的相关性分析显示,结肠中AP-1、CMKLR1、PPAR-γ和Wnt5a的表达与全身性炎症细胞因子水平(IL-1β、IL-6、TNF-α)呈显著负相关(P < 0.05 至 P < 0.001),而血清细胞因子与视网膜蛋白表达之间未观察到直接相关性。这一差异具有重要的机制意义:QMG可能主要作用于肠道微环境,通过恢复结肠中关键调控蛋白的表达来抑制全身性炎症;而视网膜蛋白的恢复则可能通过间接途径实现,例如肠道菌群衍生的代谢物进入循环系统后远距离调控视网膜信号通路,而非由全身性炎症因子直接介导。该发现支持“肠道—全身炎症—视网膜”轴向调控模型,为QMG通过肠-视网膜轴治疗DR提供了关键的机制证据。在所研究的靶点中,CMKLR1在视网膜和结肠组织中均表现出显著变化,成为连接肠-视网膜轴的潜在核心生物标志物。既往研究表明,CMKLR1参与糖脂代谢、DR严重程度及肠道菌群调节25,26,27,28,29,30,提示其在肠-视网膜轴上的差异表达可能反映了其在多种病理过程中的参与。这些发现确立了CMKLR1作为DR诊断和治疗干预的有前景候选生物标志物的地位,有待进一步的机制验证。
尽管CMKLR1在肠-视网膜轴中发挥核心节点作用,QMG的治疗效应则是通过一个由Wnt5a、TP53、AP-1和PPAR-γ提供关键协同支持的多维调控网络实现的。Wnt信号通路对于肠道上皮稳态和结肠健康至关重要,其功能涵盖维持上皮完整性、调节炎症反应以及微生物介导的黏膜保护31,32,33,34。PPAR-γ可调控炎症反应,已被证实可在糖尿病视网膜病变(DR)中抑制脂质活化的吞噬细胞,并通过小胶质细胞调节促进光感受器细胞存活35,36,37。AP-1作为一种转录因子,介导肠道微生物代谢物(如脱氧胆酸)对炎症和免疫稳态的影响38,39,40,41。TP53在高血糖条件下参与自噬、细胞凋亡以及视网膜神经元损伤过程42,43,44,45。综上所述,这些信号节点共同构成一个相互关联的网络,将肠道微生物动态变化与视网膜病理过程联系起来,促使我们进一步探究QMG是否通过肠-视网膜轴调控该网络。
调节全身性炎症的一个关键机制源于肠道生态系统。16S rDNA测序分析显示,模型组中糖尿病导致了肠道菌群结构的失调,其特征是Firmicutes/Bacteroidetes比例显著失衡,潜在致病菌群(如Odoribacter和Clostridioides)富集,以及有益菌群(如Lactobacillus和Faecalibaculum)减少。值得注意的是,QMG治疗作为一种菌群修复剂,能够逆转这些病理改变,具体表现为:(i)恢复微生物稳态:使关键菌科和菌属(Faecalibaculum、Ruminococcus、Erysipelotrichaceae)的比例恢复至空白组基线水平;(ii)靶向调控致病共生菌:下调糖尿病相关的Odoribacter splanchnicus和Clostridioides difficile过度增殖;(iii)促进有益菌群的定植:诱导具有抗炎作用或代谢产物生成能力的菌群增殖,例如Lachnoclostridium、Blautia和Flavonifractor plautii。此外,多层次的多样性分析及Spearman相关性分析表明,QMG干预能有效重塑核心的多层次菌群结构,促进沿肠-视网膜轴的保护性宿主-微生物互作。该结果不仅证实了QMG对肠道菌群的调节作用,还揭示了一种潜在的治疗策略,即QMG通过协调菌群重塑与关键调控蛋白(如IL-6、TP53)的活性,共同抑制全身性炎症,从而缓解糖尿病视网膜病变。
近期研究 有 证实了中药对微生物-代谢-免疫轴具有多靶点调控作用,这使其区别于单靶点药物制剂46越来越多的证据表明,QMG在糖尿病视网膜病变(DR)及相关眼病中具有治疗潜力。一项多中心随机对照试验显示,QMG显著缩短了DR患者的视网膜动静脉循环时间,提示其可改善视网膜血流并缓解缺氧状态47荟萃分析进一步证实,强脉冲光联合常规治疗可显著改善糖尿病性黄斑水肿患者的中心视网膜厚度、视力及总体有效率48以及延长干眼症患者的泪膜破裂时间并增加泪液分泌49在伴有NPDR的神经损伤患者中,QMG在保护视网膜神经纤维层厚度和中心无血管区面积方面,显示出不劣于钙多西立派的效果50机制研究表明,QMG可通过多种途径保护视网膜免受损伤,包括通过P2X7R/NLRP3通路抑制Müller细胞的焦亡及免疫性炎症反应51,激活PI3K/Akt信号通路以减少细胞凋亡,以及调控紧密连接蛋白以维持血-视网膜屏障完整性52网络药理学分析已鉴定出QMG中多种生物活性化合物,这些化合物可协同作用于糖尿病视网膜病变相关靶点16,且临床研究未报告严重不良事件,表明其具有良好的安全性特征50其治疗功效归因于多种活性成分的协同作用,包括槲皮素、山奈酚、异鼠李素、芒柄花素以及 ββ-谷甾醇,通过靶向IL-6、TNF-α,共同发挥抗炎、抗氧化和抗凋亡作用α、TP53 和 AP-153,54,55,56,57,58,59本研究通过证明羌活多糖(QMG)的保护作用还通过调节肠-视网膜轴介导,进一步拓展了这一认知,具体机制为恢复肠道菌群稳态,并调控以CMKLR1为核心的分子网络,从而抑制全身性炎症反应并减轻视网膜损伤。
本研究存在若干局限性,需在未来的研究中进一步探讨。首先,肠道微生物改变与视网膜功能改善之间的因果关系仍需进一步验证。尽管QMG诱导的菌群重塑与视网膜保护表型之间观察到显著相关性,但未来研究中仍需通过粪菌移植、无菌动物模型或抗生素诱导的菌群耗竭等直接因果推断实验来确认这一关系。其次,本研究采用16S rDNA测序分析微生物组成,该方法在属及以上分类水平可提供足够的分类分辨率,但在菌株水平的功能信息或精确代谢潜能方面具有局限性。后续研究将采用宏基因组测序或代谢组学分析,以鉴定QMG调控的关键微生物功能通路。第三,微生物变化仅在实验终点进行评估,无法动态追踪QMG干预期间菌群重建的时间演化过程。未来研究中的纵向采样将有助于阐明QMG驱动的菌群重塑动力学及其与视网膜保护作用的时间关系。第四,尽管组织病理学分析观察到视网膜变薄、视网膜神经节细胞(RGC)丢失以及新生血管簇等现象,未来研究仍应探索多次注射链脲佐菌素(STZ)的方案及遗传性糖尿病模型,并对糖尿病视网膜病变(DR)表型进行更全面的表征。
综上所述,本研究表明,QMG 通过肠-视网膜轴,将以 CMKLR1 为核心的分子网络与全身性炎症相偶联,从而改善糖尿病视网膜病变(DR)。QMG 的作用机制体现在三个层面:在微生物层面,QMG 可逆转糖尿病引起的肠道菌群失调(例如恢复厚壁菌门/Firmicutes与拟杆菌门/Bacteroidetes的比例,抑制Odoribacter和Clostridioides,促进Faecalibaculum等有益菌的生长);在分子层面,QMG 调控 CMKLR1/Wnt5a/PPAR-γ/AP-1/TP53 信号通路,减轻全身性炎症;在组织层面,QMG 保护视网膜形态结构。这些发现支持 QMG 作为一种具有前景的肠-视网膜治疗策略用于糖尿病视网膜病变,并为中医药治疗糖尿病并发症提供了机制依据。
披露
作者声明,他们不存在任何已知的竞争性经济利益或可能被认为影响本文所报道工作的个人关系。
致谢
作者希望感谢 所有为完成本研究提供了大量支持与帮助的团队成员。
本研究得到国家自然科学基金(项目编号:82474580)以及成都中医药大学附属医院自由探索项目(编号:23ZYTS1601)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| AP-1 单克隆抗体 | Proteintech | 66313-1-IG | 1:5000 |
| CMKLR1 多克隆抗体 | Affinity | AF5291 | 1:1000 |
| GAPDH 多克隆抗体 | Affinity | AF7021 | 1:5000 |
| GoatAnti-Mouse IgG(H+L) HRP | MULTI SCIENCES | GAM0072 | 1:10000 |
| GoatAnti-Rabbit IgG(H+L) HRP | MULTI SCIENCES | GAR0072 | 1:10000 |
| GraphPad Prism | / | version 9.5 | |
| Image-Pro Plus | Media Cybernetics, Inc., Rockville, MD, USA | version 6.0 | |
| Luoning Bio-Cloud 平台 | http://www.biomediv.cn/login.html | ||
| 小鼠 IL-1β(白细胞介素-1β)ELISA 试剂盒 | Elabscience | E-EL-M0037 | 血清细胞因子检测 |
| 小鼠 IL-6(白细胞介素-6)ELISA 试剂盒 | Elabscience | E-EL-M0044 | 血清细胞因子检测 |
| 小鼠 TNF-α(肿瘤坏死因子-α)ELISA 试剂盒 | Elabscience | E-EL-M3063 | 血清细胞因子检测 |
| NanoFilt | / | version 2.7.1 | |
| Nanopore GridION 测序仪 | Oxford Nanopore Technologies | https://store.nanoporetech.com/gridion.html | |
| Pannoramic SCAN II | 3DHISTECH Pannoramic SCAN 扫描仪 | https://www.3dhistech.com/scanners/pannoramic-scan-ii-digital-scanner/ | |
| PPAR gamma (PPAR-γ) 多克隆抗体 | ImmunoWay | bs-0530R | 1:1000 |
| Python | / | version 3.7.4 | |
| 启明颗粒 | 浙江三生蔓迪药业有限公司 | 中国国家药品批准文号 Z20090036 | 0.9 g/kg,口服灌胃 |
| R 编程语言 | / | version 4.0.3 | |
| SILVA 数据库 | / | version 138 | |
| 链脲佐菌素(STZ) | Sigma-Aldrich | S0130 | 35 mg/kg,腹腔注射 |
| TP53 多克隆抗体 | Abcam | ab131442 | 1:1000 |
| Usearch | / | version 10.0.240 | |
| Wnt5a 多克隆抗体 | Proteintech | 55184-1-AP | 1:1000 |
| Zymo Research BIOMICS DNA Microprep 试剂盒 | Zymo Research | D4301 | 粪便基因组 DNA 提取 |
参考文献
- Lei C, et al. Homocysteine and diabetic retinopathy. Exp Eye Res. 2026;262:110729.
- Owens DR, et al. IDF diabetes Atlas: A worldwide review of studies utilizing retinal photography to screen for diabetic retinopathy from 2017 to 2024 inclusive. Diabetes Res Clin Pract. 2025;226:112346.
- Zhu J, Huang J, Sun Y, Xu W, Qian H. Emerging role of extracellular vesicles in diabetic retinopathy. Theranostics. 2024;14(4):1631–1646.
- Xie L, Lin W. The role of gut microbiota dysbiosis in the inflammatory pathogenesis of diabetic retinopathy. Front Immunol. 2025;16:1604315.
- Niu J, Liu Y, Peng H, Chen J, Chen L. Early-stage diabetic retinopathy: gut-metabolic triggers, immune-neurodegeneration, and interventions. Graefes Arch Clin Exp Ophthalmol. 2025;263(10):2723–2736.
- Rowan S, et al. Involvement of a gut-retina axis in protection against dietary glycemia-induced age-related macular degeneration. Proc Natl Acad Sci U S A. 2017;114(22):E4472–E4481.
- Rzeczycki P, Pęciak O, Plust M, Droździk M. Gut Microbiota in the Regulation of Intestinal Drug Transporters: Molecular Mechanisms and Pharmacokinetic Implications. Int J Mol Sci. 2025;26(24):11897.
- Yang H, et al. Mediating role of aging and obesity in the relationship between dietary index for gut microbiota and metabolic syndrome and its potential regulatory mechanisms. Eur J Med Res. 2025;31(1):137.
- Zahavi EE, et al. Repeat-element RNAs integrate a neuronal growth circuit. Cell. 2025;188(16):4350–4365.e22.
- Dander E, et al. The chemerin/CMKLR1 axis regulates intestinal graft-versus-host disease. JCI Insight. 2023;8(5):e154440.
- Zhang J, et al. Therapeutic targets in the Wnt signaling pathway: Treating cancer with specificity. Biochem Pharmacol. 2025;236:116848.
- Liu M, Lim ST, Song W, Coffman TM, Wang X. Beyond lipids: fenofibrate in diabetic retinopathy and nephropathy. Trends Pharmacol Sci. 2026;47(3):325–341.
- Wu Y, et al. The active ingredient β-sitosterol in the anti-inflammatory agents alleviates perianal inflammation in rats by inhibiting the expression of Srebf2, activating the PPAR signaling pathway, and altering the composition of gut microbiota. Int Immunopharmacol. 2025;152:114470.
- Lin T, Chen C, Zhao LC, Zhu HY, Li W. The beneficial effects of Traditional Chinese Medicine on diabetic retinopathy: mechanisms, therapeutics, and prospects. Acupunct Herb Med 2026;6(2):188–204.
- Huo J, et al. Evaluation of individualized treatment of nonproliferative diabetic retinopathy: a multicenter, randomized, parallel-controlled study. J Tradit Chin Med. 2022;42(1):90–95.
- Huang Y, et al. Pharmacological mechanism and clinical study of Qiming granules in treating diabetic retinopathy based on network pharmacology and literature review. J Ethnopharmacol. 2023;302(Pt A):115861.
- Salma B, et al. Ameliorative Efficacy of the Cassia auriculata Root Against High-Fat-Diet + STZ-Induced Type-2 Diabetes in C57BL/6 Mice. ACS Omega. 2020;6(1):492–504.
- Srinivasan K, Viswanad B, Asrat L, Kaul CL, Ramarao P. Combination of high-fat diet-fed and low-dose streptozotocin-treated rat: a model for type 2 diabetes and pharmacological screening. Pharmacol Res. 2005;52(4):313–320.
- Liu Y, Deng J, Fan D. Ginsenoside Rk3 ameliorates high-fat-diet/streptozocin-induced type 2 diabetes mellitus in mice via the AMPK/Akt signaling pathway. Food Funct. 2019;10(5):2538–2551.
- Hu RY, et al. AFG Ameliorates Diabetic Retinopathy through AMPK-Dependent Autolysosomal Pathway: From Network Pharmacology to In Vivo and In Vitro Validation. J Agric Food Chem. 2026;74(2):2124–2139.
- Reagan-Shaw S, Nihal M, Ahmad N. Dose translation from animal to human studies revisited. FASEB J. 2008;22(3):659–661.
- Zou Q, et al. Oxidative stress in diabetic retinopathy. Clin Chim Acta. 2026;584:120871.
- Clements JN, Mesawich J, Twisdale C. Current and Emerging Pharmacologic Therapies for Diabetic Retinopathy. Pharmacotherapy. 2026;46(3):e70119.
- Rezvani Z, Khani F, Afarid M, Asadian F, Takhshid MA. Clinical values of systemic inflammatory indices in diabetic retinopathy. Clin Exp Optom. 2026;109(3):371–385.
- Zhu Z, et al. Targeting the CMKLR1-Mediated Signaling Rebalances Immunometabolism State in Middle-Age Testicular Macrophages. Adv Sci (Weinh). 2026;13(14):e15166.
- Lin Y, et al. Epithelial chemerin-CMKLR1 signaling restricts microbiota-driven colonic neutrophilia and tumorigenesis by up-regulating lactoperoxidase. Proc Natl Acad Sci U S A. 2022;119(29):e2205574119.
- Puthanmadhom Narayanan S, et al. Epigenetic Alterations Are Associated With Gastric Emptying Disturbances in Diabetes Mellitus. Clin Transl Gastroenterol. 2020;11(3):e00136.
- Wang L, et al. Chemerin/CMKLR1 Axis Promotes the Progression of Proliferative Diabetic Retinopathy. Int J Endocrinol. 2021;2021:4468625.
- Zheng C, et al. α-NETA down-regulates CMKLR1 mRNA expression in ileum and prevents body weight gains collaborating with ERK inhibitor PD98059 in turn to alleviate hepatic steatosis in HFD-induced obese mice but no impact on ileal mucosal integrity and steatohepatitis progression. BMC Endocr Disord. 2023;23(1):9.
- Dranse HJ, et al. The impact of chemerin or chemokine-like receptor 1 loss on the mouse gut microbiome. PeerJ. 2018;6:e5494.
- Flores-Hernández E, et al. Canonical and non-canonical Wnt signaling are simultaneously activated by Wnts in colon cancer cells. Cell Signal. 2020;72:109636.
- Qi Y, et al. Heat-inactivated Bifidobacterium adolescentis ameliorates colon senescence through Paneth-like-cell-mediated stem cell activation. Nat Commun. 2023;14(1):6121.
- Ou W, et al. Cooperation of Wnt/β-catenin and Dll1-mediated Notch pathway in Lgr5-positive intestinal stem cells regulates the mucosal injury and repair in DSS-induced colitis mice model. Gastroenterol Rep (Oxf). 2024;12:goae090.
- Dong Y, et al. Berberine ameliorates DSS-induced intestinal mucosal barrier dysfunction through microbiota-dependence and Wnt/β-catenin pathway. Int J Biol Sci. 2022;18(4):1381–1397.
- Escandon P, et al. The role of peroxisome proliferator-activated receptors in healthy and diseased eyes. Exp Eye Res. 2021;208:108617.
- Blot G, et al. Perilipin 2-positive mononuclear phagocytes accumulate in the diabetic retina and promote PPARγ-dependent vasodegeneration. J Clin Invest. 2023;133(19):e161348.
- Zhou W, et al. TREM2-dependent activation of microglial cell protects photoreceptor cell during retinal degeneration via PPARγ and CD36. Cell Death Dis. 2024;15(8):623.
- Bala Kumar S, et al. Gut microbial metabolites targeting JUN in renal cell carcinoma via IL-17 signaling pathway: network pharmacology approach. Mol Divers. 2026;30(1):613–632.
- Wang L, et al. Gut microbial bile acid metabolite skews macrophage polarization and contributes to high-fat diet-induced colonic inflammation. Gut Microbes. 2020;12(1):1–20.
- Hagan T, et al. Antibiotics-Driven Gut Microbiome Perturbation Alters Immunity to Vaccines in Humans. Cell. 2019;178(6):1313–1328.e13.
- Meng Y, et al. Jinlida ameliorates diabetic kidney disease via gut microbiota-dependent production of pyridoxamine targeting renal AGEs/RAGE and TGF-β pathways. Phytomedicine. 2026;150:157744.
- Zhou H, Zhang L, Ding C, Zhou Y, Li Y. Upregulation of HMOX1 associated with M2 macrophage infiltration and ferroptosis in proliferative diabetic retinopathy. Int Immunopharmacol. 2024;134:112231.
- Mohammad HMF, et al. Neuroprotective effect of levetiracetam in mouse diabetic retinopathy: Effect on glucose transporter-1 and GAP43 expression. Life Sci. 2019;232:116588.
- Peng H, et al. Autophagy and senescence of rat retinal precursor cells under high glucose. Front Endocrinol (Lausanne). 2023;13:1047642.
- Ding Y, Chen L, Xu J, Feng Y, Liu Q. APAF1 Silencing Ameliorates Diabetic Retinopathy by Suppressing Inflammation, Oxidative Stress, and Caspase-3/GSDME-Dependent Pyroptosis. Diabetes Metab Syndr Obes. 2024;17:1635–1649.
- Yang T, et al. Clinical study on the modulating effects of Jiaotaiwan on the modulating effects of microbiota–SCFAs–neurotransmitter/immune axis in patients with depression. Acupunct Herb Med 2025;5(4):456–468.
- Luo XX, et al. Effect of qiming granule on retinal blood circulation of diabetic retinopathy: a multicenter clinical trial. Chin J Integr Med. 2009;15(5):384–388.
- Hu Z, et al. Add-on effect of Qiming granule, a Chinese patent medicine, in treating diabetic macular edema: A systematic review and meta-analysis. Phytother Res. 2021;35(2):587–602.
- Yang M, et al. The Efficacy and Safety of Qiming Granule for Dry Eye Disease: A Systematic Review and Meta-Analysis. Front Pharmacol. 2020;11:580.
- Ma XF, et al. Efficacy and Safety of Qiming Granule for Nerve Injury Associated with Non-proliferative Diabetic Retinopathy: A Multicenter, Randomized, Non-inferiority, Active-Controlled Clinical Trial. Chin J Integr Med. 2026;32(3):195–203.
- Zhou Q, et al. Qiming granules regulate Müller cell pyroptosis and the P2X7R/NLRP3 immune inflammatory pathway in diabetic retinopathy. Chin Med. 2026;21(1):89.
- Zhou L, Qin T, Lv Y, Wu Z. Qiming Granules Ameliorate Diabetic Retinopathy by Regulating the PI3K/Akt Signaling Pathway. J Ocul Pharmacol Ther. 2026;42(3):202–212.
- Li HD, Li MX, Zhang WH, Zhang SW, Gong YB. Effectiveness and safety of traditional Chinese medicine for diabetic retinopathy: A systematic review and network meta-analysis of randomized clinical trials. World J Diabetes. 2023;14(9):1422–1449.
- Chen F, et al. Isorhamnetin promotes functional recovery in rats with spinal cord injury by abating oxidative stress and modulating M2 macrophages/microglia polarization. Eur J Pharmacol. 2021;895:173878.
- Naudhani M, Thakur K, Ni ZJ, Zhang JG, Wei ZJ. Formononetin reshapes the gut microbiota, prevents progression of obesity and improves host metabolism. Food Funct. 2021;12(24):12303–12324.
- Qu Y, et al. Kaempferol Alleviates Murine Experimental Colitis by Restoring Gut Microbiota and Inhibiting the LPS-TLR4-NF-κB Axis. Front Immunol. 2021;12:679897.
- Saikia L, et al. Therapeutic Potential of Quercetin in Diabetic Neuropathy and Retinopathy: Exploring Molecular Mechanisms. Curr Top Med Chem. 2024;24(27):2351–2361.
- Yao H, et al. Kaempferol Protects Blood Vessels From Damage Induced by Oxidative Stress and Inflammation in Association With the Nrf2/HO-1 Signaling Pathway. Front Pharmacol. 2020;11:1118.
- Zhang HX, Li YY, Liu ZJ, Wang JF. Quercetin effectively improves LPS-induced intestinal inflammation, pyroptosis, and disruption of the barrier function through the TLR4/NF-κB/NLRP3 signaling pathway in vivo and in vitro. Food Nutr Res. 2022;66:10.