脊髓损伤中血浆LINC00707表达升高,通过miR-145-5p/TRAF6信号轴促进小胶质细胞介导的炎症和氧化应激。沉默LINC00707可减轻这些病理反应,凸显其作为治疗靶点的潜力。
研究文章
LINC00707 沉默可缓解脂多糖刺激的 BV2 小胶质细胞中的炎症与氧化应激 通过 脊髓损伤中的miR-145-5p/TRAF6轴
111 次观看
⸱
2026年9月11日
* These authors contributed equally
本文内容
摘要
摘要
脊髓损伤(SCI)会导致终身残疾,显著降低生活质量,并带来重大的社会经济负担。本研究通过调控miR-145-5p/TRAF6信号轴,探讨了LINC00707在脊髓损伤中的作用。采用RT-qPCR分析了30名健康受试者和75名脊髓损伤患者血浆中LINC00707、miR-145-5p和TRAF6的表达水平。评估了脊髓损伤患者血浆LINC00707水平与促炎因子之间的关联。将BV2小胶质细胞暴露于100 ng/mL的LPS中,并检测与炎症和氧化应激相关的因子。通过双荧光素酶报告基因实验评估分子相互作用。采用逻辑回归分析鉴定与LINC00707表达相关的因素。结果显示,脊髓损伤患者血浆中LINC00707和TRAF6水平升高,而miR-145-5p水平降低。血浆LINC00707水平与血浆炎症因子水平呈正相关。LINC00707可作为miR-145-5p的分子海绵,而TRAF6是miR-145-5p的靶基因。抑制LINC00707可降低BV2细胞中炎症因子、促氧化应激物质及TRAF6 mRNA的表达水平,而抑制miR-145-5p则产生相反效应。这些发现表明,LINC00707表达升高与脊髓损伤严重程度相关,且通过调控miR-145-5p/TRAF6信号轴,LINC00707的敲低可能缓解小胶质细胞介导的炎症和氧化应激。
引言
脊髓损伤(SCI)是一种损害脊髓的创伤性疾病,脊髓是中枢神经系统的关键组成部分。SCI 直接破坏了脊髓与大脑之间的神经传导通路,导致运动、感觉和自主神经功能出现严重障碍1,2。流行病学研究报道,其年发病率约为每10万人中5例,与疾病相关的死亡率高达16.7%3,4。一项加拿大调查显示,每位SCI患者的终身康复费用估计高达33.6万美元5。由于其高发病率、高死亡率以及诊断、治疗和康复所带来的巨大经济负担,脊髓损伤已成为亟需改进治疗策略的重大临床挑战。
脊髓损伤(SCI)的病理进展包括两个阶段:原发性损伤和继发性损伤。原发性损伤由外伤性机械压迫或脊髓组织破坏引起,而继发性损伤则由炎症和氧化应激等病理过程介导6,7。在生理条件下,小胶质细胞介导的神经炎症有助于维持中枢神经系统的稳态8,9,10。然而,在脊髓损伤后,小胶质细胞会过度活化,并释放大量促炎介质11,12。这些介质引发活性氧(ROS)的过度产生,导致神经元损伤和死亡,从而加重继发性脊髓损伤13,14。因此,抑制小胶质细胞的过度活化并阻断炎症级联反应,是促进神经功能恢复和改善脊髓损伤预后的有前景的治疗策略。
长链非编码RNA(lncRNA)是一类长度超过200个核苷酸、不具备蛋白质编码潜能的非编码RNA15。最初被认为是转录过程中的“噪音”,目前lncRNA已被认为是多种生理和病理过程的重要调控因子16。近期研究表明,lncRNA在神经损伤中发挥关键作用。长链基因间非编码RNA 707(LINC00707)已被确认为神经系统疾病的重要调控分子。既往研究报道,LINC00707通过增强小胶质细胞介导的炎症反应,加重创伤性脑损伤17。此外,Zhu et al. 研究表明,在PC12细胞中沉默LINC00707可显著减轻脂多糖(LPS)诱导的炎症反应和细胞凋亡18。这些发现为探讨LINC00707在脊髓损伤(SCI)中的作用提供了初步的理论依据。然而,LINC00707是否在SCI过程中调控小胶质细胞介导的炎症反应,仍有待阐明。
长链非编码RNA(lncRNA)通过竞争性内源RNA(ceRNA)机制发挥分子海绵作用,螯合微小RNA(miRNA),进而调控下游靶基因的表达19。这种调控模式广泛参与多种疾病的发病过程。值得注意的是,miR-145-5p在脊髓损伤(SCI)组织20以及脂多糖(LPS)诱导的损伤过程中显著下调21,而其过表达可有效减轻小胶质细胞的炎症反应和氧化应激反应22。肿瘤坏死因子受体相关因子6(TRAF6)在SCI病理过程中也发挥关键作用23,24,25。然而,LINC00707、miR-145-5p与TRAF6是否在SCI中发挥协同调控作用,仍有待阐明。
本研究中,LPS 刺激的小胶质细胞内 LINC00707 的表达显著上调。因此,我们假设 LINC00707 可能在小胶质细胞中发挥促炎性调控作用,而其表达下调可能减轻神经炎症反应,从而改善脊髓损伤(SCI)的病理进展。本研究旨在探讨 LINC00707 是否调控小胶质细胞的炎症反应,并参与 SCI 的发病机制。
方案
本研究经张家口第一医院伦理委员会批准(批准号:2024-KY-18)。所有参与者在入组前均被告知研究目的和潜在风险,并签署书面知情同意书。健康对照组的静脉血样在常规体检期间采集,脊髓损伤(SCI)患者的血样则在入院后立即采集。实验室检测由医院临床实验室完成。本方案中使用的研究工具列于材料表中。
1. 受试者
2023年1月至2025年1月期间,从张家口第一医院共招募75名脊髓损伤(SCI)患者。纳入标准为经计算机断层扫描(CT)或磁共振成像(MRI)确诊的脊髓损伤,且受伤至入院时间≤12小时。排除标准包括:过去6个月内有脊髓或脑部创伤或手术史;严重心血管疾病(包括心肌梗死或心律失常);妊娠或哺乳期;以及恶性肿瘤、肝肾功能障碍、严重脑血管疾病或感染性疾病。
根据美国脊髓损伤协会(American Spinal Injury Association, ASIA)神经学分类标准26,将75名脊髓损伤(SCI)患者分为神经功能正常组(n = 21)、不完全性SCI组(n = 36)和完全性SCI组(n = 18)。损伤部位分布如下:颈椎36.0%,胸椎30.7%,腰椎33.3%。另随机招募30名与研究人群相匹配的健康个体作为对照组。收集所有参与者的基线临床信息。健康个体的纳入标准为:无脊髓或脑部外伤、手术及神经系统疾病史;无慢性炎症性疾病、自身免疫性疾病或恶性肿瘤病史;无严重的心血管、肝脏或肾脏疾病;近4周内无急性或慢性感染;未处于妊娠或哺乳期;且年龄和性别与SCI组相匹配。
采用功能独立性评定量表(Functional Independence Measure, FIM)评估日常生活活动中的功能独立性。FIM 最高评分为 126 分。触觉感知、痛觉和运动评分用于评估感觉和运动功能。触觉感知和痛觉评分的最高分均为 112 分,运动评分的最高分为 100 分。评分越低,提示神经功能缺损越严重。
2. 细胞培养、模型构建与转染
永生化小鼠小胶质细胞 BV2 细胞系购自中国科学院上海生命科学研究院细胞资源中心。细胞培养于含 10% 胎牛血清(FBS)、青霉素(100 U/mL)和链霉素(100 U/mL)的高糖 Dulbecco 改良 Eagle 培养基(DMEM)中。细胞置于 37 °C、5% CO₂ 的湿化培养箱中培养。
在模型构建过程中,BV2细胞分别用0、10、20、50、100、150或200 ng/mL的脂多糖(LPS)刺激24小时。根据实验结果选择最佳LPS浓度。
进行转染时,将BV2细胞接种于6孔板中,待细胞达到适当汇合度后进行转染。按照生产商说明书,每孔使用1.5 µL转染试剂。转染6小时后,更换为新鲜培养基,细胞继续培养24小时。LINC00707敲低载体、相应的阴性对照、miR-145-5p寡核苷酸以及相应的对照寡核苷酸均以每孔50 nM的浓度使用。所有转染实验均独立重复至少5次,每次独立实验设置3个平行重复。数据采用至少5次独立实验的结果进行统计学分析。
3. ELISA
收集转染并经LPS刺激的BV2细胞的培养上清液,于12,000 × g 离心10分钟,使用相应的ELISA试剂盒检测白细胞介素-1β(IL-1β)、IL-6和肿瘤坏死因子-α(TNF-α)的水平。简言之,按照生产商说明书,依次与生物素化抗体、HRP-链霉亲和素结合物及TMB底物孵育进行检测。使用酶标仪在450 nm处读取吸光度值。根据标准曲线确定细胞因子水平。每个样本设三个复孔,共进行六次独立实验。
4. 活性氧检测
采用活性氧检测试剂盒检测脂多糖(LPS)刺激的BV2细胞内活性氧(ROS)水平。简言之,将细胞与10 µmol/L DCFH-DA在37 °C孵育20分钟。孵育结束后弃去上清液,用磷酸盐缓冲液(PBS)洗涤细胞3次,以去除多余的胞外探针。使用酶标仪在激发波长488 nm、发射波长525 nm条件下测定荧光强度。根据荧光强度计算相对ROS水平。所有样本均设三个重复孔,整个实验独立重复至少5次。
5. 丙二醛、超氧化物歧化酶和谷胱甘肽的检测
处理后的 BV2 细胞被收集,并制备细胞匀浆。样品在 12,000 转/分钟下离心 × g 10 分钟 4 °C 离心后收集上清液。根据制造商说明书,使用市售的丙二醛(MDA)、超氧化物歧化酶(SOD)和谷胱甘肽(GSH)检测试剂盒测定细胞上清液中这些物质的水平。所有样本均设三个重复孔进行检测,整个实验独立重复至少5次。
6. 双荧光素酶报告基因检测
将包含预测的 miR-145-5p 结合位点的 LINC00707 和 TRAF6 的 3' 非翻译区(3' UTR)片段及其相应的突变序列,分别克隆至 pmirGLO 荧光素酶报告载体中,构建野生型(WT-LINC00707 和 WT-TRAF6)和突变型(MUT-LINC00707 和 MUT-TRAF6)报告基因质粒。将报告基因质粒与 miR-145-5p 寡核苷酸共转染至 BV2 细胞中,并培养 24 小时。随后收集细胞,使用酶标仪检测萤火虫荧光素酶和海肾荧光素酶的活性。
7. RT-qPCR
使用RNA提取试剂提取总RNA。通过OD₂₆₀/OD₂₈₀比值评估RNA质量,比值在1.8至2.0之间视为合格。取约1 µg总RNA,使用逆转录试剂盒将其反转录为cDNA。采用SYBR Green PCR主混合液通过RT-qPCR定量基因表达。逆转录反应在42 °C下进行15分钟,随后在95 °C下灭活逆转录酶3分钟。合成的cDNA保存于−20 °C,待后续分析使用。定量实时PCR的程序为:95 °C预变性1分钟,随后进行40个循环,每个循环包括95 °C变性5秒,以及60 °C退火和延伸15秒。每个退火和延伸步骤结束时采集荧光信号。熔解曲线分析程序为:95 °C保持15秒,随后60 °C保持1分钟。相对表达水平采用2⁻ΔΔCt法计算。GAPDH或5S用作基因表达归一化的内参。引物序列如下:LINC00707,上游引物5'-CCAACAGGGTATCAGAATTCTC-3',下游引物5'-TGCTGACAATAGCCATTAGG-3';miR-145-5p,上游引物5'-GCCGAGGTCCAGTTTTCCCA-3',下游引物5'-CTCAACTGGTGTCGTGGA-3';TRAF6,上游引物5'-ATTACAACTGAGGTGCTTCT-3',下游引物5'-GCATCTGGTTCTGTTATAGGA-3';GAPDH,上游引物5'-ATCCCATCACCATCTTCCAGG-3',下游引物5'-CGCCCCACTTGATTTTGG-3';5S,上游引物5'-TCGTCTGATCTCGGAAGCTAA-3',下游引物5'-AAGCCTACAGCACCCGGTAT-3'。
8. 统计学分析
采用统计学软件进行统计分析。使用Shapiro-Wilk检验评估数据分布的正态性,P > 0.05表示符合正态分布。正态分布的数据以均值 ± 标准差(SD)表示,非正态分布的数据以中位数(第25百分位数,第75百分位数)表示。对于符合正态分布的连续变量,两组之间的比较采用Student t检验,多组之间的比较采用单因素方差分析(one-way ANOVA),随后进行Tukey事后检验。对于非正态分布的数据,两组比较采用Mann-Whitney U检验,多组比较采用Kruskal-Wallis检验。组间分类变量的比较采用卡方检验。采用单因素和多因素logistic回归分析评估与LINC00707表达相关的临床因素。连续变量以队列中位数为界进行二分类(高值组 = 1;低值组 = 0)。在单因素logistic回归分析中P < 0.05的变量被纳入多因素logistic回归分析。结果以比值比(OR)及其95%置信区间(CI)表示,OR > 1表示正相关,OR < 1表示负相关。所有细胞表型实验均包含至少4次独立的生物学重复,每次生物学重复包含3次技术重复。P < 0.05被认为具有统计学显著性。
结果
脊髓损伤(SCI)患者的血浆LINC00707水平升高
分析了30名健康受试者和75名脊髓损伤(SCI)患者的基本临床特征。与健康受试者相比,SCI患者触觉、痛觉、运动功能以及功能独立性评定(FIM)评分显著降低,提示感觉和运动功能受损。此外,SCI患者血清中促炎性细胞因子水平显著高于健康对照组(表1,P < 0.001),表明炎症反应增强。
| 项目 | HS | SCI | P值 |
| (n=30) | (n=75) | ||
| 年龄(岁) | 45.83±10.06 | 46.17±9.92 | 0.786 |
| BMI(kg/m2) | 22.82±1.57 | 23.94±1.29 | 0.69 |
| 性别(男性,n) | 18 | 41 | 0.619 |
| 吸烟(n) | 11 | 28 | 0.949 |
| 饮酒(n) | 14 | 33 | 0.804 |
| SCI的ASIA分类(n) | / | ||
| 完全性SCI | / | 18 | |
| 不完全性SCI | / | 36 | |
| 正常神经功能 | / | 21 | |
| SCI损伤节段(n,%) | / | ||
| 颈椎 | / | 27 (36.0%) | |
| 胸椎 | / | 23 (30.7%) | |
| 腰椎 | / | 25 (33.3%) | |
| 触觉感觉评分 | / | 53.42±22.12 | |
| 痛觉评分 | / | 53.39±24.68 | |
| 运动评分 | / | 49.07±18.74 | |
| 功能独立性评定量表评分 | / | 71.33±19.41 | |
| IL-1β (pg/mL) | 1.47±0.52 | 52.21±11.32 | <0.001 |
| IL-6 (pg/mL) | 2.14±0.97 | 88.47±23.52 | <0.001 |
| TNF-α (pg/mL) | 2.84±1.13 | 61.09±18.24 | <0.001 |
| CRP (mg/L) | 1.42±0.63 | 62.67±21.85 | <0.001 |
| 缩写:HS,健康受试者;SCI,脊髓损伤;BMI,体重指数;ASIA,美国脊髓损伤协会;FIM,功能独立性评定量表;IL,白细胞介素;TNF,肿瘤坏死因子;CRP,C反应蛋白。 | |||
表1:健康受试者与脊髓损伤患者基线临床特征的比较。 本表比较了健康受试者与脊髓损伤患者在人口统计学特征、神经功能评分、损伤相关变量以及炎症标志物水平方面的差异。缩写:HS,健康受试者;SCI,脊髓损伤;ASIA,美国脊髓损伤协会;FIM,功能独立性评定量表;IL,白细胞介素;TNF,肿瘤坏死因子;CRP,C反应蛋白。
采用 RT-qPCR 检测血浆中 LINC00707 的表达水平。与健康受试者相比,脊髓损伤(SCI)患者血浆 LINC00707 表达显著升高(图1A, P < 0.001)。受试者工作特征(ROC)曲线分析初步表明,LINC00707的表达水平在区分脊髓损伤患者与健康受试者方面可能具有一定的判别价值(图1B)。此外,血浆中LINC00707的表达水平随着脊髓损伤(SCI)临床严重程度的增加而升高(图1C, P < 0.001)。相关性分析显示,血浆中LINC00707的表达与IL-1β呈正相关(r = 0.635, P < 0.001),IL-6(r = 0.612, P < 0.001),TNF-α(r = 0.675, P < 0.001)以及C反应蛋白(CRP; r = 0.611, P < 0.001)水平(图1D–G这些发现表明,LINC00707 表达水平升高与脊髓损伤患者中的炎症反应相关。
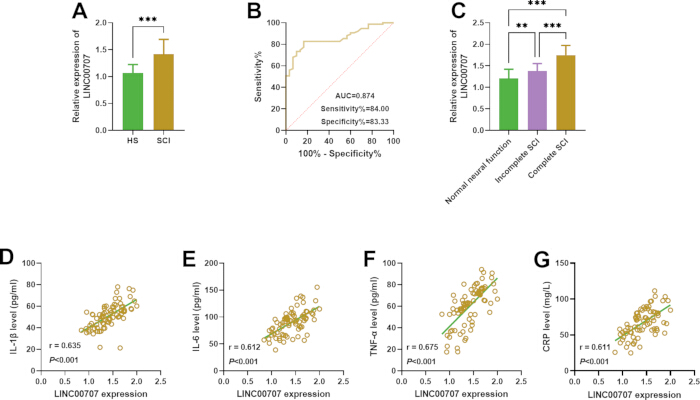
图 1:血浆 LINC00707 表达水平及其与血浆炎症因子的相关性。(A)脊髓损伤(SCI)患者血浆 LINC00707 的表达水平高于健康受试者。采用独立样本 t 检验进行统计分析。(B)受试者工作特征(ROC)曲线分析初步提示,LINC00707 表达水平可能有助于区分 SCI 患者与健康受试者。(C)根据美国脊髓损伤协会(ASIA)分类,血浆 LINC00707 表达水平随 SCI 严重程度增加而升高。采用单因素方差分析(one-way ANOVA)结合 Tukey’s HSD 事后检验进行统计分析。(D–G)血浆 LINC00707 表达水平与炎症因子水平呈正相关。 采用 Pearson 相关性分析进行统计分析。*P < 0.01 且 **P < 0.001。健康受试者,n = 30;SCI 患者,n = 75。数据以均值 ± 标准差表示。 请点击此处查看该图的放大版本。
采用单变量和多变量逻辑回归分析与 LINC00707 表达相关的因素
通过单变量和多变量逻辑回归分析,识别与 LINC00707 表达相关的因素。单变量分析显示,脊髓损伤的 ASIA 分类(OR = 3.912,95% CI:1.792–8.537,P < 0.001)、FIM 评分(OR = 0.281,95% CI:0.108–0.729,P = 0.009)和 C 反应蛋白(CRP)水平(OR = 4.600,95% CI:1.724–12.271,P = 0.002)与 LINC00707 表达相关。在调整潜在混杂变量后,多变量逻辑回归分析表明,脊髓损伤的 ASIA 分类(OR = 2.598,95% CI:1.088–6.203,P = 0.032)、FIM 评分(OR = 0.303,95% CI:0.102–0.902,P = 0.032)和 CRP 水平(OR = 3.202,95% CI:1.024–10.015,P = 0.045)是与 LINC00707 表达独立相关的因素(表 2)。更严重的 ASIA 分类和升高的 CRP 水平与较高的 LINC00707 表达相关,而较高的 FIM 评分则与较低的 LINC00707 表达相关。这些关联进一步支持 LINC00707 参与脊髓损伤病理过程的可能性。
| 项目 | 单变量回归分析 | 多变量回归分析 | ||||
| OR | 95% CI | P-值 | OR | 95% CI | P-值 | |
| 年龄 | 1.176 | 0.475-2.914 | 0.725 | |||
| 性别 | 1.303 | 0.524-3.240 | 0.57 | |||
| 脊髓损伤的ASIA分类 | 3.912 | 1.792-8.537 | <0.001 | 2.598 | 1.088-6.203 | 0.032 |
| 脊髓损伤的ASIA分类 | 0.588 | 0.497-1.480 | 0.582 | |||
| 触觉评分 | 0.85 | 0.343-2.105 | 0.725 | |||
| 痛觉评分 | 0.854 | 0.345-2.119 | 0.734 | |||
| 运动评分 | 0.392 | 0.153-1.006 | 0.051 | |||
| FIM评分 | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.233 | 0.567 | |||
| CRP | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| 缩写:OR,比值比;CI,置信区间;ASIA,美国脊髓损伤协会;FIM,功能独立性评定;IL,白细胞介素;TNF,肿瘤坏死因子;CRP,C反应蛋白。 | ||||||
表2:与LINC00707表达相关的因素的逻辑回归分析。 本表展示了用于识别脊髓损伤患者中与LINC00707表达相关的临床因素的单变量和多变量逻辑回归分析结果。结果以比值比(OR)及其95%置信区间和相应的P值表示。缩写:OR,比值比;CI,置信区间;ASIA,美国脊髓损伤协会;FIM,功能独立性评定量表;IL,白细胞介素;TNF,肿瘤坏死因子;CRP,C反应蛋白。
LINC00707 沉默减轻了脂多糖刺激的 BV2 细胞中的炎症和氧化应激
BV2细胞用不同浓度的LPS(0、10、20、50、100、150或200 ng/mL)处理。RT-qPCR分析显示,经100、150和200 ng/mL LPS处理后,LINC00707的表达显著上调图 2A, P < 0.001, n = 6)。根据这些发现及以往的报道27˒28,选择100 ng/mL LPS以建立 体外 SCI模型中,与对照组相比,LPS刺激的BV2细胞中LINC00707表达显著升高。转染si-LINC00707可有效抑制LINC00707的表达(图2B, P < 0.001, n = 6).
随后评估了LINC00707基因沉默对炎症和氧化应激的影响。脂多糖(LPS)刺激显著增加了白细胞介素-1β(IL-1β)的分泌(图2C,P < 0.001,n = 5)、白细胞介素-6(IL-6)的分泌(图2D,P < 0.001,n = 5)、肿瘤坏死因子-α(TNF-α)的分泌(图2E,P < 0.001,n = 5),以及细胞内活性氧(ROS)水平(图2F,P < 0.001,n = 6)和丙二醛(MDA)含量(图2G,P < 0.001,n = 5)。相反,LPS刺激显著降低了抗氧化标志物超氧化物歧化酶(SOD)的水平(图2H,P < 0.001,n = 6)和谷胱甘肽(GSH)的水平(图2I,P < 0.001,n = 5)。在LPS刺激的BV2细胞中,沉默LINC00707显著降低了促炎细胞因子的分泌和促氧化应激标志物的水平,同时恢复了抗氧化物质的水平。这些结果表明,LINC00707基因敲低可减轻LPS诱导的BV2细胞炎症反应和氧化应激。
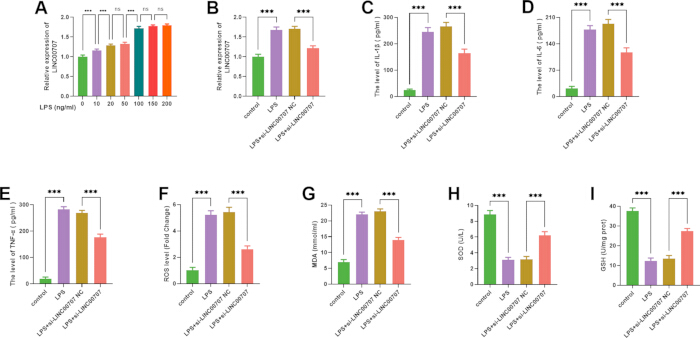
图2:LINC00707 沉默对LPS刺激的BV2细胞中炎症和氧化应激的影响。BV2细胞用100 ng/mL脂多糖(LPS)进行刺激。(A) 通过RT-qPCR检测不同浓度LPS处理的BV2细胞中LINC00707的表达水平。(B) LPS组中LINC00707表达升高,而转染si-LINC00707后表达降低。(C–E) ELISA结果显示,LPS组中促炎因子的分泌增加,而LINC00707沉默后分泌减少。(F–G) LPS组中活性氧(ROS)水平和丙二醛(MDA)含量升高,LINC00707沉默后降低。(H–I) LPS组中超氧化物歧化酶(SOD)活性和还原型谷胱甘肽(GSH)水平降低,而LINC00707沉默后升高。 **P < 0.001;ns,无显著性差异。n ≥ 5。采用单因素方差分析(one-way ANOVA)进行统计分析,随后进行Tukey’s HSD事后检验。数据以均值±标准差表示。 请点击此处查看该图的放大版本。
LINC00707 作为 miR-145-5p 的分子海绵发挥作用
为了探究 LINC00707 生物学功能的分子机制,使用 ENCORI 数据库预测其潜在的靶向 miRNA。生物信息学分析发现 LINC00707 与 miR-145-5p 之间存在互补结合序列(图 3A)。双荧光素酶报告基因实验显示,在转染 WT-LINC00707 构建体的情况下,miR-145-5p 模拟物显著降低了荧光素酶活性,而 miR-145-5p 抑制剂则使其升高;相比之下,miR-145-5p 模拟物或抑制剂对 MUT-LINC00707 构建体的荧光素酶活性均无影响(图 3B,P < 0.001,n = 4),证实了 LINC00707 与 miR-145-5p 之间的直接相互作用。
RT-qPCR 分析显示,与健康受试者相比,脊髓损伤患者血浆中 miR-145-5p 的表达显著降低(图3C, P < 0.001)。此外,LINC00707 的表达与 miR-145-5p 的表达呈负相关(图3D, P < 0.001),且血浆miR-145-5p水平随着脊髓损伤(SCI)严重程度的增加而逐渐降低(图3E, P < 0.001). 体外,与对照组细胞相比,LPS 刺激的 BV2 细胞中 miR-145-5p 表达显著降低,而 LINC00707 敲低可恢复 miR-145-5p 的表达(图3F, P < 0.001, n = 6)。这些发现表明,LINC00707 通过吸附 miR-145-5p 发挥竞争性内源 RNA(ceRNA)功能,从而在脊髓损伤(SCI)的病理进展过程中调控其表达。
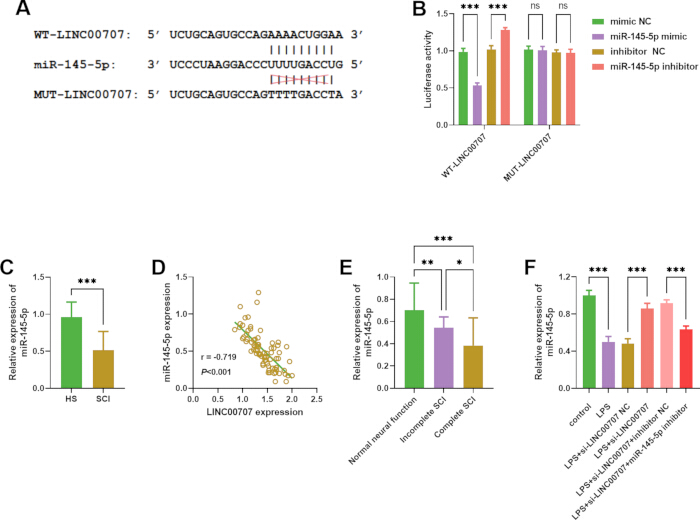
图3LINC00707 作为 miR-145-5p 的分子海绵发挥作用。(A) ENCORI 数据库预测了 LINC00707 与 miR-145-5p 之间存在互补结合序列。 (B) 双荧光素酶报告基因实验验证了 LINC00707 与 miR-145-5p 之间的相互作用。统计分析采用双因素方差分析,随后进行 Tukey HSD 事后检验。 (C) RT-qPCR结果显示,脊髓损伤患者血浆中miR-145-5p的表达水平降低。采用独立样本t检验进行统计分析。 (D) LINC00707 的表达水平与脊髓损伤患者中 miR-145-5p 的表达水平呈负相关。采用 Pearson 相关性分析进行统计学分析。 (E) 根据ASIA分级,血浆miR-145-5p表达水平随脊髓损伤(SCI)严重程度增加而降低。采用单因素方差分析(one-way ANOVA)进行统计学分析,随后进行Tukey’s HSD事后检验。 (F) LPS组中miR-145-5p的表达降低,转染si-LINC00707后表达升高,而转染miR-145-5p抑制剂后表达降低。统计学分析为 采用单因素方差分析(one-way ANOVA)进行检验,随后进行 Tukey’s HSD 事后检验. P < 0.05,*P < 0.01,以及 **P < 0.001;ns,无显著性差异。健康受试者,n = 30;脊髓损伤患者,n = 75;细胞实验,n ≥ 4。数据以均值 ± 标准差表示。 请点击此处以查看此图的放大版本。
miR-145-5p 抑制增强了 LPS 刺激的 BV2 细胞中的炎症反应和氧化应激
为探究 miR-145-5p 的作用,将 BV2 细胞转染 miR-145-5p 抑制剂或相应的阴性对照。随后评估了炎症因子和氧化应激标志物的水平。与抑制剂阴性对照组相比,miR-145-5p 抑制显著增加了 IL-1β 的分泌(图 4A,P < 0.001,n = 5)、IL-6(图 4B,P < 0.001,n = 5)和 TNF-α(图 4C,P < 0.001,n = 5)。此外,细胞内 ROS 水平(图 4D,P < 0.001,n = 6)和 MDA 含量(图 4E,P < 0.001,n = 5)显著升高,而 SOD(图 4F,P < 0.001,n = 6)和 GSH 水平(图 4G,P < 0.001,n = 5)显著降低。这些结果表明,miR-145-5p 抑制可逆转 LINC00707 沉默对 LPS 诱导的 BV2 细胞炎症反应和氧化应激的保护作用。
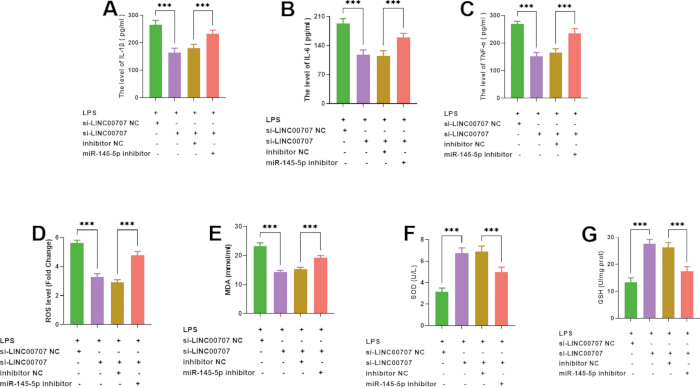
图4:miR-145-5p 抑制对 BV2 细胞炎症和氧化应激的影响。(A–C)ELISA 结果显示,转染 miR-145-5p 抑制剂后,促炎因子的分泌显著增加。(D–E)转染 miR-145-5p 抑制剂后,活性氧(ROS)水平和丙二醛(MDA)含量显著升高。(F–G)转染 miR-145-5p 抑制剂后,超氧化物歧化酶(SOD)活性和谷胱甘肽(GSH)水平显著降低。**P < 0.001。n ≥ 5。采用单因素方差分析(one-way ANOVA)进行统计分析,随后进行 Tukey’s HSD 事后检验。数据以均值 ± 标准差表示。 请点击此处查看该图的放大版本。
TRAF6 被鉴定为 miR-145-5p 的靶基因
miRDB 数据库预测 TRAF6 是 miR-145-5p 的潜在靶点。在 TRAF6 的 3′ 非翻译区(UTR)与 miR-145-5p 之间鉴定出互补结合序列(图 5A)。双荧光素酶报告基因实验显示,在转染 miR-145-5p 模拟物后,野生型 TRAF6(WT-TRAF6)载体的荧光素酶活性显著降低,而转染 miR-145-5p 抑制剂后活性升高。相反,两种处理对突变型 TRAF6(MUT-TRAF6)载体的荧光素酶活性均无影响(图 5B,P < 0.001,n = 4),证实 TRAF6 是 miR-145-5p 的直接靶基因。
RT-qPCR 分析显示,脊髓损伤(SCI)患者血浆中 TRAF6 mRNA 的表达水平显著升高(图5C, P < 0.001)。TRAF6 表达与 miR-145-5p 表达呈负相关(图5D, P < 0.001),且血浆TRAF6 mRNA水平随SCI严重程度增加而升高(图5E, P < 0.001). 体外,与对照组相比,LPS 刺激的 BV2 细胞中 TRAF6 表达显著升高,但在 LINC00707 敲低后显著降低(图5F, P < 0.001, n = 6)。相反,抑制 miR-145-5p 可恢复 TRAF6 的表达(图 5G, P < 0.001, n = 6)。这些结果表明,LINC00707 通过 miR-145-5p 信号通路调控 TRAF6 的表达。
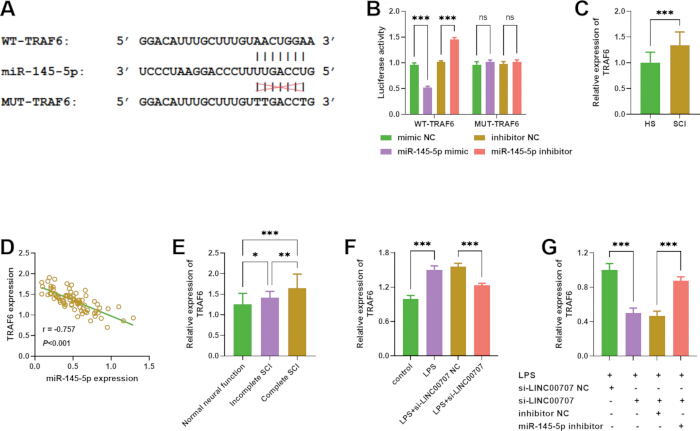
图 5:TRAF6 是 miR-145-5p 的靶基因。(A)miRDB 数据库预测了 TRAF6 与 miR-145-5p 之间的互补结合序列。(B)双荧光素酶报告基因实验验证了 TRAF6 与 miR-145-5p 之间的靶向关系。采用双因素方差分析,随后进行 Tukey HSD 事后检验进行统计分析。(C)RT-qPCR 显示,脊髓损伤(SCI)患者血浆中 TRAF6 的表达升高。采用独立样本 t 检验进行统计分析。(D)在脊髓损伤患者中,血浆 TRAF6 表达水平与 miR-145-5p 表达水平呈负相关。采用 Pearson 相关性分析进行统计分析。(E)根据 ASIA 分类,血浆 TRAF6 表达水平随脊髓损伤严重程度增加而升高。采用单因素方差分析,随后进行 Tukey HSD 事后检验进行统计分析。(F)在 LPS 刺激的 BV2 细胞中,TRAF6 表达升高,而在 LINC00707 敲低后表达降低。采用单因素方差分析,随后进行 Tukey HSD 事后检验进行统计分析。(G)抑制 miR-145-5p 后,TRAF6 表达升高。采用单因素方差分析,随后进行 Tukey HSD 事后检验进行统计分析。P < 0.05,*P < 0.01,**P < 0.001;ns,无显著性差异。健康对照组,n = 30;脊髓损伤患者组,n = 75;细胞实验,n ≥ 4。数据以均值 ± 标准差表示。 请点击此处查看该图的放大版本。
数据可用性:
本研究生成和/或分析的数据集可在 Zenodo 仓储中获取:https://doi.org/10.5281/zenodo.21470454。
讨论
脊髓损伤(SCI)是一种严重的中枢神经系统创伤性疾病,可导致脊髓神经传导功能受损或完全丧失,进而引发终身性的运动、感觉和自主神经功能障碍,以及显著的生理和心理后果29˒30。这些功能障碍的严重程度通常随脊髓损伤范围的扩大而加重。在本研究中,SCI患者血浆中LINC00707的表达水平升高,并与循环中促炎性细胞因子水平呈正相关,提示LINC00707可能在SCI相关的炎症反应和氧化应激过程中发挥一定作用。基于这些临床发现,我们进一步探讨了LINC00707在脂多糖(LPS)处理的BV2细胞中对炎症反应和氧化应激的调控作用,以阐明其在SCI发病机制中的潜在角色。
LINC00707 通过调控多种信号通路参与了多种生物学过程31。除了调控细胞增殖、凋亡、迁移和侵袭外,LINC00707 还被证实参与炎症反应和氧化应激过程18˒32˒33。既往研究报道,LINC00707 在肺癌34、乳腺癌35、宫颈癌36和肝癌37中表达升高,通过调控下游分子靶点促进疾病进展。此外,沉默 LINC00707 可通过调控 miR-103a-3p 促进骨髓间充质干细胞的成骨分化38。Zou et al. 进一步证明,LINC00707 可促进 LPS 诱导的 MRC-5 细胞炎症反应,支持其促炎作用33。与这些发现一致,本研究显示,在 LPS 刺激的 BV2 细胞中,LINC00707 表达显著升高,而敲低 LINC00707 可减少促炎细胞因子和氧化应激标志物的产生。这些结果进一步支持 LINC00707 参与炎症反应和氧化应激过程。
LINC00707 在多种病理条件下,如风湿性心脏病39、膀胱癌40和成骨分化41中,已被报道可通过调控 miR-145-5p 作为竞争性内源 RNA(ceRNA)发挥作用。既往研究表明,miR-145-5p 通过抑制炎症和氧化应激42˒43,以及促进血管生成和神经修复44˒45,在脊髓损伤(SCI)中发挥保护作用。与这些发现一致,本研究显示,SCI 患者及脂多糖(LPS)刺激的 BV2 细胞中,血浆 miR-145-5p 表达水平均降低。本研究进一步证实 LINC00707 可直接与 miR-145-5p 相互作用,且沉默 LINC00707 可恢复 miR-145-5p 的表达水平。此外,抑制 miR-145-5p 可逆转 LINC00707 沉默对炎症反应和氧化应激的保护作用。这些结果提示,LINC00707 可能通过调控 miR-145-5p 介导的炎症和氧化应激反应,促进 SCI 的进展。
既往研究表明,TRAF6在中枢神经系统疾病中发挥重要作用46。另有证据表明,抑制TRAF6可显著改善脊髓损伤(SCI)47˒48。本研究进一步确认TRAF6是miR-145-5p的直接靶点。在脊髓损伤患者及LPS刺激的BV2细胞中,TRAF6表达显著升高。此外,LINC00707敲低可降低TRAF6表达,而抑制miR-145-5p则可恢复TRAF6表达。这些结果提示,在脊髓损伤过程中,LINC00707可能通过miR-145-5p调控TRAF6的表达。
本研究表明,LINC00707 可能通过调控 miR-145-5p/TRAF6 信号轴,影响脊髓损伤(SCI)过程中小胶质细胞介导的炎症反应和氧化应激损伤。该发现与 Zhu 之前的研究报道一致 等,他们证明了LINC00707敲低可缓解LPS诱导的PC-12细胞炎症和凋亡;然而,该研究中涉及的潜在机制是miR-30a-5p/Neurod1轴18综上所述,这些发现表明LINC00707可能并非通过单一的miRNA靶点发挥作用,而是以细胞类型依赖的方式通过不同的miRNA调控网络参与脊髓损伤(SCI)的病理过程。
本研究存在若干局限性。首先,仅检测了TRAF6 mRNA的表达水平,而未考察其蛋白表达。未来的研究应包含蛋白水平的验证,例如通过Western blot分析,以进一步明确LINC00707、miR-145-5p与TRAF6之间的调控关系。其次,本研究仅在细胞水平进行,采用脂多糖(LPS)刺激的BV2小胶质细胞模型,未开展动物实验或临床样本验证,因此结果的体内适用性尚待进一步探讨。 体内 验证。鉴于脊髓损伤微环境的复杂性,目前的研究结果可能无法完全重现其病理生理条件 体内LINC00707 是否在脊髓损伤(SCI)动物模型中发挥类似的促炎作用仍有待证实。未来的研究将建立 SCI 动物模型,以验证 LINC00707 的调控作用及其潜在的分子机制。第三,尽管我们的结果表明 LINC00707 通过 miR-145-5p/TRAF6 信号通路影响炎症反应,但尚不清楚 LINC00707 是否仅作为特定 miRNA 的分子海绵,或是否还能直接与某些蛋白质结合。需要进一步研究以阐明这些作用机制的细节。第四,ROC 曲线分析基于单个医疗中心且患者数量相对较少的数据,这可能引入偏倚,使研究结果具有初步性质。未来需要开展纳入更多患者的多中心大样本研究,以确认所鉴定生物标志物的诊断潜力。
本研究结果表明,LINC00707 可能作为一种潜在的探索性血浆生物标志物及脊髓损伤(SCI)的治疗靶点。然而,将这些发现转化为临床应用还需经历多个步骤。首先,应在更大规模的多中心队列、独立验证队列以及相关的创伤或炎症对照组中,评估血浆 LINC00707 的潜在鉴别价值。目前,临床评估和影像学检查仍是诊断脊髓损伤的主要方法。其次,应通过动物模型评估靶向 LINC00707 的治疗潜力,以验证其有效性和安全性。最终,调控 LINC00707/miR-145-5p/TRAF6 信号通路可能为减轻脊髓损伤患者神经炎症和氧化应激提供一种新策略,但要实现从实验室到临床的转化,仍有大量工作需要完成。
总体而言,脊髓损伤(SCI)患者及脂多糖(LPS)刺激的BV2细胞中,LINC00707和TRAF6的表达升高,而miR-145-5p的表达降低。LINC00707的敲低通过miR-145-5p/TRAF6信号轴减轻了炎症反应和氧化应激,提示该调控通路可能成为SCI的潜在治疗靶点。
披露
作者声明不存在任何竞争利益。
致谢
本工作由河北省医学科学研究项目(项目编号:20251479)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 微量离心管 | KIRGEN | KG2211 | 聚丙烯扣盖离心管,无DNase/RNase,无热原,最大离心力20,000 × g,用于RNA/蛋白质样品的保存和离心。 |
| 6孔细胞培养板 | 康宁 | 3516 | 经TC处理的聚苯乙烯平底培养板,无菌,独立包装;每孔体积为16.8 mL,生长面积为9.5 cm² |
| 采血针 | Becton, Dickinson and Company | 367283 | BD Vacutainer 一次性采血针。双端针设计,一端用于静脉穿刺,另一端连接持针器和真空采血管,适用于多管采血。针体硅化涂层处理,可减少穿刺时患者的不适感。 |
| 采血管 | Becton, Dickinson and Company | 367605 | BD Vacutainer 真空采血管。不同颜色编码的管塞表示含有不同的添加剂,对应特定的实验室检测项目。 |
| BV2 永生化小鼠小胶质细胞系 | 中国科学院上海生物技术研究所细胞资源中心 | RRID: CVCL_0182 | 稳定表达小胶质细胞特异性标志物(Iba1、CD11b、F4/80)的永生化小鼠小胶质细胞系。经LPS刺激后,BV2细胞可分泌促炎性细胞因子(IL-1β, IL-6, TNF-α)并积累细胞内活性氧(ROS)、丙二醛(MDA),以模拟脊髓损伤后体内小胶质细胞的炎症激活。细胞培养于含10%胎牛血清(FBS)和1× 青霉素-链霉素,维持于 37 °C 含5% CO2 湿润培养箱;当细胞融合度达到70%时传代–80% 汇合度,以避免过度激活。 |
| 细胞丙二醛(MDA)检测试剂盒 | 南京建成生物工程研究所 | A003-4-2 | 基于微孔板的比色法试剂盒,用于定量检测细胞内丙二醛(MDA),即脂质过氧化的标志物。MDA 在加热条件下与硫代巴比妥酸(TBA)反应生成红色加合物,通过微孔板分光光度计在 532 nm 处检测吸光度。该试剂盒优化适用于细胞裂解液样本,支持高通量 96 孔板操作,线性定量范围覆盖小胶质细胞中低至中等程度的脂质氧化水平。 关键词:丙二醛,脂质过氧化,比色法,微孔板,TBA,MDA,微胶质细胞,细胞裂解液,高通量检测 |
| CO2 培养箱 | 赛默飞世尔科技 | 3111 | 加湿式水套 CO2 184 L 内腔容积的培养箱,IR CO₂2 传感器,高效微粒空气(HEPA)过滤系统,以最大限度减少微生物污染。维持稳定的培养环境于 37 °C,5% CO₂2 以及长期贴壁细胞培养所需的饱和湿度。 |
| 双荧光素酶报告基因检测试剂盒 | 碧云天生物技术 | RG028 | 该双荧光素酶检测试剂盒可对细胞裂解液中的萤火虫荧光素酶和海肾荧光素酶进行连续定量检测。首先使用荧光素底物检测萤火虫荧光素酶信号;随后加入的海肾检测试剂含有强效淬灭剂,可消除 >99.9% 的海肾荧光素酶信号残留,确保使用腔肠素底物时获得纯净的Renilla信号读数。试剂盒包含专用于贴壁细胞裂解的细胞裂解缓冲液,适用于96孔微孔板 luminometer 检测。荧光素酶试剂为预混液体,可直接使用;依次记录荧光素酶(Firefly)和海肾荧光素酶(Renilla)的发光值,用于计算标准化的相对荧光素酶活性(Firefly/Renilla 比值),以验证 ceRNA 靶点。 |
| 杜尔贝科改良伊格尔培养基 | Gibco | 11995065 | DMEM 是一种广泛使用的基础培养基,用于支持多种不同哺乳动物细胞的生长。该配方含有高糖、L-谷氨酰胺、酚红和丙酮酸钠。使用时需添加补充物,通常添加 10% 胎牛血清(FBS),并在 5% CO₂ 环境中培养。–10% CO2 环境以维持生理pH。 |
| 胎牛血清 | 每一种绿色 | 13011-8611 | 优质级胎牛血清,低内毒素,无支原体 & 噬菌体阴性,以10% v/v的比例添加至DMEM中以支持细胞生长。 |
| GraphPad Prism 版本 9 | GraphPad Software,美国加利福尼亚州圣地亚哥 | NA | 专为体外细胞实验数据设计的科学绘图与统计分析软件。所有原始qPCR、ELISA、氧化应激、双荧光素酶发光吸光度值均导入Prism 9进行正态性检验、参数/非参数组间比较、生成全部定量图表、计算均值 ± 标准差(SD)、精确的 P 值和 95% 置信区间(CI),并导出符合期刊发表标准的高分辨率(300 dpi)图像。所有图表的原始 .prism 项目源文件均已按要求存入公共数据存储库。 |
| IBM SPSS Statistics 版本 26.0 | IBM 公司,阿蒙克,纽约州,美国 | NA | 用于临床样本基线数据整理、正态性检验(Shapiro-Wilk检验)、独立/非配对t检验以及单因素方差分析(Tukey法)的综合性统计软件包’采用多重比较校正、曼-惠特尼U非参数检验,并对所有人类和细胞定量数据集计算精确P值及95%置信区间。所有临床患者的 demographics(人口统计学)和实验室数据均在此平台上进行处理和分析。 |
| IL-1β SimpleStep ELISA 试剂盒 | Abcam | ab255730 | 该单次洗涤型夹心比色ELISA试剂盒采用专有的SimpleStep技术,可在90分钟内完成整个检测流程。用于定量检测大鼠白细胞介素-1β 在细胞培养上清液、血清、EDTA/柠檬酸盐/肝素抗凝血浆样本中,检测灵敏度可达26.58 pg/mL,线性定量范围为54.69–3500 pg/mL。包含预包被的可拆卸8孔条状微孔板。通过微孔板读数仪在450 nm处检测吸光度信号,用于计算IL-1β 浓度 |
| IL-6 SimpleStep ELISA 试剂盒 | Abcam | ab234570 | 一种优化用于定量检测细胞培养上清液、血清以及柠檬酸盐/EDTA/肝素抗凝血浆样本中大鼠白细胞介素-6(IL-6)的夹心比色法SimpleStep ELISA试剂盒。采用一步孵育和单次洗涤流程,将总检测时间缩短至90分钟,检测灵敏度为43 pg/mL,线性定量范围为125 pg/mL至8000 pg/mL。试剂盒包含预包被的可拆卸8孔条状微孔板,使用酶标分光光度计在450 nm处读取吸光度值,用于最终IL-6浓度计算。 关键词:ELISA试剂盒,夹心法,比色法,IL-6,白细胞介素-6,大鼠,细胞培养上清液,血清,血浆,柠檬酸盐,EDTA,肝素,定量检测,微孔板,450 nm吸光度 |
| 96 孔白色 LightCycler 多孔板 | 罗氏生命科学,瑞士 | 4729692001 | 半裙边白色聚丙烯96孔反应板,专为LightCycler 96实时荧光定量PCR仪优化设计。白色孔壁可降低背景荧光干扰,增强信号反射,从而提高低丰度转录本的检测灵敏度。均一的薄壁设计确保所有孔位具有稳定的热传导性能,适用于10至 50 μL无DNase/RNase且无内毒素,适用于RNA来源的cDNA扩增实验。 |
| Lipofectamine™ 3000 转染试剂 | 赛默飞世尔科技 | L3000015 | 脂质纳米颗粒转染试剂与P3000增强剂配对使用,可在BV2小胶质细胞中实现高效siRNA/质粒转染,并具有低细胞毒性。 |
| lnRcute lncRNA 第一链cDNA合成试剂盒 | TIANGEN | KR202-02 | 该试剂盒专为低丰度、GC含量多变且具有复杂二级结构的长链非编码RNA(lncRNA)的逆转录反应优化设计。试剂盒包含独立的基因组DNA去除缓冲液,可在逆转录前有效消除基因组DNA污染,并配备特制的lnR-RT引物混合物,用于富集全长lncRNA模板。经修饰的逆转录酶可实现高效长片段cDNA合成,适用于10 ng至2 ng的总RNA起始量。 |
| lnRcute lncRNA qPCR 检测试剂盒(SYBR Green) | TIANGEN | FP402 | 一种基于SYBR Green的专用预混液,用于长链非编码RNA(lncRNA)的定量PCR检测。抗体介导的热启动DNA聚合酶确保高扩增特异性;H-竞争组分可缓解高GC含量lncRNA模板的二级结构干扰。可与lnRcute lncRNA反转录试剂盒生成的cDNA兼容,适用于低丰度lncRNA相对表达水平的定量分析。 |
| miR-145-5p 寡核苷酸 | 中国武汉通用生物 | NA | 合成的miR-145-5p模拟物、抑制剂及相应的阴性对照寡核苷酸,用于调控BV2细胞中miR-145-5p的活性。应用于表达、炎症、氧化应激及双荧光素酶报告基因检测。 |
| miRcute Plus miRNA 第一链cDNA合成试剂盒 | TIANGEN | KR211-02 | 采用多聚(A)加尾与逆转录一体化单管反应,简化实验流程。酶混合物包含大肠杆菌多聚(A)聚合酶、RNase H缺陷型逆转录酶及RNase抑制剂,可特异性识别成熟的单链miRNA,避免具有发夹结构的前体miRNA产生扩增干扰。适用于从细胞裂解液、血浆及组织样本中提取的miRNA。 |
| miRcute Plus miRNA qPCR 检测试剂盒(SYBR Green) | TIANGEN | FP411 | 专为成熟miRNA定量优化的SYBR Green预混液,与miRcute反转录产物完美匹配。缓冲体系可提高短片段miRNA扩增子的引物退火效率,提供稳定的荧光信号和高灵敏度,适用于低表达水平miRNA的检测。U6 snRNA常作为内参用于数据归一化。 |
| 青霉素-链霉素溶液(100×) | 碧云天生物技术 | C0222 | 含青霉素(10,000 U/mL)和链霉素(10 mg/mL)的无菌过滤混合液;工作浓度为培养基中1:100稀释,用于预防细菌污染。 |
| 活性氧检测试剂盒(含稀释液) | 碧云天生物技术 | S0034M | 该试剂盒采用DCFH-DA荧光探针定量检测细胞内活性氧(ROS)。DCFH-DA可穿透细胞膜,被细胞内酯酶水解为DCFH,后者被ROS氧化生成荧光性DCF。适用于96孔微孔板及荧光酶标仪进行高通量检测(Ex = 488 nm,Em = 525 nm)。配备专用探针稀释液及Rosup阳性对照试剂,可稳定染色信号,适用于无需细胞裂解的贴壁BV2小胶质细胞氧化应激检测。 |
| 还原型谷胱甘肽(GSH)检测试剂盒 | 南京建成生物工程研究所 | A006-1-2 | 比色法微孔板试剂盒,用于检测细胞内主要抗氧化剂还原型谷胱甘肽(GSH)。GSH 与二硫代二硝基苯甲酸(DTNB)反应生成黄色显色产物,在酶标仪上于 405 nm 处测定吸光度。该试剂盒将标准试管法改良为适用于细胞裂解液抗氧化分析的高通量 96 孔微孔板检测方法。 |
| si-LINC00707 | GenePharma(中国上海) | NA | 设计用于降低BV2细胞中LINC00707表达的小干扰RNA。用于功能缺失实验,以评估LINC00707敲低对炎症反应、氧化应激、miR-145-5p表达和TRAF6表达的影响。 |
| si-LINC00707 阴性对照 | GenePharma(中国上海) | NA | 作为si-LINC00707转染的阴性对照使用的非靶向小干扰RNA。用于控制转染操作和siRNA暴露所引起的非特异性效应。 |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | 通用SYBR Green定量PCR预混液,用于mRNA相对定量,含有热启动Taq聚合酶、dNTPs、SYBR Green I染料及用于荧光校正的ROX参比染料。非特异性扩增低,扩增效率稳定,广泛应用于mRNA目的基因定量(如TRAF6、GAPDH等)。 |
| 赛默飞世尔科技 Sorvall ST 8 小型台式离心机 | 赛默飞世尔科技 | 75200709 | 临床实验室的传统选择,可处理多达 24 个样本 × 一次可采集5/7 mL血液的采血管。R系列为带制冷功能的型号,可更好地保护需要低温离心的样本。 |
| TIANScript II 第一链 cDNA 合成试剂盒 | TIANGEN | GKR107-02 | 专为通用mRNA反转录设计,可生成长达12 kb的cDNA。配备Oligo (dT) 15和随机六聚体引物,支持灵活的引物策略。经修饰的M-MLV反转录酶可高效读取高GC含量及复杂二级结构的mRNA,并与下游mRNA qPCR扩增具有广泛的兼容性。 |
| TNF-α SimpleStep ELISA 试剂盒 | Abcam | ab236712 | 一种快速单次洗涤的SimpleStep夹心ELISA试剂盒,经优化用于定量检测大鼠肿瘤坏死因子-α (TNF-α) 在细胞培养上清液、血清及各种血浆样本中的含量。总检测时间90分钟,灵敏度极高,达到1.04 pg/mL,线性检测范围为15.63 pg/mL至1000 pg/mL。配备可拆卸的8×12 孔预包被板;记录 450 nm 处的吸光度值以测定最终 TNF-α 定量计算 |
| 总超氧化物歧化酶(T-SOD)检测试剂盒 | 南京建成生物工程研究所 | A001-3-2 | WST-1 显色微孔板试剂盒用于检测总超氧化物歧化酶(SOD)酶活性。SOD 可清除超氧阴离子自由基,抑制 WST-1 的还原反应。通过酶标仪在 450 nm 处测定吸光度,用于活性计算。适用于细胞匀浆、血清及组织样本,显色稳定、重复性高,可用于抗氧化能力评估。 |
| TRIzol试剂 | 赛默飞世尔科技 | 15596018 | 一步法从培养的小胶质细胞中分离总RNA的单相酚-胍基异硫氰酸酯试剂;可同时从同一样本中提取DNA和蛋白质。 |
参考文献
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.