本方案描述了采用高效液相色谱法对芦丁和槲皮素进行靶向定量分析的方法 槐(Styphnolobium japonicum) 芽提取物,并在小胶质细胞、小胶质细胞-神经元共培养以及一氧化氮缺乏性高血压模型中对提取物进行评价。该实验流程将提取物制备与神经炎症、神经元应激、血压及室旁核相关指标相连接。
研究文章
HPLC 定量的 Styphnolobium japonicum 提取物减轻 L-NAME 处理大鼠的小胶质细胞炎症与高血压
* These authors contributed equally
本文内容
摘要
摘要
下丘脑室旁核(PVN)中的神经炎症可导致交感神经兴奋和高血压。我们评估了一种 槐(Styphnolobium japonicum) 芽提取物(SJBE;历史上 Sophora japonica) 通过靶向高效液相色谱法(HPLC)对芦丁和槲皮素进行定量。该提取物在血管紧张素II(Ang II)刺激的BV-2小胶质细胞、BV-2/mHypoA-2/10可溶性因子共培养体系中进行了测试, 体外 高钠神经元应激条件,以及N型大鼠ω硝酸-L-精氨酸甲酯(L-NAME)诱导的氮氧化物缺乏性高血压。在非细胞毒性的工作浓度下,SJBE降低了BV-2细胞中的炎症和氧化应激指标,并与较高的血管紧张素转换酶2(ACE2)、Mas受体(MasR)及血管紧张素-(1-7)[Ang-(1-7)]标志物水平相关。在共培养体系中,SJBE减轻了炎症传递和神经元应激。口服SJBE降低了尾套法血压测量值,并与下丘脑室旁核(PVN)中较高的ACE2/MasR和Ang-(1-7)水平、较低的Iba-1和c-Fos染色以及较低的循环去甲肾上腺素和细胞因子水平相关。MLN-4760提供了 体外 ACE2 参与的功能支持,但无 体内 未进行通路阻断或脑暴露药代动力学研究。因此,结果支持SJBE治疗与神经炎症信号减轻及血压降低之间存在关联,但未确立中枢通路的因果关系。
引言
植物提取物作为多组分血管及神经免疫疾病调节剂正受到越来越多的关注。对其研究结果的解读依赖于明确的原料来源、分析范围以及化学成分的一致性。Styphnolobium japonicum (L.) Schott,历史上曾称为 Sophora japonica L.,其干燥花蕾药材称为槐米(Flos Sophorae Immaturus)1,2。芦丁是该药材的主要质量标志物,此外还含有其他具有生物活性的黄酮类化合物3。已有研究评估了传统及强化提取方法在回收芦丁及相关黄酮类成分方面的效果4,5,6。最近一项研究还描述了一种更环保的 S. japonicum 芦丁提取工艺7。靶向高效液相色谱法(HPLC)可高效定量预设的标志物,而要全面评估化学成分的整体特征及批间一致性,则需采用色谱指纹图谱或多组分分析方法;因此,本文中芦丁和槲皮素的测定结果不应被解读为完整的植物化学成分谱。
芦丁和槲皮素为研究源自S. japonicum的提取物在神经血管炎症中的药理作用提供了合理的依据。芦丁及S. japonicum花部制剂已被证实与降低炎症信号传导相关,包括减轻NF-κB通路相关的反应及神经炎症8。实验模型进一步表明,芦丁可减轻神经炎症及与NF-κB相关的组织损伤9。槲皮素也被证实具有心血管生物活性,并可改善炎症-氧化还原平衡10,11。在小胶质细胞模型中,槲皮素能够抑制细胞活化、氧化应激以及Toll样受体4(TLR4)相关的炎症信号通路12,13。
高血压不仅是一种血管性疾病。中枢炎症回路也可维持交感神经兴奋。室旁核(PVN)整合调节心血管张力的神经内分泌和自主神经信号。脑组织及室旁核小胶质细胞来源的细胞因子已被证实与神经源性高血压相关14,且室旁核小胶质细胞能够感知血流动力学紊乱并促进交感神经兴奋15。这些发现表明,室旁核内小胶质细胞与神经元之间的通讯是干预神经源性血压升高的一个重要靶点16。
肾素-血管紧张素系统中的ACE2/Ang-(1-7)/Mas受体(MasR)轴是该核心网络中的一条保护性通路17,18. PVN中ACE2的过表达可减轻血管紧张素II诱导的高血压,并与神经炎症的减轻相关19下丘脑室旁核(PVN)内源性血管紧张素-(1-7)信号通路亦可调节交感神经输出20血管紧张素II可激活室旁核小胶质细胞中的血管紧张素II 1型受体(AT1)/Toll样受体4(TLR4)相关氧化还原通路,从而将肾素-血管紧张素系统应激与神经炎症联系起来21高钠细胞条件仅被用作一种 体外 应激挑战,而非作为L-NAME动物模型的替代。是否 S. japonicum 芽提取物(SJBE)中芦丁和槲皮素经靶向高效液相色谱法定量,其是否可在小胶质细胞-神经元界面抑制小胶质细胞炎症,目前尚不明确。本研究流程结合了靶向标志物定量、小胶质细胞与可溶性因子共培养体系,以及L-NAME诱导的一氧化氮缺乏性高血压模型。该流程旨在对特定制备的SJBE进行假设驱动的比较分析,而非全面的植物化学成分分析或脑内暴露程度的验证;L-NAME实验并未特异性模拟由室旁核驱动的神经源性高血压。本文探讨了SJBE是否能够抑制血管紧张素II(Ang II)驱动的小胶质细胞炎症,限制下丘脑神经元中的炎症信号传导,并降低L-NAME处理大鼠的血压,以及这些效应是否与ACE2/Ang-(1-7)/MasR标志物相关。
方案
所有动物实验均经山西大同大学生物医学研究伦理审查委员会批准(批准号:2021029;批准有效期:2021年8月至2024年2月),并依照实验室动物护理与使用机构指南进行。所用试剂和设备列于材料表中。
材料与试剂
Styphnolobium japonicum(L.)Schott(异名:Sophora japonica L.;豆科;槐米)的干燥未开放花蕾被使用。在提取前,通过与中国北京中国食品药品检定研究院(NIFDC)提供的法定对照药材槐花(编号:121270;批号:121270-201403)进行比对,对植物材料进行了鉴定。芦丁(98%,HPLC)和槲皮素(98%,HPLC)用作对照品。血管紧张素II(Ang II)、MLN-4760、L-NAME 和缬沙坦按需使用。其他试剂与仪器列于材料表中。
日本血吸虫芽体提取物的制备与质量控制
将花蕾在80 °C下烘干至恒重,研磨后过85目筛。粉末以料液比1:20(w/v)加入85%乙醇,在80 °C条件下回流提取两次,每次1.5 h。合并滤液,在60 °C减压浓缩至稠膏状,于−80 °C预冷冻,再冷冻干燥48–72 h。提取率按干浸膏质量与干原料药质量之比计算,分装后的SJBE粉末储存于避免反复冻融或受潮的条件下。
采用配备紫外-可见光二极管阵列检测器的设备进行高效液相色谱(HPLC)分析。分析物在C18反相色谱柱(250 mm × 4.6 mm,5 µm)上分离,以甲醇-水(65:35,v/v)为流动相,等度洗脱,流速为1.0 mL/min。色谱柱温度维持在35 °C,检测波长设为360 nm,进样体积为20 µL,采集时间为20 min。SJBE用甲醇配制成1.0 mg/mL的溶液。制备7个芦丁校准浓度点,分别为10 µg/mL、25 µg/mL、50 µg/mL、100 µg/mL、200 µg/mL、300 µg/mL和400 µg/mL;同时制备7个槲皮素校准浓度点,分别为0.5 µg/mL、1 µg/mL、2.5 µg/mL、5 µg/mL、10 µg/mL、25 µg/mL和50 µg/mL。标准品和样品均通过0.22 µm聚四氟乙烯膜过滤器过滤,弃去前0.5 mL滤液,其余部分转移至HPLC进样瓶中。每个校准浓度点重复进样两次,每份SJBE样品进样三次。通过保留时间与对照标准品在±2%范围内匹配以及二极管阵列光谱的一致性来鉴定芦丁和槲皮素。各标志物采用外标法校准进行定量,当检测器响应超出适用的校准范围时,对稀释后的样品重新进行分析。
分析性能、系统适用性与批评估
通过最小二乘法回归分析在七个指定浓度水平下峰面积与浓度的关系,以评估线性。当决定系数 R2 至少为 0.999,且残差图未显示系统性趋势时,校准曲线被接受。检测限和定量限分别根据信噪比约为 3 和 10 时确定。特异性通过甲醇空白、混合标准溶液和 SJBE 样品进行验证;确认无共洗脱干扰,且分析物光谱与参考标准品一致。
通过连续进样六次混合标准品来评估进样精密度。日内精密度通过同一天内进行的六次测定来评估,日间精密度则通过连续三天的测定来评估。重复性通过六份独立配制的SJBE溶液进行评价,自动进样器稳定性在0 h、4 h、8 h、12 h和24 h进行评估。回收率在目标标志物浓度的80%、100%和120%三个水平下进行评估,每个水平采用三份独立加标样品。进样精密度的可接受标准为峰面积相对标准偏差(RSD)≤2.0%;精密度、重复性和稳定性的可接受标准为RSD ≤3.0%;平均回收率的可接受范围为95.0%–105.0%,且回收率的RSD ≤3.0%。
每次分析序列开始前,混合标准品需进样六次。系统适用性合格的标准为:保留时间的相对标准偏差(RSD)≤1.0%,峰面积的相对标准偏差(RSD)≤2.0%,分离度≥1.5,拖尾因子≤2.0,且芦丁峰的理论塔板数至少达到5,000。若任一指标未达标,则需重新平衡色谱柱,并重复进行系统适用性测试。
制备并分析了三个独立的SJBE提取批次。记录每个批次在360 nm下的完整色谱图,以芦丁作为参照峰,对可重复的共有峰进行对齐,并计算相对保留时间、相对峰面积及整体谱图相似度。批次间指纹图谱的一致性判定标准为:相似度≥0.90,共有峰相对保留时间的相对标准偏差(RSD)≤2.0%,相对峰面积的相对标准偏差(RSD)≤5.0%。各批次中芦丁和槲皮素的含量均予以报告,并提供总体均值、标准偏差及变异系数。
细胞培养与处理
小鼠 BV-2 小胶质细胞系和小鼠 mHypoA-2/10 下丘脑神经元细胞系均购自商业来源。细胞从供应商认证的冻存株中复苏,传代扩增两代后,采用物种特异性 PCR 方法验证物种身份,并在实验前以及每次复苏新冻存管后确认无支原体污染。实验使用第 3 至第 20 代之间的细胞。
BV-2 和 mHypoA-2/10 细胞在含 10% 胎牛血清和 1% 青霉素-链霉素的高糖 DMEM 培养基中培养,培养条件为 37 °C、5% CO₂ 的湿化培养箱。每 2 天更换一次培养基,当细胞融合度达到 70%–80% 时,使用 0.25% 胰蛋白酶-EDTA 进行传代。实验前 24 小时将细胞接种,待细胞融合度达到 70%–80% 时开始处理并进行实验。
进行活力筛选时,将BV-2细胞分别暴露于0 µg/mL、25 µg/mL、50 µg/mL、100 µg/mL、200 µg/mL或400 µg/mL的SJBE中,持续24小时。在炎症实验中,细胞先与图中指定浓度的SJBE或芦丁(50 µmol/L)预孵育1小时,随后在不更换培养基的情况下加入Ang II(100 nmol/L),继续孵育24小时。在ACE2抑制实验中,于SJBE处理前30分钟加入MLN-4760(10 µmol/L),SJBE处理1小时后再加入Ang II,所有试剂在24小时刺激期间持续存在。后续机制实验中SJBE的使用浓度为100 µg/mL。Ang II和SJBE用无菌培养基配制,而MLN-4760和芦丁则以二甲基亚砜(DMSO)作为母液溶剂。所有相关实验组(包括溶剂对照组)中DMSO的终浓度均保持在0.1%(v/v)。共进行了三次独立的细胞培养实验,每次实验内的技术重复孔数据取平均值后进行分析。
细胞活力检测
将BV-2细胞以每孔5 × 10³个细胞的密度接种于96孔板中,培养24小时。随后弃去原培养基,更换为含0 µg/mL、25 µg/mL、50 µg/mL、100 µg/mL、200 µg/mL或400 µg/mL SJBE的新鲜培养基。继续培养24小时后,每孔加入10 µL CCK-8试剂,在37 °C下孵育1小时。在450 nm波长下测定吸光度,并以未处理对照孔为基准计算细胞活力。独立的细胞培养制备物作为生物学重复,技术重复孔仅用于实验内数据的平均值计算。
ROS 水平检测
处理后,BV-2细胞在37 °C避光条件下,用含10 µmol/L DCFH-DA的无血清培养基孵育30 min。细胞用PBS洗涤两次,重悬并脱离培养表面,经40 µm细胞筛过滤后,重悬于冰浴PBS中。每样本至少采集10,000个单细胞事件,采用流式细胞仪检测,激发波长为488 nm,荧光信号通过FITC/530 ± 15 nm发射通道收集。根据前向散射与侧向散射面积对主要细胞群设门,通过前向散射面积与高度排除双联体,并以未染色对照样本设定荧光阈值。本单色实验无需进行光谱补偿。所有编码样本均应用相同的设门模板,并报告平均荧光强度。
TUNEL 染色
共培养后,将下室中的神经元细胞用4%多聚甲醛固定30分钟,用PBS洗涤三次,再用含0.3% Triton X-100的PBS溶液透化处理5分钟。总共 50 µL 每孔加入 TUNEL 反应混合液,细胞于 37 °C 在黑暗中孵育60分钟。样品洗涤三次,细胞核用复染剂复染 1 µg/mL DAPI 染色 10 分钟,样本封片。每组五个独立制备的共培养样本中,每个样本选取三个预先确定且无重叠的视野,于 200 倍镜下采集图像× 使用相同的曝光设置进行放大。在 ImageJ 中,通过设定固定阈值,将 TUNEL 阳性细胞核计数为 DAPI 阳性细胞核的百分比。每个样本选取三个视野,取平均值作为该培养样本的代表值,再进行统计分析。
神经元-小胶质细胞共培养实验
采用具有0.4 µm聚碳酸酯膜和约0.33 cm2生长面积的24孔Transwell小室,以模拟由可溶性因子介导的非接触式细胞通讯。将mHypoA-2/10细胞以每孔600 µL培养基中接种1 × 10⁵个细胞的密度种入下层孔中,BV-2细胞则以每孔100 µL培养基中接种2 × 10⁵个细胞的密度种入上层小室中。细胞在组装前培养过夜。根据上述处理方案,将Ang II、SJBE、MLN-4760、芦丁及其相应的溶剂对照加入上层BV-2细胞室中。对于额外的高钠应激组,向下方神经元室中加入NaCl,使其终浓度增加30 mmol/L。共培养体系组装后继续培养24小时。
收集上室培养基和BV-2细胞用于小胶质细胞因子和信号通路分析,分别收集下室培养基和神经元细胞用于Ang-(1-7)、qPCR、免疫印迹和TUNEL分析。一个组装好的插入式培养插件与下层孔组成一个实验单位,共进行了三次独立的共培养实验。该设计可用于评估可溶性因子的交换,但无法确定小胶质细胞是SJBE的唯一直接作用靶点。由于未设置等渗对照,NaCl条件无法区分钠离子特异性效应与渗透压效应。
高血压动物模型
从商业来源获得6至8周龄、体重180至220 g的雄性无特定病原体Wistar大鼠。每笼饲养3只大鼠,环境温度为22 °C ± 2 °C,相对湿度为50%–60%,光照周期为12小时光照/12小时黑暗,自由摄食和饮水。垫料每周更换两次,动物适应环境7天。每日观察动物状态,每周称重两次。通过口服灌胃给予L-NAME(40 mg/kg/天,溶于0.5% CMC-Na,10 mL/kg)连续3周,建立一氧化氮缺乏性高血压模型。在随机分组前,若连续两次测量的收缩压≥140 mmHg,则定义为模型合格。该模型可复制一氧化氮缺乏引起的高血压,但并非特异性神经源性高血压模型。
分组、给药与样本采集
大鼠被分为正常对照组和L-NAME造模组。在确认模型建立成功后,符合条件的高血压大鼠被分配至模型对照组、SJBE 100 mg/kg/天组、SJBE 200 mg/kg/天组、SJBE 400 mg/kg/天组或缬沙坦10 mg/kg/天组。所有灌胃制剂均以10 mL/kg的剂量每日给药一次,对照组给予等体积的0.5% CMC-Na溶液。每组6只大鼠(共36只)构成最终分析样本。各组的初始入组情况、死亡及剔除情况均按组别和原因进行报告。每日灌胃持续6周,期间模型组大鼠继续维持L-NAME造模方案。
实验终点时,大鼠通过腹腔注射戊巴比妥钠(50 mg/kg)进行麻醉,并确认足底回缩反射消失。通过腹主动脉采集血液(4–6 mL)至含EDTA的采血管中。在深度麻醉下通过放血处死大鼠,并经心脏灌注约200 mL冰冷的0.9%生理盐水。血液样本在4 °C条件下以2,000 × g离心15分钟,血浆储存于−80 °C。立即取出大脑。根据大鼠脑图谱,制备从前囟点后约−1.3 mm至−2.1 mm的冠状脑组织块,并在中线外侧约0.3–0.6 mm、颅骨表面下方7.4–8.2 mm范围内显微解剖双侧室旁核(PVN)。组织样本速冻后用于RNA和蛋白质分析,或包埋后制备20 µm冷冻切片。
随机化、分配隐藏、盲法及排除标准
符合纳入标准的高血压大鼠根据体重和基线收缩压进行分层,并采用计算机生成的区组随机化列表(每区组6只)进行分配。由未参与给药或结局评估的研究人员生成随机序列,制备连续的组别编码,并在所有动物均满足纳入标准前对分配列表进行隐藏。动物被视为血压、分子、生化和组织学终点指标的实验单位。
灌胃制剂、样本管、组织分样、切片、图像及检测板均以随机生成的三位数动物代码标记。进行血压测量、密度测定、ELISA、图像采集和图像分析的研究人员对分组处理信息设盲。盲态仅在完成预设的质量控制检查和主要分析后才予以揭盲。动物仅在出现与治疗无关的死亡、严重疾病或损伤时被剔除。 >体重减轻20%、灌胃失败、造模失败、重复操作后尾套信号不足、样本丢失或记录在案的检测失败。所有排除情况均按组别和原因进行报告。由于未进行预先的效能计算,每组n=6被视为探索性机制研究的样本量。
尾套法血压测量
在安静的房间内,于09:00至12:00之间使用无创尾套系统测量血压。大鼠在连续5天内每天置于固定装置中15分钟以适应环境。每次测量当天,动物先在33 °C ± 1 °C条件下预热10分钟,随后再在固定装置中静置5分钟。前五次充放气循环的数据被舍弃,记录后续10–15次循环的数据。当至少有五次技术上有效的读数且其变异系数≤10%时,该次测量视为有效。个体动物的血压值取有效读数的平均值。若未达到该标准,则让动物休息10分钟后重复一组循环。若仍不满足标准,则在次日重新进行测量,原测量记录视为整体缺失,而非选择性剔除个别读数。尾套法测量提供的是间歇性血压估计值,无法实现连续遥测。
酶联免疫吸附测定(ELISA)
采用与分析物和物种匹配的检测试剂盒处理细胞培养上清液、下丘脑室旁核(PVN)组织匀浆上清液和血浆:小鼠TNF-α、小鼠IL-1β、小鼠IL-6、大鼠TNF-α、大鼠IL-1β、血管紧张素-(1-7) [Ang-(1-7)] 和去甲肾上腺素。细胞上清液在4 °C条件下以1,000 × g 离心10分钟以澄清。PVN组织在含蛋白酶抑制剂的冰冻PBS中按1:9(w/v)比例匀浆,并在4 °C条件下以12,000 × g 离心15分钟。血浆仅在冰上解冻一次。试剂在室温下平衡30分钟。将100 µL标准品和样品以技术重复方式加入孔板,于37 °C孵育2小时,随后用300 µL洗涤缓冲液洗涤五次。接着加入100 µL生物素化检测抗体,于37 °C孵育1小时。板孔洗涤五次后,加入100 µL辣根过氧化物酶偶联物,于37 °C孵育30分钟。再次洗涤后,加入90 µL TMB底物溶液,并在避光条件下显色15分钟。然后加入50 µL终止液,并在5分钟内使用酶标仪在450 nm波长处测定吸光度。采用四参数逻辑拟合标准曲线计算浓度。当变异系数≤15%时,接受重复测量结果;超出校准范围的样品经稀释后重新检测。
定量实时 PCR
使用TRIzol试剂从细胞或视上核(PVN)组织中提取总RNA。通过A260/A280比值评估RNA纯度,取1 µg RNA用于Evo M-MLV逆转录预混液合成cDNA。每个20 µL的qPCR反应体系包含10 µL 2× SYBR Green主混合液、0.4 µL 10 µmol/L的正向引物和反向引物各0.4 µL、2 µL稀释后的cDNA以及7.2 µL无核酸酶水。反应在实时荧光定量PCR检测系统上进行,每个样本设技术重复三次。扩增程序为:95 °C预变性30 s,随后进行40个循环(95 °C变性5 s,60 °C退火延伸30 s)。之后进行熔解曲线分析,温度从65 °C升至95 °C,每步增加0.5 °C。实验中同时设置无模板对照和无逆转录对照。只有当扩增产物呈现单一熔解峰且标准曲线扩增效率在90%–110%之间时,该检测结果才被接受。相对基因表达水平采用2⁻ΔΔCt法计算,以Gapdh作为内参基因。本研究中所用引物序列见表1。
蛋白质印迹
使用预冷的含有蛋白酶和磷酸酶抑制剂的RIPA裂解缓冲液从细胞或下丘脑室旁核(PVN)组织中提取总蛋白。裂解物在4 °C、12,000 × g 条件下离心15分钟以澄清,采用BCA法测定蛋白浓度。根据目标蛋白的分子量选择8%–12%的SDS-聚丙烯酰胺凝胶,每泳道上样30 µg蛋白,于冰上以300 mA恒流电转90分钟至0.45 µm PVDF膜。膜在室温下用5%牛血清白蛋白(针对磷酸化蛋白)或5%脱脂奶粉(针对其他目标蛋白)封闭1小时。一抗在4 °C过夜孵育,稀释比例见材料表,包括总CREB抗体。膜用TBST洗涤3次,每次10分钟,随后在室温下与相应的辣根过氧化物酶标记的二抗(1:5,000)孵育1小时,再进行额外洗涤。通过增强型化学发光法并采用未饱和曝光条件检测条带。使用ImageJ软件对条带密度进行定量分析。磷酸化蛋白的表达量以相应总蛋白为内参进行归一化,其他目标蛋白则以GAPDH为内参进行归一化。
免疫荧光染色
取下丘脑室旁核(PVN)的冠状冷冻切片(20 µm),切片位置相对于前囟约为 −1.3 至 −2.1 mm。每只大鼠选取三个解剖位置匹配的切片,间隔 120 µm。切片于室温平衡 20 分钟,用 PBS 洗涤三次,再用含 0.3% Triton X-100 和 5% 山羊血清的溶液封闭并透化处理 1 小时。切片在 4 °C 下与 Iba-1 或 c-Fos 一抗孵育过夜,洗涤后在室温避光条件下与相应的荧光二抗孵育 1 小时。细胞核用 DAPI 复染 10 分钟。使用倒置荧光显微镜以 200× 放大倍数采集双侧 PVN 图像,每种标记物的曝光和增益设置保持一致。对编码后的图像应用预设的 ImageJ 阈值,定量分析 Iba-1 阳性区域或 c-Fos 阳性细胞核。三个切片的测量结果取平均值,作为单个动物的检测值。
安全与废弃物处理
甲醇、乙醇、多聚甲醛、DCFH-DA、电泳试剂以及动物组织的处理均依照机构的化学品和生物安全规程进行。挥发性溶剂和多聚甲醛在经认证的化学通风橱中操作,并穿戴适当的个人防护装备。含卤素有机溶剂废液与含甲醛废液分类存放,生物废弃物经去污处理,锐器和动物尸体通过机构批准的途径处置。使用前已确认当地的废弃物分类和应急处理程序。
统计学分析
数据以均值 ± 标准差表示,并使用统计与绘图软件进行分析。独立的培养制备样本或动物作为生物学实验单位,技术重复孔、视野或重复测量值在每个单位内先取平均值,再进行统计推断。在进行参数检验前,评估数据的分布假设和方差模式。多组终点数据采用单因素方差分析,随后进行 Tukey 多重比较校正。纵向收缩压以均值 ± 标准差进行描述性展示,终点血压结果采用单因素方差分析结合 Tukey 校正进行分析。报告校正后的 p 值、均值差异及 95% 置信区间。双侧 p < 0.05 被认为具有统计学显著性,所有剔除数据和缺失值均予以说明。
结果
靶向 HPLC 定量的 SJBE 抑制 Ang II 诱导的小胶质细胞炎症
乙醇回流提取得到SJBE粉末,产率为25.5 ± 起始物料的0.7%(图1A)。采用靶向高效液相色谱法分析,定量测定芦丁和槲皮素含量分别为 276.1 mg/g ± 9.2 mg/g 和 12.5 mg/g ± 0.9 mg/g,分别(图1B),为整个生物学实验所用的SJBE制备物提供定量的标志物表征。
SJBE在浓度高达200 µg/mL时对BV-2细胞活力无明显影响,而在400 µg/mL时则观察到细胞活力显著降低(图1C)。基于上述结果,后续机制实验选用100 µg/mL浓度。Ang II显著增加了BV-2细胞中TNF-α和IL-1β的释放,而SJBE在所测试的非细胞毒性浓度范围内可降低这两种炎症细胞因子的水平(图1D、E),表明在Ang II刺激下,SJBE具有浓度依赖性的抗炎作用。
SJBE 与较高的 ACE2/MasR 标志物以及较低的 NF-κB 信号通路活性和氧化应激相关
Ang II 刺激降低了 ACE2 和 MasR 在蛋白和 mRNA 水平的表达,并伴随 NF-κB p65 磷酸化水平升高。SJBE 处理逆转了这些变化,增加 ACE2 和 MasR 的表达,同时降低 p65 的磷酸化水平(图 2A–E)。
与这些分子变化一致,SJBE 将血管紧张素 II 刺激的培养上清液中 TNF-α 浓度从 135 pg/mL ± 12 pg/mL 降低至 55 pg/mL ± 6 pg/mL,IL-1β 浓度从 102 pg/mL ± 10 pg/mL 降低至 42 pg/mL ± 5 pg/mL。加入 ACE2 抑制剂 MLN-4760 后,上述效应显著减弱,TNF-α 和 IL-1β 浓度分别回升至 125 pg/mL ± 11 pg/mL 和 95 pg/mL ± 9 pg/mL。芦丁处理重现了完整提取物所观察到的部分抗炎反应(图 2F)。
SJBE 还显著降低了 Ang II 刺激后细胞内 DCFH-DA 荧光强度,表明细胞内活性氧的积累减少。MLN-4760 可减弱该降低作用(图 2G,H)。综上所述,这些结果表明,SJBE 在 Ang II 刺激的 BV-2 细胞中发挥的抗炎和抗氧化作用伴随着 ACE2/MasR 信号通路的恢复,且该作用可被 ACE2 的药理学抑制所阻断。
SJBE 限制小胶质细胞向下丘脑神经元的炎症传递
为了检测SJBE的抗炎作用是否影响小胶质细胞与神经元之间的通讯,将BV-2细胞与mHypoA-2/10下丘脑神经元共培养于非接触式Transwell系统中。Ang II刺激增加了共培养体系中TNF-α和IL-1β的浓度,而SJBE处理使TNF-α水平从150 ± 15 pg/mL降低至65 ± 8 pg/mL,IL-1β水平从110 ± 12 pg/mL降低至48 ± 6 pg/mL(图3A)。Ang II还降低了Ace2和Mas1的表达,而SJBE处理使两者的表达恢复至接近对照组水平(图3B)。
在下室培养的下丘脑神经元中也观察到相应变化。暴露于Ang II刺激的共培养环境可增加c-Fos和COX-2的表达,并改变Avp和Oxtr的表达,而SJBE则减弱了这些反应(图3C–G). MLN-4760削弱了该保护性模式,进一步将ACE2活性与共培养系统中观察到的作用联系起来。
这些研究结果表明,在Transwell模型中,SJBE能够抑制血管紧张素II刺激下产生的炎症微环境,并伴随下丘脑神经元下游反应的活化程度降低。
SJBE 与 Ang-(1-7) 信号通路相关,并在高钠/血管紧张素 II 联合应激条件下减轻神经元损伤
Ang II 处理降低了共培养上清液中 Ang-(1-7) 的浓度,并增加了神经元中磷酸化 CREB/CREB 的比值。SJBE 处理则升高了 Ang-(1-7) 水平,并使 CREB 磷酸化水平恢复至接近对照组水平(图 4A–C),这与之前实验中观察到的 ACE2/Ang-(1-7)/MasR 相关信号通路的恢复一致。
在30 mmol/L NaCl和血管紧张素II联合刺激下,下丘脑神经元表现出Avp表达增加以及TUNEL阳性细胞比例升高。SJBE显著减弱了这两种反应(图4D–F),表明在联合刺激条件下神经元应激和损伤减轻。TUNEL分析中,每个数据点代表一个独立制备的共培养样本,每个生物学重复内取三个显微视野的平均值,再进行统计分析(每组n = 5)。
SJBE 可降低 L-NAME 处理大鼠的尾套血压,并与下丘脑室旁核 ACE2/Ang-(1-7)/MasR 标志物水平升高相关
每日给予L-NAME在模型建立过程中导致收缩压进行性升高。在高血压状态建立后,SJBE治疗在随后的6周干预期内使尾套法测得的每周血压降低,其中高剂量组的反应最为显著(图5A)。
在研究终点时,收缩压为165 ± L-NAME模型组为8 mmHg,而对照组为115 mmHg ± 在对照组大鼠中为5 mmHg。高剂量SJBE将收缩压降低至130 mmHg ± 6 mmHg。舒张压从110 mmHg下降 ± 6 mmHg 至 85 mmHg ± 4 mmHg,而平均动脉压从128 mmHg下降 ± 7 mmHg 至 100 mmHg ± 5 mmHg(所有调整后p值 < 0.05) < 0.0001 与模型组相比; 图5B这些结果表明,在干预期间,SJBE 能持续发挥降压作用。
对室旁核(PVN)组织的分析显示了平行的分子变化。L-NAME处理降低了ACE2和MasR蛋白的表达以及Ang-(1-7)的浓度,而SJBE以剂量依赖的方式恢复了这三个指标。在高剂量组中,与模型组相比,ACE2的相对表达量从0.40 ± 0.07上升至1.50 ± 0.18倍,MasR从0.45 ± 0.08上升至1.35 ± 0.16倍,Ang-(1-7)的浓度从9 pg/mg ± 2 pg/mg升高至32 pg/mg ± 5 pg/mg蛋白(图5C–E)。因此,SJBE的降压作用伴随着PVN内ACE2/Ang-(1-7)/MasR相关分子谱的恢复。
SJBE 与较低的下丘脑室旁核炎症活化和全身交感神经输出标志物相关
L-NAME诱导的高血压伴随室旁核(PVN)内显著的炎症激活。模型大鼠的Tnf和Il1b mRNA水平升高,而高剂量SJBE使Tnf表达从4.5 ± 0.5降至1.8 ± 0.2倍,Il1b表达从3.8 ± 0.4降至1.6 ± 0.18倍(图6A)。
免疫荧光分析显示一致的细胞变化。Iba-1 染色(小胶质细胞活化的标志)在 L-NAME 处理的大鼠下丘脑室旁核(PVN)中增加,而给予 SJBE 后则减少。c-Fos 染色呈现类似模式,与未治疗的模型组相比,SJBE 治疗后神经元活化程度较低(图 6B–D)。
这些中枢炎症改变伴随着循环炎症因子和交感神经标志物的改善。模型大鼠血浆中 TNF-α 和 IL-1β 浓度升高,经 SJBE 治疗后显著降低。在高剂量组中,TNF-α 从 45 pg/mL ± 6 pg/mL 降至 20 pg/mL ± 3 pg/mL,IL-1β 从 35 pg/mL ± 5 pg/mL 降至 15 pg/mL ± 3 pg/mL(图 6E)。血浆去甲肾上腺素同样从 400 pg/mL ± 45 pg/mL 降至 180 pg/mL ± 25 pg/mL(图 6F)。
总体而言,这些 体内 研究结果表明,SJBE处理在降低L-NAME处理大鼠血压的同时,伴随着PVN中ACE2/Ang-(1-7)/MasR相关标志物的恢复、PVN炎症活化的减轻,以及循环炎症细胞因子和去甲肾上腺素水平的下降。
数据可用性:
各图所依据的数值源数据及相关统计结果详见补充文件1。
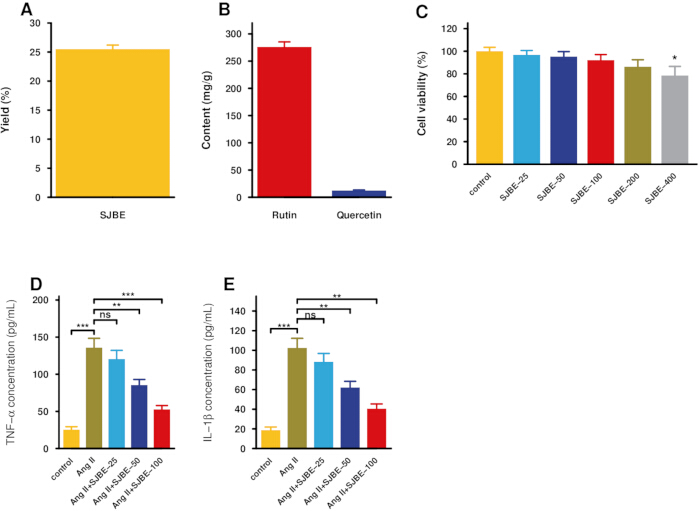
图1:靶向HPLC定量分析及BV-2细胞初步实验。(A)提取率。(B)通过靶向HPLC定量分析测定的SJBE中芦丁和槲皮素含量。(C)BV-2细胞经SJBE处理24小时后的细胞活力。(D,E)血管紧张素II(Ang II)刺激后BV-2细胞上清液中TNF-α和IL-1β的水平。数据以均值±标准差(SD)表示;可用于定量分析的图示均来自n = 3次独立实验。采用单因素方差分析(One-way ANOVA)并结合Tukey法进行多重比较校正。缩写:ns,无显著性差异;*p < 0.05,**p < 0.01,***p < 0.001,****p < 0.0001。请点击此处查看该图的放大版本
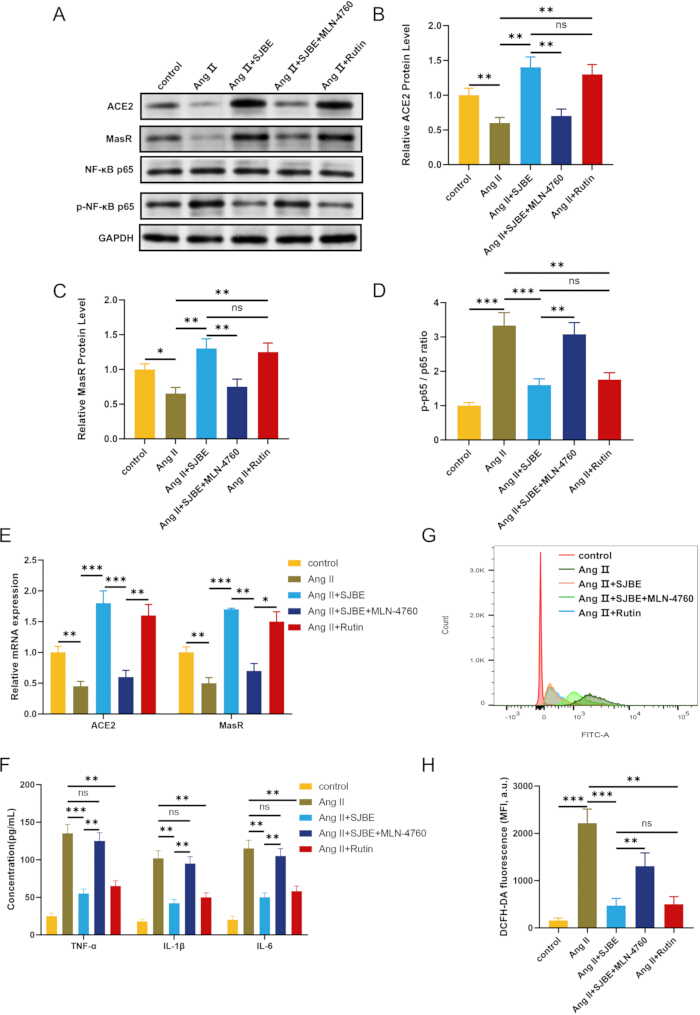
图2:SJBE 与 BV-2 细胞中较高的 ACE2/MasR 标志物以及较低的 NF-κB 信号通路活性和氧化应激相关。(A–D)ACE2、MasR、磷酸化 p65 和总 p65 的免疫印迹及定量分析。(E)Ace2 和 Mas1 的 mRNA 表达水平。(F)TNF-α、IL-1β 和 IL-6 的表达。(G,H)ROS 流式细胞术检测结果及荧光强度定量分析。数据以均值 ± 标准差表示;n = 3 次独立实验。采用单因素方差分析(One-way ANOVA)结合 Tukey 多重比较校正。ns,无显著性差异;*p < 0.05,**p < 0.01,***p < 0.001,****p < 0.0001。请点击此处查看该图的放大版本。
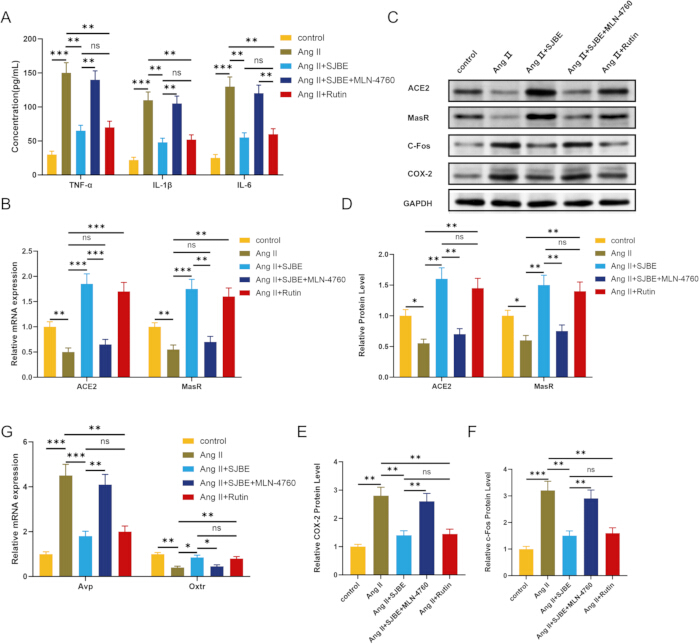
图3:SJBE在BV-2/mHypoA-2/10可溶性因子共培养模型中抑制炎症信号通路。(A)共培养上清液中的细胞因子。(B)Ace2 和 Mas1 mRNA 表达。(C–F)ACE2、MasR、c-Fos 和 COX-2 的免疫印迹及定量分析。(G)下室神经元中 Avp 和 Oxtr 的表达。数据以均值 ± 标准差表示;n = 3 次独立实验。采用单因素方差分析(ANOVA)与Tukey法校正的多重比较。ns,无显著性差异;*p < 0.05,**p < 0.01,***p < 0.001,****p < 0.0001。请点击此处查看本图的高清版本。
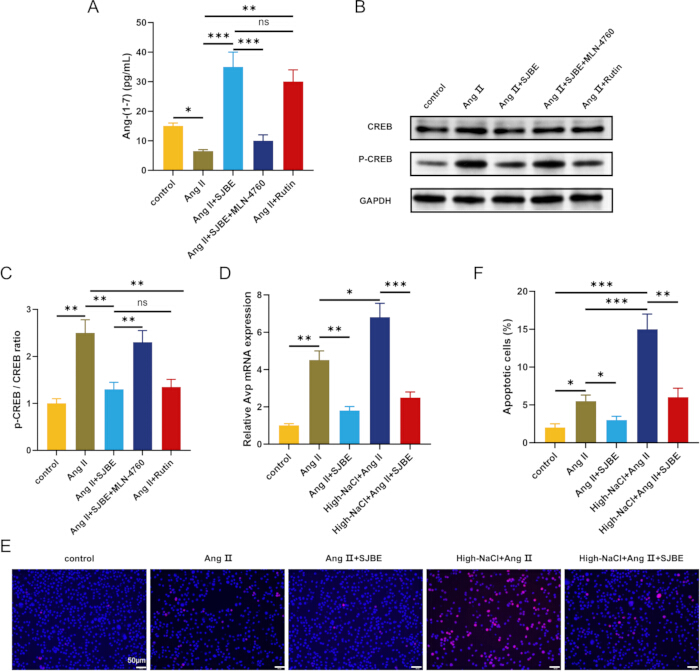
图4:SJBE 与 Ang-(1-7) 信号通路相关,并可减轻应激相关的神经元损伤。(A)共培养上清液中的 Ang-(1-7)。(B,C)下室神经元中磷酸化 CREB 和总 CREB 的表达。(D)在 NaCl/Ang II 联合应激条件下 Avp 的表达。(E,F)代表性 TUNEL 染色图像及定量分析;比例尺,50 µm。数据以均值 ± 标准差表示;图 A、C 和 D 来自 3 次独立实验;图 F 来自 5 次独立的共培养样本,每样本取三个视野取平均值。采用单因素方差分析(One-way ANOVA)并进行 Tukey 多重比较校正。ns,无显著性差异;*p < 0.05,**p < 0.01,***p < 0.001,****p < 0.0001。请点击此处查看本图的高清版本。
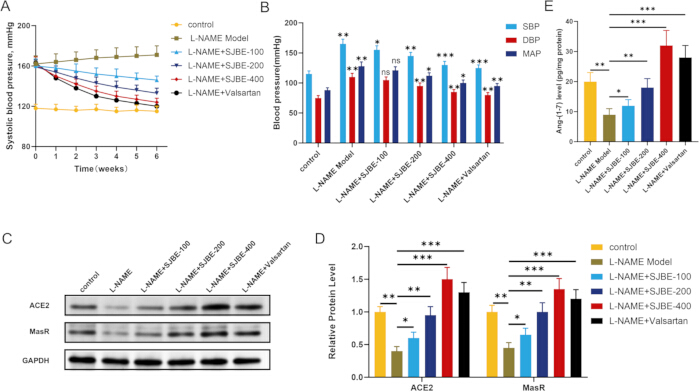
图5:SJBE可降低L-NAME处理大鼠的尾套血压,并与下丘脑室旁核ACE2/Ang-(1-7)/MasR标志物水平升高相关. (A) 收缩压的纵向变化。B) 收缩末期、舒张末期和平均动脉压。C,D) PVN 组织中 ACE2 和 MasR 的免疫印迹及定量分析。E) PVN 匀浆中 Ang-(1-7) 含量。数据以均值表示 ± SD;n = 6 只大鼠/组。纵向收缩压(SBP)以描述性方式呈现;终点结果采用单因素方差分析(one-way ANOVA),并进行 Tukey 法校正的多重比较。ns,无显著性差异;*p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. 请点击此处以查看此图的放大版本。
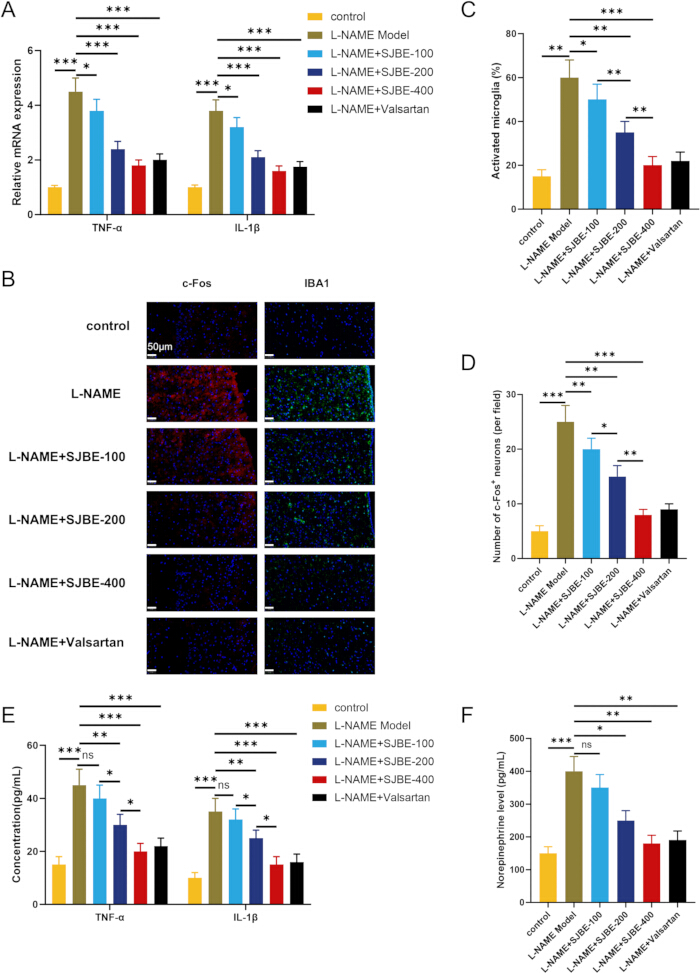
图6:SJBE与L-NAME处理大鼠下丘脑室旁核(PVN)炎症活化及全身交感神经输出标志物降低相关。(A)PVN组织中Tnf和Il1b的mRNA表达水平。(B–D)Iba-1和c-Fos免疫荧光染色及定量分析;比例尺为50 µm。(E)血浆TNF-α和IL-1β水平。(F)血浆去甲肾上腺素水平。数据以均值±标准差表示,每组n = 6只大鼠。采用单因素方差分析(One-way ANOVA)并进行Tukey法多重比较校正。*p < 0.05,**p < 0.01,***p < 0.001,****p < 0.0001。请点击此处查看该图的高清版本。
| 基因 | 上游引物 (5'-3') | 下游引物 (5'-3') |
| Gapdh | CACCCACTCCTCCACCTTTGAC | GTCCACCACCCTGTTGCTGTAG |
| Tnf | CCTGCTGCACTTTGGAGTGA | GCTTGAGGGTTTGCTACAACA |
| Il1b | CAGTGAGGAGAATGACCTGTTC | CGAGATGCTGCTGTGAGATT |
| Ace2 | TCCATTGGTCTTCTGCCATCCG | AGACCATCCACCTCCACTTCTC |
| Mas1 | TCCACCATCAATAGCAGCG | AAGCCACCCACATTCAGGC |
| Avp | TCGCCATGATGCTCAACACTACGC | ACACTGTCTCAGCTCCATGTCGGATG |
| Oxtr | GTGTCGAGTTGGACCTCGGG | CCAGGAACAGAATGAGGCACAG |
表1:本研究中使用的引物序列。
补充文件 1:图表及其相关统计输出结果的数值源数据。 请点击此处下载该文件。
讨论
本研究将靶向高效液相色谱定量的日本血吸虫芽提取物(S. japonicum bud extract, SJBE)与小胶质细胞及可溶性因子共培养模型中较低的炎症信号以及L-NAME处理大鼠尾套法血压降低相关联。在各个实验体系中,SJBE处理均伴随ACE2/Ang-(1-7)/MasR标志物升高、NF-κB活化和氧化应激降低,以及下丘脑室旁核(PVN)炎症活化标志物减少。这些一致的观察结果支持神经免疫假说,但尚不能证实中枢通路介导了其降压效应。
结果与已有报道一致 S. japonicum 花成分与芦丁减轻炎症信号传导及神经炎症8,9,22,并有证据表明槲皮素可调节心血管炎症状态和小胶质细胞的氧化还原信号12,13本研究将这些观察结果扩展至下丘脑神经免疫模型,采用了一种全植物提取物。由于MLN-4760仅削弱了保护性反应 体外,ACE2 最好被理解为细胞抗炎反应的功能性参与者,而非已确立的介导分子 在体内 血压效应。
室旁核(PVN)的研究结果将细胞水平的观察发现置于心血管调控区域的背景下。既往研究表明,小胶质细胞和炎症性细胞因子参与神经源性高血压及交感神经兴奋的发生23,24。室旁核内的Ang-(1-7)信号通路可调节交感神经输出,而血管紧张素II(Ang II)则可诱导AT1/TLR4依赖性的小胶质细胞氧化应激20,21。因此,SJBE处理后Iba-1、c-Fos、炎症性细胞因子以及血浆去甲肾上腺素水平的降低,与室旁核炎症激活程度减轻相一致;但现有数据尚不能确定这些变化是导致血压下降的原因,还是继发于全身状况改善的结果。
Ang II 和 L-NAME 模型提供了互补的应激环境,而非相同的疾病机制。Ang II 刺激可诱导肾素-血管紧张素驱动的小胶质细胞炎症,而 L-NAME 则模拟一氧化氮缺乏性高血压,伴有血管功能障碍和氧化应激25,26其他模型也表明,下丘脑室旁核小胶质细胞的活化参与交感神经调节14,27,但目前的L-NAME研究并不特异针对由室旁核驱动的神经源性高血压。高钠共培养条件是一种 体外 神经元应激刺激缺乏等渗对照,因此不应被解读为一种 在体 盐敏感性高血压模型
为了确保实验的可重复性,最关键的步骤包括植物来源记录、提取与储存条件的一致性、标准化的细胞密度与处理时机、Transwell小室的正确分配、尾套法测量前的适应性训练与保温、准确的下丘脑室旁核(PVN)取样,以及盲法终点定量分析。若提取产量出现波动,应检查原料含水量、溶剂比例、回流条件、过滤过程及冻干操作;若高效液相色谱(HPLC)保留时间发生偏移,应核查标准品配制、流动相组成、流速、温度、色谱柱平衡状态及系统适用性。当共培养或尾套法结果不一致时,应通过检查插入膜完整性与给药位置,或重复标准化的适应性训练来排查问题,而非选择性地剔除数据。对于超出本方案范围的研究问题,可采用色谱指纹图谱或液相色谱-串联质谱(LC-MS/MS)、原代细胞或细胞特异性共培养设计、遥测技术、脑组织/血浆药代动力学分析,以及中枢ACE2/Mas受体(MasR)功能缺失实验作为合适的替代方法。当前新兴的跨学科研究,如神经元–微环境重塑以及成像技术与人工智能整合,展示了探究复杂生物系统的更广泛方法学方向28,29。
若干局限性决定了其应用范围。MLN-4760 仅提供 体外 功能证据;无 在体 ACE2/MasR 阻断或血浆、脑组织或视上核暴露水平的检测被实施。 100 µg/mL 因此,该浓度为非细胞毒性 体外 工作浓度而非一个 体内-等效暴露。Transwell 设计无法证实小胶质细胞特异性作用,且动物样本量小、缺乏前瞻性统计效能,限制了结果的精确性。尾套法测量血压具有间歇性,且易受束缚应激影响。最后,对芦丁/槲皮素的靶向定量未能建立化学指纹图谱、完整的分析验证、成分归属或不同批次间的一致性。在上述局限范围内,该方案适用于生成关于 SJBE、神经炎症信号传导及血压调节的假设,而非得出明确的因果关系或转化医学结论。
披露
作者声明无竞争利益。
致谢
作者感谢参与实验室提供的机构和技术支持。
资金支持:
本工作得到中国国家自然科学基金的资助 山西省基础研究计划青年项目(No. 82600861);山西省基础研究计划青年项目(Nos. 202203021212491,202303021222205);山西省基础研究计划一般项目(No. 202203021221210);山西大同大学博士科研启动项目(No. 2018-B-36)
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.4 µm Transwell 小室 | Corning Incorporated | 3413 | 用于 BV-2/mHypoA-2/10 非接触共培养的 24 孔聚碳酸酯膜小室 |
| ACE2 抗体 | Cell Signaling Technology | 92485; RRID: AB_3741093 | ACE2 (E5O6J) 兔单克隆抗体;WB 1:1,000;IHC/IF 1:100–1:200 |
| Alexa Fluor 488 抗兔 IgG | Cell Signaling Technology | 4412; RRID: AB_1904025 | 免疫荧光二抗;1:500 |
| Alexa Fluor 594 抗兔 IgG | Cell Signaling Technology | 8889; RRID: AB_2716249 | 免疫荧光二抗;1:500 |
| 血管紧张素 II | Sigma-Aldrich | A9525 | 合成 Ang II 肽;用于小胶质细胞刺激 |
| 血管紧张素-(1-7) 检测试剂盒 | Cloud-Clone Corp. | CES085Mi | Ang-(1-7) 定量检测 |
| BCA 蛋白检测试剂盒 | Beyotime Biotechnology | P0012 | 蛋白质定量 |
| BV-2 细胞 | Procell Life Science & Technology Co., Ltd. | CL-0493; RRID: CVCL_0182 | 小鼠小胶质细胞系;传代次数 3–20 |
| C18 HPLC 色谱柱 | Shimadzu Corporation | Shim-pack GIST C18; P/N 227-30017-08 | 250 × 4.6 mm,5 µm;甲醇–水(65:35, v/v),流速 1.0 mL/min,温度 35 °C |
| CCK-8 试剂 | Beyotime Biotechnology | C0038 | 细胞活力检测 |
| c-Fos 抗体 | Cell Signaling Technology | 2250; RRID: AB_2247211 | c-Fos (9F6) 兔单克隆抗体;WB 1:1,000;IF 1:200 |
| COX-2 抗体 | Cell Signaling Technology | 12282; RRID: AB_2571729 | COX-2 (D5H5) 兔单克隆抗体;WB 1:1,000;IHC/IF 1:200 |
| DCFH-DA 探针 | Beyotime Biotechnology | S0033S | 通过流式细胞术检测活性氧(ROS) |
| DMEM 高糖培养基 | Gibco/Thermo Fisher Scientific | 11965092 | 细胞培养基 |
| Evo M-MLV 反转录预混试剂盒 | Accurate Biotechnology | AG11706 | 用于 qPCR 的 cDNA 合成 |
| 胎牛血清 | Gibco/Thermo Fisher Scientific | 10099141 | 细胞培养添加剂 |
| 流式细胞仪 | BD Biosciences | BD Accuri C6 Plus | ROS 荧光信号采集 |
| 荧光显微镜 | Olympus/Evident Scientific | IX73 | 用于 TUNEL 和 PVN 成像的倒置荧光显微镜 |
| GAPDH 抗体 | Cell Signaling Technology | 5174; RRID: AB_10622025 | GAPDH (D16H11) 兔单克隆抗体;WB 1:1,000–1:5,000 |
| 山羊血清 | Beyotime Biotechnology | C0265 | 免疫荧光封闭试剂 |
| HPLC 系统 | Shimadzu Corporation, Kyoto, Japan | Prominence LC-20A | 针对芦丁/槲皮素的质量控制检测 |
| HRP 标记抗小鼠 IgG | Cell Signaling Technology | 7076; RRID: AB_330924 | Western blot 二抗;1:3,000–1:5,000 |
| HRP 标记抗兔 IgG | Cell Signaling Technology | 7074; RRID: AB_2099233 | Western blot 二抗;1:3,000–1:5,000 |
| Iba-1/AIF-1 抗体 | Cell Signaling Technology | 17198; RRID: AB_2820254 | Iba-1/AIF-1 (E4O4W) 兔单克隆抗体;WB 1:1,000;IHC/IF 1:200 |
| IL-6 ELISA 试剂盒 | Beyotime Biotechnology | PY2782 | 小鼠 IL-6 定量检测 |
| L-NAME | Beyotime Biotechnology | S0006 | 一氧化氮合酶抑制剂,用于诱导一氧化氮缺乏性高血压 |
| 雄性 Wistar 大鼠 | Beijing HFK Bioscience Co., Ltd. | Wistar; SCXK (Jing) 2019-0008 | 无特定病原体级雄性,6–8 周龄,体重 180–220 g |
| MasR 抗体 | Alomone Labs | AAR-013; RRID: AB_2039972 | 抗 Mas 受体抗体;WB 1:200;IHC/IF 1:100 |
| mHypoA-2/10 细胞 | Cedarlane Laboratories Ltd. | CLU176; RRID: CVCL_D384 | 小鼠下丘脑神经元细胞系;传代次数 3–20 |
| 酶标仪 | Thermo Scientific | Multiskan FC; Cat. No. 51119000 | CCK-8 和 ELISA 吸光度测定 |
| MLN-4760 | Beyotime Biotechnology | SF1197 | ACE2 抑制剂;细胞实验中使用浓度为 10 µmol/L |
| 小鼠 IL-1β ELISA 试剂盒 | Invitrogen/Thermo Fisher Scientific | 88-7013A-88 | 小鼠 IL-1β 定量检测 |
| 小鼠 TNF-α ELISA 试剂盒 | Beyotime Biotechnology | PT512 | 小鼠 TNF-α 定量检测 |
| NF-κB p65 抗体 | Cell Signaling Technology | 8242; RRID: AB_10859369 | NF-κB p65 (D14E12) XP 兔单克隆抗体;WB 1:1,000 |
| 无创尾套系统 | Visitech Systems | BP-2000-R-4 | 大鼠尾套式血压采集与加热系统 |
| 去甲肾上腺素检测试剂盒 | Cloud-Clone Corp. | HEA907Ge | 去甲肾上腺素定量检测 |
| p-CREB 抗体 | Cell Signaling Technology | 9198; RRID: AB_2561044 | 磷酸化 CREB (Ser133) (87G3) 兔单克隆抗体;WB 1:1,000 |
| 青霉素–链霉素 | Gibco/Thermo Fisher Scientific | 15140122 | 细胞培养抗生素添加剂 |
| 光电二极管阵列检测器 | Shimadzu Corporation | SPD-M20A | HPLC 紫外–可见光/PDA 检测,波长 360 nm |
| p-NF-κB p65 抗体 | Cell Signaling Technology | 3031; RRID: AB_330559 | 磷酸化 NF-κB p65 (Ser536) 抗体;WB 1:1,000 |
| PVDF 膜 | Beyotime Biotechnology | FFP77 | 0.45 µm Western blot 转膜膜 |
| 槲皮素标准品 | Beyotime Biotechnology | SM2147 | 槲皮素参考标准品;HPLC 检测纯度 ≥98% |
| 大鼠 IL-1β ELISA 试剂盒 | Elabscience Biotechnology Inc. | E-HSEL-R0002 | 大鼠 IL-1β 定量检测 |
| 大鼠 TNF-α ELISA 试剂盒 | Elabscience Biotechnology Inc. | E-HSEL-R0001 | 大鼠 TNF-α 定量检测 |
| 实时 PCR 系统 | Bio-Rad Laboratories, Inc. | CFX96 Touch; Cat. No. 1855195 | 实时定量 PCR 扩增及熔解曲线分析 |
| RIPA 裂解缓冲液 | Beyotime Biotechnology | P0013B | 蛋白质提取 |
| 芦丁标准品 | Beyotime Biotechnology | SM2159 | 芦丁参考标准品;HPLC 检测纯度 ≥98% |
| 槐花对照药材 | 中国食品药品检定研究院(NIFDC),北京,中国 | 121270;批号 121270-201403 | 经认证的植物对照药材,用于 S. japonicum 花蕾的真伪鉴定 |
| 槐(Styphnolobium japonicum)花蕾 | 研究用植物材料 | 不适用 | 干燥未开放花蕾,经与 NIFDC 槐花对照药材比对鉴定真伪 |
| 总 CREB 抗体 | Proteintech Group, Inc. | 12208-1-AP; RRID: AB_2245417 | 总 CREB 兔多克隆抗体,用于磷酸化 CREB 信号的归一化 |
| TRIzol 试剂 | Invitrogen/Thermo Fisher Scientific | 15596026 | RNA 提取 |
| TUNEL 细胞凋亡检测试剂盒 | Beyotime Biotechnology | C1086 | 神经元细胞凋亡检测 |
| 缬沙坦 | Sigma-Aldrich | SML0142 | AT1 受体拮抗剂;作为降压阳性对照 |
参考文献
- He X, et al. Local and traditional uses, phytochemistry, and pharmacology of Sophora japonica L.: a review. J Ethnopharmacol. 2016;187:160-182.
- Madden E, McLachlan C, Oketch-Rabah H, Calderon AI. United States Pharmacopeia comprehensive safety review of Styphnolobium japonicum flower and flower bud. Phytother Res. 2022;36(5):2061-2071.
- Shi W, et al. Bioactive flavonoids from Flos Sophorae. J Nat Med. 2017;71(3):513-22.
- Paniwnyk L, Beaufoy E, Lorimer JP, Mason TJ. The extraction of rutin from flower buds of Sophora japonica. Ultrason Sonochem. 2001;8(3):299-301.
- Xie Z, et al. Extraction and isolation of flavonoid glycosides from Flos Sophorae Immaturus using ultrasonic-assisted extraction followed by high-speed countercurrent chromatography. J Sep Sci. 2014;37(8):957-965.
- Wang G, et al. Efficient extraction of flavonoids from Flos Sophorae Immaturus by tailored and sustainable deep eutectic solvent as green extraction media. J Pharm Biomed Anal. 2019;170:285-294.
- Le NT, Nguyen TPD, Ho DV, Phung HT, Nguyen HT. A green method to extract rutin from Sophora japonica L. MethodsX. 2023;11:102479.
- Liu Y, et al. Sophora japonica flowers and their main phytochemical, rutin, regulate chemically induced murine colitis in association with targeting the NF-kappaB signaling pathway and gut microbiota. Food Chem. 2022;393:133395.
- Hao G, et al. Rutin inhibits neuroinflammation and provides neuroprotection in an experimental rat model of subarachnoid hemorrhage, possibly through suppressing the RAGE-NF-kappaB inflammatory signaling pathway. Neurochem Res. 2016;41(6):1496-1504.
- Dabeek WM, Marra MV. Dietary quercetin and kaempferol: bioavailability and potential cardiovascular-related bioactivity in humans. Nutrients. 2019;11(10):2288.
- Patel RV, et al. Therapeutic potential of quercetin as a cardiovascular agent. Eur J Med Chem. 2018;155:889-904.
- Han X, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010.
- Le K, et al. Quercetin alleviates neonatal hypoxic-ischemic brain injury by inhibiting microglia-derived oxidative stress and TLR4-mediated inflammation. Inflamm Res. 2020;69(12):1201-1213.
- Mi Y, Wu Q, Yuan W, Chen F, Du D. Role of microglia M1/M2 polarisation in the paraventricular nucleus: new insight into the development of stress-induced hypertension in rats. Auton Neurosci. 2018;213:71-80.
- Wei B, et al. Microglia in the hypothalamic paraventricular nucleus sense hemodynamic disturbance and promote sympathetic excitation in hypertension. Immunity. 2024;57(9):2030-42.e8.
- Wang M, et al. Microglia-mediated neuroinflammation: a potential target for the treatment of cardiovascular diseases. J Inflamm Res. 2022;15:3083-3094.
- Xu P, Sriramula S, Lazartigues E. ACE2/ANG-(1-7)/Mas pathway in the brain: the axis of good. Am J Physiol Regul Integr Comp Physiol. 2011;300(4):R804-817.
- Bader M. ACE2, angiotensin-(1-7), and Mas: the other side of the coin. Pflugers Arch. 2013;465(1):79-85.
- Sriramula S, Cardinale JP, Lazartigues E, Francis J. ACE2 overexpression in the paraventricular nucleus attenuates angiotensin II-induced hypertension. Cardiovasc Res. 2011;92(3):401-408.
- Silva AQ, Santos RA, Fontes MA. Blockade of endogenous angiotensin-(1-7) in the hypothalamic paraventricular nucleus reduces renal sympathetic tone. Hypertension. 2005;46(2):341-348.
- Biancardi VC, Stranahan AM, Krause EG, de Kloet AD, Stern JE. Cross talk between AT1 receptors and Toll-like receptor 4 in microglia contributes to angiotensin II-derived ROS production in the hypothalamic paraventricular nucleus. Am J Physiol Heart Circ Physiol. 2016;310(3):H404-115.
- Sun XY, et al. Rutin prevents tau pathology and neuroinflammation in a mouse model of Alzheimer’s disease. J Neuroinflammation. 2021;18(1):131.
- Shi P, et al. Brain microglial cytokines in neurogenic hypertension. Hypertension. 2010;56(2):297-303.
- Shen XZ, et al. Microglia participate in neurogenic regulation of hypertension. Hypertension. 2015;66(2):309-316.
- Simko F, et al. Effect of melatonin on the renin-angiotensin-aldosterone system in L-NAME-induced hypertension. Molecules. 2018;23(2):265.
- Selamoglu Talas Z. Propolis reduces oxidative stress in L-NAME-induced hypertension rats. Cell Biochem Funct. 2014;32(2):150-154.
- Moreira JD, et al. Inhibition of microglial activation in rats attenuates paraventricular nucleus inflammation in Gαi2 protein-dependent, salt-sensitive hypertension. Exp Physiol. 2019;104(12):1892-910.
- Wu Y, Sun R, Ren S, Zengin G, Li M. Neuronal reshaping of the tumor microenvironment in tumorigenesis and metastasis: bench to clinic. Medicine Advances. 2025;3(4):364-371.
- Xu J et al. Advancements in imaging technologies and AI integration for neurodegenerative disease management: a narrative review. Mol Imaging. 2025;24:15353508251393056.