本方案建立了一种可重复的方法,用于从小鼠乳腺组织和乳腺肿瘤组织中制备高活性的单细胞悬液,同时保留细胞表面表位,以便后续进行流式细胞术和单细胞RNA测序等分析。
本文内容
摘要
摘要
将组织解离为单细胞悬液以进行分析,有助于理解肿瘤微环境中的细胞水平变化。在 获取和利用原代细胞的过程中,长期存在的挑战是制备高质量的细胞悬液,以保持细胞特性,满足后续处理的需求,包括单细胞RNA测序(scRNA-Seq)或通过流式细胞术进行免疫表型分析。通常,组织解离采用机械破碎、酶消化和过滤相结合的方法,而每个步骤中的多个因素都会导致最终产物的变异性。因此,必须进行优化,以确定最适合特定组织类型的解离方法。例如,乳腺脂肪垫组织富含脂肪细胞,使得获得纯净的细胞悬液并成功维持细胞活力更具挑战性。因此,从乳腺脂肪垫组织和上皮样肿瘤中制备可比的细胞悬液较为困难。本方案建立了一种可重复且经济高效的方法,用于从小鼠乳腺及肿瘤组织中制备高活力的单细胞悬液,并保留细胞表面表位,以便进一步分析。该方法已成功用于构建高质量的scRNA-Seq文库,并通过多参数流式细胞术完成免疫表型分析。
引言
组织解离能够获得单细胞悬液,并实现对组织内细胞类型的表征。这一点在分析免疫治疗反应时尤为重要,因为浸润的免疫细胞有助于阐明组织特异性免疫应答的潜在机制。使用编码 HER2/neu 癌基因的脱氧核糖核酸(DNA)进行疫苗接种,可在小鼠模型中增强对自发性 HER2/neu 驱动的乳腺肿瘤的保护作用1。此外,研究表明 DNA 疫苗接种可诱导系统性免疫反应,其特征是产生抗体以及分泌干扰素-γ(IFN-γ)的 T 细胞1,2,3。基于此,我们致力于开发一种用于解离乳腺肿瘤及富含脂肪的乳腺组织的实验方案,以实现对局部免疫细胞的定量分析。将组织解离为单细胞,需要采用酶解法、机械法,或两者联合的方法。酶解法面临的一个挑战是,这些方法通常需要长时间的酶处理,常需过夜4。过度暴露会导致单个细胞及其表面标志物的降解,对免疫细胞的损害尤为严重5,6。机械消化可能是释放淋巴细胞和巨噬细胞等免疫细胞的有效方法,但其无法有效分解间质,因而难以获得具有代表性的上皮细胞和间质细胞样本。近年来,微流控技术在组织解离中的应用已被探索,并首次用于在溶液中破碎细胞聚集体7。有研究团队采用微流控方法,利用装置内的剪切力进一步分解切碎的组织8。在优化解离 60 分钟后,该方法在乳腺组织中获得的上皮细胞数量是传统酶解法的 2 倍,内皮细胞数量则达到后者的 4 倍。然而,在肝脏样本中测定肝细胞得率时出现了挑战,肝细胞得率随时间下降,可能与其细胞体积较大且脆弱有关。因此,找到一种平衡方法,既能获得包含多种细胞类型的纯净且具代表性的样本,又能最大限度地保持细胞完整性和表面表位,显得至关重要。
消化混合液中常用的酶通常包括多种胶原酶9,10、胰蛋白酶(《固体组织解离指南》)4,10,11、透明质酸酶9,10,11或中性蛋白酶4,9,10,其有效消化所需时间各不相同。本方案中主要使用两种特定类型的胶原酶——II型胶原酶和胶原酶D作为消化的主要酶,并辅以乙二胺四乙酸(EDTA)通过螯合作用进一步削弱细胞间连接。II型胶原酶是由Clostridium histolyticum产生的主要解离酶,可促进细胞外基质中胶原小片段的降解。胶原酶D同样由C. histolyticum产生,已被广泛用于多种组织的解离,如肺、心脏、肌肉、骨骼、神经及内皮组织。该酶有助于保持细胞表面蛋白的功能性和完整性,这对于后续通过流式细胞术进行免疫表型分析至关重要。除胶原酶外,组织消化过程中还加入脱氧核糖核酸酶I(DNase I),以降解游离DNA,从而从最终的细胞悬液中清除DNA。
乳腺组织解离过程中特有的另一个挑战是样本中存在脂肪细胞。随着小鼠年龄增长,乳腺脂肪垫会积聚大量脂肪细胞。这些细胞更为脆弱,在后续处理过程中容易破裂,从而将RNA和细胞内碎片释放到细胞悬液中,增加环境RNA污染,干扰单细胞RNA测序(scRNA-Seq)文库构建,并降低样本质量。细胞外DNA可能导致细胞聚集;因此,初始酶解后残留的任何脂肪细胞都必须被清除,以维持样本的完整性。幸运的是,可利用脂肪细胞的浮力特性,在离心过程中促进其与其余细胞的分离。采用特定的离心方案后,脂肪细胞会保留在上清液表面,从而可在弃去上清液时一并去除,避免其混入主要的细胞沉淀中。虽然逐步减速离心并非必需步骤,但它可减少离心管内的科里奥利力,有助于使脂肪细胞保持在顶部清晰分层,特别是在处理富含脂肪细胞的乳腺组织,或以去除脂肪细胞为主要研究目标时尤为有效12,13。
基于这些组织特异性的考量,我们致力于建立一种经济高效、无需特殊设备、并能从亲本组织中稳定获取高质量且可重复的代表性细胞样本的实验方案。
方案
本方案中的所有操作均依照美国公共卫生服务局关于实验动物使用政策的规定,并经密歇根州立大学机构动物护理与使用委员会批准后进行。
1. 从小鼠肿瘤组织和乳腺组织制备单细胞悬液:
组织消化
- 将所有多余的或未使用的鼠类组织弃置于生物废弃物中。将被鼠类组织或细胞污染的塑料制品放入生物废弃物中进行处理。将含细胞的溶液收集到生物液体废弃物容器中,并在丢弃前用10%次氯酸钠处理。
- 确保在组织消化前立即配制新鲜的组织消化液。每个样品需要10 mL消化液(10 mL RPMI培养基、60 U DNase I、25 mg Collagenase D、50 mg Collagenase type II)。配制后室温(RT)保存,直至使用。
- 通过颈椎脱位处死小鼠,辅以双侧气胸作为二次安乐死方法,可选择是否同时进行放血。
- 将小鼠仰卧放置,四肢向外伸展并用针固定。
- 用70%乙醇彻底喷洒小鼠全身,以防止松散毛发对样本造成污染。
- 从腹股沟脂肪垫至颈部沿中线做一条切口,注意不要刺破腹膜,随后沿每条腿向下再做切口,形成倒“Y”形切口。
- 将皮肤向外拉伸,使用钝性分离技术将皮肤与下方腹膜分离,并将皮肤平铺固定在解剖板上。
- 取出中等大小的肿瘤或乳腺组织/脂肪垫,并置于含有5 mL R10细胞洗涤培养基(R10即RPMI培养基)的50 mL锥形管中,培养基中含10%胎牛血清(FBS)。
- 应尽可能避免使用坏死或充满血液的肿瘤(外观颜色深且质地柔软)。
- 在生物安全柜内,仅将乳腺脂肪垫和肿瘤转移至洁净的培养皿中。使用两把外科手术刀片将组织充分切碎,直至形成糊状,然后将其转移至洁净的50 mL离心管中。此步骤在室温下进行。
- 每份样品加入10 mL消化液。
- 在37 °C振荡培养箱中以250转/分钟(rpm)振荡孵育30分钟。
- 加入0.5 M EDTA,使终浓度达到10 mM(每10 mL消化缓冲液中加入200 µL EDTA)。
- 放回37 °C振荡培养箱,继续以250 rpm振荡孵育5分钟。
- 加入40 mL R10细胞洗涤培养基以终止反应。
- 将消化后的细胞通过70 µm滤网过滤至洁净的50 mL离心管中,以去除组织块。
- 在4 °C条件下,以500 × g离心10分钟(加速度设为9,减速度设为6),使细胞沉淀。(若仅关注淋巴细胞,则可将离心力降低至300 × g,离心5分钟)14。由于此过程涉及富含脂肪细胞的乳腺组织解离,采用较低的刹车设置有助于维持离心过程中脂肪细胞因漂浮特性所形成的梯度13。
- 将上清液弃入生物废弃物中,重悬沉淀,加入40 mL细胞洗涤培养基,然后按上述条件再次离心(步骤1.15)。后续步骤中可恢复为全速刹车。若未恢复,也不会对样本造成负面影响。
- 用40 mL R10细胞洗涤培养基洗涤,按步骤1.15进行离心,共洗涤3次。
- 重悬细胞沉淀,加入2 mL冰冷的1 × PBS重悬细胞。
- 加入两倍体积的1×红细胞裂解缓冲液。将10×裂解缓冲液浓缩液用水稀释至1×(例如:2倍体积 = 2 mL 1× PBS + 4 mL裂解缓冲液)。此步骤在室温下进行。
- 室温孵育5分钟,期间轻轻颠倒离心管数次以混匀。
- 加入等体积的R10细胞洗涤培养基以中和红细胞裂解缓冲液。
- 将细胞悬液通过30 µm滤网过滤至15 mL离心管中,以去除细胞碎片。
- 用R10细胞洗涤培养基补足体积至15 mL。
- 在4 °C条件下,以500 × g离心10分钟。
- 完全去除上清液,将细胞沉淀重悬于细胞洗涤培养基中,最终体积不超过5 mL,用于细胞计数和活力评估。根据需要调整稀释度。随后进行流式细胞术染色或单细胞RNA测序(scRNA-seq)前处理。
- 除非另有说明,各步骤间应将细胞置于冰上保存。
2. 用于流式细胞术的单细胞悬液染色
- 将目标细胞转移至一个5 mL聚丙烯圆底管中,并置于冰上保存。
- 使用与荧光标记物偶联的特异性单克隆抗体(mAb),配制总体积为(n + 1)的细胞染色液 × 100 µL 使用流式 PBS(490 mL 1×PBS,10 mL FBS,0.5 g 叠氮化钠)配制。准备 (n+1) × 100 µ染色液的体积为 L,其中 n 为样本数(例如,6) × 100 µL = 600 µ5 个样品的 L)
注意:叠氮化钠在粉末状态下为致癌物。操作时应穿戴适当的个人防护装备,并将所有实验器具清洗干净,确保叠氮化物已溶解,方可将其弃置入化学废液收集容器中。 - 将每个待染色的样品在 4 ℃ 条件下离心 5 分钟 °500 x C g. 重悬于 100 µL染色溶液。将未染色对照组重悬于1000 µL 流 PBS。
- 避光覆盖试管,于4℃孵育 °15 分钟,C
注意:荧光标记的抗体在长时间暴露于光线下可能发生降解,因此在孵育及后续样品保存过程中应保持避光。 - 向每个染色后的试管中加入 1 mL 流式 PBS,于 500 x 克, 4 °C,5 分钟,用于洗涤。
- 弃去上清液,重悬沉淀,并在1 mL流式PBS中重悬细胞。按前述条件离心(步骤2.5)。
- 重复步骤 2.6,共进行三次洗涤。弃去上清液,并重悬沉淀。
- 根据后续染色需求,将细胞重悬于固定液或流式PBS中。
- 若需固定细胞或进行细胞内染色,请执行此步骤;否则,继续进行步骤 2.10:
- 加入200 µ向每个样本中加入 L 的透化/固定溶液,以允许 核内染色
- 用铝箔覆盖细胞,在 4 ℃ 下孵育至少 20 分钟 °C. 若计划在另一天运行样本,可将样本加盖后保存于 4 °C 在此步骤中过夜。
- 固定后,将样品在500 x g 5 分钟,然后重悬于 1 × 通透缓冲液(用水稀释)。
- 若进行二抗或细胞内染色,请在1x破膜缓冲液中按所需稀释比例对样本进行染色。将盖好的试管置于4℃孵育器中孵育。 °15–20 分钟,温度为 C
- 向每管染色后的样本中加入 1 mL 1x 透化缓冲液,于 500 x g 条件下离心 g 5 分钟洗涤。
- 弃去上清液,重悬沉淀,并将细胞重悬于1 mL 1×透化缓冲液中。按前述条件离心(步骤9.5)。
- 重复步骤 2.9.6,共洗涤三次。弃去上清液,重悬沉淀。
- 将细胞重悬于 200 µ加入1×破膜缓冲液,置于冰上,直至准备上流式细胞仪检测。
- 若不固定细胞,将细胞重悬于 200 µ加入流式PBS至终体积为L,置于冰上保存,待用流式细胞仪检测。
- 对于单细胞RNA测序分析,遵循实验方案去除碎片和死细胞,评估RNA质量,并构建文库。
3. 单细胞RNA测序文库质量评估
- 观察高质量地比对到细胞的测序读段所占的高比例。理想情况下,该数值应高于 90%。
- 比较唯一分子标识符(UMI)计数与条形码的关系。高质量样本在约 10,000 个条形码(“条形码秩图”上的“拐点”)处会出现 UMI 计数的急剧下降。
- 检查均匀流形近似与投影图(UMAP)。来自复杂组织(如乳腺或自发性乳腺肿瘤)的高质量样本应呈现出明显且分离良好的细胞簇。
- 确定线粒体(mt-)基因的表达数量;线粒体基因数量较高的细胞簇表明这些细胞处于死亡或濒死状态。
结果
HER2 是一种肿瘤癌基因,可导致女性发生侵袭性乳腺肿瘤,高达 70% 接受 HER2 靶向单克隆抗体治疗的女性患者对治疗无应答或会发展出对 HER2 靶向治疗的耐药性15,16,17,18。最终目标是激活针对 HER2/neu 的免疫应答,以增强 HER2 免疫力并提高生存率。为研究 HER2/neu 免疫反应,通常采用具有完整免疫能力的小鼠模型,这些模型可自发产生由 HER2/neu 驱动的乳腺肿瘤2,19。HER2 由人类 Erbb2 基因编码,neu 则由大鼠 Erbb2 基因编码。BALB NeuT 小鼠携带一种由 MMTV 启动子驱动的转化型大鼠 neu(NeuT)转基因19。Neu 在 BALB 背景的青春期雌性小鼠乳腺组织中表达,导致所有转基因雌鼠在任一或全部乳腺中均出现导管癌(图 1A,插图)。持续表达 neu 基因会导致小鼠在 14 至 19 周龄之间出现可触及的肿瘤,并呈进行性生长1。使用编码自体 neu 和异源 HER2 的质粒 DNA(称为 pNeuE2TM)对转基因小鼠进行免疫接种,可打破对 neu 的免疫耐受,从而诱导系统性 neu 靶向多克隆抗体和分泌 IFN-γ 的脾脏 T 细胞增加1。该免疫应答可导致表达 neu 的 TUBO 肿瘤细胞被排斥。尽管系统性免疫反应具有重要信息价值,但其无法揭示肿瘤局部的作用机制。因此,我们致力于开发一种适用于乳腺组织及乳腺肿瘤组织的解离方案,以获得高活力的单细胞悬液,同时保留细胞表面标志物。图 1 展示了整体工作流程。简而言之,组织采集后,使用手术刀将其精细剪碎(图 1B),置于基于 RPMI 的组织消化缓冲液中,在振荡培养箱中孵育 30 分钟(图 1C–D),消化缓冲液中含有胶原酶 II 与胶原酶 D 按 2:1 比例混合,并加入 DNase I;随后加入 0.5 M EDTA 继续孵育 5 分钟(图 1E)。通过添加含 FBS 的洗涤缓冲液终止消化反应,然后过滤以去除组织碎片(图 1F)。经过洗涤步骤和红细胞裂解(图 1G–H)后,细胞通过 30 µm 细胞筛过滤并进行计数(图 1I–K 和 图 2)。此时,细胞可用于后续实验流程,如流式细胞术或单细胞 RNA 测序(scRNA-Seq)。
为了进行直接比较,使用商业试剂盒平行进行了组织解离。按照已发表的方案处理“坚韧型”肿瘤,酶反应终止后,样本以相同方式处理(即红细胞裂解等)。使用该商业试剂盒时,回收到 1.3 × 10⁶ 个细胞/mL,细胞活力为 76%;而本方案回收到 4.5 × 10⁶ 个细胞/mL,细胞活力达 89%(图 2A、B)。在红细胞裂解后,两种方案产生的碎片量相似。为去除死细胞,分别从两种方案获得的 1 × 10⁷ 个细胞按照死细胞清除流程进行处理。商业试剂盒最终获得 1.3 × 10⁶ 个细胞/mL,细胞活力为 96%;而本方案获得 1.94 × 10⁶ 个细胞/mL,细胞活力达 98%(图 2C、D)。因此,本方案在无需特殊设备的情况下,可获得更高的活细胞得率,适用于后续分析。
为专门评估本方案所获得的细胞悬液的质量与可重复性,采集了16至18周龄未经处理的雌性BALB和BALB NeuT小鼠的乳腺组织样本。BALB NeuT组织包含乳腺组织和肿瘤组织。取小鼠腹股沟乳腺脂肪垫(乳腺第4和第9对)的组织,包括BALB NeuT小鼠的肿瘤组织,并将其消化为均一的单细胞悬液用于后续分析。注意:在采集乳腺组织前应先切除前哨淋巴结。
处理后,通过流式细胞术评估样本,以确认细胞表面标志物的保留情况及细胞活力(图3),并通过单细胞RNA测序(scRNA-Seq)分析(图4)验证用于文库构建的细胞制备质量。乳腺组织或肿瘤来源的单细胞在去除死细胞前的平均活力≥85%。为获得高活力的单细胞起始材料用于scRNA-Seq,可使用市售的去死细胞和去碎片试剂盒。按照这些方案处理后,单细胞悬液的活力范围为94%至98%(图2C、F)。本方案获得的细胞经固定后,与推荐用于scRNA-Seq的商业化“先固定后解离”方法进行比较,后者使用商业化的热蛋白酶(thermolysin)进行组织解离(图2E、F)。商业化“先固定后解离”方案每毫升获得1.5 × 10⁷个细胞,但由于其在解离前即固定组织,无法测定活力;而本方案从94%的起始活力中每毫升获得8.6 × 10⁶个细胞。因此,商业化“先固定后解离”方案获得的细胞数量与本研究所述方案相比相当或略高。
细胞经染色后,通过流式细胞术检测细胞表面标志物。上皮细胞(图3A)以及成纤维细胞(图3B)分别通过EpCAM和Pdgfrb/CD140a单克隆抗体染色鉴定。由于对BALB NeuT小鼠进行三次HER2/neu DNA疫苗接种可显著延迟肿瘤发生并诱导系统性免疫反应,因此特别值得关注的是评估乳腺组织和肿瘤中的免疫细胞。CD45+ 免疫细胞谱系的细胞约占细胞悬液的50%图3C)。使用 B220/CD45R 和 CD3 评估 B 细胞和 T 细胞的存在情况(图3D)和 CD3+T细胞进一步分为CD4和CD8图3E)。为了评估保留稀有细胞群体的能力,对样本进行了调节性T细胞染色。具体操作为:固定细胞样本,并对调节性T细胞特异的转录因子Foxp3进行染色。调节性T细胞通常仅占机体总免疫细胞群体的很小比例,但其在免疫系统调节中的作用在癌症研究和自身免疫性疾病领域备受关注。因此,在选择组织解离方案时,能否可靠地保留调节性T细胞等数量少但功能重要的免疫细胞群体至关重要。Foxp3+ 首先通过亚门控CD3鉴定调节性T细胞+CD4+ 用于检测CD25(高亲和力IL-2受体)和Foxp3的细胞。采用此设门策略,约5%的CD4+ 细胞对两种标记物均呈阳性,而约25%的细胞Foxp3阳性但CD25低表达或阴性(图3F)。在另一份肿瘤样本上检测CD64,以确认CD64的表达情况+ 巨噬细胞可利用该解离技术成功分离图3G)。为了鉴定更广泛的髓系细胞群体,F4/80+ 巨噬细胞和 F4/80- CD11c+ 细胞被鉴定为树突状细胞(图 3H)。树突状细胞约占总细胞的3%,而CD11b+Ly6G+ 中性粒细胞约占 5% (图 3H,I因此,在CD45中实现了表面表位的可靠回收与保存+ 使用上述方案解离乳腺组织和肿瘤组织后获得的细胞。
在提交用于单细胞RNA测序(scRNA-Seq)文库构建之前,可对样本进行RNA完整性评估。采用商业试剂盒方案或本文所报道方案制备的新鲜样本,其A260/A230比值分别为1.9和2.2。对于固定样本,则通过测定长度超过200个核苷酸(nt)的读段所占百分比进行评估。本文所述方案在完成后立即进行固定并储存在–80 °C,导致样本中83%含有测序读段 > 200 nt
样品质量
在完成单细胞RNA测序文库制备与测序后,对样本质量进行了评估(图4)。首先使用细胞识别和比对质量、条形码秩图、测序饱和度及UMAP投影等指标对scRNA-Seq样本文库进行评估。采用本文所述解离方案处理BALB乳腺组织,获得16,182个细胞,其中97%的读段被分配至细胞,表明样本状态良好,因分配至细胞外RNA的读段较少。若大量读段记录于细胞外,则提示存在较高水平的游离mRNA污染,通常来源于死亡或濒死细胞。比对质量指比对至探针集的探针所占百分比,本实验中为99.1%。测序饱和度趋于平稳,表明测序更多地重复检测已识别的基因,而非发现新的独特基因。条形码秩图显示UMI计数与条形码之间的关系,高质量样本在约10,000个UMI处呈现明显的下降拐点,即“膝点”(knee bend)。图 4A). 最后,UMAP 投影显示出多个明显不同的簇(图 4A)。所有这些指标均表明该单细胞 RNA 测序文库质量较高。
为了比较本方案与推荐的商业固定优先解离方案在Flex化学中的质量差异,将商业固定优先解离方案与本文所述方案并行操作,并对所获得的文库进行质量评估。针对BALB乳腺组织样本的商业固定优先解离方案共回收720个细胞,其中68%的序列位于细胞中,比对质量为89.3%。类似地,饱和曲线开始趋于平缓,但基因/细胞数显著低于活细胞解离方案(活细胞解离为4,500个基因/细胞,商业固定优先解离方案为1,000个基因/细胞)。条形码秩图未显示拐点(图4B),尽管存在明显的细胞簇,但数量较少(图4B)。
还对含有 BALB NeuT 肿瘤的乳腺组织文库进行了质量评估(图 4C,D)。采用本文所述的活体解离方法,共测序了 18,077 个细胞,其中 97% 的读段位于细胞内,99.1% 的读段比对至探针集。条形码秩图中可见明显的拐点(图 4C),且细胞簇之间具有清晰的分离(图 4C)。当存在肿瘤时,商用的先固定解离方案表现更优,共测序 7,119 个细胞,91% 的读段位于细胞内,98.6% 的读段比对至探针集。条形码秩图中的拐点更明显(图 4D),但尽管测序已达到饱和,UMAP 投影中仍仅有少数可分辨的细胞簇(图 4D)。
其他质量评估指标包括确定细胞簇中表达的线粒体基因数量。良好的细胞分离效果反映了样本质量,较高的“细胞内序列读段比例”表明样本状态良好。可通过开源或厂商提供的聚类工具识别并去除线粒体基因数量较高的细胞(标记为“mt-”)。通过使用 Cell Ranger 软件整合多个样本,可实现直接的样本间比较,从而进行并列的生物信息学分析;也可使用开源或厂商聚类工具中的“整合”(integration)脚本进行比较。通过查询已知的细胞谱系标志物(例如,免疫细胞的 CD45/Ptprc、上皮细胞的 EpCAM、成纤维细胞的 Fap 或 Pdgfra)来鉴定细胞簇。若某一细胞簇无法通过已知谱系标志物定义,可利用基因集富集分析工具分析其表达量最高的 10–15 个基因,以推断其可能的细胞类型;或者,也可通过参考细胞图谱工具查询这些高表达基因在已知细胞类型中的表达情况。
每个样本中线粒体基因数较多的细胞均被剔除,最终在BALB乳腺中保留了16,114个细胞(含高线粒体基因的细胞占0.5%),在BALB NeuT中保留了18,024个细胞(占0.3%)。在采用商业化的先固定后解离方案的样本中,BALB乳腺保留了627个细胞(含高线粒体基因的细胞占13%),BALB NeuT保留了6,181个细胞(占14%)。
本研究中对 BALB 和 BALB NeuT 乳腺组织进行了整合,用于此处所述的活细胞分离方案,结果如图4E、F所示。样本间的比较显示,文库之间的细胞群体相似(图4E、F以及表1)。根据已知的细胞谱系标志物对细胞簇进行注释,并对不同样本间进行了比较。免疫细胞群体包括T细胞、B细胞和巨噬细胞簇,而非免疫细胞群体则包括上皮细胞、成纤维细胞和内皮细胞。不出所料,BALB Neu7样本中多出了一群肿瘤细胞(图4F)。在特定细胞群体的分析中,携带肿瘤的BALB NeuT样本中巨噬细胞数量较多,而T细胞和非肿瘤上皮细胞数量较少。单细胞RNA测序(scRNA-Seq)分析显示,来自BALB乳腺组织的上皮细胞群体比例相当,而在NeuT样本中则存在显著的上皮/肿瘤细胞群体。降维图清晰地展示了正常乳腺驻留上皮细胞群体与BALB NeuT样本特异的上皮肿瘤细胞之间的明显区分(图4E、F)。
在建立上皮细胞群后,对BALB与BALB NeuT样本之间的基质细胞进行了评估。对成纤维细胞表达的血小板源性生长因子受体α(Pdgfrα)基因的分析显示,在BALB和BALB NeuT样本中均存在一个独特的成纤维细胞群体。在BALB的单细胞RNA测序(scRNA-Seq)样本中,表达Pdgfrα的成纤维细胞占细胞总数的15%,略低于流式细胞术分析结果(成纤维细胞占细胞总数的29%)(图3B)。在通过活力和单细胞状态设门后,采用PDGFRα(CD140a)标记物通过流式细胞术鉴定成纤维细胞。无论采用何种下游分析方法,各样本间观察到的结果均表明,该解离方案在不同时间点及多次实验中具有良好的一致性。
CD45蛋白由 Ptprc 基因及表达 Ptprc 的细胞的 RNA 测序揭示了样本中高度可识别的淋巴细胞簇(图4E)。为了进一步评估淋巴细胞亚群,使用B细胞和T细胞亚群标记物对细胞进行分析 Cd3e+ 或 Cd79a+ (图4E,F)。这些群体在单细胞测序数据分析中表现出明显差异,尽管scRNA-Seq进一步鉴定出若干亚群。 Cd3表达T细胞。测序分析中的其他免疫细胞计数显示,BALB NeuT样本中巨噬细胞数量增加,这由其表达水平所表明。 Itgam 和 Adgre1(F4/80) (图 4F). 为评估单细胞RNA测序(scRNA-Seq)中稀有细胞群体的鉴定能力,通过其Foxp3表达鉴定调节性T细胞(图 4F)。调节性T细胞存在于单细胞RNA测序文库中,但丰度不足以被识别为一个独立的细胞簇,而是与T细胞和自然杀伤(NK)细胞聚为同一簇。
最后,能够在单细胞RNA测序(scRNA-Seq)文库中鉴定中性粒细胞(PMNs)一直是一个令人困扰的问题,此前使用其他 commercially available 的乳腺组织解离方案均未能实现这一目标20。通过流式细胞术分析,约5%的免疫细胞被鉴定为表达Ly6G和CD11b的中性粒细胞(图3H)。为了在scRNA-Seq文库中识别中性粒细胞,建议使用厂商提供的分析流程对低于标准“拐点”(knee bend)的细胞进行重新聚类。该操作已应用于BALB和BALB NeuT小鼠乳腺组织的scRNA-Seq文库。通过点图(dotplot)比较了通常与巨噬细胞相关的基因(Ptprc, Adgre1, Mrc1)与中性粒细胞特异性表达的基因(S100a8, Trem1, Clec4)。结果显示,无论是BALB还是BALB NeuT文库中均未检测到显著数量的中性粒细胞(图5A、B)。然而,这一结果似乎依赖于小鼠模型的遗传背景,因为在BALB × PWK背景下的F1 NeuT小鼠中,发现了一个表达中性粒细胞标志物的细胞簇(图5C)。
因此,该解离方案能够阐明BALB小鼠及自发产生乳腺肿瘤的BALB NeuT小鼠乳腺组织中的细胞类型。由于所获得的细胞具有很高的活性,该技术可用于评估分离所得免疫细胞群体的抗肿瘤免疫反应及抗HER2/neu功能。
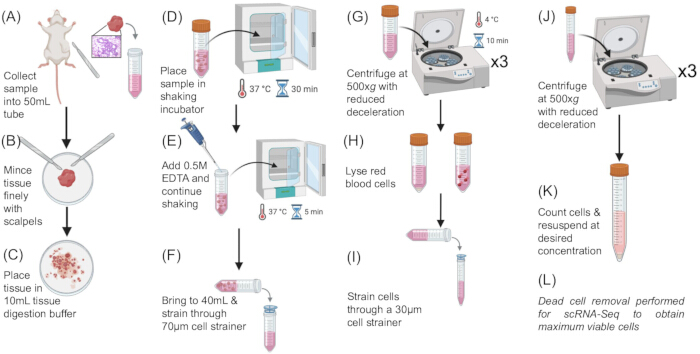
图1: 组织解离方案的工作流程 (A乳腺或肿瘤被切除 (B,C),精细切碎(D),并在指定条件下消化 37 °C,用胶原酶II型、胶原酶D与DNase I的混合液进行振荡消化(E)。加入EDTA,消化继续进行5分钟。F用含10% FBS的RPMI(R10洗涤培养基)定容至40 mL以终止消化,随后将悬液过滤通过 70 µm 滤光片。G细胞悬液以离心处理 4 °C 和 500 × g 孵育10分钟,然后用RPMI洗涤液洗涤3次。H使用基于氯化铵的10 × 红细胞裂解液裂解红细胞(RBC)。I使用 R10 洗涤缓冲液终止裂解,细胞悬液经滤膜过滤 30 µm 滤器。J,K红细胞裂解后,细胞在测定浓度和活力前需再洗涤三次。L若细胞用于单细胞RNA测序文库构建,应按照商品化试剂盒的说明书,去除死细胞和碎片。 请点击此处以查看此图的放大版本。
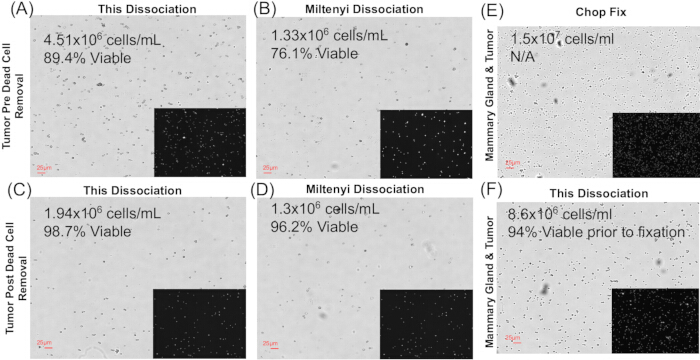
图2:解离方法比较。细胞计数与活力数据用于比较本文报道的解离方案、市售Miltenyi方案以及一种推荐用于单细胞RNA测序(scRNA-Seq)的商业化先固定后解离方案。解离后的细胞计数使用含吖啶橙/碘化丙啶(AO/PI)死细胞染色的自动细胞计数仪获得。在去除死细胞后进行细胞计数并记录活力。(A–B) 去除死细胞前的细胞计数与活力。(C–D) 去除死细胞后的细胞计数与活力,代表进入scRNA-Seq流程的样本状态。(E–F) 将本文报道的方案与商业化先固定后解离方案进行比较时的细胞计数与活力。由于组织样本在解离前已固定,因此无法使用含Liberase的方案在解离后评估活力。请点击此处查看该图的放大版本。
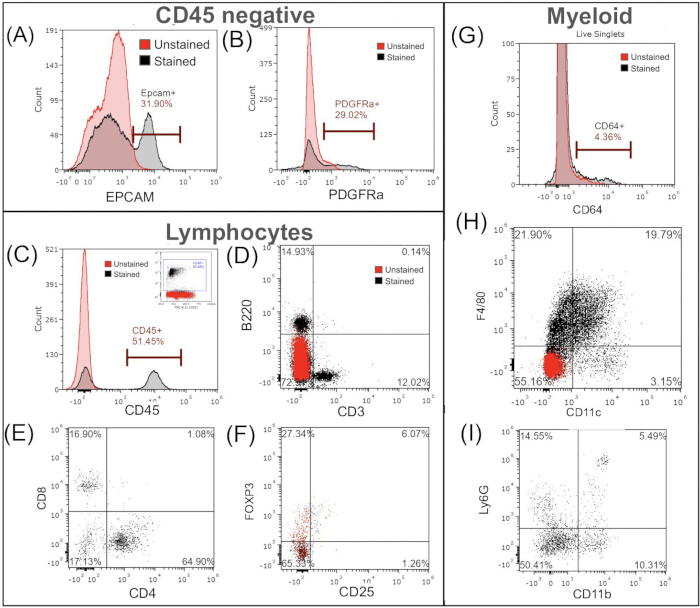
图3:组织解离后的流式细胞术分析 为确保免疫细胞的存在与活性,对具有代表性的 BALB 和 BALB NeuT 样本进行了分析。首先根据细胞活性进行设门,随后识别单细胞,再进行亚群鉴定。为确保上皮和间质谱系细胞的回收,首先对其进行评估。使用 EpCAM 鉴定来源于上皮的细胞(A), 和 PDGFRa 用于鉴定成纤维细胞(B) 为评估免疫细胞群体,乳腺中51%的总细胞为CD45阳性(CB细胞(B220)+)和T细胞(CD3+)细胞群由解离的小鼠乳腺组织获得(D)和 CD8+ 和 CD4+ 从肿瘤组织中对群体进行亚群分选(E为了确定该方案是否能够有效分离较为稀有的细胞群体,(F) 使用 Foxp3 评估肿瘤组织中的 Treg 细胞+ 表达。这是通过首先圈选CD3+ 和 CD4+ 群体,并在该群体中鉴定表达 Foxp3 的细胞+ 和 CD25+ (约6%)。G肿瘤组织中CD64+巨噬细胞的评估HCD11b+ 细胞进一步通过F4/80和CD11c的表达进行分析,其中F4/80− CD11c+ 鉴定为树突状细胞的细胞。I中性粒细胞被鉴定为表达 CD45 的细胞+,Ly6G+,以及 CD11b+,但为 F4/80−. 请点击此处以查看此图的放大版本。
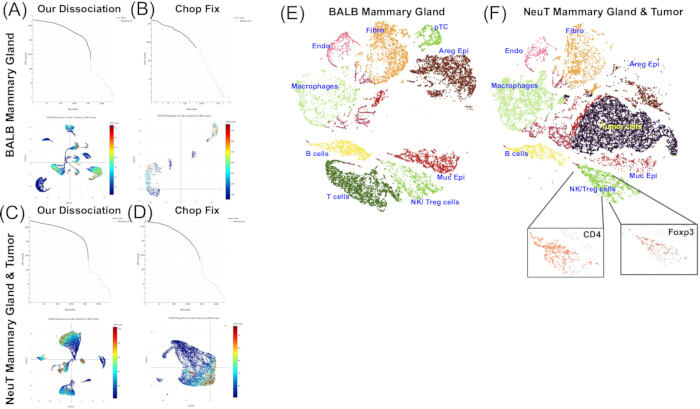
图4单细胞RNA测序文库的质量评估 固定后的样本用于构建单细胞RNA测序(scRNA-Seq)文库;可采用本文所述的活细胞解离方案,随后按照本论文中报道的方法进行固定,也可采用推荐的商业化的先固定后解离方案。A) 活细胞解离BALB乳腺单细胞RNA测序文库的质量控制。共测序16,182个细胞,其中97.1%的序列在细胞内被可靠比对,98.8%被可靠比对至过滤后的探针集。上方显示膝弯图,下方为UMAP投影图。明显的膝弯拐点和清晰的细胞聚类表明文库质量较高。B) 商业性先固定后解离方案的质量评估显示,BALB 乳腺单细胞 RNA 测序文库缺乏明显的拐点,细胞数量较少(n = 720)。CBALB NeuT 乳腺单细胞RNA测序文库是根据此处描述的方案生成的。共测序了18,077个细胞,其中97%的读段比对到细胞,98.9%比对到过滤后的探针集。明显的拐点结合清晰的细胞簇表明文库质量良好,而一种商业化的先固定后解离方案生成的BALB NeuT文库(D) 显示膝关节轻微弯曲,但在7,119个测序细胞中未见明显区分的细胞簇。文库构建完成后,使用Cell Ranger整合BALB与BALB NeuT乳腺组织文库,随后在Loupe Cell Browser中进行K均值聚类,以实现直接比较。T-SNE图显示,共有十个独特的细胞簇构成了BALB/c小鼠乳腺组织的细胞组成,如图所示(E,F). 在 NeuT 转基因(F) 乳腺中存在另一群肿瘤细胞。在淋巴细胞簇内 Cd4- 和 CD8a-表达细胞广泛分布于整个区域。 Cd4 插图中显示了表达情况。由Foxp3表达定义的调节性T细胞数量不足以形成独立的簇,而是与T细胞聚为同一簇,如高亮特征图所示。 请点击此处以查看此图的放大版本。
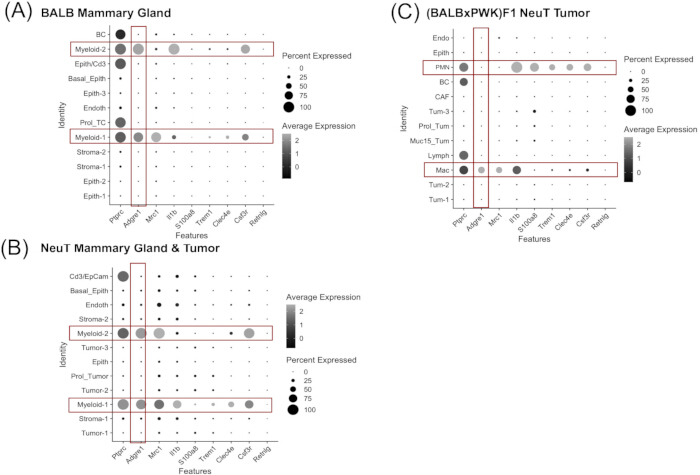
图5中性粒细胞(PMN)的鉴定 中性粒细胞由于RNA转录水平较低且质量较差,在单细胞RNA测序文库中 notoriously 难以识别 Ly6g 表达。在单细胞RNA测序文库中,可通过在Cell Ranger中使用“count”命令并在命令行中包含“force cell = 8000”选项来鉴定中性粒细胞(PMN)。该分析针对BALB(A) 和 BALB NeuT (B)乳腺组织文库,但很少有细胞表达中性粒细胞(PMN)特异性基因。在BALB和BALB NeuT小鼠中,所有髓系细胞簇均表达 Adgre1 (F4/80)和 Mrc1 (CD206)。在髓系细胞群体中,极少细胞表达中性粒细胞特异性基因 S100a8, Trem1,以及 Clec4e然而,这一发现是由于该模型的BALB遗传背景所致,因为此处所述利用(BALBxPWK)F1 NeuT雌性小鼠通过组织解离技术制备的scRNA-Seq文库显示C),未施加力细胞指令的情况下,观察到一群表达中性粒细胞(PMN)特异性基因但不表达 Adgre1。这表明该解离方案确实能够捕获中性粒细胞(PMNs)以及其他髓系细胞群体。红色矩形框突出显示表达特定标记的细胞簇 Adgre1. 请点击此处以查看此图的放大版本。
| BALB NeuT 肿瘤 | 流式细胞术 | 单细胞RNA测序(scRNA-Seq) |
| CD3 / 淋巴细胞 | 占总细胞的6% (占CD45+细胞的12%) | 占总细胞的7% |
| CD4 / Cd4 | 占总细胞的3.9% (占CD45+CD3+细胞的65%) | 占总细胞的4% |
| CD8 / Cd8a | 占总细胞的1% (占CD45+CD3+细胞的17%) | 占总细胞的0.9% |
| Foxp3 / Foxp3 | 占总细胞的0.8% (占CD3+CD4+细胞的33%) | 占总细胞的0.7% |
| F4/80 / Adgre1 | 占总细胞的20% | 占总细胞的16% |
| CD64 / Fcgr1 | 未检测(NT) | 占总细胞的14% |
| PMN/中性粒细胞 | 占总细胞的2%(占CD45+细胞的5%) | 占总细胞的0.05% |
| PDGFRa (CD140a) / 基质细胞 | 占总细胞的29% | 占总细胞的10% |
| EpCAM / 上皮细胞 | 占总细胞的32% | 占总细胞的54% |
| NT,未检测 |
表1:利用下游技术(包括单细胞RNA测序和流式细胞术)对此解离方案获得的细胞百分比进行比较。
讨论
该解离方案能够稳定地产生由代表性亲本组织细胞群组成的单细胞悬液。为了从乳腺组织中分离出具有代表性的细胞类型——包括较大的成纤维细胞和脂肪细胞干细胞——采用了500 × g 的离心力14,21,22。该方案可可靠地维持多种细胞类型的活力及细胞表面表位,包括免疫细胞、上皮细胞和基质细胞群体。该解离方案的一个操作优势是,从初始组织采集到获得可用于后续处理的纯净细胞悬液所需时间相对较短,且无需使用特殊设备。总体而言,整个流程从开始到结束大约需要三小时,相较于某些可能需要过夜酶消化的类似酶解方案更具优势。本方案自2023年起以所提供的形式在本实验室及其他实验室中开发并应用。仅在过去6个月内,本实验室已成功重复该方案37次,结果一致,且各级别受训人员均能顺利完成。除用于流式细胞术和单细胞RNA测序(scRNA-Seq)文库构建外,该方案还被用于分离肿瘤浸润淋巴细胞(TIL)和肿瘤相关巨噬细胞(TAM),以进行离体(ex vivo)功能分析。尽管结果表明该解离方案能够识别主要的细胞群体,但需注意的是,流式细胞术与单细胞RNA测序在本质上存在差异。流式细胞术旨在在单细胞水平上研究多种标志物的表达情况,并通过设门和次级设门策略实现这一目标;而单细胞RNA测序则旨在识别细胞簇中基因表达的变化,无需进行设门分析。
解决本方案中的问题包括:1)消化不完全:组织样本的消化效果在很大程度上受物理解离程度的影响。需将组织切碎至呈糊状,并摊开观察组织碎片的大小。此步骤所需时间通常比预期更长。解离不完全会导致间质细胞和上皮细胞数量减少,相较于免疫细胞更为明显。2)细胞活力偏低:细胞活力受消化时间影响,同时需确保胶原酶II型与胶原酶D的比例维持在2:1。若缺乏胶原酶II型,将显著降低细胞活力。此外,若样本活力介于70–85%之间,建议在提交样本进行单细胞RNA测序(scRNA-Seq)文库构建前,使用市售的死细胞去除系统,该系统可有效提高细胞活力。3)细胞碎片过多:细胞碎片通常是物理解离和消化过程中的副产物。最有效的去除方法是使用密度梯度介质,或使用密度显著降低的市售去碎片溶液。4)沉淀回收率低:样本回收率低主要受起始组织量的影响。本方案已针对2个乳腺组织或10–20 mg的中等大小肿瘤优化。若起始样本量少于单个乳腺组织或肿瘤体积小于约200 mm³,则可能导致回收率不佳。3,细胞产量会较低。如果组织体积较小,可将体积减少50%。同样,若存在较大肿瘤或多个乳腺组织(超过4个乳腺组织或肿瘤大于约25 mg),体积可增加至1.5倍 ×样品质量大于约25 mg时,应分份处理。5)单细胞RNA测序(scRNA-Seq)质量差:scRNA-Seq文库的质量几乎完全依赖于起始样品的质量。在处理肿瘤组织时,凝胶珠包埋(GEM)及cDNA生成的初始时间至关重要。因此,采用可自然过渡至立即进行RNA固定的实验方案,例如基于探针的固定RNA单细胞化学系统,可消除时间对样品质量的影响。尽管如此,在进入scRNA-Seq流程前评估RNA质量,仍可确保最终文库具有信息价值。6)细胞聚类数量低于预期:当scRNA-Seq结果显示出少数独特聚类中基因表达水平较低时,可对文库进行再次测序以增加读长数量(测序深度)。此外,若研究仅关注免疫细胞,则可在文库构建前富集CD45+细胞群体,以提高测序灵敏度。
上述提及的商业化固定与解离方案在处理脂肪组织时面临挑战。主要问题是固定的脂肪组织具有浮力,难以进一步解离和有效过滤。因此,不建议将本研究所用的商业化固定与解离方案应用于脂肪组织。在将组织解离为单细胞悬液之前进行固定,会消除质量控制步骤,例如固定后的细胞活力检测和解离效率评估,这使得在提交样本进行后续单细胞RNA测序(scRNA-seq)之前难以评估样本质量,而该评估是组织解离过程中必要的环节。用于后续scRNA-seq的组织固定可能降解RNA。可通过检测固定细胞样本中核苷酸(nt)读长来评估RNA质量。样本中具有较高比例的 >200 nt 读长,质量越高。RNA 完整性评分较高的样本将具有 >含有 reads 的样本的 30% >200 nt,并可高置信度地用于构建单细胞RNA测序文库。本研究中报道的BALB乳腺组织和BALB NeuT肿瘤组织的固定样本,其测序数据中分别有83%和82%的读段 >200 nt,分别。
富含脂肪组织的样本(如乳腺组织)会带来一定困难,因为脂肪细胞可能干扰高质量单细胞悬液的制备。大多数脂肪细胞会停留在锥形管顶部,可通过抽真空或倾倒上清液的方式去除。我们发现,对于脂肪含量极高的乳腺组织(例如来自新西兰肥胖小鼠(NZO)背景雌性小鼠的乳腺),需要增加一个额外步骤:使用洁净、无绒的实验室擦拭纸擦拭管壁顶部,以促进脂肪细胞的去除,随后进行额外的洗涤步骤,以彻底清除脂肪组织。乳腺组织的细胞得率通常较低。为缓解这一问题,应尽可能将多个样本合并,以提高细胞总产量。对于质地非常致密的肿瘤组织,充分剪碎至关重要,因为这可以减小胶原酶消化所需的表面积,从而在限定时间内获得高活性的单细胞悬液。
然而,该方案也存在一定的局限性。在获取异质性细胞混合物时,将上皮细胞完全消化为单细胞悬液具有挑战性。BALB NeuT 乳腺肿瘤通常质地较硬,具有肿瘤包膜和丰富的间质成分。相比之下,获取浸润性免疫细胞所需的酶消化时间较短,过度消化可能改变其表型状态。因此,为了收集肿瘤细胞和间质细胞,必须找到一个折中条件,以维持包括浸润性中性粒细胞在内的多种细胞类型的细胞质量。因此,通过本方案获得的上皮细胞与间质细胞的比例可能低于其在原始组织中的真实比例。本方案经过多次试验,优化了胶原酶的酶比例和解离时间,以确定获得高活力、高质量且异质性良好的细胞样本的最佳操作条件。利用该方案,未来的研究方向包括在乳腺肿瘤发生和进展过程中,对浸润性免疫细胞进行离体(ex vivo)功能分析,以识别潜在的治疗干预窗口期。
披露
作者无任何利益冲突需要披露。
致谢
本文部分数据的获取使用了密歇根州立大学研究办公室支持的基因组学核心设施(RRID: SCR_012406)的仪器 & 创新。
本工作由 CA278818 资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| DNA酶 | Invitrogen | 18047019 | |
| 胶原酶D | Sigma | 11088866001 | |
| 胶原酶II | 沃辛顿生物化学 | LS004177 | |
| 胎牛血清 | VWR | 97068-085 | |
| 10x PBS | Gibco | 70011-044 | |
| 叠氮化钠 | VWR | 0639-250G | |
| MACS Smart Strainer,70 µm | Miltenyi Biotec | 130-110-916 | |
| MACS Smart 过滤器,30 µm | Miltenyi Biotec | 130-110-915 | |
| EDTA | Millipore | 324506-100ML | |
| 10x 红细胞裂解缓冲液 | eBioscience/Invitrogen | 00-4300-54 | |
| Foxp3/转录因子固定/破膜试剂盒 | eBioscience/Invitrogen | 00-5523-00 | |
| Brilliant Stain 缓冲液 | Invitrogen | 00-4409-42 | |
| Mojosort 死细胞去除试剂盒 | Biolegend | 580157 | |
| MojoSort缓冲液(5倍浓缩) | Biolegend | 480017 | |
| Quick-RNA Miniprep Plus试剂盒 | Zymo Research | R1057 | |
| 小鼠肿瘤解离试剂盒 | Miltenyi Biotec | 130-096-730 | |
| PDGFRα PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | Biolegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| 可固定的活力染料 eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| FOXP3 APC | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | Biolegend | 101320 | |
| 10x Genomics GEM-X Flex 基因表达试剂盒 | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 临床FFPE样本);1000781 | |
| Attune NxT 流式细胞仪 | 赛默飞世尔科技 | 用于采集具有红色、蓝色和紫色激光通道的流式细胞术数据。 | |
| FCS Express | De Novo 软件 | 用于流式细胞术数据分析。 | |
| 美天旎肿瘤解离试剂盒 | 一种商用肿瘤解离试剂盒 | ||
| 美天旎试剂盒 / 美天旎方案 | 商用试剂盒" 或 "参考试剂盒 | ||
| Liberase 酶 | 一种商用的嗜热菌蛋白酶/胶原酶混合物 | ||
| 切碎固定 | 一种商业化的先固定后解离方案 | ||
| Flex化学 / Flex化学系统 | 一种基于探针的固定RNA单细胞化学技术 | ||
| Seurat | (https://satijalab.org/seurat/) | 开源与商业聚类工具 | |
| Cell Ranger | 开源与商业聚类工具 | ||
| Loupe 细胞浏览器 | 开源与商业聚类工具 | ||
| EnrichR | https://maayanlab.cloud/Enrichr/) | 基因集富集与参考细胞图谱工具 | |
| 小鼠细胞图谱 | https://tabula400muris.sf.czbiohub.org/visualizations | 基因集富集与参考细胞图谱工具 | |
| Tabula Sapiens | https://tabula-sapiens.sf.czbiohub.org/ | 基因集富集与参考细胞图谱工具 | |
| Cellometer K2" 仪器和 "吖啶橙/碘化丙啶(AOPI)" | 使用碘化丙啶/碘化丙啶(AO/PI)活力染色的自动细胞计数器 | ||
| Kimwipe | 无绒实验室擦拭纸 | ||
| STEMCELL Technologies | 密度梯度介质(例如,Ficoll 或 Percoll 型介质) | ||
| Ficoll/Percoll | #10 手术刀片 | ||
| 两把 #10 手术刀 | |||
| Cellometer K2 + AOPI 试剂 | 使用吖啶橙/碘化丙啶(AO/PI)活力染色的自动细胞计数仪 | ||
| STEMCELL Technologies | STEMCELL 技术,www.stemcell.com,2018 | ||
| Ficoll/Percoll | 一种密度梯度介质 | ||
| #10 手术刀片 | 手术刀片 | ||
| Foxp3/转录因子固定/透化试剂盒 | 可商业获取的用于细胞核内染色的溶液 |
参考文献
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
重印与许可
本文已发表
视频即将推出