本研究介绍了一种利用去核牛卵母细胞获得濒危鹿类物种克隆胚胎的实验方案。本文详细描述了种间体细胞核移植的技术方法,以及使用无透明带卵母细胞作为胞质受体的操作流程。此外,还深入讨论了所获得的实验结果。
本文内容
摘要
摘要
用于动物的繁殖生物技术能够增加具有高遗传价值物种的种群数量。此外,这些技术有助于保护、保存和传播具有优良特性的个体的遗传材料。对选育个体进行遗传拯救已促使大量针对家养动物物种的研究,旨在将研究成果外推至其他动物种群或特定个体。其中一种方法是体细胞核移植(SCNT),即克隆技术,通过该技术可产生遗传物质与现有个体完全相同的胚胎。该技术的局限性之一在于难以获得充足的野生动物卵母细胞。因此,作为一种替代方案,异种体细胞核移植(iSCNT)应运而生,该方法采用待克隆物种的体细胞(核供体)作为核供体,并将其移植到去核卵母细胞(胞质受体)中,而该卵母细胞来源于不同目或分类群的物种。这一方法使得获得可存活的克隆胚胎成为可能。在巴西,共有九种鹿类,其中许多因无节制的狩猎、栖息地丧失及其他原因而濒临灭绝。南美泽鹿(Mazama americana)便是受此威胁的物种之一。因此,本研究提出一种利用iSCNT技术获得南美泽鹿克隆胚胎的方法,旨在建立胚胎库,以便后续移植至受体雌性个体,从而帮助确保该物种的生存。
引言
鹿科目前包括55种具有真正鹿角的有蹄类哺乳动物——这些骨质结构暴露在头骨上部,通常仅雄性拥有,但驯鹿(Rangifer tarandus)例外,其雌雄个体均具有鹿角1;而麋鹿(Hydropotes inermis)则两性均无鹿角2。鹿科属于偶蹄目(Cetartiodactyla),该目还包括叉角羚科、牛科、猪科、西貒科、骆驼科、鼷鹿科、长颈鹿科和河马科。总体而言,鹿科动物为草食性反刍动物,分布于全球多种生境中,仅南极洲除外3。
目前在巴西已确认有九个属于鹿科的物种: Odocoileus virginianus (白尾鹿), Blastocerus dichotomus (沼泽鹿), Ozotoceros bezoarticus (潘帕斯鹿), Mazama americana, Mazama rufa, Mazama jucunda,Mazama nana,Subulo gouazoubira,以及 Passalites nemorivagus4.
该分类系统反映了近期的分子研究结果,表明Mazama属为多系群5,从而确立了Subulo6和Passalites7为独立的有效属。这些新热带鹿科动物正日益受到人类活动压力的威胁,包括栖息地丧失、景观破碎化,以及因种群隔离而导致的遗传多样性下降8。
在过去100年中,辅助生殖技术最初在实验哺乳动物中成功应用,并正逐步推广至具有高度保护优先级的野生动物物种9。因此,绝大多数生殖生物技术均基于哺乳动物模型发展而来,该类群也因此获得了大部分的研究关注。已有多种生殖技术被成功应用于哺乳动物,包括人工授精、胚胎移植、体外受精、配子与胚胎性别鉴定,以及遗传资源的冷冻保存10。然而,其中一项技术——体细胞核移植(SCNT)——因其在濒危物种中的应用成果及潜在影响而尤为突出11。
在现有的生殖生物技术中,克隆技术能够产生与供体动物基因完全相同的个体。体细胞核移植(SCNT)是克隆的主要策略,该方法将体细胞的细胞核导入去核的卵母细胞中。然而,在野生动物物种中,该技术的应用常受到卵母细胞供体稀缺以及卵母细胞回收技术困难的限制12。这些限制促使了异种体细胞核移植(iSCNT)的发展,作为保护项目中的一种补充手段,即利用家养动物的卵母细胞作为受体胞质,接受来自濒危物种的细胞核(图1)。已有研究通过iSCNT成功获得多种野生物种的活产后代,证明了该方法的可行性13,14,15。
根据卵母细胞和供体细胞的操作方式不同,已有多种策略被提出用于克隆胚胎的制备。在传统方法中,保留完整透明带的卵母细胞首先被去核,随后将供体细胞引入卵周隙,并通过电融合技术进行融合16。另一种方法是利用显微操作技术(如显微注射)将体细胞核直接注入带有透明带的卵母细胞中17。相比之下,无透明带(ZP-free)系统通过省去多个显微操作步骤简化了克隆流程,因为去核过程可使用钝口移液器完成,无需复杂的设备18。在本实验中,我们拟在异种体细胞核移植(iSCNT)过程中使用无透明带卵母细胞作为胞质受体,结合牛胞质与鹿供核,以获得克隆胚胎。
方案
一只成年雌性红短角鹿由巴西塞阿拉州瓜拉米尔anga的环境主管部门救助4°13'53.0'' S, 38°56′42.6″ W)。该动物尸体被送至巴西塞阿拉州立大学(UECE)新热带鹿类保护实验室(LACCERNE),位于福塔莱萨。尸体剖检结果显示,死亡原因为火器弹丸从左侧背外侧腹部射入所导致的多发性创伤性损伤。本研究使用该标本已获得塞阿拉州立大学动物实验伦理委员会(CEUA-UECE,批准号 450620/2022)以及巴西环境与可再生自然资源研究所(IBAMA,批准号 02027.014734/99-34)的许可。此外,使用牛卵巢亦经 CEUA/UECE 批准(批准号 31032.004671/2024-81)。所有所用试剂与设备的详细信息列于下文 材料表支持本研究的数据可从 Zenodo 获取,DOI 编号为 10.5281/zenodo.22129414。
1. 溶液与培养基
注意:所有过滤操作均须通过 0.22 µm 无菌滤器进行,并将滤液在 4 °C 下保存,最多可保存一周。储备液应保存在 -20 °C。
- 运输培养基:加入 8.1 g NaCl 和 0.045 g 五联抗生素,用蒸馏水定容至 900 mL。
- 磷酸盐缓冲液(PBS):加入 0.4 g NaCl、0.01 g KCl、0.077 g NaH2PO4 和 0.01 g KH2PO4,用超纯水定容至 50 mL。
- 细胞培养基:添加 10%(v/v)胎牛血清(FBS)和 1.0%(v/v)青霉素、链霉素和两性霉素 B 溶液(ATB)的杜氏改良伊格尔培养基(DMEM)。
- 成纤维细胞冻存液:添加 10%(v/v)FBS、10%(v/v)二甲基亚砜(DMSO)和 2.0%(v/v)ATB 溶液的 DMEM。
- 胰蛋白酶-EDTA(0.25%)。
- 操作培养基:含白蛋白、乳酸盐和丙酮酸盐的 HEPES 缓冲 Tyrode 液(H-TALP)。所有在培养箱外进行的操作均使用此培养基。配制 1 L 时,将 6.763 g NaCl、0.239 g KCl、0.294 g CaCl2·2H2O、0.048 g MgCl2、0.168 g NaHCO3 和 3.575 g HEPES 加入 981.86 mL 无菌胚胎级水中,轻轻旋转混匀,再加入 10 mL 抗生素-抗真菌剂、1 mL 酚红、1.44 mL 乳酸钠、1 mL 100 mM 丙酮酸钠储备液和 3 g 牛血清白蛋白(BSA)。调节渗透压至 280 mOsm,pH 值至 7.2–7.4。分装为每份 50 mL,4 °C 保存,可使用一个月。
- 体外成熟培养基:添加 10%(v/v)FBS、10 ng/mL 表皮生长因子(EGF)、1 mM 丙酮酸钠、100 µM 半胱胺、10 µg/mL 卵泡刺激素(FSH)、1 µg/mL 雌二醇和 1%(v/v)ATB 的 Medium 199(TCM-199)。调节 pH 值至 7.2–7.4。
- 透明质酸酶溶液(终浓度:1 mg/mL):将 10 mg 透明质酸酶溶于 10 mL H-TALP 中。分装为每管 200 µL 的 1.5 mL 管,即用即取。
- 蛋白酶溶液(终浓度:1.5 mg/mL):将 15 mg 蛋白酶溶于 10 mL H-TALP 中。分装为每管 200 µL 的 1.5 mL 管,即用即取。
- 秋水仙胺(终浓度:0.4 µg/mL):将 5 mg 秋水仙胺(DMC)溶于 125 µL DMSO 中,分装为每份 5 µL(储备液),冻存备用。使用前,取 2 µL 储备液与 1998 µL TCM 混合,得到工作液。使用时,取 5 µL 工作液加入 495 µL 合成输卵管液(SOF)中。
- Hoechst 染液(终浓度:10 µg/mL):将 Hoechst 33342 配制成 1 mg/mL 的 H-TALP 溶液。分装为每份 5 µL,并在 SOF 培养基中做 1:100 稀释。
注意:Hoechst 33342 用于在紫外光下观察细胞核 DNA,是一种嵌入性试剂且为强诱变剂,操作时需佩戴适当的个人防护装备。 - 植物血凝素(终浓度:1 mg/mL):将 5 mg 植物血凝素(PHA)溶于 500 µL H-TALP 中。分装为每管 10 µL 的 200 µL 管。使用时加入 90 µL H-TALP。
- 细胞融合液:将 0.3 M 甘露醇、0.1 mM MgSO4、0.05 mM CaCl2、0.5 mM HEPES 和 1 mg/mL 聚乙烯醇(PVA)溶于超纯水中。现配现用。
- 离子霉素(终浓度:5 µM):向离子霉素小瓶(1 mg/瓶)中加入 1 mL DMSO,再加入 1.67 mL TCM-199。分装为每份 10 µL,于 -20 °C 冻存于 1.5 mL 管中。使用时,将每管内容物加入 990 µL H-TALP 中。避光操作。
- 6-二甲基氨基嘌呤(终浓度:2 mM):将 10 mg 6-二甲基氨基嘌呤(6-DMAP)溶解。分装为每份 50 µL,于 -20 °C 冻存于 1.5 mL 管中。使用时,将每管内容物加入 950 µL SOF 中。
- 胚胎培养基:含 0.2 mM L-谷氨酰胺、0.2 mM 丙酮酸钠、2% 基础必需氨基酸(Basal Medium Eagle,BME)、1% 非必需氨基酸 MEM 100×、1.0%(v/v)ATB 溶液、2.77 mM 肌醇、2.5%(v/v)FBS、10 µL/mL ITS(胰岛素、人转铁蛋白和亚硒酸钠混合物)和 3 g/L BSA。
2. 供体组织样本的采集与处理
- 用肥皂和水清洗供体雌性动物耳部表面并剃毛,然后用70%酒精对该区域进行消毒。
- 使用手术刀片切取一小块耳组织样本(1 × 2 cm),将其置于含有4%抗生素的PBS溶液中,并在4 °C条件下运送至实验室。
- 用手术刀片将活检组织切成小块,放入盛有培养基的35 mm培养皿中。在38.5 °C、饱和湿度及5% CO₂条件下进行培养。
- 每48小时更换一次培养基,直至细胞达到汇合状态,以防止污染。
- 从汇合的培养皿中移除培养基,向35 mm培养皿中加入1 mL 0.25%胰蛋白酶-EDTA溶液,作用2分钟。
- 加入2 mL细胞培养基以终止胰蛋白酶活性。将细胞悬液转移至15 mL离心管中,在室温(≈ 25 °C)下以200 × g 离心10分钟。
- 弃去上清液,将细胞沉淀重悬于10 mL培养基中。每5天传代一次成纤维细胞培养物。
- 将细胞沉淀重悬于1 mL冻存液中,进行成纤维细胞冻存。将细胞悬液转移至冻存管中,置于程序降温盒内于-80 °C保存18小时,随后转移至液氮罐(-196 °C)中长期保存备用。完成成纤维细胞冻存后,细胞操作可暂停,直至细胞周期同步化阶段再重新启动。
- 在进行iSCNT前1-2周复苏并培养成纤维细胞。
3. 细胞周期同步化
- 通过细胞汇合使细胞周期同步于G0/G1期。
- 从汇合的培养皿中移除培养基,加入1 mL含0.25%胰蛋白酶-EDTA的溶液至35 mm培养皿中,在38.5 °C的CO₂培养箱中孵育2 min。加入2 mL培养基以中和胰蛋白酶活性。
- 将细胞悬液转移至15 mL离心管中,在200 × g 条件下离心10 min。
- 弃去上清液,将细胞沉淀用1–3 mL细胞培养基重悬,用于体细胞核移植(iSCNT)。
4. 卵母细胞采集
- 在屠宰后立即采集小母牛或成年母牛的卵巢,并将其置于含有运输培养基的保温瓶中,迅速运送到实验室,保持温度在 25-30 °C。
- 用培养基将卵巢清洗两次,然后放入烧杯中,置于 38.5 °C 的水浴中。
- 使用连接有 10 mL 注射器(内含 H-TALP 培养基)的 18 号针头,抽吸直径为 2-8 mm 的卵泡中的卵泡液。
- 将抽吸得到的卵泡液转移至 50 mL 锥形管中,在 38.5 °C 水浴中静置至少 15 分钟。
5. 卵母细胞成熟与去颗粒细胞
- 15 分钟后,使用塑料巴斯德吸管将整个沉淀小心转移至培养皿(100 × 15 mm)中。
- 利用体视显微镜挑选具有至少三层致密卵丘细胞、且符合等级 I 至 III 的卵丘-卵母细胞复合体(COCs)(表 1)19。
- 用半量 H-TALP 培养基洗涤 COCs 三次,再用体外成熟培养基洗涤两次。
- 将 20–25 个 COCs 转移至每滴 100 µL 的体外成熟培养基液滴中,液滴表面覆盖矿物油。在 38.5 °C、含 5% CO₂ 及饱和湿度的环境中孵育 20–22 小时。
- 将 COCs 置于 200 µL 透明质酸酶溶液中轻轻吹打 2 分钟,以去除卵丘细胞。
- 在 2 mL H-TALP 培养基中洗涤卵母细胞,彻底去除卵丘细胞。
- 在体视显微镜下挑选出已排出第一极体(中期 II 阶段 — MII)的卵母细胞,用于后续实验步骤。
6. 透明带去除、去核及无透明带卵母细胞的重建
- 将处于MII期的卵母细胞置于38.5 °C的100 µL含蛋白酶溶液中孵育1–2分钟,在体视显微镜下观察,直至透明带开始变薄。
- 立即取出卵母细胞,并转移至添加20%胎牛血清(FBS)的培养基中以灭活蛋白酶。
- 将去除透明带的卵母细胞在含有0.4 µg/mL秋水仙胺的SOF培养基中孵育20分钟,以诱导形成含有DNA的胞质突起;随后在相同培养基中添加10 µg/mL Hoechst染料,再进行20分钟的孵育。
- 将去除透明带的卵母细胞转移至H-TALP液滴中,利用倒置显微镜连接的显微操作仪进行去核操作。
- 将卵母细胞置于持卵针旁。
- 旋转卵母细胞,使突起位于三点钟位置,使用25 µm钝头注射针吸出突起及5–10%的胞质。
- 在紫外光下观察吸出的胞质以确认去核成功(图2)。
注意:卵母细胞暴露于DNA染料和紫外光下会损伤遗传物质并诱导氧化应激,应尽量缩短暴露时间。
7. 细胞融合
- 在体视显微镜下组装融合室,并加入 2 mL pH 7 的融合培养基。
- 在 60 mm 培养皿中,准备五个 100-µL 和一个 30-µL 的 H-TALP 液滴,并向其中加入 50 µL PHA。
- 将 5 µL 成纤维细胞加入 30 µL 的 H-TALP 液滴中,挑选形态均一、折光性强的细胞,转移至一个 100 µL 的 H-TALP 液滴中。
- 将去核卵母细胞转移至一个 100 µL 的 H-TALP 液滴中。
- 将卵母细胞暴露于 PHA 液滴中 4 秒,将其放置于细胞上,确认两者已黏附,然后将复合体转移至一个不含任何成分的 TALP-H 液滴中。
- 待卵母细胞与细胞黏附后,将其转移至含有 2 mL 融合培养基的培养板中,使其沉降。随后将复合体置于融合室的电极之间,将细胞置于六点或十二点位置。
注意:电融合过程中使用的激活缓冲液含有离子霉素(ionomycin),可破坏细胞内钙稳态。若设备潮湿或操作不当,高压电场可能导致电击或电弧风险。 - 使用电极间隙为 0.2 mm 的微型融合室进行融合。利用电穿孔仪施加一次脉冲序列,包含两个单向直流脉冲,场强为 0.72 kV/cm,每个脉冲持续 30 µs,脉冲间隔为 0.1 s。
- 施加脉冲后,将每个卵母细胞-细胞对单独转移至含有 2.5% FBS 的 SOF 培养基的 5-µL 微滴中,在 38.5 °C、5% CO₂ 气氛下培养。
- 在施加脉冲后 30 分钟,于体视显微镜下逐一评估融合情况。
- 对未融合的结构进行第二轮融合处理。
- 将已融合的复合体视为无透明带的重构胚胎,在激活前(即重编程时间)孵育 2 小时。
8. 卵母细胞激活与胚胎培养
- 将重建的结构置于含有5 µM离子霉素的100 µL H-TALP培养基液滴中,孵育4分钟。
- 在四滴100 µL的H-TALP培养基中洗涤重建的结构。
- 将重建的结构置于含有2 mM 6-DMAP的100 µL SOF培养基液滴中,孵育3小时。
- 在四滴100 µL的SOF培养基中洗涤重建的结构。
- 使用加热的玻璃毛细管轻轻按压至35 × 10 mm培养皿底部,制备微孔板。制作20至25个微孔,每个微孔直径为500 µm,深度为250 µm20。
- 将重构的胚胎 individually 置于改良的微孔板孔中,加入100 µL SOF培养基覆盖,并最终覆盖3 mL矿物油。将微孔板置于含5% CO₂、5% O₂和90% N₂的三气培养箱中培养7天。
结果
使用 R 软件(v.4.5.2)对结果进行分析。采用 Fisher 精确检验比较不同配对组合(鹿/牛 vs 牛/牛)之间的裂解率和囊胚率。共进行十次重复实验:其中鹿/牛配对四次,牛/牛配对六次。此外,所有分析的显著性水平均设定为 5%。
在实验过程中,使用从当地屠宰场获得的472个牛卵母细胞作为胞质受体。然而,在体外成熟及随后的电融合后,有73个结构未能融合,被排除在后续步骤之外,最终获得399个成功融合的核质体/胞质体结构。在这些结构中,共使用了以下配对(核质体/胞质体):鹿/牛组合4个重复(n = 175),牛/牛组合6个重复(n = 224)(表2)。
为了评估体细胞核移植(iSCNT)的影响,将去除透明带的重构胚胎在微孔中培养至第7天。去除透明带的桑葚胚和囊胚的代表性显微照片见图3。
表2展示了本实验获得的卵裂率和囊胚率。卵裂率在各组之间(鹿/牛与牛/牛配对)无显著差异(P = 0.74)。另一方面,在囊胚形成率方面观察到统计学差异(P = 0.02),其中种内克隆组的比例更高。然而,需要强调的是此类实验的统计效能存在局限性,因为异种克隆的数量通常较少。
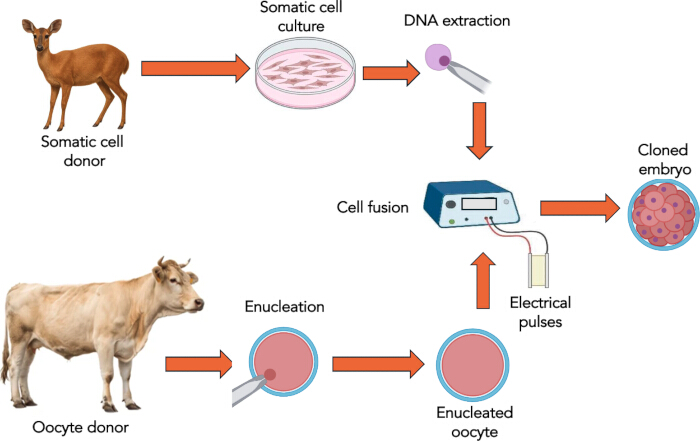
图1:种间体细胞核移植的示意图阶段。 牛作为胞质供体,鹿作为核供体。获得克隆胚胎后,可将其移植至受体雌性动物体内,或进行冷冻保存以备将来移植。请点击此处查看此图的放大版本。
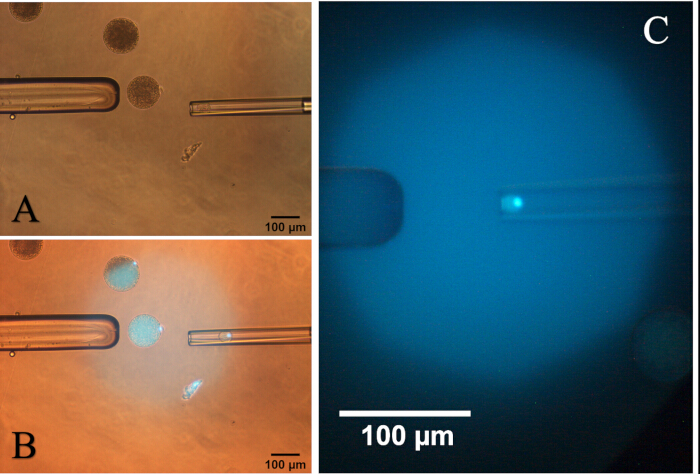
图2:具有胞质突起的激活卵母细胞的显微摄影图。(A)旋转卵母细胞,使突起位于三点钟位置。(B)在紫外光照射下,吸取包含5-10%胞质的突起部分。(C)在紫外光下,胞质及其突起位于吸管内。 请点击此处查看该图的放大版本。
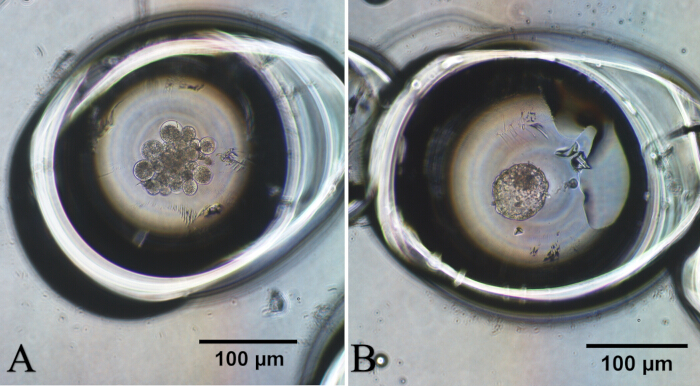
图3:通过种间体细胞核移植技术获得的鹿胚胎的显微摄影图像。 (A)桑葚胚阶段的克隆胚胎。(B)囊胚阶段的克隆胚胎。 请点击此处查看该图的高清版本。
| 等级 | 卵丘细胞层数 | 卵丘细胞扩展程度 |
| I | > 3 | 完整的卵丘细胞覆盖,含多个致密且略为疏松的细胞层 |
| II | 2 - 3 | 外层细胞层轻微扩展 |
| III | 1 | 部分卵丘细胞覆盖,细胞层疏松 |
| IV | 0 | 无卵丘细胞 |
表1:用于异种体细胞核移植过程中去核并作为胞质受体的牛卵母细胞分类(改编自Aguila等)19。
| 组别(核供体/胞质受体) | 重复次数 | 重构胚胎数 | 卵裂数(%) | 囊胚数(%) |
| 鹿/牛 | 4 | 175 | 122 (69.7)a | 8 (4.6)a |
| 牛/牛 | 6 | 224 | 160 (71.4)a | 24 (10.7)b |
| 同一列中不同字母表示存在统计学差异。 | ||||
| 卵裂率:P = 0.74 | ||||
| 囊胚率:P = 0.02 | ||||
表2:利用牛胞质体进行赤短角鹿克隆胚胎的体外发育。共进行了十次重复实验:其中鹿/牛配对四次,牛/牛配对六次。分裂率和囊胚率以重构胚胎总数作为分母进行计算。
讨论
已有充分文献记载,濒危物种的基因组可利用家畜(尤其是牛和猪)的卵母细胞进行重编程,后者是胞质供体的最大来源21。体细胞核移植技术(iSCNT)取得的重要进展之一是成功克隆了比利牛斯野山羊(Capra pyrenaica pyrenaica),该亚种在其最后已知个体死亡后已灭绝。重构胚胎是通过将野山羊的上皮细胞与山羊(Capra hircus)的卵母细胞融合而获得的。研究人员成功获得了一只雌性个体的出生,体表未见形态学异常。然而,该后代出现严重的呼吸衰竭,并在出生数分钟后死亡22。
“复活”候选物种中较有力的一种是猛犸象(Mammuthus primigenius)。要实现克隆,关键在于能否获得含有可识别细胞核的存活组织,而对大约1万年前已灭绝的物种而言,这一点极难实现。即便如此,从冻土层中发现的猛犸象遗体仍勉强满足体细胞核移植技术(iSCNT)23的最低要求。然而,或许濒危物种才是更适合作为此项技术受益对象的候选者。
本研究观察到的卵裂率表明,细胞核与细胞质的种间组合并未影响激活过程及第一次胚胎分裂。在重构阶段,两组中对结构(核质体/胞质体)的操作与融合均表现出相同的技术便捷性,提示物种之间具有结构上的相容性。关于囊胚率,结果表明,尽管iSCNT胚胎的重构和早期激活并非限制因素,但存在核质不相容性,这种不相容性在发育后期显现,可能与表观遗传重编程不完全或母源-合子转换过程有关,从而影响杂交胚胎发育至囊胚阶段的能力24。iSCNT的效率在核质体与胞质体来源于系统发育关系较近的物种时往往更高,因为自然界中可产生活体杂交后代的现象表明这两个物种之间具有一定程度的核质相容性23。因此,亚种间的体细胞核移植(SCNT)已成功产生健康后代。研究人员采用母犬的胞质体与狼的成纤维细胞,并将重构胚胎移植至12只雌性个体,最终成功产下后代25。
iSCNT 的应用在其生物学和发育效率方面面临主要的“能力限制”,当供体细胞核与受体卵母细胞之间的进化距离增加时,其效率会急剧下降。尽管在亲缘关系较近的物种之间(例如家牛与野牛)能够成功26,但在尝试跨越更远的分类学界限时,通常无法产生可存活的后代或稳定的胚胎细胞系。
克隆技术是动物育种和保护项目中的重要工具,因为它能够扩增遗传性状优良的个体,支持转基因动物的创制,并通过基因库实现珍贵遗传资源的长期保存。然而,克隆技术在畜禽育种项目中的应用仍受到限制,表现为相对于移植胚胎数量而言,最终产下的活体动物数量较低18。目前克隆胚胎的制备方法通常分为两类:传统克隆和透明带去除(ZP-free)克隆。在传统方法中,需要使用显微操作仪去除卵母细胞的细胞核,并将供体体细胞注入受体胞质中26。与传统克隆不同,透明带去除法无需显微操作即可完成27。本研究获得的结果与异种体细胞核移植(iSCNT)在卵裂率和囊胚发育率方面的结果非常相似20,21。
最后,考虑到该操作流程的各个步骤,有必要强调其中的关键环节及实际操作中的问题排查。关于透明带(ZP)的去除,无透明带克隆技术具有多项优势,包括操作简便、成本较低,以及每移植胚胎的活产率相对更高28。确认细胞核是否完全去除(去核)的同时避免对胞质造成致命性损伤,是决定重构结构能否成功支持克隆胚胎发育的关键。尽管紫外线(UV)照射已知具有有害效应29,但其仍被大多数克隆实验室常规使用。最后,无透明带胚胎培养缺乏外层保护性糖蛋白壳,导致在操作过程中出现严重的物理脆弱性以及卵裂球解离等问题30。
总之,本研究获得的结果应被视为鹿与牛组合中iSCNT方案技术可行性的初步证据,而非对其生产有效性的最终证明。因此,需要开展包含更多重复次数的进一步研究以证实这些发现。
披露
作者声明无利益冲突。
致谢
本工作由巴西福塔莱萨塞阿拉科学技术发展支持基金会(FUNCAP,项目编号 11212233/2022)和国家科学技术研究所(INCT/CNPq,项目编号 406866/2022-8)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 抽吸针(18G) | LABIMPORT | 353601 | 一次性短刃针头 |
| 6-二甲基氨基嘌呤(6-DMAP) | Sigma-Aldrich | D2629 | |
| 抗生素–抗真菌剂 | Gibco,赛默飞世尔科技 | 15240062 | |
| 牛血清白蛋白 | Sigma-Aldrich | A9647 | |
| 二水合氯化钙(CaCl2·2H2O | Sigma-Aldrich | C7902 | |
| 细胞培养瓶 T-25 | 康宁 | 430639 | |
| CellTram 显微注射仪 | Eppendorf | 5196 000.021 | |
| 离心 | Eppendorf | 5702 | 用于细胞在 200 × g 条件下的离心 × 离心10分钟以沉淀并洗涤样本,用于后续核移植操作。 |
| 离心管(50 mL) | Corning | CLS430291 | |
| 冻存管(1.8 mL) | Nunc / Thermo Fisher | 368632 | |
| 半胱胺 | Sigma-Aldrich | M9768 | |
| 秋水仙胺 | Sigma-Aldrich | D1925 | |
| 蒸馏水 | _ | _ | |
| DMSO(细胞冻存) | Sigma-Aldrich | D2650 | 用于供体细胞冷冻保存的10%冷冻保护剂 |
| 杜尔贝科改良伊格尔培养基(DMEM) | Gibco / Thermo Fisher | 11995065 | |
| 去核移液管(20–25 µm ID | Narishige | GD-1 | |
| 表皮生长因子(EGF) | Sigma-Aldrich | E4127 | |
| 必需氨基酸 BME | Sigma-Aldrich | M5550 | |
| 雌二醇 | Sigma-Aldrich | E8875 | |
| EVE 培养箱(5% O₂)2,5% CO₂2,90% N2) | WTA 医疗 | 参考文献 23578 | |
| 胎牛血清(FBS) | Bio Nutrientes,Induslab | FEN-500 | |
| FSH(Folltropin-V) | Vetoquinol | Q-7090-124 | |
| 带纤维丝的玻璃毛细管 | Narishige | GD-1 | 该玻璃毛细管用于在培养皿中制作微孔阵列 |
| 加热板 | WTA 医学 | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342(DNA 染料) | Sigma-Aldrich | B2261 | |
| 持握移液管(120 μm OD | Narishige | GD-1 | |
| 透明质酸酶 | Sigma-Aldrich | H4272 | |
| 倒置显微镜 ECLIPSE | 尼康 | TE2000-U | |
| 离子霉素(钙离子载体 A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| 层流洁净台 Isocide | Esco | 2120765 | 提供无菌工作环境的层流柜,用于胚胎和细胞培养操作。 |
| L-谷氨酰胺 | Sigma-Aldrich | G8540 | |
| 液氮储存杜瓦瓶 | Nitroagro | 不固定 | |
| 硫酸镁(MgSO4) | Sigma-Aldrich | M2643 | |
| 甘露醇融合培养基(0.3 M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | Narishige | MF-900 | |
| 显微操作仪系统 | Narishige | MM-89 / TransferMan 4r | |
| 微移液管拉制仪 | Narishige | Narishige PC-100 | |
| 微量移液器(10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | 研究增强系列 | |
| 微融合室 | Eppendorf | 12816532 | 是一种专为电穿孔应用设计的0.2 mm间隙配件 |
| 矿物油(胚胎检测用) | Sigma-Aldrich | M8410 | |
| Multiporator | Eppendorf | 4308 000.015 | |
| 肌醇 | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO₃ | Sigma-Aldrich | S4219 | |
| 非必需氨基酸 MEM | Sigma-Aldrich | M7145 | |
| 五联抗生素 | Zoetis | 10005048 | 2,400,000 IU 小瓶 |
| 35 mm 培养皿(胚胎检测合格) | Corning | 430165 | |
| 60毫米培养皿(胚胎检测级) | 康宁 | 430196 | |
| 酚红 | Sigma-Aldrich | P0290 | |
| 移液器吸头 1000 µL | Eppendorf | 9401030 | |
| 移液器吸头 200 µL | Eppendorf | 94052300 | |
| 无滤芯移液器吸头 (0.5–10 µL) | Axygen | T-300 | |
| 聚乙烯醇(PVA) | Sigma-Aldrich | P8136 | |
| 蛋白酶(来自 S. griseus 的蛋白酶) | Sigma-Aldrich | P8811 | |
| 乳酸钠 | Sigma-Aldrich | L7900 | |
| 丙酮酸钠 | Sigma- Aldrich | P4562 | |
| 体视显微镜 | 尼康 | SMZ800 | |
| 无菌胚胎检测用水 | Sigma-Aldrich | W3500 | |
| 无菌滤器(0.22 μm) | 康宁 | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| 三气培养箱(5% O₂)2,5% CO₂2,90% N2) | WTA 医学 | 参考文献 23578 | |
| 胰蛋白酶-EDTA(0.25%) | Gibco / Thermo Fisher | 25200056 | |
| 超纯水áter | Sigma-Aldrich | W3500 | |
| 紫外灯 / 荧光模块 | Leica / Olympus | 不固定 | 短暂紫外线照射以验证去核效果;尽量减少光毒性 |
参考文献
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
重印与许可
本文已发表
视频即将推出