本研究整合了网络药理学、经验证的分子对接以及 体外 评估候选化合物与靶点之间关系的实验 冬虫夏草 成分及与慢性肾小球肾炎相关的过程。 β-选择β-谷甾醇进行化合物水平验证,发现其可减轻系膜细胞模型中的炎症和促纤维化激活。
方法文章
网络引导的β-谷甾醇在与慢性肾小球肾炎相关的炎症和促纤维化系膜细胞模型中的评价
* These authors contributed equally
本文内容
摘要
摘要
慢性肾小球肾炎(CGN)以持续性炎症损伤和进行性纤维化重塑为特征,然而基于天然产物的干预措施所涉及的化合物-靶点关系尚未完全阐明。本研究整合了网络药理学、经验证的分子对接以及 体外 评估候选组分的实验 冬虫夏草 (C. sinensis)在CGN相关病理过程中的作用。CGN相关病理过程的候选成分 C. sinensis 筛选了相关基因,并将中药系统药理学数据库与分析平台(Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform)获取的化合物相关靶点与CGN相关基因取交集。通过功能富集分析和蛋白质-蛋白质相互作用分析,筛选出关键的生物过程和核心靶点。 PTGS2 被确定为一个关键的重叠靶点。采用与塞来昔布结合的COX-2结构进行分子对接。对共结晶的塞来昔布配体进行重新对接,重现了晶体结构中的结合构象,RMSD为0.876 Å,支持对接方案。 β-β-谷甾醇和亚油酸乙酯对COX-2对接区域表现出预测的相容性,结合亲和力分别为−7.2和−7.5 kcal/mol。 β-选择β-谷甾醇在HBZY-1大鼠肾小球系膜细胞中进行化合物水平的验证。在0.5–10 µM, β-sitosterol 未显著降低细胞活力。在脂多糖(LPS)刺激的细胞中, β-sitosterol 减少 Tnf, Il6,以及 Ptgs2 表达降低,前列腺素 E2(PGE2)生成减少,以及环氧合酶-2(COX-2)蛋白丰度下降。在转化生长因子 β1(TGF-β1)-处理的细胞, β-sitosterol 减少 Col1a1 和 Acta2 表达降低α-平滑肌肌动蛋白(α-SMA)蛋白丰度。这些发现提供了具有假设生成意义的证据,表明 β-sitosterol 可调节系膜细胞模型中的炎症和促纤维化激活,但尚未证实其对 COX-2 酶的直接抑制作用或在慢性肾小球肾炎(CGN)中的治疗功效。
引言
慢性肾小球肾炎(CGN)是一组异质性的肾小球疾病,可进展为慢性肾脏病和终末期肾病1。其特征为持续性肾小球损伤、炎症激活以及进行性纤维化重塑2,3。尽管在部分患者中使用糖皮质激素和免疫抑制剂进行治疗,但许多病例仍难以实现长期疾病控制,且治疗相关不良反应较为常见1,4,5。CGN的进展涉及多种相互作用的病理过程,包括免疫激活、内皮功能障碍、氧化应激以及细胞外基质积聚3,6,7。因此,识别连接炎症反应与促纤维化反应的关键分子节点,可能有助于提出可验证的假说,以指导针对疾病相关干预策略的研究。
Cordyceps sinensis (C. sinensis)在肾脏相关临床及实验研究中已有应用,据报道在多种疾病模型中具有抗炎、抗凋亡和细胞保护作用8,9,10。然而,其潜在活性成分与肾小球肾炎相关靶点之间相互作用的分子机制仍不明确11。鉴于 C. sinensis 成分复杂以及慢性肾小球肾炎(CGN)机制的异质性,网络药理学为筛选潜在化合物-靶点-通路关系提供了有效的研究框架12,13。
本研究整合了化合物筛选、靶点检索、疾病-基因交集分析、功能富集、蛋白质-蛋白质相互作用网络分析、分子对接以及体外验证,以探索C. sinensis候选成分与CGN相关病理过程之间的潜在分子关系。PTGS2(前列腺素内过氧化物合酶2)从化合物-疾病网络中被优先识别为核心靶点,并采用塞来昔布结合的环氧化酶-2(COX-2)结构进行分子对接分析,同时通过重新对接验证其可靠性。根据网络分析结果、分子对接数据以及既往关于抗炎和抗纤维化活性的研究证据,选择β-谷固醇作为代表性候选化合物进行下游验证14,15,16。采用脂多糖(LPS)刺激的系膜细胞评估炎症活化及COX-2/前列腺素E2(PGE2)相关反应,同时构建转化生长因子β1(TGF-β1)诱导的细胞模型以评价促纤维化标志物的表达水平。
方案
网络药理学与生物信息学分析基于公开可用的数据库,未涉及人类受试者或动物。 体外 实验使用已建立的细胞系进行,根据机构要求无需伦理审批。
候选成分筛选与靶点获取
2025年7月13日,使用“冬虫夏草”作为检索词,从传统中药系统药理学数据库与分析平台(TCMSP)中获取候选成分及其相应靶点。保留预测口服生物利用度不低于30%且类药性不低于0.18的化合物。共有七种候选成分同时满足上述筛选标准。从TCMSP中记录各候选成分的分子量、口服生物利用度、类药性及其他可获得的药代动力学参数,用于描述性比较。
与保留成分相关的化合物-靶点信息直接从TCMSP下载获得。在构建非冗余靶点集合时,手动去除了重复的靶点条目,但保留了原始的化合物-靶点关系,用于后续网络构建。由于TCMSP提供的靶点名称为全称形式,而非标准化的基因符号,因此将每个靶点在UniProt数据库(访问时间为2025年7月14日)中进行比对,选择对应的人源条目,并将靶点名称转换为其官方基因符号。该标准化的化合物-靶点数据集用于疾病靶点交集分析及化合物-靶点网络分析。
肾小球肾炎相关基因的收集与靶点交集分析
2025年7月14日,使用检索词“glomerulonephritis”从GeneCards、DisGeNET、PharmGKB和Therapeutic Target Database中获取与疾病相关的基因。对于GeneCards,保留相关性评分高于中位数10的条目。根据其他数据库中经过审编的疾病-靶点注释信息,纳入符合条件的条目。基因名称被标准化为官方人类基因符号,并去除重复条目。该过程共获得1,134个唯一的与肾小球肾炎相关的基因。由于检索使用了更广泛的术语“glomerulonephritis”,因此所得数据集被认为与慢性肾小球肾炎相关的分子过程相关,而非特指某一种组织病理学亚型。
使用 R 语言将 TCMSP 数据库获得的化合物相关靶点与疾病相关基因集进行交集分析,共筛选出 23 个交集靶点。采用 R 软件包 venn 绘制维恩图,并利用 Cytoscape 构建和可视化化合物-交集靶点网络。候选成分与交集靶点之间的关系总结于表 1中。
功能富集与蛋白质-蛋白质相互作用分析
使用 R 语言中的 clusterProfiler 和 org.Hs.eg.db 对基因本体(Gene Ontology, GO)和京都基因与基因组百科全书(Kyoto Encyclopedia of Genes and Genomes, KEGG)进行富集分析。基因本体分析涵盖生物过程(biological process)、细胞组分(cellular component)和分子功能(molecular function)三个类别。采用 Benjamini-Hochberg 方法对 P 值进行多重检验校正,保留校正后 P 值低于 0.05 的条目或通路。通过独立生成的柱状图和点状图展示富集的条目和通路。
将23个重叠靶点提交至STRING数据库,选择物种为智人(Homo sapiens),并设置最低相互作用评分大于0.4。将所得的蛋白质-蛋白质相互作用网络导入Cytoscape软件。利用CytoNCA插件,基于节点度(degree)、介数中心性(betweenness centrality)、接近中心性(closeness centrality)、特征向量中心性(eigenvector centrality)、局部平均连接性(local average connectivity)和网络中心性(network centrality)对网络拓扑结构进行评估。枢纽靶点(hub targets)定义为上述六项参数值均高于网络对应中位数的节点。该分析共优先筛选出9个枢纽靶点用于后续解读。
分子对接与再对接验证
采用塞来昔布结合的环氧合酶-2 结构(PDB ID 3LN1)进行分子对接。受体准备过程中保留 A 链及其相关的血红素基团作为受体,移除晶体水分子及共结晶的塞来昔布配体。将塞来昔布的天然构象从 A 链中单独提取,用于重新对接验证。使用 AutoDockTools 添加极性氢原子和 Gasteiger 电荷,并将受体保存为 PDBQT 格式。PDB ID 3LN1 是一种小鼠 COX-2 与塞来昔布结合的 2.40 Å 分辨率结构。β-谷甾醇和油酰乙酸酯的结构取自 PubChem,并使用 Open Babel 进行处理。添加氢原子和 Gasteiger 部分电荷,指定可旋转键,并将每种配体转换为 PDBQT 格式。塞来昔布、β-谷甾醇和油酰乙酸酯均使用 AutoDock Vina,采用相同的受体和搜索参数进行对接。
对接盒以原生塞来昔布结合区域为中心,坐标如下:center_x = 30.9886,center_y = -22.2836,center_z = -16.5072,size_x = 26 Å size_y = 26 Å size_z = 26 Å穷举值设为16,输出构象数设为10,能量范围设为3 kcal/mol。根据最低预测结合能选出最优构象用于可视化分析。为验证对接流程的可靠性,在相同条件下对原晶态塞来昔布进行重新对接,并使用PyMOL计算其晶体结构构象与重新对接构象之间的重原子根均方偏差。当根均方偏差小于2时 Å 被视为参考姿态的可接受重现。位于4Å以内的残基 Å 在 PyMOL 中确定了每个对接配体的结合位点。对接评分和构象应被解读为对结构相容性的估计,而非靶点结合或酶抑制的直接证据。
细胞培养与化合物制备
HBZY-1 大鼠肾小球系膜细胞在含 10% 胎牛血清和 1% 青霉素-链霉素的高糖 Dulbecco 改良 Eagle 培养基中培养,培养条件为 37 °C、5% CO₂ 及湿润环境。所有实验均使用第 2 至 7 代细胞,并在使用前验证无支原体污染。β-谷甾醇和塞来昔布作为化学定义化合物使用。将 β-谷甾醇溶于无水乙醇中,配制成 10 mM 储存液(约 4.15 mg/mL)。必要时,短暂超声处理并加热至 50–60 °C,以获得肉眼可见澄清的溶液。塞来昔布溶于二甲基亚砜中,配制成 10 mM 储存液(约 3.81 mg/mL)。储存液分装后于 −20 °C 保存。 给药前,将储存液直接稀释至预热的培养基中,并立即混匀。
每个实验中均匹配了溶剂的浓度。在细胞活力检测中,由于所测试的最高β-谷固醇浓度为20 µM,因此所有组别的最终乙醇浓度均调整为0.2%(v/v)。在脂多糖(LPS)诱导的炎症实验中,所有组别的最终乙醇和二甲基亚砜浓度分别调整为0.1%和0.01%(v/v)。在转化生长因子-β1(TGF-β1)诱导的促纤维化实验中,所有组别的最终乙醇浓度均调整为0.1%(v/v)。对照组、LPS组和TGF-β1组均加入相应溶剂的等体积溶液。
细胞活力检测
将细胞以每孔100 µL完全培养基中含5 × 10³个细胞的密度接种于96孔板中,孵育24 h使其贴壁。为评估β-谷固醇的作用浓度范围,细胞分别与0.5、1、5、10或20 µM的β-谷固醇共孵育24 h。在脂多糖相关的细胞活力检测中,细胞先用1、5或10 µM的β-谷固醇预处理2 h,随后加入1 µg/mL脂多糖继续作用24 h。
处理组包括对照组、0.5 µM β-谷固醇组、1 µM β-谷固醇组、5 µM β-谷固醇组、10 µM β-谷固醇组、20 µM β-谷固醇组、LPS组、LPS联合1 µM β-谷固醇组、LPS联合5 µM β-谷固醇组以及LPS联合10 µM β-谷固醇组。每孔加入10 µL Cell Counting Kit-8试剂,培养板于37°C孵育2小时。随后在450 nm处测定吸光度。通过减去无细胞空白孔的读数来计算细胞活力,并以对照组为基准进行相对表达。每种处理条件在六次独立的生物学重复实验中各设六个技术重复孔。每次实验中的技术重复孔数值取平均值,生成一个生物学重复值用于统计分析。
LPS诱导的炎症活化
进行炎症激活实验时,将HBZY-1细胞以每孔2 × 10⁵个细胞的密度接种于6孔板中,待细胞融合度达到约70%–80%后进行处理。处理前,细胞在添加1%胎牛血清的培养基中维持培养12小时。在脂多糖(LPS)刺激前2小时,加入β-谷固醇或塞来昔布。随后,细胞暴露于1 µg/mL LPS中持续24小时。
实验分组包括对照组、10 µM β-谷甾醇组、LPS组、LPS联合1 µM β-谷甾醇组、LPS联合5 µM β-谷甾醇组、LPS联合10 µM β-谷甾醇组,以及LPS联合1 µM塞来昔布组。塞来昔布作为功能阳性对照,用于抑制COX-2依赖性前列腺素的产生。处理结束后,收集培养上清液用于PGE2测定;细胞则单独收集,用于Tnf、Il6和Ptgs2的定量实时PCR分析,以及COX-2的蛋白质印迹分析。
TGF-β1诱导的促纤维化活化
采用独立的TGF-β1诱导模型评估促纤维化活化。将HBZY-1细胞以每孔2 × 10⁵个细胞的密度接种于6孔板中,并在含1%胎牛血清的培养基中培养12小时后进行处理。细胞先用β-谷甾醇预处理2小时,随后用10 ng/mL重组TGF-β1刺激48小时。
处理组包括对照组、β-谷甾醇(10 µM)、TGF-β1、TGF-β1 + β-谷甾醇(5 µM)以及 TGF-β1 + β-谷甾醇(10 µM)。处理结束后,收集细胞用于Col1a1和Acta2的实时定量PCR分析,以及α-平滑肌肌动蛋白(α-SMA)的蛋白质印迹分析。
定量实时 PCR
采用基于苯酚-硫氰胍的RNA提取试剂,按照制造商提供的说明书从处理后的细胞中提取总RNA。使用分光光度计测定RNA浓度和纯度。仅A260/A280比值在1.8–2.0之间的样品用于逆转录。每个样品取1 µg总RNA,在终体积为20 µL的反应体系中逆转录生成互补DNA。将所得互补DNA用无核酸酶水稀释5倍后用于定量PCR。定量PCR反应总体积为20 µL,包含10 µL 2× SYBR Green预混液、各0.4 µL的10 µM正向和反向引物、2 µL稀释后的互补DNA以及7.2 µL无核酸酶水。扩增程序包括:95 °C预变性30 s,随后进行40个循环(95 °C变性5 s,60 °C退火-延伸30 s)。之后进行熔解曲线分析(65 °C至95 °C),以验证扩增产物的特异性。
检测的基因为 Tnf、Il6、Ptgs2、Col1a1、Acta2 和 Gapdh。Gapdh 作为内参基因。相对基因表达量采用 2−ΔΔCt 法计算,以对照组作为校准样本。引物序列见补充表1。每个样本均进行技术重复三次,共完成六次独立的生物学实验。技术重复所得数值在统计分析前取平均值。
采用酶联免疫吸附测定法检测PGE2
LPS 刺激 24 小时后收集培养上清液,在 4 °C 条件下以 1,000 ×g 离心 10 分钟以去除细胞碎片。根据制造商说明书,采用 commercially available enzyme-linked immunosorbent assay kit 检测 PGE2 浓度。
标准品和样品均以复孔形式加入检测板中。在完成抗体结合和显色步骤后,使用酶标仪在450 nm处记录吸光度。PGE2浓度通过四参数逻辑拟合标准曲线确定,并以pg/mL表示。共分析了六次独立细胞实验的上清液。每个生物学样本的复孔测量值在统计分析前取平均值。
蛋白质印迹
将处理后的细胞加入含有蛋白酶抑制剂混合物的放射免疫沉淀分析缓冲液中裂解。裂解液在冰上孵育30分钟,然后在4 °C下以12,000 × g离心15分钟。使用二辛可宁酸蛋白检测试剂盒测定上清液中的蛋白浓度。取等量蛋白(每泳道30 µg)与上样缓冲液混合,并在95 °C变性5分钟。LPS实验的蛋白在10%十二烷基硫酸钠-聚丙烯酰胺凝胶上分离,而TGF-β1实验的蛋白则在12%凝胶上分离。分离后的蛋白随后转移至聚偏二氟乙烯膜上。
使用含0.1% Tween 20的Tris缓冲盐水(TBS)配制5%脱脂牛奶,在室温下封闭膜1小时,随后在4 °C下与一抗孵育过夜,所用一抗包括COX-2(1:1000)、α-SMA(1:1000)和GAPDH(1:5000)。COX-2在LPS实验的样品中进行分析,而α-SMA在TGF-β1实验的样品中进行分析。洗涤后,膜在室温下与辣根过氧化物酶标记的二抗(1:5000)孵育1小时。使用增强型化学发光底物显色,并通过化学发光成像系统捕获蛋白条带。COX-2的曝光时间约为10秒,α-SMA为10秒,GAPDH为2秒。
使用 ImageJ 对条带强度进行定量。COX-2 和 α-SMA 信号均以相应的 GAPDH 信号为对照进行归一化处理。Western 印迹实验所用蛋白样品来自六次独立的细胞培养与处理实验。
统计学分析
统计分析使用 GraphPad Prism 软件进行。数据以均值 ± 标准差表示。每项定量分析均进行了六次独立的细胞培养和处理实验,每次独立实验代表一个生物学重复。来自同一次生物学实验的技术重复测量值在统计分析前取平均值,不视为独立的观测值。
在细胞活力检测中,每个生物学实验的每种条件均包含六个技术重复孔。每个生物学样本的定量 PCR 反应均设置三个技术重复,PGE2 测定设置两个重复。Western blot 定量基于六个独立制备的蛋白质样本。因此,每个定量柱状图包含六个独立的生物学重复数据值。
采用单因素方差分析,随后进行 Tukey 多重比较检验,对多个组之间的差异进行分析。双侧 P 值 < 0.05 被视为具有统计学意义。个体生物学重复值与均值和标准差一并显示。
结果
候选成分筛选、靶点检索与靶点交集
鉴定候选化合物-疾病重叠靶点的工作流程如图1A所示。C. sinensis的7种候选化合物满足预设的筛选标准(OB ≥30% 且 DL ≥0.18),分别为花生四烯酸、亚油酸乙酸酯、β-谷固醇、过氧麦角甾醇、麦角甾醇、棕榈酸胆固醇酯和CLR(表2)。同时,从GeneCards、DisGeNET、PharmGKB和TTD数据库中共检索到1,134个与肾小球肾炎相关的基因,其在四个数据库中的分布情况如图1B所示。对化合物相关靶点集合与疾病相关基因集合进行交集分析,共鉴定出23个重叠靶点(表1,图1C)。相应的化合物-重叠靶点网络如图1D所示,展示了代表性候选化合物、重叠靶点与CGN之间的关系。这些重叠靶点包含多个与炎症调控、细胞凋亡及血管相关信号通路有关的基因,例如PTGS2、CASP3、MAPK1、PPARG、TNFRSF1A和NOS3。
功能富集与蛋白质-蛋白质相互作用分析
为探究23个重叠靶点的生物学意义,进行了GO和KEGG通路富集分析。结果表明,这些靶点在多个与炎症和代谢相关的通路中显著富集。
GO 分析将靶点分为生物过程(BP)、细胞组分(CC)和分子功能(MF)三类。最显著富集的生物过程术语包括对脂多糖的响应、对细菌来源分子的响应以及肌肉系统过程的调控。在细胞水平上,靶点在膜筏、小凹和血小板α颗粒区室中富集,而分子功能术语如氧化还原酶活性和核受体结合则进一步提示其在氧化应激和转录调控中的作用(图 2A)。
KEGG 分析显示,脂质与动脉粥样硬化通路(hsa05417)富集最为显著(q 值 <1 × 10⁻⁶),同时富集的通路还包括糖尿病并发症中的 AGE–RAGE 信号通路、TNF 信号通路、IL-17 信号通路以及 HIF-1 信号通路(图 2B)。值得注意的是,脂质与动脉粥样硬化通路涉及 23 个靶点中的 10 个,包括 CASP3、MAPK1、PPARG、NOS3 和 TNFRSF1A。
总体而言,这些富集结果表明,重叠靶点在功能上与慢性肾小球肾炎(CGN)相关的炎症、应激反应及内皮相关生物过程有关。
蛋白质-蛋白质相互作用网络分析
使用 STRING 构建了 23 个重叠靶点的蛋白质-蛋白质相互作用(PPI)网络,得到包含 23 个节点和 102 条边的网络(图 3A)。利用 CytoNCA 进行拓扑学分析,鉴定出九个高度连接的核心靶点:PTGS2、MAPK1、PPARG、CASP3、EGF、JUN、PECAM1、BCL2 和 PRKCA(图 3B)。在这些靶点中,PTGS2 表现出显著的网络中心性,因此被选为后续分子对接分析的目标。这些结果揭示了一组可能与化合物-疾病交集相关的、基于网络优先排序的候选调控因子。
分子对接与再对接验证
为了进一步评估通过网络分析鉴定出的与PTGS2相关的候选相互作用关系的结构合理性,采用结合了塞来昔布的COX-2结构进行了分子对接。选择晶体结构PDB编号3LN1,是因为该结构包含在COX-2活性位点结合的塞来昔布,可为对接验证提供实验确定的配体结合口袋。首先将共结晶的塞来昔布配体提取出来,并重新对接至同一结合口袋。重新对接的塞来昔布构象与晶体结构中的构象高度一致,其重对接的均方根偏差(RMSD)为0.876 Å,预测结合亲和力为-12.3 kcal/mol(图4A)。该结果表明,在所选对接条件下,该对接流程能够准确重现已知的配体结合构象。
使用相同的受体、网格盒和对接参数,将β-谷甾醇对接至塞来昔布定义的COX-2结合区域。β-谷甾醇的预测结合亲和力为-7.2 kcal/mol(图4B)。对接构象位于预定义的COX-2对接区域内,围绕对接后β-谷甾醇构象的残基包括ASN567、ASP333、GLN178、GLN336、GLY340、HIS337、HIS80、PRO500、THR79和TYR341。
亚油醇乙酸酯也被评估为次要的计算候选物,因其保留在候选成分列表中,并且在网络分析中与PTGS2存在关联。在相同的对接条件下,亚油醇乙酸酯的预测结合亲和力为-7.5 kcal/mol,略优于β-谷固醇(图4C)。其预测的结合构象位于对接区域中,靠近塞来昔布参考配体。围绕亚油醇乙酸酯的残基包括ALA502、ALA513、ARG106、ARG499、GLN178、GLY512、HIS75、ILE503、LEU338、LEU345、LEU517、MET508、PHE504、SER339、SER516、TRP373、TYR371、VAL102、VAL335和VAL509。
细胞活力、炎症活化及促纤维化活化
选择β-谷固醇进行化合物水平的验证,是因为在网络分析中被鉴定为与PTGS2相关的候选化合物,并且已有实验证据支持其具有抗炎和抗纤维化活性。首先评估细胞活力,以确定适用于后续实验的浓度范围。用0.5、1、5和10 µM的β-谷固醇处理与对照组相比未明显降低细胞活力,而20 µM的β-谷固醇则引起轻微下降。脂多糖(LPS)刺激降低了细胞活力,在LPS刺激下联合使用β-谷固醇可部分改善细胞活力,其中以10 µM时改善效果最为显著(图5A)。根据这些结果,在后续的LPS诱导炎症活化实验中采用了1、5和10 µM的β-谷固醇。
LPS 刺激显著增加了 HBZY-1 细胞中炎症相关基因的 mRNA 表达水平。与对照组相比,LPS 组的 Tnf、Il6 和 Ptgs2 表达水平更高(图 5B-D)。β-谷固醇处理以浓度依赖的方式抑制了 LPS 诱导的这些基因的上调。在 LPS 联合 10 µM β-谷固醇处理组中,这种抑制趋势最为明显。作为功能性 COX-2 抑制剂对照的塞来昔布也在一定程度上降低了炎症基因的表达,但其对多个转录标志物的抑制效果弱于 10 µM β-谷固醇处理组(图 5B-D)。
由于 Ptgs2 编码 COX-2,而 PGE2 是 COX-2 活性主要的下游前列腺素产物,因此通过 ELISA 检测 PGE2 的分泌。与对照组相比,LPS 处理增加了培养上清液中 PGE2 的浓度。β-谷甾醇呈浓度依赖性地降低了 LPS 诱导的 PGE2 生成。塞来昔布也减少了 PGE2 的生成,并作为 COX-2/PGE2 轴功能抑制的阳性对照(图 5E)。Western 印迹分析进一步显示,LPS 增加了 COX-2 蛋白的表达量。在 LPS 刺激下,β-谷甾醇处理降低了 COX-2 蛋白水平,且高浓度时降低作用更为显著。相比之下,塞来昔布减少了 PGE2 的生成,但对 COX-2 蛋白表达量的影响较有限(图 5F)。
为了补充LPS诱导的炎症模型,采用TGF-β1诱导的促纤维化活化模型,以评估β-谷固醇是否影响系膜细胞中纤维化标志物的表达。与对照组相比,TGF-β1显著增加了Col1a1和Acta2的mRNA表达(图6A,B)。β-谷固醇减轻了TGF-β1诱导的这两种标志物的升高,且在10 µM浓度下的抑制作用比5 µM更明显(图6A,B)。Western blot分析显示,TGF-β1刺激后α-SMA蛋白表达相应增加,而给予β-谷固醇处理可降低TGF-β1处理细胞中α-SMA蛋白的含量(图6C)。
数据可用性:
支持本研究的原始数据和处理后数据已存入 Zenodo,DOI:https://zenodo.org/records/21649482。Western 印迹的全扫描图像见补充文件 1。
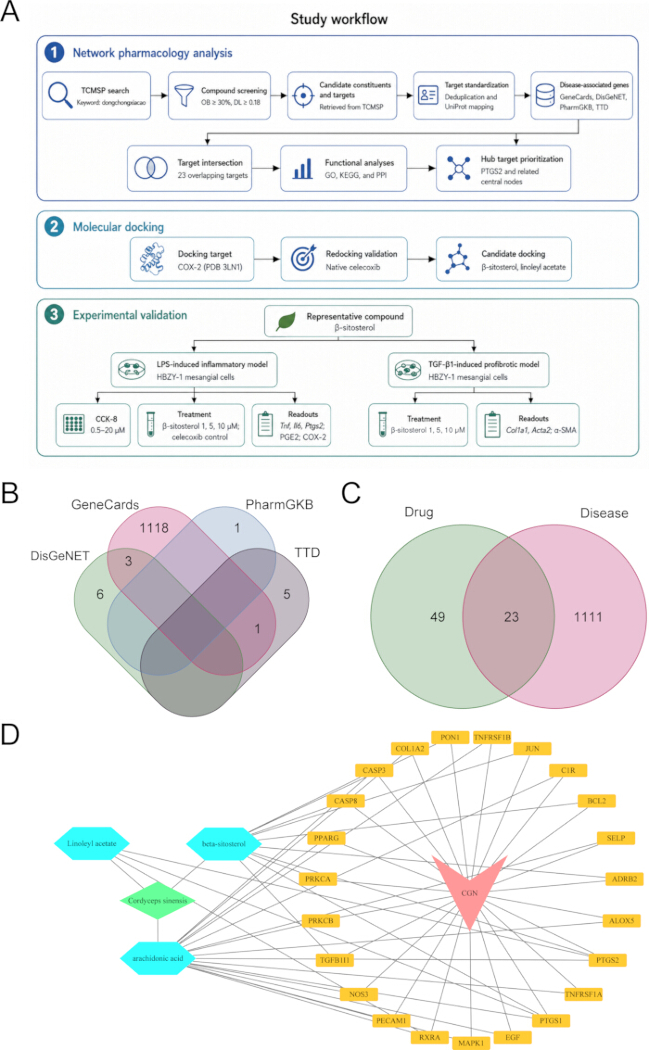
图1.基于工作流程与网络分析鉴定C. sinensis在肾小球肾炎中候选化合物–疾病重叠靶点。(A)示意图工作流程,展示候选化合物的鉴定、化合物相关靶点的检索与标准化、肾小球肾炎相关基因的获取、交集分析以及化合物–重叠靶点网络的构建。(B)维恩图,展示从GeneCards、DisGeNET、PharmGKB和TTD中检索到的肾小球肾炎相关基因的分布情况。(C)维恩图,显示TCMSP来源的化合物相关靶点与疾病相关基因之间的重叠,共获得23个重叠靶点。(D)化合物–重叠靶点网络。绿色菱形代表C. sinensis,蓝色六边形表示候选化合物,黄色圆形表示重叠靶点,粉色三角形代表CGN。边表示相应的化合物–靶点或疾病–靶点关系。请点击此处查看该图的放大版本。
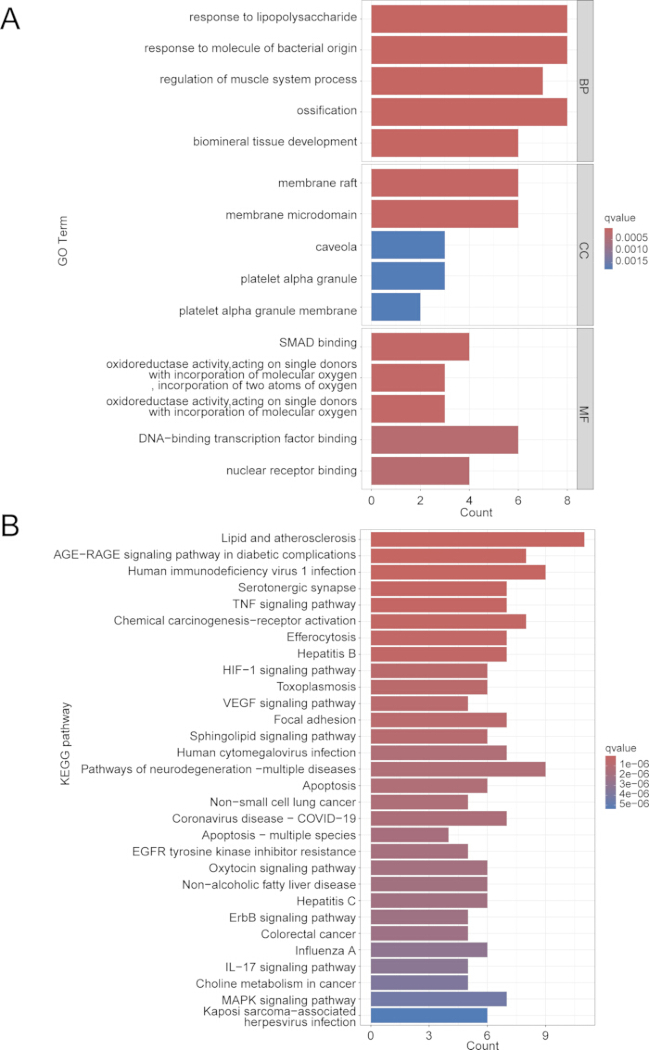
图2。重叠靶点的功能富集分析。(A)23个重叠靶点的GO富集分析。展示了排名靠前的生物过程(BP)、细胞组分(CC)和分子功能(MF)条目。条形长度表示基因数量;颜色梯度代表q值。(B)23个重叠靶点的KEGG富集分析。通路按基因数量和统计显著性排序。请点击此处查看该图的放大版本。
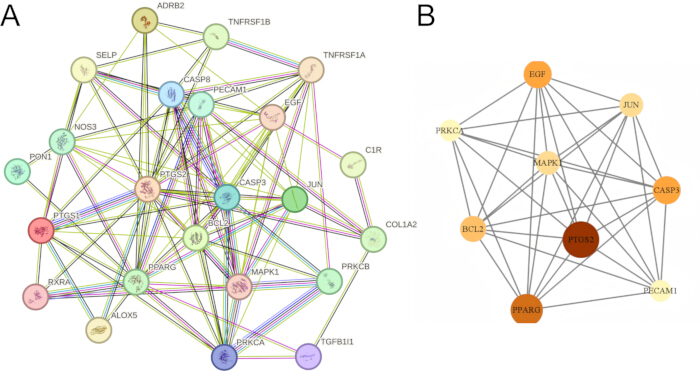
图3。 交集靶点的蛋白质-蛋白质相互作用网络及核心靶点优先排序。(A)利用STRING构建的包含23个交集靶点的PPI网络,相互作用评分阈值>0.4。(B)基于CytoNCA的网络拓扑分析对前九个核心靶点进行优先排序。PTGS2表现出显著的网络中心性,被选为后续分子对接分析的目标。请点击此处查看该图的放大版本。
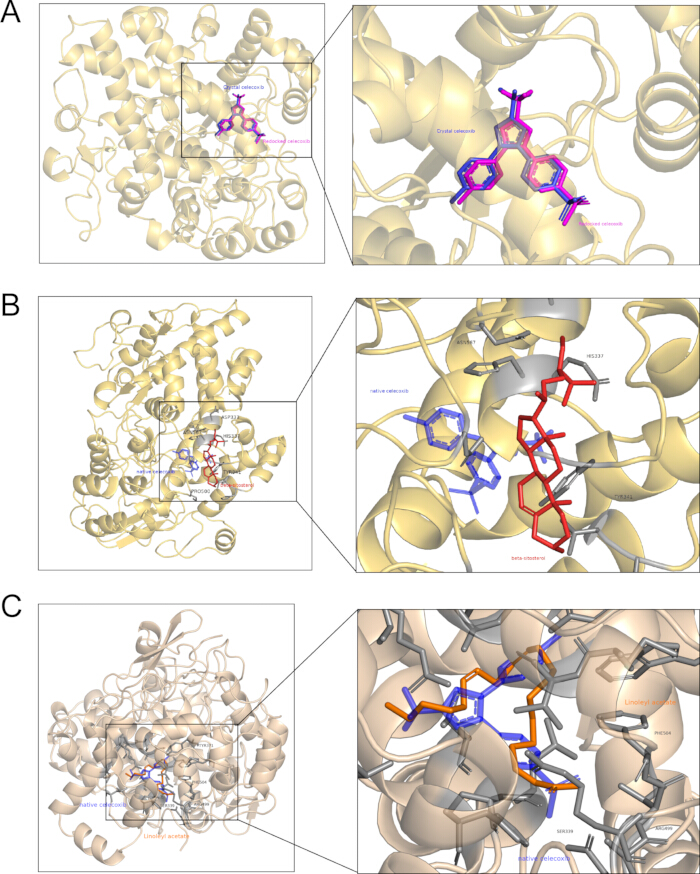
图4. 选定候选化合物与COX-2的分子对接及再对接验证。 (A)塞来昔布在结合态小鼠COX-2结构(PDB ID 3LN1)中的晶体结构构象与最高排序的再对接构象的叠加。再对接结果重现了实验测得的结合取向。(B)β-谷甾醇在基于塞来昔布定义的COX-2对接区域内的最高排序对接构象。晶体结构中的塞来昔布构象作为空间参照。(C)亚油酸乙酯在同一对接区域内的最高排序对接构象。请点击此处查看该图的放大版本。
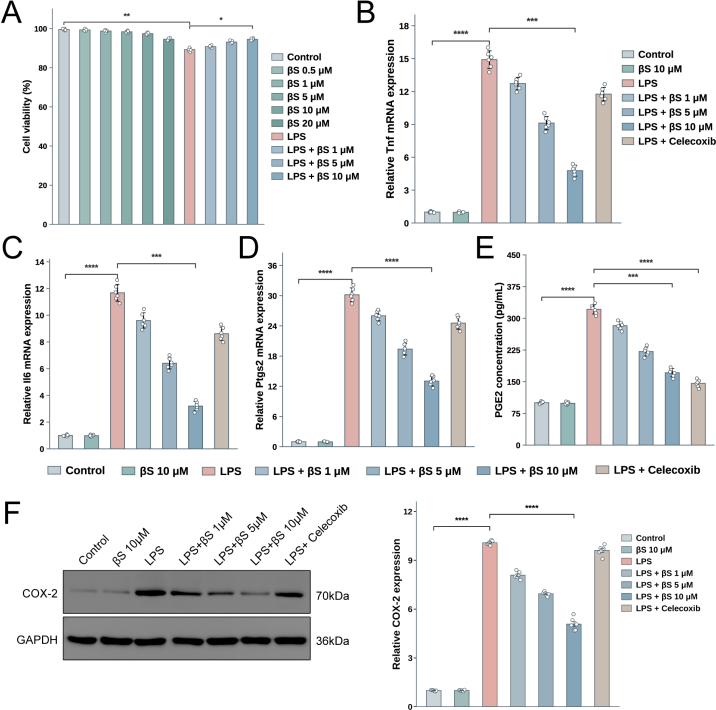
图5。 β-谷甾醇减轻脂多糖(LPS)诱导的HBZY-1系膜细胞炎症活化及PGE2生成。(A)采用细胞计数试剂盒-8(CCK-8)检测细胞活力。细胞经0.5、1、5、10或20 µM β-谷甾醇处理24小时。在LPS刺激组中,细胞先经1、5或10 µM β-谷甾醇预处理2小时,再暴露于1 µg/mL LPS中24小时。细胞活力以对照组为基准进行相对表达。(B–D)Tnf(B)、Il6(C)和Ptgs2(D)mRNA表达的定量实时PCR分析。基因表达以Gapdh为内参进行标准化,并以对照组为基准进行相对表达。(E)采用酶联免疫吸附测定法(ELISA)检测培养上清液中PGE2浓度。实验中加入塞来昔布作为抑制COX-2依赖性前列腺素生成的功能性阳性对照。(F)各处理组中COX-2和GAPDH蛋白的代表性蛋白印迹图。数据来自六次独立的生物学重复实验,以均值±标准差表示,图中显示各次生物学重复的数值。技术重复的数值在分析前已取平均值。采用单因素方差分析(one-way ANOVA)进行组间比较,随后进行Tukey多重比较检验。各子图中以括号标注显著性:*P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001。请点击此处查看本图的放大版本。
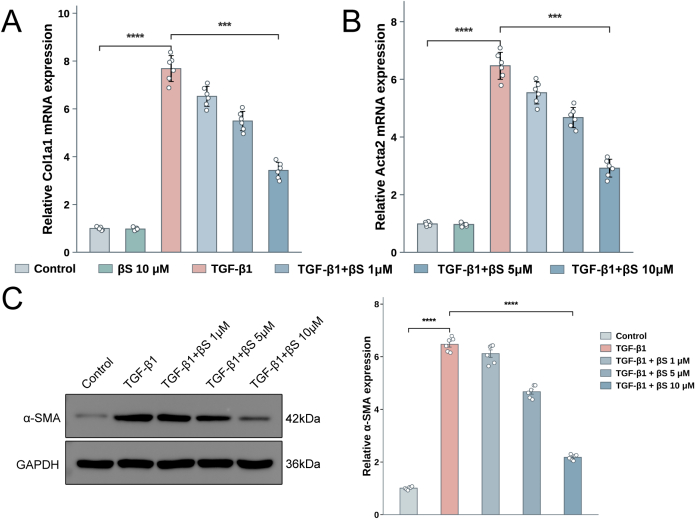
图6. β-谷甾醇可降低TGF-β1诱导的HBZY-1系膜细胞中促纤维化标志物的表达。(A–B)Col1a1(A)和Acta2(B)mRNA表达的定量实时PCR分析。基因表达水平以Gapdh为内参进行标准化,并相对于对照组表示。(C)各处理组中α-SMA和GAPDH蛋白的代表性Western印迹图像。数据来自六次独立的生物学实验,以均值±标准差表示,图中显示了每个生物学重复的个体值。技术重复值在分析前已取平均值。组间比较采用单因素方差分析,随后进行Tukey多重比较检验。各子图中用括号标注显著性差异:*P < 0.05,**P < 0.01,***P < 0.001,****P < 0.0001。请点击此处查看该图的放大版本。
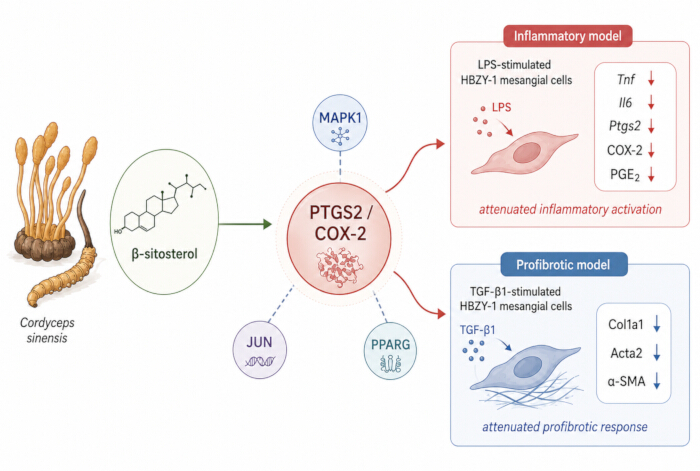
图7.β-谷固醇在HBZY-1细胞中相关炎症与促纤维化反应的整合解析。 网络分析与分子对接分析在包含MAPK1、JUN和PPARG的更广泛背景下,优先识别出PTGS2/COX-2。β-谷固醇处理可降低脂多糖(LPS)诱导的Tnf、Il6和Ptgs2表达、COX-2蛋白丰度以及PGE2的生成,同时亦可降低转化生长因子-β1(TGF-β1)诱导的Col1a1、Acta2和α-SMA的表达。请点击此处查看该图的放大版本。
| 编号 | 重叠靶点 | 与靶点相关的候选化合物 |
| 1 | PTGS1 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 2 | PTGS2 | β-sitosterol; linoleyl acetate; arachidonic acid |
| 3 | CASP3 | β-sitosterol; arachidonic acid |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | linoleyl acetate; arachidonic acid |
| 12 | TNFRSF1A | arachidonic acid |
| 13 | TNFRSF1B | arachidonic acid |
| 14 | ALOX5 | arachidonic acid |
| 15 | SELP | arachidonic acid |
| 16 | C1R | arachidonic acid |
| 17 | COL1A2 | arachidonic acid |
| 18 | PPARG | arachidonic acid |
| 19 | PRKCB | arachidonic acid |
| 20 | NOS3 | arachidonic acid |
| 21 | PECAM1 | arachidonic acid |
| 22 | MAPK1 | arachidonic acid |
| 23 | EGF | arachidonic acid |
表1: TCMSP数据库获得的化合物相关靶点与肾小球肾炎相关基因之间的重叠靶点。 化合物-靶点记录从TCMSP数据库中获取,经人工去重后,使用UniProt标准化为官方人类基因符号。
| 分子名称 | 分子量 | 脂水分配系数 | 口服生物利用度 (%) | Caco-2 细胞渗透性 | 血脑屏障通透性 | 药物相似性 | 费舍尔可及表面积 | 半衰期 |
| 花生四烯酸 | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| 亚油酸乙酸酯 | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-谷甾醇 | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| 过氧麦角甾醇 | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| 麦角甾醇-5,8-过氧化物 | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| 棕榈酸胆固醇酯 | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| 胆固醇 (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
表2: 根据TCMSP中口服生物利用度和类药性筛选标准筛选出的C. sinensis候选成分。 保留口服生物利用度不低于30%、类药性不低于0.18的化合物。MW:分子量;ALogP:预测的辛醇-水分配系数;OB:口服生物利用度;Caco-2:预测的Caco-2细胞通透性;BBB:血脑屏障穿透能力;DL:类药性;FASA:负电荷可及表面积分数;HL:半衰期。
补充表 1. 在 HBZY-1 大鼠肾小球系膜细胞中用于定量实时 PCR 的引物序列。 所有序列均以 5′ 至 3′ 方向给出。请点击此处下载该文件。
补充文件1. 蛋白质印迹完整扫描图像。请点击此处下载该文件。
讨论
本研究整合了网络药理学、参考配体验证的分子对接以及化合物水平的实验,以验证从C. sinensis候选成分中推导出的与PTGS2相关的假设。七种成分符合预设的TCMSP筛选标准,其中23个靶点与肾小球肾炎相关基因集重叠。蛋白质相互作用分析筛选出九个核心靶点,选择PTGS2进行分子对接和实验验证。塞来昔布的重新对接重现了其晶体结构构象,而β-谷甾醇和乙酸亚油酯在COX-2对接区域表现出中等程度的预测结合能力。在HBZY-1系膜细胞中,β-谷甾醇可降低脂多糖(LPS)诱导的炎症基因表达、COX-2蛋白水平及PGE2的生成,并减少TGF-β1诱导的促纤维化标志物表达。这些结果将计算筛选结果与细胞表型联系起来,但仅支持一种候选调控关系,而非明确的治疗机制。
富集分析结果表明,重叠靶点涉及与炎症刺激、细胞应激、脂质调控、血管功能及组织重塑相关的生物学过程。对脂多糖和细菌产物反应的富集结果与用于实验验证的炎症模型一致。TNF、IL-17、AGE-RAGE 和 HIF-1 相关通路也为肾小球炎症及不良适应性重塑提供了合理的功能背景6,17,18,19。然而,通路富集仅反映注释基因的统计学富集情况,并不能证明β-谷甾醇对特定通路具有激活或抑制作用12。因此,显著的脂质代谢和动脉粥样硬化相关注释应被理解为反映了共同的炎症、凋亡及血管生物学机制,而非表明动脉粥样硬化是慢性肾小球肾炎(CGN)的主要疾病机制。类似地,本研究还利用TCMSP数据库中的口服生物利用度、类药性及靶点信息对候选化合物进行了优先排序。
PTGS2 成为一个重要节点,因为它存在于化合物-疾病交集中,表现出较高的网络中心性,并且在实验上与 Ptgs2 转录水平、COX-2 蛋白丰度以及 PGE2 生成的变化相关联。这种在计算和细胞层面的一致性加强了研究 PTGS2 相关 反应的合理性。然而,这并不意味着 PTGS2 在肾脏中具有统一的致病作用。COX 来源的前列腺素参与调节肾血流、电解质处理和适应性稳态,其效应可能是保护性或有害性的,具体取决于细胞类型、受体分布、疾病阶段和局部浓度20,21。在实验性肾炎模型中,塞来昔布可减少与 PGE2 相关的产物,而 PGE2 本身则影响系膜细胞中前列腺素受体的表达22。这些观察结果表明,COX-2 和 PGE2 的生物学效应超出了简单的线性促炎通路20,23。与塞来昔布的比较有助于区分靶基因表达与酶功能之间的差异。塞来昔布对 PGE2 的降低作用最为明显,这与其作为功能性 COX-2 抑制剂的作用一致,但其对 Ptgs2 表达和 COX-2 蛋白丰度的影响相对有限22。β-谷甾醇则表现出更广泛的作用模式,包括降低 Tnf、Il6、Ptgs2、COX-2 和 PGE2 水平。这种差异并不表明 β-谷甾醇具有更强的 COX-2 抑制效力;相反,它提示 β-谷甾醇可能改变了诱导 PTGS2 表达的炎症状态,而塞来昔布主要通过抑制催化活性来限制前列腺素的合成。要确定 β-谷甾醇是否在功能上也与 COX-2 发生相互作用,还需进行直接的酶活性测定、靶点结合研究以及对 PTGS2 的扰动实验。
网络分析结果还表明 PTGS2 不应被解释为孤立的分子节点。 MAPK1, JUN,以及 PPARG 在蛋白质相互作用网络中,这些因子被共同列为优先关注对象,将前列腺素合成置于更广泛的信号转导与转录调控背景之中。在肾小球系膜细胞中,鞘氨醇-1-磷酸通过S1P受体2依赖性的p42/p44 MAPK信号通路,上调COX-2表达并促进PGE2生成,为MAPK活性位于该细胞类型中COX-2/PGE2反应上游提供了直接证据。24。因为 JUN 是AP-1转录因子复合物的主要组分,AP-1可能为MAPK激活与 PTGS2 转录。与此可能性一致,15-脱氧-Δ12,14-前列腺素 J2 抑制 IL-1β诱导的 COX-2 表达及培养的系膜细胞中 AP-1 活性25在非肾源性细胞模型中, β-sitosterol 抑制了 ERK 和 p38 的活化,以及 NF-κLPS 刺激后的 B 信号通路、COX-2 表达及炎症性细胞因子产生14,15这些观察结果为协调减少的现象提供了合理的解释背景 Tnf, Il6, Ptgs2,COX-2 和 PGE2 在本研究中观察到的结果。然而,所引用的 β-谷甾醇的研究是在小胶质细胞或内皮细胞中进行的,而非肾小球系膜细胞中,且 MAPK1 磷酸化和 JUN 此处未测量活性,因此,当前结果并未确立 MAPK1-依赖的或 JUN依赖性机制 PTGS2 调控由 ββ-谷甾醇 PPARG 可能与 PTGS2通过脂质敏感性转录调控及对促纤维化系膜细胞表型的调节,发挥以网络为中心的作用,而非作为简单的线性下游效应分子 PTGS2在肾小球系膜细胞中,天然与合成的 PPARγ 配体抑制了TGF-β1诱导的纤连蛋白表达,而另一项研究显示PPARγ 激动剂降低了TGF-β-诱导的系膜细胞活化, α-SMA 表达和胶原蛋白 IV 积累,通过抑制 PKA 和 CREB 信号通路实现26,27. 在糖尿病小鼠和高葡萄糖刺激的肾小球系膜细胞中的较新研究发现,NF-κB/COX-2 和 PPARγ/UCP2 在与肾脏炎症和纤维化相关的平行调控轴中,支持潜在的功能汇聚,但未证明直接作用 PTGS2-PPARG 偶联28这些发现为观察到的减少现象提供了生物学上合理的解释背景 Col1a1, Acta2,以及 α-SMA 在本研究的 TGF-β1 型模型。然而, PPARG 表达、转录活性及配体结合未进行评估。因此,目前的数据无法将所观察到的促纤维化反应归因于 PPARG 激活或定义一个顺序 MAPK1-PTGS2-PPARG 信号通路。重要的是, MAPK1 和 PPARG 在整合的化合物-疾病网络层面上被优先考虑,不应将其解释为直接的 β-sitosterol 的靶点基于当前分析。
对接分析应在相同的证据边界内进行解释。0.876 Å 的重新对接 RMSD 值表明,所选用的对接方案能够重现塞来昔布在 3LN1 结构中的已知取向。与塞来昔布相比,β-谷甾醇和油酸乙酸酯预测结合亲和力显著更低,支持这些分子可在预定义区域内实现空间容纳,但并不表明其具有相当的结合强度或药理学作用29,30。油酸乙酸酯与 β-谷甾醇之间 0.3 kcal/mol 的差异过小,不足以单独作为生物学排序的依据。选择 β-谷甾醇进行后续实验验证,是因为其在网络中的关联性伴随着更广泛的实验文献支持,这些文献涉及炎症与纤维化相关研究14,15,16。既往研究报道,在脂多糖(LPS)刺激的小胶质细胞和内皮细胞中,β-谷甾醇可降低 TNF-α、IL-6 和 COX-2 的表达,并影响 MAPK 和 NF-κB 信号通路14,15。花生四烯酸需要另行解释,因其为内源性 COX 底物21。它在 TCMSP 衍生网络中的出现并不表示具有抗炎抑制作用,这说明基于数据库的化合物-靶点关系无法定义作用方向性。在 HBZY-1 细胞中观察到的炎症标志物随浓度降低的现象,与此前的细胞研究结果一致,同时将证据扩展至肾小球系膜细胞背景14,15。TGF-β1 模型则针对疾病过程的另一层面进行了探讨31。β-谷甾醇在 TGF-β1 刺激后降低了 Col1a1 和 Acta2 的转录水平,并减少了 α-SMA 的蛋白丰度。在人肺泡上皮细胞中的前期研究同样发现,β-谷甾醇可抑制 TGF-β1 诱导的胶原蛋白、纤连蛋白和 α-SMA 的表达,尽管该研究涉及不同的组织和细胞过程16。因此,本研究结果支持 β-谷甾醇在系膜细胞中对抗促纤维化表型的活性,但并未证实其对特定 TGF-β 受体或 SMAD 依赖性机制的直接抑制作用31。
本研究的解释范围存在若干局限性。疾病基因集是通过使用广义术语“肾小球肾炎”生成的,而非特指某一种临床或组织学类型的慢性肾小球肾炎(CGN)。计算分析采用了人类注释数据,分子对接则使用了小鼠 COX-2 结构,而实验是在大鼠 HBZY-1 细胞中进行的。尽管直系同源关系支持跨物种比较,但仍可能存在物种间在调控机制和配体识别方面的差异。单一永生化系膜细胞系无法模拟系膜细胞、足细胞、内皮细胞、浸润性免疫细胞以及肾小管间质区室之间的复杂相互作用。本研究也未评估直接结合能力、COX-2 酶活性、PTGS2 依赖性、原代人肾细胞反应、in vivo 药效、药代动力学或肾脏暴露情况。最后,使用明确的 β-谷甾醇制剂解决了先前预测成分与未表征提取物之间结果不一致的问题,但这并不能证明 β-谷甾醇可完全解释全株 C. sinensis 的作用效果,也不能排除其他成分无活性的可能性。
综上所述,网络分析、分子对接及基于细胞的实验结果均支持 β-sitosterol 作为与 HBZY-1 细胞中炎症及促纤维化活化减弱相关的代表性候选物质,其结果与调控 PTGS2/COX-2/PGE2 相关反应一致,但并未证实其与 COX-2 的直接结合、PTGS2 依赖性的因果关系,或在 CGN 中的治疗有效性。仍需进一步开展靶点结合、基因扰动、原代细胞及 体内 需要进行研究(图7).
披露
作者声明不存在任何竞争利益。本研究使用了基于人工智能的工具(ChatGPT,OpenAI)辅助语言润色及示意图的初步设计。生成式人工智能被用于协助绘制图1A和图7的初步图形草稿,随后由作者进行审阅和修改,以确保其与所报告的方法和结果保持一致。所有由人工智能辅助生成的内容均经过作者的批判性评估并获其批准。作者核实了最终的图示内容,并对稿件的完整性与准确性承担全部责任。
致谢
本研究由中西医结合肾病特色专科(ZYTSZK2-3)和从慢性病管理角度探讨慢性肾脏病中医干预策略的研究(202240169)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 无水乙醇 | Sigma-Aldrich/Merck | E7023 | 200 proof,未变性,分子生物学级乙醇;用于β-谷固醇储备液的溶剂。 |
| AutoDock Vina | Scripps Research | Version 1.1.2 | 分子对接模拟 |
| 生物安全柜 | Thermo Fisher Scientific | 1300 Series A2 | 无菌细胞培养操作 |
| 塞来昔布 | MedChemExpress | HY-14398 | 选择性COX-2抑制剂,作为阳性对照;以DMSO配制10 mM储备液。 |
| 细胞计数试剂盒-8 | Dojindo Molecular Technologies, Inc. | CK04 | 基于WST-8的比色法细胞活力检测;在450 nm处测定吸光度。 |
| 化学发光成像系统 | Bio-Rad Laboratories | ChemiDoc MP | Western blot图像采集 |
| clusterProfiler R软件包 | Bioconductor | Version 4.10.0 | GO和KEGG富集分析 |
| CO2细胞培养孵箱 | Thermo Fisher Scientific | Forma Series II 3111 | 细胞培养条件:37 °C,5% CO2 |
| COX-2 (D5H5) 兔单克隆抗体 | Cell Signaling Technology | 12282 | 经Western blot验证可用于人、小鼠和大鼠COX-2检测;使用稀释比为1:1,000。 |
| CytoNCA插件 | Cytoscape App Store | Version 2.1.6 | 枢纽靶标拓扑学分析 |
| Cytoscape软件 | Cytoscape Consortium | Version 3.8.0 | 网络可视化与分析 |
| 二甲基亚砜 | Sigma-Aldrich/Merck | D2650 | 经无菌过滤的BioReagent级试剂,≥99.7%;用于塞来昔布储备液的溶剂。 |
| DisGeNET数据库 | 整合生物医学信息学组 | 不适用 | 用于检索肾小球肾炎相关疾病-基因信息 |
| 杜氏改良伊格尔培养基(DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | HBZY-1细胞培养的基础培养基 |
| 增强型化学发光底物 | Beyotime Biotechnology | P0018S | Western blot条带显影 |
| 胎牛血清 | Gibco/Thermo Fisher Scientific | 10099-141C | 细胞培养用血清添加剂 |
| GAPDH (D16H11) 兔单克隆抗体 | Cell Signaling Technology | 5174 | Western blot上样对照;可识别人、小鼠和大鼠GAPDH;经实验室优化后使用稀释比为1:5,000。 |
| GeneCards数据库 | Weizmann Institute of Science | NA | 检索与肾小球肾炎相关的基因 |
| GraphPad Prism | GraphPad Software | Version 9.0.0.121 | 体外实验数据的统计分析 |
| HRP标记的山羊抗兔IgG | Proteintech Group | SA00001-2 | 用于兔源一抗的二抗 |
| ImageJ软件 | National Institutes of Health | Version 1.54 | Western blot条带密度分析 |
| 倒置相差显微镜 | Olympus | CKX53 | 细胞形态学观察 |
| org.Hs.eg.db R软件包 | Bioconductor | Version 3.18.0 | 用于富集分析的人类基因注释 |
| 青霉素-链霉素溶液 | Gibco/Thermo Fisher Scientific | 15140122 | 细胞培养用抗生素添加剂 |
| PGE2检测试剂盒 | R&D Systems, a Bio-Techne品牌 | KGE004B | 适用于多种物种的细胞培养上清液竞争性ELISA;检测范围为39–2,500 pg/mL;在450 nm处进行比色检测。 |
| PharmGKB数据库 | 药物基因组学知识库 | NA | 疾病相关靶标检索 |
| PubChem数据库 | 美国国家生物技术信息中心 | NA | 配体结构检索 |
| PVDF膜 | Millipore/Merck | IPVH00010 | Western blot蛋白转膜用膜 |
| PyMOL分子图形系统 | Schrödinger, LLC | Version 2.6.2 | 对接构象可视化 |
| R软件 | R统计计算基金会 | Version 4.3.2 | 靶标交集与富集分析 |
| 大鼠肾小球系膜细胞系(HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | 体外系膜细胞验证模型 |
| RCSB蛋白质数据库 | 结构生物信息学协作研究组织 | PDB ID: 3LN1 | 获取PTGS2/COX2晶体结构 |
| 重组人TGF-β1蛋白 | PeproTech, a Thermo Fisher Scientific品牌 | 100-21-10UG | HEK293细胞表达的重组人TGF-β1;以10 ng/mL浓度进行促纤维化刺激。 |
| SDS-PAGE电泳系统 | Bio-Rad Laboratories | Mini-PROTEAN Tetra | 通过SDS-PAGE进行蛋白质分离 |
| STRING数据库 | ELIXIR/STRING联盟 | Version 12.0 | 蛋白质-蛋白质相互作用网络构建 |
| TCMSP数据库 | 中药系统药理学数据库 | NA | 筛选冬虫夏草候选化合物 |
| 治疗靶点数据库 | 创新药物研究与生物信息学组 | NA | 治疗靶点检索 |
| α-SMA一抗 | Proteintech Group | 14395-1-AP | 检测α-SMA蛋白表达 |
| β-谷固醇(纯度 >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5;用于细胞处理的明确化合物;以无水乙醇配制10 mM储备液。 |
参考文献
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).