本方案描述了一种无需使用护目镜和缝合眼睑的啮齿类动物近视模型,该模型通过结膜下注射TGF-β2诱导近视,激活NLRP3/IL-1β-MMP2信号轴,导致眼轴延长;同时采用分次生物测量记录方案,最大限度减少麻醉带来的干扰,获得高保真的数据。
本文内容
摘要
摘要
近视是一种主要的全球公共卫生问题,其特征是眼轴过度延长以及巩膜细胞外基质(ECM)重塑。尽管实验模型对于研究这些机制至关重要,但传统的小型啮齿类动物光学离焦方法存在技术局限性。本文通过反复结膜下注射转化生长因子-β(TGF-β),建立并评估了一种可标准化的药理学近视模型。为实现靶向给药,开发了一种双手手术稳定技术,通过外翻上眼睑,使33号针头以20°–30°的浅角精准作用于睑结膜。通过在大鼠体内的活体筛选,确定TGF-β2(500 pg/眼)是驱动眼球后段生长的主要因子。随后在小鼠中进行的剂量-反应滴定显示呈倒U型剂量效应曲线。在主要验证队列中,最低剂量(250 pg/眼)即可诱导显著的眼轴延长(0.197 ± 0.012 mm)和近视性屈光偏移(−1.58 ± 0.63 D)。在分子水平上,重复给予TGF-β2可激活视网膜NOD样受体家族含吡啶结构域3(NLRP3)/白细胞介素-1β(IL-1β)炎性小体级联反应,并在两种物种中均上调基质金属蛋白酶2(MMP2)的表达。结合每两天一次的分段生物测量记录方案,该方案可最大限度减少麻醉相关的人工干扰,为评估抗近视干预措施提供了一个可靠且可扩展的平台。
引言
近视已成为一个重大的全球公共卫生问题,预计到2050年其患病率将影响全球近50%的人口1,2。进行性近视的主要病理驱动因素是眼球的过度轴向伸长,这会引起活跃的细胞外基质重塑和组织退化,导致眼球后部组织变薄3。这些动态变化包括结构重塑(表现为巩膜细胞外基质降解、胶原蛋白丢失以及后层变薄)和功能重塑(表现为生物力学刚性降低、脉络膜灌注改变以及视网膜-视网膜色素上皮炎症信号异常),共同增加了终生发生威胁视力的并发症和不可逆视觉损伤的风险,包括近视性黄斑病变、视网膜脱离、青光眼和早发性白内障4,5,6,7。尽管该疾病带来了巨大的临床和社会经济负担,但调控异常眼球生长的上游分子机制尚未完全阐明。因此,阐明驱动眼轴伸长的信号通路,并建立可重复、标准化的动物模型,是发现新型治疗靶点并应对全球近视流行的关键步骤。
尽管形觉剥夺性近视(FDM)和透镜诱导性近视(LIM)是研究光学离焦与正视化过程的金标准8,9,10,11,但在小型啮齿类动物——尤其是小鼠——中实施这些光学离焦模型存在重大的技术挑战。小鼠活跃的理毛行为常导致眼罩脱落,因而需要采取诸如佩戴保护性颈圈等带来应激的应对措施12。此外,机械摩擦、眼睑缝合以及遮蔽装置下方微环境的改变通常会引起继发性角膜并发症,例如角膜混浊或角膜溃疡13,14,15。虽然FDM和LIM仍是研究视觉离焦的基础范式,但诸如角膜混浊、机械摩擦或眼睑缝合刺激等继发性眼表并发症可能干扰光学生物测量结果15。这些操作相关的干扰因素会破坏泪膜稳定性与角膜透明度,导致实验排除率升高以及测量噪声增加13,16。相比之下,药理学诱导方法避免了物理遮蔽装置的使用,从而保持角膜清晰,有助于实现可靠且可重复的光学和超声生物测量。在近视发展过程中,眼球过度伸长主要由后部巩膜细胞外基质(ECM)重塑异常所驱动17,其中转化生长因子-β(TGF-β)亚型是胶原蛋白和蛋白聚糖合成的关键调控因子18,19。新兴证据表明,TGF-β信号通路可能与低度眼部炎症及基质金属蛋白酶2(MMP2)介导的基质降解相互关联20,可能参与了巩膜重塑和眼轴延长过程21,22,23,24。这一观点得到了以下发现的支持:在近视眼的房水中检测到转化生长因子-β2(TGF-β2)、白细胞介素-6(IL-6)和MMP2水平升高25,26,27,并且在实验模型中观察到TGF-β / 核因子κB(NF-κB) / MMP2信号轴被激活20,21。尽管这些发现反映了近视进展过程中眼内动态的分子信号活动,但房水标志物的相对解剖来源贡献——是来自局部前段分泌、结膜下储库扩散,还是后段玻璃体扩散——仍有待进一步阐明。然而,必须认识到该药理学模型的应用范围及其固有局限性。由于结膜下给予TGF-β绕过了光学离焦和视觉处理通路,因此该模型最适合用于解析下游生化级联反应——特别是TGF-β2 / NOD样受体家族含pyrin结构域蛋白3(NLRP3) / 白细胞介素-1β(IL-1β) / MMP2介导的巩膜ECM重塑过程——以及筛选靶向炎症或基质降解通路的候选治疗药物。相反,该模型不适用于研究上游视觉信号转导、视网膜至巩膜的光学信号传递,或环境光照驱动的正视化机制,在这些领域传统FDM或LIM模型仍然不可或缺。
为解决这些方法学上的不足,本研究建立并验证了一种通过在大鼠和小鼠中反复进行结膜下注射转化生长因子-β(TGF-β)诱导近视的模型,该方法更为精细,可最大限度减少机械性创伤和眼表刺激。通过避免使用物理遮盖装置,该方案实现了对药物剂量和实验时间进程的精确控制,同时显著降低了与头戴式装置相关的潜在行为干扰因素。本研究评估了三种重组人源TGF-β亚型(基于序列保守性,已有证据支持其在啮齿类动物组织中具有功能交叉反应性28)在大鼠中的效力,并在小鼠中描绘了TGF-β2的非线性剂量-反应动力学。重要的是,该标准化方案能够高效诱导表型近视——表现为眼轴延长与近视性屈光度偏移同时发生——并激活视网膜NOD样受体家族含吡啶结构域3(NLRP3)/白细胞介素-1β(IL-1β)炎性小体及MMP2信号轴。最终,该实验方案为靶向下游巩膜重塑过程提供了一个可行且分子机制明确的研究框架,同时详细阐明了其具体的操作边界。
方案
所有动物实验均依据中国医科大学(CMU)机构动物护理与使用委员会(IACUC)的指导方针和规定进行。所有程序均符合视觉与眼科研究协会(ARVO)关于在眼科和视觉研究中使用动物的声明。所有实验开始前均已获得CMU-IACUC的正式批准。实验终点时,动物均严格按照中国医科大学(CMU)机构动物护理与使用委员会(IACUC)的指导方针及当地动物福利法规实施安乐死。
1. 动物与伦理审批
- 获取雄性 Brown Norway (BN) 大鼠(3–4周龄,60–80 g)和雄性C57BL/6(B6)小鼠(3–4周龄,15只–自合适的实验动物供应商处获取 20 克样本。
- 将所有动物饲养于受控环境中(12小时光照/黑暗循环,22 °C ± 2 °C,50% ± 在相对湿度为10%的环境中饲养,并提供标准饲料和水供其自由取用。
- 在启动任何实验程序前,需提供至少3天的适应期。
- 将大鼠或小鼠随机分配至治疗组:载体对照组与TGF-β2 注射组。为确保充分的统计功效,每个队列至少使用 N = 5 只动物。
注意:本研究采用被试间设计。同一动物的双眼接受相同处理(双侧溶媒对照[1–2 µL BSS] 或双侧活性 rhTGF-β2).- 测量每只动物的双侧眼部参数(眼轴长度与屈光不正)。
注意:确保已获得卡内基梅隆大学机构动物护理与使用委员会的书面批准,且所有执行操作的人员均已接受适当培训并获得认证。
- 测量每只动物的双侧眼部参数(眼轴长度与屈光不正)。
2. TGF-β 的制备β2 溶液
注意:所有复溶与稀释步骤均须在经认证的生物安全柜内,采用严格的无菌技术进行操作。
- 将冻干的重组人 TGF-β2 于含 0.1% 牛血清白蛋白 (BSA) 的无菌 50% 甘油中,以制备 100 µg/mL 储备溶液。
- 通过将原液在无菌平衡盐溶液(BSS)中进行连续稀释来制备工作溶液。
- 对于大鼠队列(500 pg剂量),将储备溶液稀释至最终浓度为250 ng/mL(250 pg/µL) 用于 2 µ每只眼睛注射体积为 L。
- 对于小鼠剂量反应队列,需配制三种独立的工作溶液,浓度分别为 250 ng/mL、375 ng/mL 和 500 ng/mL(即 250、375 和 500 pg/µL) 用于 1 µ每只眼睛的注射体积为 L。
- 准备一次性15–20 µ分装至无菌微量离心管中,液氮速冻,并于-20°C保存。 °C. 使用前立即在冰上解冻分装样品。
**警告:** 液氮可导致严重冻伤,并有窒息风险。请穿戴适当的低温个人防护装备,并按照机构安全规程,在通风良好的区域进行操作。 - 平行制备载体对照溶液,使用无菌BSS,并补充等量基质,即50%甘油和0.1% BSA。
3. 结膜下注射操作步骤
- 将动物置于含有3%异氟烷的诱导室中。–使用4%异氟烷进行麻醉诱导。随后,将动物转移至输送1.5%异氟烷的鼻锥。–2% 异氟烷用于麻醉维持。
注意:异氟烷是一种挥发性麻醉剂。请使用适当的废气清除系统,并按照机构职业健康与安全规程进行操作。 - 通过确认足趾夹捏回缩反射消失,以验证麻醉深度是否充分。
- 将动物俯卧置于光纤聚光灯下。使用精细尖头显微镊轻柔夹持、提起并稍外翻上眼睑,充分暴露睑结膜与结膜穹窿。图 1B).
- 预湿一根 10 µL 型玻璃微量注射器与 33 号针头 2–用工作液冲洗3次以消除死体积。加入目标体积(2 µL 用于大鼠或 1 µL(适用于小鼠)并清除所有微气泡。
**注意:** 请小心处理针头及其他锐器,并按照机构规定将其弃置于经批准的锐器容器中。 - 将33号针头的斜面朝上(斜面向上)定位,并瞄准暴露的睑结膜表面上的指定穿刺点。图 1B,).
- 将针尖以20度浅角刺入结膜上皮。°–30° 角度图 1C).
- 轻柔地将针头穿过狭窄的黏膜下层间隙,越过结膜穹窿,进入眼睑结膜下区域图 1C).
**关键步骤(需避免的结构):** 严格避免刺入下方的睑板腺或意外穿孔更深层的眼部结构。在聚光灯下通过视觉确认正确的浅表放置:确保在整个进针过程中,针头斜面始终在透明的结膜表面下可见。 - 在 5 秒内缓慢注入溶液。–10 秒。将针头在原位保持额外 5 秒,然后缓慢撤出,以防止液体回流。
注意:正确的结膜下注射可通过即刻出现的局部结膜隆起与变白(水泡形成)来确认。- 若水泡未能形成或出现明显渗漏,应在下睑结膜间隙进行单次重新注射,并将偏差记录于实验日志中。
注意:每次操作中,每只眼睛严格限制仅可重复注射一次;对于持续存在递送失败的动物,应将其排除在纵向分析之外。
- 若水泡未能形成或出现明显渗漏,应在下睑结膜间隙进行单次重新注射,并将偏差记录于实验日志中。
- 在同一组内不同动物个体间进行注射时,需对微量注射器腔体进行消毒。具体操作为:先用无菌70%乙醇冲洗3次,随后用无菌生理盐水冲洗5次。
- 每 3 次操作后,请在放大镜下检查 33-G 针头的针尖。–注射5次,若针尖出现钝化或弯曲,请立即更换针头。
- 首先注射所有载体对照组动物,随后再处理或注射治疗组动物,以消除药理学交叉污染的风险。在转换至治疗组前,重复执行注射器消毒流程。
- 每次实验结束后,使用专用微量注射器清洗液冲洗注射器筒身与推杆,随后依次用超纯水与无水乙醇冲洗,并干燥保存。
- 每周重复进行一次结膜下注射,连续三周(第0、7和14天)。在基线(第0天)及每次注射后(第1、7和14天)进行纵向生物测量评估。 −起始点(第1天和第0天)与终点(第20天和第21天),具体细节见第4节。
- 注射后,将动物置于铺有纸巾的保温恢复笼中。持续监测动物,直至其完全恢复胸骨卧位姿势及正常自主活动能力。
- 动物苏醒后,在立体显微镜下检查双眼,以排除眼内出血、角膜混浊或急性机械性损伤。每日观察动物是否出现痛苦迹象或局部感染。
4. 模型验证方法
- 眼屈光不正评估
- 将啮齿动物置于恒温加热垫上,以维持其生理体温并防止麻醉性白内障形成。使动物维持在轻度异氟烷麻醉状态(1–通过鼻罩持续输送异氟烷(1.5%)以确保麻醉深度稳定。
- 向每只眼睛滴入1滴 Mydrin-P(0.5% 托吡卡胺和 0.5% 盐酸去氧肾上腺素),10–测量前15分钟使用,以诱导完全性睫状肌麻痹和瞳孔散大。
- 将动物置于胸骨卧位,置于昏暗、间接的环境光照下。在光学采集前持续滴注无菌平衡盐溶液,以维持角膜透明度。
- 使用自动红外验光仪在严格的5分钟内测量眼屈光度。–麻醉诱导后10分钟窗口期。对于BN大鼠,在采集图像期间需轻柔地手动拉开眼睑,以充分暴露已扩张的瞳孔。
- 每只眼睛采集三次独立的光学读数,并计算平均值以确定基线或终点屈光不正。
**关键步骤**(时间安排 & 序列):在评估序列的第 1 天(第 –1 为基线;第 20 天为终点)在任何接触性操作前,于微光环境下进行。在接触性超声检查或声学耦合剂涂抹后进行光折射检查,会严重干扰角膜光学特性,散射红外光,并使自动屈光度读数失效。
- 通过高频B型超声扫描进行眼轴长度测量
- 次日(基线第0天或终点第21天),在轻度异氟烷麻醉(1–1.5%)使用经校准至啮齿动物组织声速(1532 m/s)的手持式16 MHz线阵超声探头。–1550 米/秒。
- 对于B6小鼠(直接角膜界面):首先在角膜上直接涂抹一层Ginpol卡波姆凝胶(0.2%)作为基础保护层,随后再覆盖一层标准超声耦合凝胶。
注意:确保凝胶层完全覆盖角膜表面,且不引入会导致声波衰减的滞留气泡。 - 对于 BN 大鼠(经眼睑界面):将动物置于闭合眼睑状态,将超声耦合剂涂抹于眼睑外表面,并进行经眼睑测量。
注意:经眼睑测量法避免了与角膜的直接接触,可显著降低较大啮齿类动物眼球发生角膜擦伤的风险。
- 对于B6小鼠(直接角膜界面):首先在角膜上直接涂抹一层Ginpol卡波姆凝胶(0.2%)作为基础保护层,随后再覆盖一层标准超声耦合凝胶。
- 对准超声探头,沿中央光学轴测量从眼前界面到后部巩膜回声壁的眼轴长度。
- 每只眼睛采集十次独立的重复B扫描轨迹,并计算平均眼轴长度。
- 图像采集后,立即使用无菌平衡盐溶液轻柔冲洗眼部残留的耦合剂,以防止术后角膜刺激。
**关键步骤(零压力接触):** 将超声探头以极轻的、零压力的接触方式置于耦合剂界面。对角膜顶点施加任何向下的物理压力都会人为地压缩前房深度,并导致眼轴长度测量值出现假性缩短。 - 记录平均眼轴长度与屈光不正测量值,以供后续分析。
- 次日(基线第0天或终点第21天),在轻度异氟烷麻醉(1–1.5%)使用经校准至啮齿动物组织声速(1532 m/s)的手持式16 MHz线阵超声探头。–1550 米/秒。
结果
结膜下注射模型的建立与解剖学验证
为解决与光学眼罩或眼睑缝合相关的技术变异性,在睑结膜与球结膜之间的结膜下间隙被验证为靶向局部药物储库(图 1A)。通过上穹窿的解剖学入路能够持续暴露靶点部位,同时保持眼表完整性(图 1B)。模型成功建立的确认基于特定的操作和生物测量标准,包括即刻透照验证在靶向睑结膜下间隙形成局部、充满液体的黏膜下泡状隆起(球结膜水肿),且无巩膜穿孔、组织出血或睑板腺损伤(图 1C),以及纵向生物测量验证相对于载体处理的对照组,在第21天出现伴随近视性屈光偏移(Δ 屈光度 < −1.0 D)的同步眼轴延长(小鼠 Δ 眼轴长度 > 0.15 mm;大鼠 >0.40 mm)。相反,不成功或次优的结果通过特定的技术和生理失效模式来识别。技术失败——例如针头撤出时液体过早回流或无意中刺入深层眼睑/眶内组织——导致泡状隆起形成极少或缺失,从而导致药效保留不足并无法诱导近视性偏移;根据方案步骤3.8.1,记录并排除显示持续渗漏的动物。此外,因针头误置过深或机械牵拉过度导致的眼表并发症会引起局部结膜下出血或角膜创伤,从而引入混杂的炎症反应。在剂量反应评估中也观察到了次优的表型结果,其中超阈值浓度(例如,小鼠500 pg/眼)的给药产生了减弱的U形反应,眼轴延长减少,这强调了严格剂量优化的生理学要求。在这些标准化标准下验证的局部药物保留确保了用于下游生物测量和分子分析的高保真组织靶向。
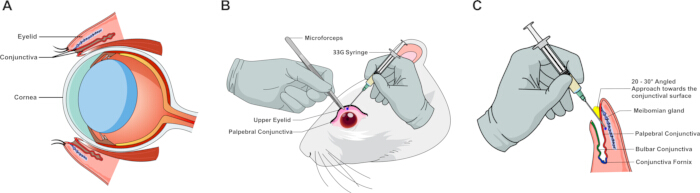
图 1:啮齿动物结膜下注射程序的解剖学标志与示意图。(A) 啮齿动物眼球的矢状切面图,展示了主要解剖学标志,包括眼睑、角膜、结膜囊以及目标结膜下间隙。(B) 使用显微镊进行组织稳定和睑结膜暴露的手术演示;蓝点指示使用 33 号注射器进行显微注射的目标针头插入部位。(C) 高倍放大示意图,说明针头相对于睑结膜表面、结膜穹窿以及下方眼部结构的朝向和插入轨迹。请点击此处查看此图的更大版本。
大鼠中 TGF-β 亚型的筛选及小鼠中 TGF-β2 剂量反应滴定以评估眼轴伸长
实验在连续的、独立的实验队列中进行,包括剂量筛选队列(图 2)和主要验证队列(图 3)。各队列间测量双侧参数,并将个体动物 (N) 指定为主要生物学重复。在适当情况下,使用双向重复测量方差分析或混合效应模型来考虑眼间依赖性(同一动物内右眼与左眼)。连续数据以平均值 ± 标准差表示。在适当情况下,使用双尾学生 t 检验、单因素方差分析或双向重复测量方差分析来评估对照组与处理组之间的差异。p 值 < 0.05 被认为具有统计学显著性。
为确定最有效的转化生长因子-β (TGF-β) 亚型并建立诱导眼轴延长的最佳给药方案,评估了从基线(第 0 天)至第 21 天对大鼠和小鼠队列重复进行结膜下注射的效果(图 2)。生物测量记录采用两日分割方案进行,以避免麻醉引起的伪影。
首先在大鼠队列中以标准化浓度 500 pg/眼对三种重组人 TGF-β 亚型(TGF-β1、TGF-β2 和 TGF-β3)进行了筛选(图 2A)。单因素方差分析及事后多重比较显示,在 21 天期间,与载体处理的对照组相比,所有三种亚型均显著刺激了后部眼球的生长。虽然 TGF-β1(0.444 ± 0.042 mm)和 TGF-β3(0.454 ± 0.049 mm)均促进了显著的轴向伸长(分别与对照组 0.328 ± 0.071 mm 相比,p < 0.05 和 p < 0.01),但 TGF-β2 诱导了最大的轴向长度增加(0.486 ± 0.074 mm)并显示出最高的统计学显著性(p < 0.001),从而确立其为最有效的近视表型诱导剂。
基于大鼠筛选结果,我们在小鼠队列中进行了TGF-β2的剂量反应滴定,测试了三种浓度:250、375和500 pg/眼(图2B)。结膜下注射TGF-β2产生了倒U形的剂量反应曲线。与载体对照组相比,最低剂量(250 pg/眼)导致眼轴伸长加速最为显著(0.177 ± 0.038 mm 对比 0.044 ± 0.011 mm;p < 0.0001)。在较高剂量(375和500 pg/眼)下,眼轴长度变化的幅度逐渐减小,但仍显著高于对照组(分别为0.123 ± 0.029 mm;p < 0.001 和 0.095 ± 0.024 mm;p < 0.01)。
综上所述,这些数据确立了每周一次结膜下注射的方案,即大鼠每眼500 pg、小鼠每眼250 pg,作为后续结构和分子研究的最佳参数。
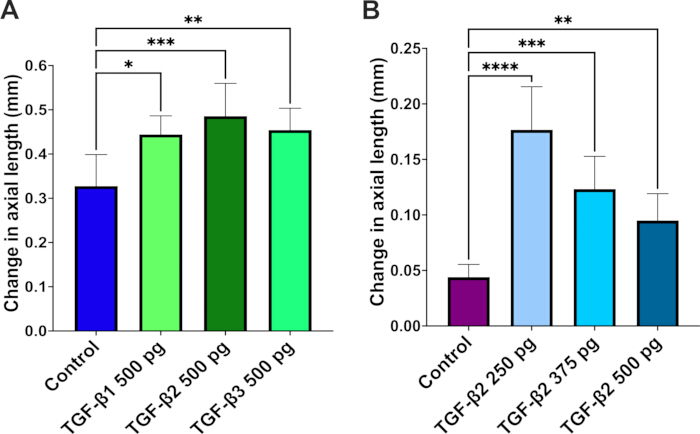
图 2:转化生长因子-β (TGF-β) 亚型及浓度对大鼠和小鼠眼轴长度影响的剂量选择筛选。 (A) 大鼠(初始筛选队列)眼轴长度的变化,计算为基线(第 0 天,首次注射前)与最终终点(第 21 天)之间的差值,在连续三次结膜下注射 TGF-β1、TGF-β2 或 TGF-β3(每次 500 pg/眼,分别于第 0、7 和 14 天注射)后,与载体处理对照组进行比较。(B) 小鼠(剂量筛选队列)眼轴长度的变化,计算为基线(第 0 天)与第 21 天之间的差值,在连续三次结膜下注射三种不同浓度的 TGF-β2(每次 250、375 或 500 pg/眼,分别于第 0、7 和 14 天注射)后,与载体处理对照组进行比较。数据以平均值 ± 标准差表示(N = 每组 5 只动物,代表每组 10 只眼)。统计学显著性通过单因素方差分析及事后多重比较进行评估;*p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001 表示与载体对照组相比。请点击此处查看此图的大尺寸版本。
重复结膜下注射 TGF-β2 可诱导大鼠和小鼠眼轴延长及近视性偏移
为评估重复结膜下注射 TGF-β2(每周注射 3 次)对生物特征的影响,我们监测了大鼠和小鼠模型从基线到第 3 周眼轴长度和屈光不正的纵向变化(图 3)。采用两日拆分方案(第 20 天测量屈光状态,第 21 天进行 B 超扫描)以最大程度减少潜在的麻醉伪影和眼部应激。在此多剂量方案后,两种动物均表现出与实验性近视发展一致的表型偏移。
在大鼠队列中,与载体对照组相比,接受重复结膜下注射500 pg/眼TGF-β2的动物在21天期间眼轴长度增加显著更大(0.466 ± 0.045 mm 对比 0.388 ± 0.032 mm;p < 0.01;图3A)。这种眼轴延长伴随着屈光误差向近视方向的显著偏移(p < 0.05;图3B)。载体对照眼表现出预期的轻微远视漂移(+0.31 ± 0.93 D),而TGF-β2处理眼则转变为近视屈光状态(−1.38 ± 0.91 D)。
与大鼠数据一致,经 250 pg/眼 TGF-β2 处理的小鼠也表现出明显的结构和屈光变化。与载体对照组相比,TGF-β2 处理小鼠的轴向伸长显著增强(0.197 ± 0.012 mm 对比 0.110 ± 0.014 mm;p < 0.0001;图 3C)。此外,这种结构性伸长导致了显著的近视性偏移(p < 0.05;图 3D),有效地将对照组小鼠中观察到的自然远视屈光状态(+2.25 ± 1.77 D)逆转为了近视状态(−1.58 ± 0.63 D)。
为验证双眼反应对称性并确认合并双侧眼测量值不会引入统计偏差,我们分别评估了各组内左眼(OS,n = 5)和右眼(OD,n = 5)的轴向伸长动态(补充图 1)。在大鼠(补充图 1A)和小鼠(补充图 1B)中,无论是在载体对照组还是TGF-β2处理组内,OS与OD眼之间均未观察到统计学显著差异,证实了双眼间反应动态的对称性。此外,TGF-β2处理动物的OS和OD眼均显示出相对于其相应载体对照组一致且显著的轴向伸长(大鼠:p < 0.05;小鼠:p < 0.0001),这支持了在主要生物测量分析中考虑双侧测量值的有效性。
总体而言,这些发现表明,重复的结膜下注射 TGF-β2 能有效驱动啮齿类动物模型后眼轴增长及相应的近视性屈光偏移(图 3 与 补充图 1)。
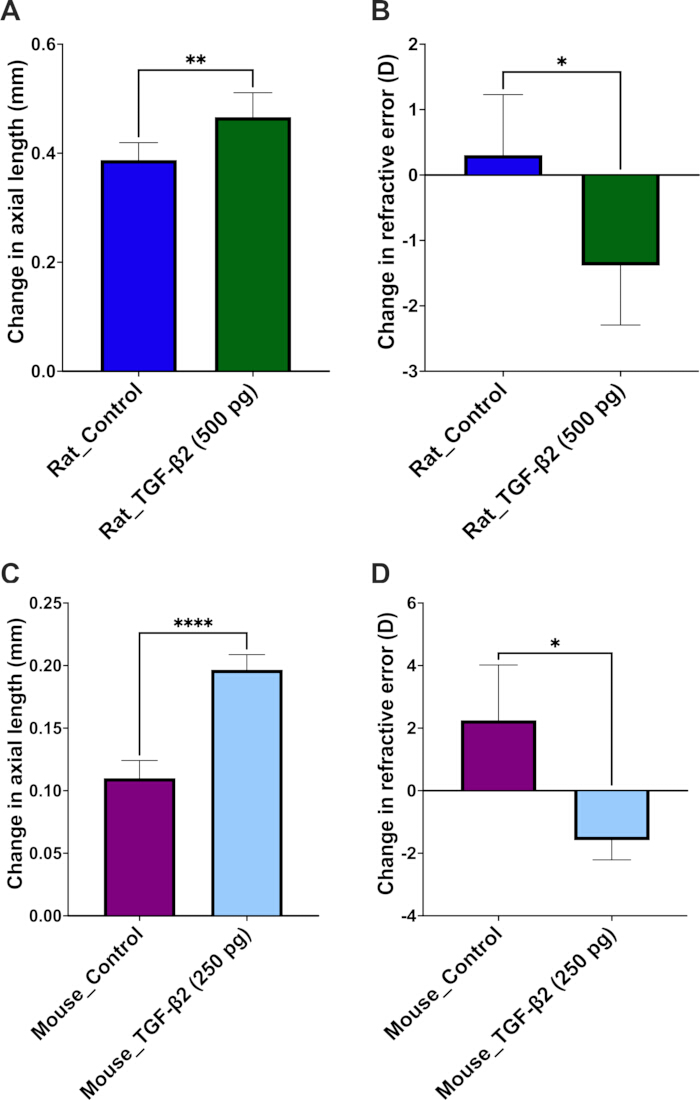
图 3: TGF-β2 对独立大鼠和小鼠队列中眼轴伸长及屈光不正影响的主要验证。 (A) 大鼠眼轴长度变化,计算为接受结膜下注射 TGF-β2(500 pg/眼,分别于第 0、7 和 14 天序贯给药)或载体对照的眼睛在基线水平与第 3 周最终终点之间的差值。(B) 同一批大鼠眼睛的屈光不正变化,显示与载体对照组相比,TGF-β2 处理组出现了显著的近视性偏移。(C) 小鼠眼轴长度变化(独立的主要验证队列),计算为接受结膜下注射 TGF-β2(250 pg/眼,于第 0、7 和 14 天给药)或载体对照的眼睛在基线水平与第 3 周最终终点之间的差值。(D) 同一批小鼠眼睛的屈光不正变化,揭示了在最佳 TGF-β2 诱导下相应的负屈光度偏移。数据以平均值 ± 标准差表示(N = 每组 5 只动物,代表每组 10 只眼睛)。使用非配对双尾 t 检验严格评估统计学显著性;*p < 0.05,**p < 0.01,****p < 0.0001 表示与相应的载体对照组相比。请点击此处查看此图的更大版本。
结膜下注射 TGF-β2 上调实验性近视进展过程中巩膜 MMP2 的表达
为评估视网膜-巩膜轴下游的组织重塑情况,对结膜下注射 TGF-β2 后巩膜横切片中基质金属蛋白酶 2 (MMP2) 的表达进行了评估(图 4)。在大鼠模型中对眼球后部切片的定量免疫荧光分析显示,与载体对照组相比,在第 21 天时,经 TGF-β2 处理的眼睛(500 pg/眼)其巩膜基质内的 MMP2 蛋白水平显著上调(p < 0.0001;图 4A, B)。
一个显著的 MMP2 荧光信号定位于视网膜色素上皮 (RPE) 和脉络膜层下方的整个巩膜基质中,这证实了在实验性近视发展过程中,眼球外壁存在局部 MMP2 相关的细胞外基质 (ECM) 重塑。巩膜中的这些结构变化促使我们对邻近视网膜内的上游分子改变进行进一步研究。
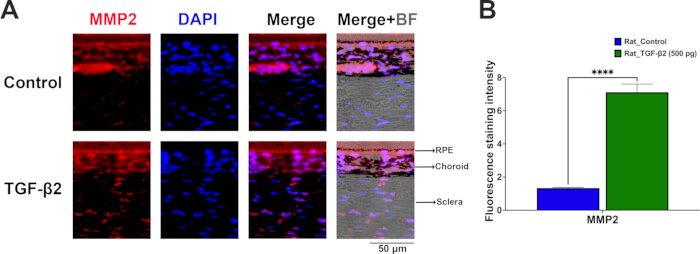
图 4:结膜下注射 TGF-β2 上调大鼠巩膜中 MMP2 的表达。(A) 显示第 21 天时,载体对照组和 TGF-β2 处理组(500 pg/眼)大鼠巩膜 MMP2 表达(红色)的代表性后眼部横截面免疫荧光图像。细胞核用 DAPI 复染(蓝色)。明场叠加图像(Merge+BF)勾勒出视网膜色素上皮、脉络膜和巩膜的解剖边界。比例尺 = 50 µm。(B) 荧光染色强度的定量分析,证实 TGF-β2 处理的大鼠眼巩膜 MMP2 表达显著增加。数据以平均值 ± 标准差表示(每组 N = 3 个独立生物学重复,每只动物 1 只眼)。使用非配对双尾 t 检验评估统计学显著性;****p < 0.0001 对比载体对照组。缩写:RPE,视网膜色素上皮;BF,明场。请点击此处查看此图的大尺寸版本。
TGF-β2 诱导上调大鼠和小鼠视网膜中的 MMP2 及炎症小体相关蛋白
为研究重复结膜下注射诱导的下游分子改变,对第 21 天的 Brown Norway 大鼠和 C57BL/6 小鼠后眼节切片进行了免疫荧光染色(图 5A–D)。所有评估均在严格对齐视神经乳头的矢状视网膜切片上进行,以确保空间方向的一致性。定量分析显示,与载体对照组相比,每周给予 TGF-β2 显著改变了两个物种视网膜各层中的特定蛋白表达谱(图 5E,F)。
在大鼠模型中,给予500 pg/眼的TGF-β2导致视网膜TGF-β2水平显著升高(p < 0.0001;图5A,E)。这种上调伴随着基质金属蛋白酶2(MMP2)的表达增加(p < 0.0001;图5B,E),表明存在活跃的细胞外基质重塑。此外,TGF-β2处理激活了视网膜炎症级联反应,这由炎症小体传感器NLRP3(p < 0.0001;图5C,E)和促炎细胞因子IL-1β(p < 0.0001;图5D,E)的上调所证实。
同样,经 250 pg/眼 TGF-β2 处理的小鼠在这些生物标志物上也表现出持续上升的趋势(图 5F)。视网膜 TGF-β2(p < 0.01;图 5A,F)和 MMP2(p < 0.001;图 5B,F)的表达均显著升高。小鼠视网膜中的炎症小体通路也被激活,与对照组接近无法检测的基线水平相比,NLRP3 表达显著增加(p < 0.01;图 5C,F),且 IL-1β 出现显著上调(p < 0.0001;图 5D,F)。
综上所述,这些发现表明,结膜下注射 TGF-β2 可促进视网膜中 MMP2 介导的基质重塑驱动因子,并在两种啮齿类动物的后部视网膜中激活 NLRP3/IL-1β 炎症小体通路。
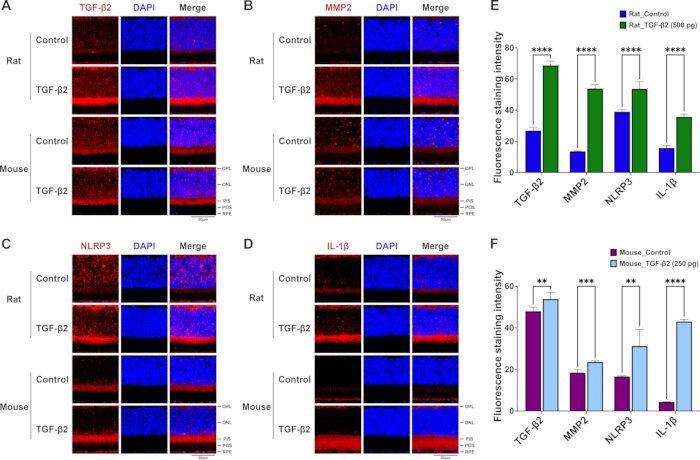
图 5:重复结膜下注射 TGF-β2 上调大鼠和小鼠后部视网膜中 MMP2 及炎症小体相关蛋白的表达。 (A–D) 大鼠(上图)和小鼠(下图)对照组及 TGF-β2 处理组视网膜矢状切片的代表性免疫荧光图像,分别针对 (A) TGF-β2、(B) MMP2、(C) NLRP3 和 (D) IL-1β(红色)进行染色,细胞核用 DAPI(蓝色)复染。比例尺 = 50 µm。代表性视野选择性展示了视网膜外层的改变,突出了从外丛状层 (OPL) 向下至基底视网膜色素上皮 (RPE) 复合体的显著蛋白表达。(E) 对照组和 TGF-β2 处理组(500 pg)大鼠视网膜中 TGF-β2、MMP2、NLRP3 和 IL-1β 荧光染色强度的定量分析。(F) 对照组和 TGF-β2 处理组(250 pg)小鼠视网膜中 TGF-β2、MMP2、NLRP3 和 IL-1β 荧光染色强度的定量分析。数据以平均值 ± 标准差表示(每组 N = 3 个独立生物学重复,每只动物取 1 只眼)。使用非配对双尾 t 检验严格评估统计学显著性;**p < 0.01,***p < 0.001,****p < 0.0001,与相应的载体对照组相比。缩写:OPL,外丛状层;ONL,外核层;PIS,光感受器内节;POS,光感受器外节;RPE,视网膜色素上皮。请点击此处查看此图的更大版本。
补充图1:结膜下注射TGF-β2后的眼间对称性及双侧数据合并评估。(A) 在接受载体对照或双侧结膜下注射TGF-β2(500 pg/眼)的大鼠中,左眼(OS,n = 5)与右眼(OD,n = 5)眼轴长度变化的比较分析。(B) 在载体对照或双侧TGF-β2处理(250 pg/眼)的小鼠中,OS(n = 5)与OD(n = 5)眼的相应眼间比较。统计学检验证实,同一处理组内的OS眼与OD眼之间无显著差异,验证了双侧测量数据合并不会引入眼间偏倚。同时,TGF-β2处理动物的OS眼和OD眼均显示出相对于各自载体对照组的显著眼轴增长。数据以平均值±标准差表示(每组N = 5只动物,代表每组5只OS眼和5只OD眼)。使用双因素重复测量方差分析及随后的Sidak事后检验评估统计学显著性;*p < 0.05,****p < 0.0001,相对于相应的载体对照组。缩写:OS,左眼;OD,右眼。 请点击此处下载此文件。
补充图2:结膜下注射TGF-β2后视网膜结构完整性及电生理功能的安全性评估。(A) 对照组及TGF-β2处理组小鼠(250 pg/眼)和大鼠(500 pg/眼)在第21天的代表性苏木精和伊红(H&E)染色视网膜矢状面切片,显示跨物种视网膜层结构均得以保持(每组N = 3个独立生物学重复)。比例尺 = 20 µm。(B) 第21天从小鼠记录的代表性暗适应视网膜电图(ERG)波形,比较溶媒对照眼(灰色线)与TGF-β2处理眼(红色线)。可比的a波和b波响应动态证实了视网膜光反应性及电生理安全性得以保持(每组N = 3只小鼠,代表每组6只眼)。缩写:GCL,神经节细胞层;INL,内核层;ONL,外核层。 请点击此处下载此文件。
讨论
该研究中的一个显著发现是转化生长因子-β所引发的非线性、倒U形剂量-反应曲线。β在小鼠队列中,最低给药剂量(250 pg/眼)诱导了最显著的轴向伸长。图 2B这种双相现象是许多强效细胞因子信号通路的特征,包括TGF-β信号通路。β 超家族29,30外源性TGF-β浓度过高β2 可能导致受体饱和或触发细胞内负反馈环路。—例如抑制性SMAD家族成员7(Smad7)的上调或受体介导的内吞作用—从而减弱下游生物学反应31,32免疫荧光数据进一步支持了这一药理学窗口;在小鼠中给予 250 pg 剂量(在大鼠中为 500 pg)导致视网膜 TGF-β2 滞留的同时,也引发了强烈的下游炎症级联反应。图 5F这表明,优化后的低剂量阈值位于一个高度敏感的生理窗口内,能够在最大化靶组织疗效的同时,避免配体诱导的脱敏或局部抑制作用。33因此,这些发现强调了在建立可重复的化学诱导近视啮齿动物模型时,进行严格剂量滴定的必要性。
相较于传统的形觉剥夺性近视(FDM)或远视性离焦镜片诱导性近视(LIM)模型—这些设备需要定制硬件,且易发生镜头位移、因梳理行为导致的脱落以及角膜并发症。—结膜下注射方案提供了直接的药理学控制,且设备成本最低。13,34与先前研究一致,眼周给药可调节巩膜和视网膜的 TGF-β 信号通路。β 信号传导35这些数据证明了前部结膜下TGF-β1注射后眼后段的生物学反应。β2 给药图 4 以及 图 5)。这种高效的后部靶向性归因于小型啮齿动物独特的眼部尺寸和流体动力学特性。鉴于啮齿动物眼球的轴长较短(小鼠约3毫米,大鼠约6毫米),结膜下给药可浸润相对较大比例的巩膜外层区域。在高透巩膜渗透性及Tenon囊下间隙解剖连续性的驱动下,注射的制剂可扩散穿过巩膜和脉络膜,向后极部移动。至关重要的是,此途径与后部眼组织的生物学效应相关,同时避免了在小型啮齿动物中进行深部后Tenon囊下或玻璃体内注射所固有的眼球穿孔和视神经损伤等严重风险。该方法避免了头戴式透镜带来的机械性和行为学混杂因素。13,36以及有充分文献记载的与玻璃体内注射相关的视网膜脱离和眼内炎风险37,38此外,将生物特征测量分为两个简短时段进行,相较于传统的单次测量范式有所改进。长时间暴露于麻醉剂常导致眼部功能紊乱。—例如小鼠的麻醉性白内障和大鼠的自发性眼睑闭合—这会损害屈光度和眼轴测量的准确性。39,40通过分离屈光不正(天数 –在第1天和第20天进行眼压测量,在第0天和第21天进行眼轴长度评估,该方案旨在最大限度地减少潜在的累积性眼部应激并保持一致的成像条件,这可能有助于降低实验内的变异性。为进一步消除因系统性交叉污染而产生的潜在混杂变量,—例如影响非靶组织的全身血管吸收或淋巴转运。—以及同侧交感神经反应,本研究采用了严格的受试者间设计。通过双侧给予载体对照或双侧给予活性重组人转化生长因子-β1(rhTGF-β1),β在单个动物体内,该范式可防止眼间污染,同时确保稳健的药理学评估。对配对左右眼进行的独立生物特征分析一致证实了高度的眼间对称性,验证了双侧数据合并未在处理组间引入统计学或生理学偏倚。补充图 1).
该啮齿动物模型有效再现了TGF-β信号通路在肺纤维化发展中的关键作用,为评估潜在治疗策略提供了可靠平台。β2–作者在既往研究中已确立的驱动性炎症与基质重塑轴 在树鼩与 Brown Norway 大鼠中21,41作者先前的研究表明,外源性TGF-β 或 TGF-β2 级加重的眼内炎症—具体通过 NF-κB 细胞与 IL-1β 激活—同时上调MMP2表达、消耗巩膜I型胶原并驱动眼轴延长。42,43相反,通过补体衰变加速因子(CD55)抑制补体和炎症小体活性,可同时抑制局部炎症和近视进展。41,44在典型的形觉剥夺模型以及病理性高度近视患者中,同样可见类似的慢性炎症特征,其标志为 MMP2 活性升高及随之发生的 I 型胶原蛋白流失。42,43,45,46重要的是,转化生长因子-β并非在所有组织中均一地作为孤立或通用的初级诱导因子发挥作用,β (具体而言是TGF-β2 号同工型)可作为情境依赖性信号桥梁。它将早期视网膜/视网膜色素上皮炎症信号—具体通过 NLRP3 炎症小体和补体激活—作用于下游巩膜细胞外基质(ECM)的执行21,41认识到这种时空转变,解决了关于TGF-β在癌症中作用看似矛盾的文献报道。β 表达,因其动态变化在视网膜/视网膜色素上皮层的早期局部炎症放大与巩膜中晚期基质金属蛋白酶介导的基质降解之间转换。47,48具体而言,巩膜细胞外基质降解的结构性执行最终决定了眼球物理性延长的程度。图 4分子生物学研究结果凸显了外层视网膜与视网膜色素上皮层是上游信号传导的主要源头。图 5)。本研究专门采用定量免疫荧光技术,以绘制这些标志物的原位空间分布及层状上调情况;而视网膜磷酸化核因子κB(p-NF-κB)/IL-1β肿瘤坏死因子-α (TNF-α)α)/NLRP3 级联通路在相同 TGF-β作者在先前的研究中已独立确立了两种诱导范式。46,49. 结膜下 TGF-β2 激活 NLRP3/IL-1β–MMP2级联反应在视网膜/视网膜色素上皮层内发生,并沿视网膜-脉络膜-巩膜轴传播,从而驱动下游巩膜MMP2的表达及基质重塑。这些相似性有力地支持了低度炎症及MMP介导的巩膜细胞外基质重塑在眼球加速生长中的核心作用。
尽管本方案具有这些操作优势,仍需考虑其若干局限性。首先,作为一种由外源性细胞因子递送驱动的纯药理学模型,该方法绕过了传统形觉剥夺性近视(FDM)或透镜诱导性近视(LIM)模型中特征性的光学离焦以及视网膜至巩膜的光信号转导通路。16,50因此,虽然该方法非常适用于靶向下游生化级联反应—具体而言,即炎症-MMP2 重塑轴—它是上游视觉处理或光学操作研究模型的补充,而非替代。51其次,虽然结膜下注射避免了全身毒性和玻璃体内注射的风险,但需要重复进行显微注射(每周一次,持续三周)会引入短暂的局部机械扰动和短时麻醉暴露,如果操作不够严谨,可能会微妙地影响眼表稳态。38,52通过结膜下注射途径实现实验性近视的可重复诱导,在很大程度上依赖于操作过程中的精确技术执行。成功的关键技术决定因素在于:将注射针头以浅斜面角度正确插入睑结膜下方,以形成一个局部的、边界清晰的黏膜下泡状隆起(球结膜水肿)。通过即时透照法进行验证,可确保注射液停留在组织平面内,从而避免意外的巩膜穿孔、深部眶内渗漏或微血管撕裂。为防止注射后液体回流或主动渗漏,—一种常见的失效模式,会损害有效的药理学剂量—微针应在递送后原位保持5秒,随后在视觉控制下缓慢、平稳地撤出。若撤针时出现即时反流、水泡高度不足或意外组织出血等情况,应根据预先设定的标准记录并排除相关动物,以避免混杂变异。严格遵守这些严格的技术基准,可确保实现高保真、靶向性的后部药物存留,同时最大程度减少眼表创伤。此外,尽管啮齿动物模型中的绝对屈光状态(例如,小鼠为-1.58 D,大鼠为-1.38 D)相对于其较高的基线屈光度可能显得有限,但与载体对照组相比,其净近视偏移幅度是显著的(小鼠为+3.83 D,大鼠为+1.69 D;两者p值 < 0.05)且与两个物种的结构性眼轴延长及下游巩膜基质金属蛋白酶2上调严格一致。重要的是,安全性与生理耐受性评估证实了这种低剂量结膜下给药方案的非细胞毒性特性。组织学横截面(H&E) 显示小鼠和大鼠的视网膜层结构均保存良好,而第21天的暗适应视网膜电图(ERG)则显示a波和b波反应完整,无隐含时间延迟或振幅抑制。补充图 2),证实了局部TGF-β2 递送可诱导靶向性轴向伸长,且不引起结构性视网膜病变或电生理功能损伤。第三,第 3 周的终点评估捕捉了急性至亚急性炎症反应和基质重塑;需要进行长期研究以确定这些表型变化在治疗后是否持续存在,或在清除后是否表现出恢复动态。41,53最后,虽然对外源性TGF-β的药代动力学及眼组织渗透性进行直接分析β2 超出了本模型验证研究的范围,但稳健且一致的生物测量学变化(眼轴延长和屈光误差变化),以及作者在先前研究中确立的特定视网膜/视网膜色素上皮分子激活,46,49支持在后部眼结构中发挥有效的生物学作用。未来研究可结合进一步的蛋白质表达谱分析(如蛋白质印迹法)、RT-qPCR 或荧光标记的 TGF-β2 追踪将进一步阐明其精确的组织分布与清除动力学。认识到这些局限性将指导研究人员选择该模型进行适当的治疗筛选与机制验证。
通过证明结膜下TGF-β2 激活 NLRP3/IL-1β–在 Brown Norway 大鼠和 C57BL/6 小鼠的外层视网膜及视网膜色素上皮(RPE)中,该方案提供了一个药理学定义的框架,用于验证这些跨啮齿类物种的炎症及基质重塑通路。因此,TGF-β2–诱导模型为标准化诱导眼轴伸长、解析视网膜-巩膜信号级联反应以及筛选靶向TGF的临床前干预措施提供了可靠平台。β2、补体成分、炎症小体或 MMP2。
披露
作者声明本研究无任何披露事项或利益冲突。在稿件撰写过程中,仅使用了人工智能辅助语言工具进行语法编辑和英文句法润色。未使用任何生成式人工智能工具进行数据采集、图像处理、定量分析或图表制作。
致谢
Experiments and data analysis were performed in part through the use of the Medical Research Core Facilities, Office of Research & Development, at China Medical University, Taichung, Taiwan, R.O.C. The authors sincerely thank the National Center for Biomodels (NCB, NIAR, Taiwan) and BioLASCO Taiwan Co., Ltd. for their exceptional technical support in contract breeding and animal supply services. Additionally, the schematic architecture and microsurgical procedures illustrated in Figure 1 were designed and custom-tailored using high-resolution vector assets from Mind the Graph (mindthegraph.com, Premium License) and were professionally compiled and refined utilizing Affinity Designer (Serif Europe Ltd.). Research funding was provided in part by the National Science and Technology Council, Taiwan, R.O.C. (NSTC-112-2314-B-039-029; 115-2320-B-039-056), China Medical University Hospital, Taichung, Taiwan (DMR-114-091; DMR-115-117), and China Medical University, Taichung, Taiwan (CMU114-MF-78; CMU-114-ASIA-10). The funders had no role in the study design, data collection and analysis, the decision to publish, or preparation of the manuscript. The sponsor or funding organization had no role in the design or conduct of this research.
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 自动化红外光折射仪 | StriaTech GmbH (Tübingen, Germany) | ST-PR.01 | 含小鼠/大鼠物种特异性预设程序 |
| 平衡盐溶液(BSS) | Alcon Laboratories, Inc. (Fort Worth, USA) | N/A | 无菌眼内灌注溶液 |
| 牛血清白蛋白(BSA) | Sigma-Aldrich (St. Louis, USA) | A3059 | 冻干粉末,0.1% 第五组分 |
| 布朗挪威(BN)大鼠 | BioLASCO Taiwan Co., Ltd. 和/或国家生物模型中心 | https://www.biolasco.com.tw/product/brown-norway-rats/ | |
| C57BL/6(B6)小鼠 | BioLASCO Taiwan Co., Ltd. 和/或国家生物模型中心 | https://www.ncb.niar.org.tw/p3_animal2_detail.asp?cid=1&nid=3&ppage=0&type=1 | |
| DAPI 溶液(1 mg/mL) | Thermo Scientific (Thermo Fisher Scientific, Waltham, USA) | 62248 | 免疫荧光实验中工作稀释比例为 1:500。 |
| 无水乙醇(≥99.5%) | J.T.Baker (Avantor Performance Materials, Radnor, USA) | N/A | 试剂级,75% 用于漂洗,20%–100% 用于脱水 |
| 光纤照明灯(150W,双蛇形管) | Stoelting Co. (Wood Dale, USA) | N/A | 高强度光源 |
| 细尖显微镊 | Stephens Instruments (Lexington, USA) | S5-1375 | 直型、带锯齿、带导向针 |
| Ginpol 眼用凝胶 | Winston Medical Supply Co., Ltd. (Tainan, Taiwan) | N/A | 含 0.2% 卡波姆,用于角膜保护 |
| 甘油(分子生物学级,≥99.0%) | Sigma-Aldrich (St. Louis, USA) | G5516 | 试剂级,工作基质浓度为 50% |
| 山羊抗兔 IgG(H+L)二抗,Alexa Fluor Plus 555 | Invitrogen (Thermo Fisher Scientific, Waltham, USA) | A32732 | 免疫荧光实验中工作稀释比例为 1:800。 |
| 手持式多物种视网膜电图系统(HMSERG) | OcuScience (Henderson, USA) | 型号 2000(HMsERG-2000),配备 ERGView 软件的全视野闪光视网膜电图系统,适用于啮齿类动物。 | |
| Hartman′s 固定液(Davidson 固定液) | Sigma-Aldrich (St. Louis, USA) | H0290 | 用于眼部结构快速固定的混合固定液 |
| 高频超声探头 | ASUSTeK Computer Inc. (Taipei, Taiwan) | LU710LH | 手持式,16 MHz 频率 |
| 显微注射针头(33-G) | Hamilton Company (Reno, USA) | 7803-05 | 4 型尖端,浅斜面角度 |
| 显微注射器(10 µL) | Hamilton Company (Reno, USA) | 80014 (#1701) | 气密性微升注射器 |
| 美多丽-P 眼药水 | Santen Pharmaceutical Co., Ltd. (Osaka, Japan) | N/A | 含 0.5% 托吡卡胺 / 0.5% 去氧肾上腺素 |
| 正常山羊血清 | Jackson ImmunoResearch Laboratories, Inc. (West Grove, USA) | 005-000-121 | 用作免疫荧光实验中 10% 的封闭溶液。 |
| 光折射仪采集软件 | StriaTech GmbH (Tübingen, Germany) | N/A | 自动均球面等效值处理 |
| 兔抗人 IL1β 单克隆抗体(HL1421) | GeneTex, Inc. (Irvine, USA) | GTX636887 | 免疫荧光实验中工作稀释比例为 1:500。 |
| 兔抗 MMP2 多克隆抗体 | GeneTex, Inc. (Irvine, USA) | GTX104577 | 免疫荧光实验中工作稀释比例为 1:500。 |
| 兔抗 NLRP3 多克隆抗体 | Abcam (Cambridge, UK) | ab214185 | 免疫荧光实验中工作稀释比例为 1:400。 |
| 兔抗 TGF-β2 多克隆抗体 | AbboMax, Inc. (San Jose, USA) | 500-3784 | 免疫荧光实验中工作稀释比例为 1:250。 |
| 重组人 TGF-β1 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-21 | 冻干粉末,高纯度 |
| 重组人 TGF-β2 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-35 | 冻干粉末,高纯度 |
| 重组人 TGF-β3 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-36 | 冻干粉末,高纯度 |
| 无菌 Aquasonic 100 超声耦合凝胶 | Parker Laboratories, Inc. (Fairfield, USA) | N/A | 标准声学耦合介质 |
| 超声成像软件 | ASUSTeK Computer Inc. (Taipei, Taiwan) | N/A | 用于实时 B 超图像显示和测距标尺 |
参考文献
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
重印与许可
本文已发表
视频即将推出