本研究表明,miR-1298 与结直肠癌(CRC)的侵袭和迁移密切相关,可能通过抑制 CRC 进展发挥肿瘤抑制作用,凸显了其作为结直肠癌治疗新靶点的潜力。
研究文章
miR-1298/骨形态发生蛋白7轴在结直肠癌中的作用
* These authors contributed equally
本文内容
摘要
摘要
近年来,结直肠癌(CRC)的发病率呈上升趋势。我们探讨了miR-1298在CRC中的临床意义及其分子机制。共纳入85例CRC患者。所有基因表达水平均通过RT-qPCR进行检测。在CRC细胞中,通过细胞转染技术调控miR-1298和骨形态发生蛋白7(BMP7)的表达水平。利用生物信息学分析预测miR-1298的靶基因,并通过双荧光素酶报告系统进行验证。采用CCK-8实验、Transwell实验和流式细胞术评估CRC细胞的功能。利用Pearson相关性分析评估miR-1298与BMP7在CRC组织中的相关性。结果显示,miR-1298在CRC中显著下调,并与恶性临床病理特征相关。在CRC细胞中,miR-1298抑制细胞增殖、迁移和侵袭,并促进细胞凋亡。BMP7是miR-1298的下游靶基因,且其表达水平与miR-1298呈负相关。过表达BMP7可部分逆转miR-1298对CRC细胞增殖、迁移和侵袭的抑制作用,以及其对细胞凋亡的促进作用。miR-1298与肿瘤侵袭和迁移相关,可能抑制CRC的进展。BMP7可能是miR-1298在CRC中发挥功能的潜在中介分子。
引言
结直肠癌(CRC)在全球范围内造成了重大的健康负担,是全球癌症相关死亡的主要原因之一1。CRC起源于结肠-直肠的上皮细胞,通常经历一个多年发展的多阶段过程,即腺瘤向癌的转变过程2。CRC的影响广泛而复杂。除了死亡风险外,CRC还可能显著影响患者日常生活。治疗通常需要进行大型手术,可能导致永久性结肠造口、肠道功能障碍,或性功能与泌尿功能障碍等并发症3。此外,化疗、靶向治疗以及长期监测带来的经济负担,对患者个人和医疗系统均构成重大压力。因此,深入研究CRC的分子机制仍是公共卫生领域的重要优先方向。
在结直肠癌(CRC)中,特定微小RNA(miRNA)的失调是肿瘤发生过程中的显著特征,并影响多个关键生物学过程4。鉴定这些差异表达的miRNA不仅有助于加深对CRC发病机制的理解,也为开发新的诊断生物标志物和治疗靶点提供了潜在方向。在众多与癌症相关的miRNA中,miR-1298已成为研究的关键靶点之一。现有证据表明,miR-1298在多种癌症中常发挥肿瘤抑制作用。例如,在非小细胞肺癌(NSCLC)中,它通过靶向关键的致癌通路来抑制细胞增殖和侵袭5。类似地,在脑肿瘤中,其表达下调与肿瘤发生相关,而恢复其表达则可抑制肿瘤进展6。鉴于miR-1298在其他癌症中已被证实具有肿瘤抑制功能,其在结直肠癌变过程中的具体作用——特别是其在CRC中的下游靶基因及功能效应——仍尚未得到充分探索。考虑到CRC与其他恶性肿瘤在分子特征上的显著差异,这一知识空白尤为突出。
BMP7 是一种分泌型、功能多样的细胞因子,属于转化生长因子-β(TGF-β)超家族7。在结直肠癌(CRC)中,BMP7 主要发挥促肿瘤作用。BMP7 在 CRC 组织和细胞中通常呈上调状态8。BMP7 可增强癌细胞的侵袭、迁移能力以及类干细胞特性,这可能通过激活促侵袭性信号级联反应并调控肿瘤微环境以促进细胞迁移来实现9。在多种癌症中,已鉴定出特定的 miRNA 可作为 BMP7 的直接转录后抑制因子。例如,miR-137 在非小细胞肺癌(NSCLC)中靶向 BMP7 以抑制细胞增殖10。基于这些发现,我们推测 BMP7 可能参与了 CRC 的发生发展。然而,miR-1298 是否在 CRC 中直接靶向 BMP7 尚未经过实验验证。此外,目前尚无研究通过整合机制验证、功能表型分析和临床相关性分析,对 miR-1298/BMP7 轴在 CRC 中的作用进行全面表征。
因此,我们的研究目的为:(1)探讨miR-1298在结直肠癌(CRC)中的调控模式及其与临床病理特征的关联;(2)在功能上表征miR-1298对CRC细胞增殖、凋亡、侵袭和迁移的影响;(3)通过实验验证BMP7是miR-1298在CRC中的靶基因;(4)评估miR-1298在CRC患者中的诊断和预后价值。通过整合这些互补的研究方法,我们旨在全面阐明miR-1298/BMP7轴在CRC中的作用,并为该疾病发现潜在的生物标志物和治疗靶点。
方案
本研究经武汉脑科医院伦理委员会批准(批准号:20220826)。所有参与者在入组前均签署了书面知情同意书。本研究依据《赫尔辛基宣言》进行。所有数据被纳入的参与者均已同意发表。本研究中使用的试剂、试剂盒、抗体、细胞系、质粒及设备的详细信息,包括其制造商及目录信息,均列于 材料列表.
患者与样本
自2022年5月至2024年8月,我们从85名结直肠癌患者中收集了配对的癌组织与癌旁非癌组织样本。所有参与者均无癌症史、化疗史或放射治疗史。此外,本研究还纳入了71名接受体检的健康受试者。
预后
miR-1298高/低表达组临界值的确定基于结直肠癌组织样本中的中位表达水平。随访期为12个月,通过电话或复查进行随访。终点事件为死亡。在85名患者中,随访期间记录了14例死亡,无删失病例。
细胞培养与细胞转染
正常人类结肠细胞系 FHC 以及人类结直肠癌(CRC)细胞系 SW480 和 HCT-116 均已获得。细胞在 Dulbecco's Modified Eagle Medium (DMEM) 培养基,补充 10% 胎牛血清 (FBS)。使用 Lipofectamine 3000 将 miR-1298 模拟物或抑制剂转染至 SW480 和 HCT-116 细胞中。随后,将 miR-1298 模拟物与 pcDNA3.1-BMP7 (OE-BMP7) 或 pcDNA3.1 空载体 (OE-NC) 共转染至 SW480 和 HCT-116 细胞。具体步骤如下:将细胞置于 37 °C,含 5% CO₂ 直至其达到 70%–细胞汇合度达 80%。以 5 x 10^5 个细胞/孔的密度接种细胞。4 每孔细胞接种于24孔板中并孵育过夜。转染混合物包含250 µOpti-MEM 1.25 升 µ1.5 μL Lipofectamine 3000 µ1 升 P3000、50 纳摩尔微小核糖核酸与 1 µ将质粒制备为 g 量级,孵育 15 分钟后加入细胞。6 小时后更换为完全 DMEM 培养基,并于 48 小时收集样本。
生物信息学分析
miR-1298的靶标通过TargetScan 8.0数据库(https://www.targetscan.org/vert_80/)进行预测。随后,确定了miR-1298与BMP7之间的预测结合位点。
双荧光素酶报告基因检测
野生型与突变型 3′将包含预测的 miR-1298 结合位点的 BMP7 3'-UTR 序列分别克隆至 pmirGLO 双荧光素酶报告载体中,以构建 BMP7 Wt 和 BMP7 Mut 报告质粒。进行荧光素酶实验时,将 SW480 和 HCT-116 细胞与 BMP7 Wt 或 BMP7 Mut 质粒,以及 miR-1298 模拟物、抑制剂或其相应的阴性对照共转染。具体步骤如下:将细胞以 4 x 10^4 个/孔的密度接种于 24 孔板中。4 每孔细胞数量。每孔共转染0.8 µg 报告质粒、50 nM miR-1298 模拟物、抑制剂或相应的阴性对照,以及 Lipofectamine 3000。8 小时后,吸弃培养基,加入 100 μL 裂解液裂解细胞。 µ被动裂解缓冲液 (PLB) 孵育 15 分钟。取 20 µ一份裂解液等分试样被转移至白色检测板中,加入50 µ向反应体系中加入 L 的 LAR II 试剂,并测量萤火虫荧光素酶活性。随后额外加入 50 µL 终止&加入 Glo 试剂以测量海肾荧光素酶活性。最后完成数据的归一化处理。
RT-qPCR
使用 TRIzol 试剂从培养细胞、血清和冷冻结直肠癌组织中提取 RNA。简言之,每 10 厘米培养皿中的细胞直接用 1 mL TRIzol 裂解;组织碎片在冰上用 TRIzol 匀浆。经过氯仿相分离和异丙醇沉淀后,RNA 沉淀用 75% 乙醇洗涤,空气干燥,并溶解于无 RNase 水中。RNA 纯度和浓度使用微量分光光度计测定。260/A280 = 1.8–2.1, A260/A230 > 2.0)。对于 mRNA 分析,使用 gDNA Eraser 去除残留的基因组 DNA,并使用 PrimeScript RT Reagent Kit 以 oligo(dT) 和随机六聚体为引物,将 500 ng RNA 进行逆转录(37 °在 85°C 下处理 15 分钟 °在 5 秒内冷却至 4°C)。对于 miRNA 分析,使用 Mir-X miRNA 第一链合成试剂盒,以 miR-1298-5p 或 U6 特异性的茎环引物对 100 ng RNA 进行反转录(16 °在 30 分钟内,42 °在 85°C 下持续 30 分钟。 °C 持续 5 秒)。每次运行均包含无逆转录和无模板对照。cDNA 经适当稀释后储存于 −80 °直至qPCR检测前,样品均保存于4°C。采用SYBR Green化学法对miR-1298和BMP7的表达水平进行定量分析。分别以U6和GAPDH作为miRNA和mRNA的内参基因进行标准化。相对表达量通过比较2-ΔΔCt法进行计算。−ΔΔCt 方法。引物序列(5′–3′) 引物序列如下:miR-1298-正向:TCGGCAGGTTCATTCGGCTGTC,反向:CTCAACTGGTGTCGTGGA;U6-正向:CTCGCTTCGGCAGCACA,反向:AACGCTTCACGAATTTGCGT;BMP7-正向:CAAGAACCAGGAAGCCCTGC,反向:TTCTTACAGGCCTGCCTCTGG;以及GAPDH-正向:GACATGCCGCCTGGAGAAAC,反向:AGCCCAGGATGCCCTTTAGT。qPCR反应条件如下:95 °在 2°C 下 分钟,95°C 35个循环 °30°C 下 30 分钟 秒,60 °C 30 分钟 s,和72 °C 60 分钟 cDNA 模板经连续稀释(5倍梯度)以构建标准曲线。扩增效率 E 按公式 E = (10-1/slope-1) x 100%。引物的扩增效率计算公式如下:EmiR-1298 = 102.1%, E骨形态发生蛋白7 = 96.3%, E甘油醛-3-磷酸脱氢酶 = 100.3%, EU6 = 99.8%。所有引物均符合90–110%。所有 RT-qPCR 实验均包含三个独立的生物学重复,每个生物学重复包含 3 个技术重复。使用 geNorm 算法评估了 U6 和 GAPDH 的稳定性。两个基因的 M 值均低于推荐的阈值 1.5,证实了它们的适用性。
细胞计数试剂盒-8 (CCK-8) 检测
SW480 与 HCT-116 细胞以 2 × 10⁴ 个细胞/孔的密度接种于 96 孔板中。3 每孔 100 个细胞 µ完全 DMEM 培养基中,孵育 24 小时。转染后 48 小时,将培养板在 37°C 下孵育 1 小时。 °C. 使用酶标仪测定450 nm处的吸光度。每组设置六个复孔,并扣除仅含培养基与CCK-8(不含细胞)的空白孔数值。
流式细胞术
采用 Annexin V-FITC/PI 凋亡检测试剂盒,通过流式细胞术评估细胞凋亡。转染 48 小时后,通过胰蛋白酶消化收集 SW480 和 HCT-116 细胞,用冷 PBS 洗涤两次,并以 1 x 10⁶ 个细胞/毫升的浓度重悬于 1x 结合缓冲液中。6 细胞/毫升。将1 x 10^6个细胞等分。5 将细胞转移至流式细胞术专用管中,使用5 µ5 μL Annexin V-FITC 与 5 µ在室温避光条件下,用 L 的 PI 处理 15 分钟,并用 400 µ在采集前加入1升结合缓冲液。设置未染色、单染色及星形孢菌素处理的阳性对照,用于补偿和设门。数据分析采用FlowJo软件(FlowJo 10.2)完成。
细胞迁移与侵袭
细胞迁移与侵袭能力评估采用24孔Transwell小室(孔径8微米)进行。 µ孔径为微米的聚对苯二甲酸乙二醇酯(PET)膜。对于侵袭实验,上层膜预先包被了50 µ37°C 下的 Matrigel 溶液 °在 4°C 下孵育 2 小时,然后用无血清 DMEM 复水 30 分钟后再接种;迁移实验省略此包被步骤。转染的 SW480 和 HCT-116 细胞在无血清 DMEM 中饥饿处理 12 小时,之后将 2 x 10⁴ 100 个细胞 µ将含有 0.1% BSA 的无血清 DMEM 接种至上室。下室中填充 600 µL DMEM(含10% FBS作为趋化剂)。在37°C条件下孵育24小时(迁移实验)或48小时(侵袭实验)后, °C,使用棉签清除上表面未迁移的细胞。用4%多聚甲醛固定下表面细胞15分钟,0.1%结晶紫染色20分钟,冲洗并风干。使用倒置显微镜在200倍放大倍数下对每张膜随机选取五个视野进行成像,并由两名独立观察者手动计数。
蛋白质印迹法
总细胞蛋白通过将细胞在补充了蛋白酶抑制剂混合物的 RIPA 裂解缓冲液中匀浆来提取。蛋白质浓度使用 BCA 蛋白检测试剂盒测定。等量的蛋白质裂解物(50 µg) 使用 10% SDS-PAGE 进行分离,随后转移至 PVDF 膜上。用 2% BSA 封闭非特异性结合位点后,将膜与针对 BMP7 (1:1,000) 和 GAPDH (1:2,000) 的一抗在 37°C 下孵育 90 分钟。 °C. 用 PBST 洗涤三次后,将膜与辣根过氧化物酶(HRP)标记的二抗共同孵育。使用 ECL 化学发光试剂对蛋白条带进行显影。
统计分析
数据使用 SPSS 27.0 进行分析。所有数值均以平均值 ± 标准差(SD),除非另有说明。采用 Shapiro-Wilk 检验来检查是否符合正态分布。两组间的组间差异通过未配对双尾 Student'采用配对Student t检验。结直肠癌肿瘤组织与癌旁非癌组织中miR-1298表达水平的比较使用配对Student t检验进行。's t检验。在进行参数检验前,采用Levene检验评估方差齐性。对于多组比较,参数数据通过单因素方差分析(ANOVA)进行分析,并采用Tukey'采用s HSD检验进行事后成对比较。利用Pearson相关分析评估结直肠癌组织中miR-1298与BMP7之间的相关性。's 相关性分析。 p < 0.05 被视为具有统计学显著性。
结果
在结直肠癌中,miR-1298 显著降低
在结直肠癌(CRC)组织中,miR-1298 的水平低于相邻的非癌组织(图 1A)。对淋巴结转移的分析显示,有淋巴结转移的患者其 miR-1298 水平低于无淋巴结转移的患者(图 1B)。在肿瘤大小 > 5 cm 的结直肠癌患者中,miR-1298 水平显著低于肿瘤大小 ≤ 5 cm 的患者(p = 0.017;图 1C)。随着肿瘤分期的进展,miR-1298 水平逐渐降低,在 1 期与 3 期之间(p = 0.047)以及 1 期与 4 期之间(p = 0.009)差异具有统计学意义(图 1D)。在结直肠癌患者的血清中,miR-1298 同样显著降低(图 1E),ROC 曲线分析显示其 AUC 为 0.889,敏感性为 78.82%,特异性为 83.10%(图 1F)。
根据miR-1298的中位表达水平,将结直肠癌(CRC)患者分为低表达组和高表达组。在结直肠癌患者中,miR-1298与TNM分期密切相关(p < 0.001)、肿瘤大小(p = 0.003),淋巴结转移(p = 0.003)以及肿瘤分化程度(p = 0.035)。然而,miR-1298 与年龄无关(p = 0.832)或性别(p = 0.165) (表1)。Kaplan-Meier 分析显示,miR-1298 表达水平低的结直肠癌患者总体生存期短于 miR-1298 表达水平高的患者(log-rank p = 0.039; 图1GCox 回归分析表明,miR-1298 表达水平降低可能是结直肠癌(CRC)患者的一个潜在预后指标 (p = 0.035, 表 2).
miR-1298 抑制结直肠癌细胞增殖并促进细胞凋亡
在 SW480 细胞中,转染 miR-1298 模拟物或抑制剂可有效改变 miR-1298 的表达水平,抑制剂阴性对照组与 miR-1298 抑制剂组之间差异具有显著性(p = 0.005;图 2A)。过表达 miR-1298 可降低细胞活力并促进细胞凋亡,而抑制 miR-1298 则提高细胞活力并减少细胞凋亡;抑制剂阴性对照组与 miR-1298 抑制剂组在细胞凋亡水平上差异显著(p = 0.008;图 2B、C)。在 HCT-116 细胞中,转染同样显著改变了 miR-1298 的表达水平(p = 0.002;图 2D),且在细胞活力(p = 0.007;图 2E)和细胞凋亡(p = 0.005;图 2F)方面,抑制剂阴性对照组与 miR-1298 抑制剂组之间的差异亦具有显著性。
miR-1298 抑制结直肠癌细胞的迁移和侵袭
过表达 miR-1298 降低了 SW480 和 HCT-116 细胞的迁移和侵袭数量,而抑制 miR-1298 则增加了细胞的迁移和侵袭能力(图 3A–D)。在 SW480 细胞中,miR-1298 模拟物组的侵袭细胞数量显著低于模拟物阴性对照组(p = 0.004;图 3B)。
BMP7 是 miR-1298 在结直肠癌中的靶基因
TargetScan 预测显示,BMP7 可能是 miR-1298 的靶基因(图 4A)。在 SW480 和 HCT-116 细胞中进行的双荧光素酶报告基因检测表明,miR-1298 的过表达或抑制可改变 BMP7 野生型报告基因的荧光素酶活性,但对 BMP7 突变型报告基因无影响(图 4B、C)。在 HCT-116 细胞中,与模拟物阴性对照组相比,miR-1298 模拟物组的 BMP7 野生型报告基因荧光素酶活性显著降低(p = 0.002;图 4C)。在结直肠癌组织中,BMP7 表达水平显著升高(图 4D)。此外,BMP7 与 miR-1298 的表达呈负相关(图 4E)。在 SW480 细胞和 HCT-116 细胞中,miR-1298 的过表达在 RNA 和蛋白水平均抑制了 BMP7 的表达,而抑制 miR-1298 则上调了 BMP7 的表达(图 4F、G)。
miR-1298 可能通过调控 BMP7 在结直肠癌中发挥抑癌作用
在 SW480 细胞中,BMP7 表达的有效调控得到证实(图 5A)。BMP7 过表达部分逆转了 miR-1298 过表达所引起的细胞活力下降和凋亡增加,而 BMP7 沉默则进一步降低了细胞活力并增加了凋亡(图 5B、C)。在 HCT-116 细胞中,BMP7 表达的有效调控也得到确认(图 5D),并对细胞活力和凋亡产生相应影响(图 5E、F)。在 SW480 细胞中,miR-1298 模拟物 + si-BMP7 组的 BMP7 表达和细胞活力均显著低于 miR-1298 模拟物 + si-NC 组(p = 0.002 和 p = 0.005,分别;图 5A、B)。miR-1298 模拟物 + OE-BMP7 组与 miR-1298 模拟物 + OE-NC 组之间的凋亡水平差异显著(p = 0.001;图 5C)。在 HCT-116 细胞中,miR-1298 模拟物 + si-BMP7 组的细胞活力显著低于 miR-1298 模拟物 + si-NC 组(p = 0.002;图 5E)。高表达的 BMP7 部分逆转了 miR-1298 对结直肠癌细胞迁移和侵袭的抑制作用,而 BMP7 沉默则增强了这些抑制效应(图 6A–D)。在 SW480 细胞中,与 si-NC 组相比,BMP7 沉默显著减少了迁移和侵袭细胞的数量(p = 0.003 和 p = 0.020,分别;图 6A、B)。在 HCT-116 细胞中,与 OE-NC 组相比,BMP7 过表达显著改变了迁移细胞的数量(p = 0.030;图 6C),而 BMP7 沉默则显著减少了侵袭细胞的数量(p = 0.007;图 6D)。
数据可用性:
本研究发现所支持的数据已作为补充文件提供。
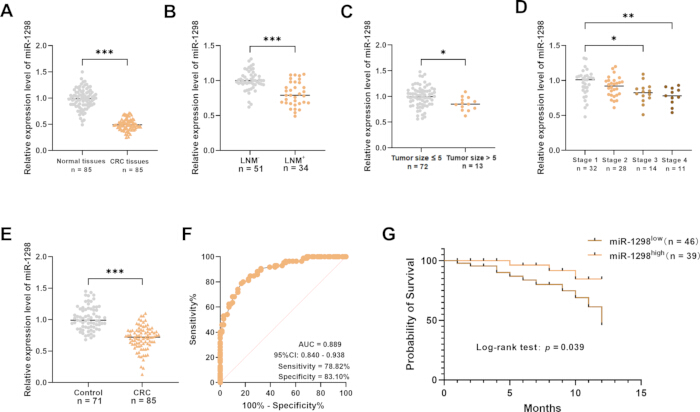
图1:结直肠癌组织中miR-1298的表达情况。(A)miR-1298在结直肠癌组织及相邻非癌组织中的相对表达水平。(B)伴有(LNM+)和不伴有(LNM−)淋巴结转移的结直肠癌患者组织中miR-1298的相对表达水平。(C)根据肿瘤大小分组的结直肠癌组织中miR-1298的相对表达水平。(D)根据肿瘤分期分组的结直肠癌组织中miR-1298的相对表达水平。(E)结直肠癌患者与健康对照者血清中miR-1298的相对表达水平。(F)血清miR-1298用于区分结直肠癌患者与健康对照者的受试者工作特征(ROC)曲线。(G)根据miR-1298低表达和高表达分组的结直肠癌患者的Kaplan–Meier总生存曲线。*p < 0.05;**p < 0.01;***p < 0.001。请点击此处查看该图的放大版本。
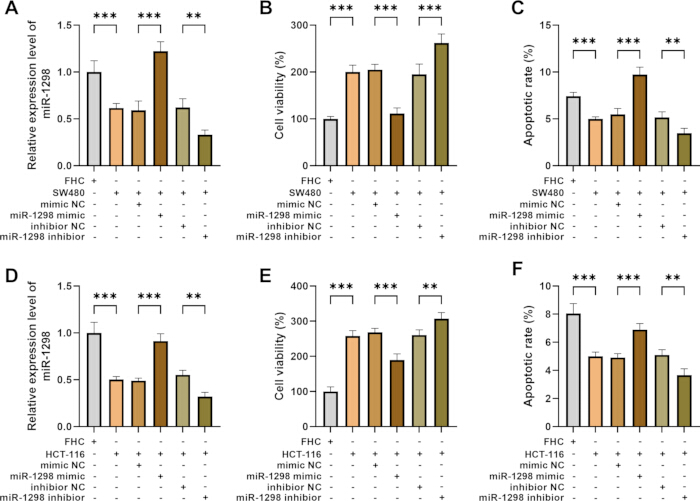
图2:miR-1298 对结直肠癌细胞增殖和凋亡的影响。(A)转染 miR-1298 模拟物、模拟物阴性对照(mimic NC)、miR-1298 抑制剂或抑制剂阴性对照(inhibitor NC)后,FHC 和 SW480 细胞中 miR-1298 的相对表达水平。(B)miR-1298 过表达或抑制后 SW480 细胞的活力。(C)miR-1298 过表达或抑制后 SW480 细胞的凋亡情况。(D)转染 miR-1298 模拟物、模拟物阴性对照、miR-1298 抑制剂或抑制剂阴性对照后,FHC 和 HCT-116 细胞中 miR-1298 的相对表达水平。(E)miR-1298 过表达或抑制后 HCT-116 细胞的活力。(F)miR-1298 过表达或抑制后 HCT-116 细胞的凋亡情况。数据以均值 ± 标准差(SD)表示,误差线代表标准差。**p < 0.01;***p < 0.001。请点击此处查看该图的放大版本。
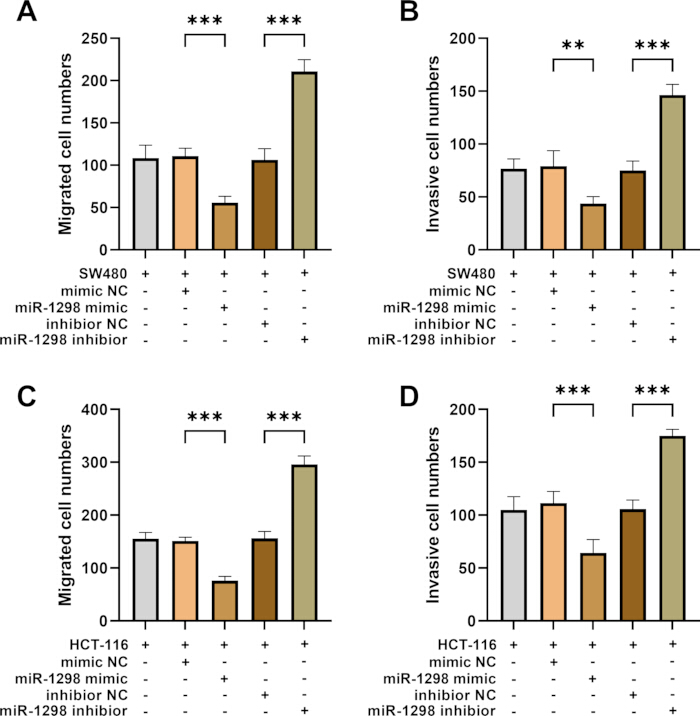
图3: miR-1298 对细胞迁移和侵袭的影响 结直肠癌 细胞 (A) 转染miR-1298模拟物、模拟物阴性对照、miR-1298抑制剂或抑制剂阴性对照后SW480细胞的迁移细胞数量。B) 转染 miR-1298 模拟物、模拟物阴性对照、miR-1298 抑制剂或抑制剂阴性对照后 SW480 细胞的侵袭细胞数量。 (C) 转染 miR-1298 模拟物、模拟物阴性对照、miR-1298 抑制剂或抑制剂阴性对照后 HCT-116 细胞的迁移细胞数量。D) 转染miR-1298模拟物、模拟物阴性对照(mimic NC)、miR-1298抑制剂或抑制剂阴性对照(inhibitor NC)后HCT-116细胞的侵袭细胞数。数据以均值表示 ± SD。误差线表示 SD。p < 0.01; ***p < 0.001. 请点击此处以查看此图的放大版本。
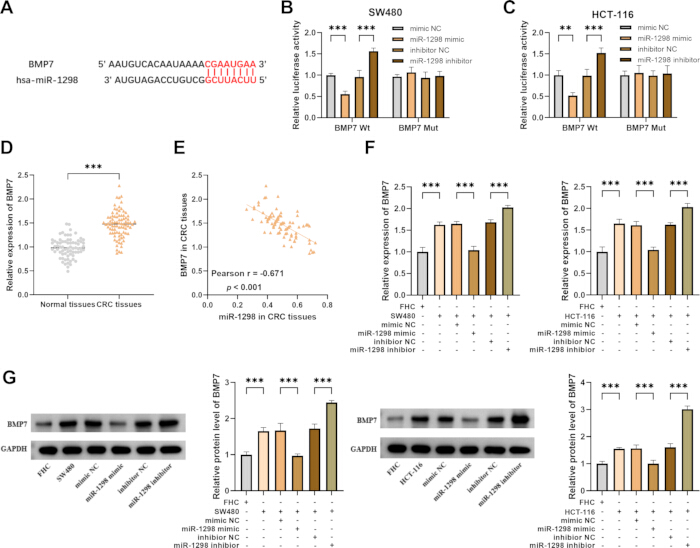
图4: miR-1298 与 BMP7 之间的靶向关系。 (A)miR-1298 与 BMP7 3′ 非翻译区(UTR)之间的预测结合位点。(B)在 SW480 细胞中过表达或抑制 miR-1298 后,BMP7 野生型(Wt)和突变型(Mut)报告基因的相对荧光素酶活性。(C)在 HCT-116 细胞中过表达或抑制 miR-1298 后,BMP7 野生型(Wt)和突变型(Mut)报告基因的相对荧光素酶活性。(D)BMP7 在结直肠癌(CRC)组织及相邻非癌组织中的相对表达水平。(E)miR-1298 与 BMP7 在结直肠癌(CRC)组织中表达水平的相关性。(F)转染 miR-1298 模拟物(mimic)、模拟物阴性对照(mimic NC)、miR-1298 抑制剂(inhibitor)或抑制剂阴性对照(inhibitor NC)后,SW480 和 HCT-116 细胞中 BMP7 的相对表达水平。(G)转染 miR-1298 模拟物、模拟物阴性对照、miR-1298 抑制剂或抑制剂阴性对照后,SW480 和 HCT-116 细胞中 BMP7 蛋白的相对水平。**p < 0.01;***p < 0.001。请点击此处查看该图的放大版本。
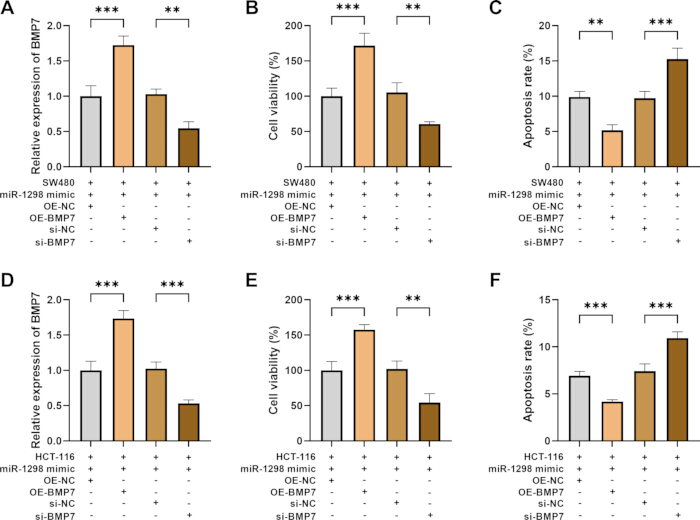
图5:miR-1298 与 BMP7 在结直肠癌细胞增殖和凋亡中的共调控作用。 SW480 和 HCT-116 细胞共转染 miR-1298 模拟物与 OE-NC、OE-BMP7、si-NC 或 si-BMP7。(A) SW480 细胞中 BMP7 的相对表达水平。(B) SW480 细胞的存活能力。(C) SW480 细胞的凋亡情况。(D) HCT-116 细胞中 BMP7 的相对表达水平。(E) HCT-116 细胞的存活能力。(F) HCT-116 细胞的凋亡情况。数据以均值 ± 标准差表示。误差线代表标准差。**p < 0.01;***p < 0.001。缩写:OE-NC = 过表达阴性对照;OE-BMP7 = BMP7 过表达;si-NC = 小干扰 RNA 阴性对照;si-BMP7 = 靶向 BMP7 的小干扰 RNA。 请点击此处查看该图的放大版本。
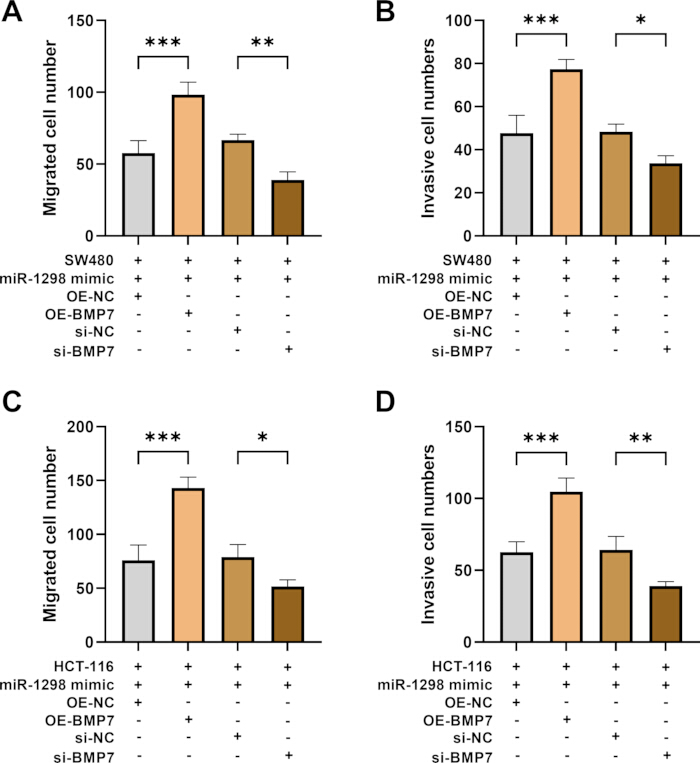
图6:miR-1298 与 BMP7 对结直肠癌细胞迁移和侵袭的共调控作用。 SW480 和 HCT-116 细胞共转染 miR-1298 模拟物与 OE-NC、OE-BMP7、si-NC 或 si-BMP7。(A) SW480 细胞的迁移细胞数量。(B) SW480 细胞的侵袭细胞数量。(C) HCT-116 细胞的迁移细胞数量。(D) HCT-116 细胞的侵袭细胞数量。数据以均值 ± 标准差表示。误差线代表标准差。*p < 0.05;**p < 0.01;***p < 0.001。缩写:OE-NC = 过表达阴性对照;OE-BMP7 = BMP7 过表达;si-NC = 小干扰 RNA 阴性对照;si-BMP7 = 靶向 BMP7 的小干扰 RNA。请点击此处查看该图的放大版本。
| 变量 | 总计 | miR-1298 | p 值 | |
| (n = 85) | 低表达 (n = 46) | 高表达 (n = 39) | ||
| 年龄(岁) | ||||
| ≤50 | 49 | 27 | 22 | 0.832 |
| >50 | 36 | 19 | 17 | |
| 性别(男/女) | ||||
| 男性 | 44 | 27 | 17 | 0.165 |
| 女性 | 41 | 19 | 22 | |
| TNM 分期 | ||||
| 1–2 期 | 60 | 41 | 19 | <0.001*** |
| 3–4 期 | 25 | 5 | 20 | |
| 肿瘤大小(cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.003** |
| >5 | 13 | 12 | 1 | |
| 淋巴结转移 | ||||
| 有 | 34 | 25 | 9 | 0.003** |
| 无 | 51 | 21 | 30 | |
| 肿瘤分化程度 | ||||
| 低分化 | 53 | 24 | 29 | 0.035* |
| 高分化 | 32 | 22 | 10 | |
表1:结直肠癌患者临床病理特征与miR-1298表达水平的关联性。 患者根据miR-1298表达水平分为低表达组(n = 46)和高表达组(n = 39),并评估miR-1298表达水平与临床病理特征之间的关联。*p < 0.05;**p < 0.01;***p < 0.001。缩写:CRC = 结直肠癌;TNM = 肿瘤-淋巴结-转移。
| 变量 | 风险比 | 95% 置信区间 | p 值 | |
| 下限 | 上限 | |||
| 年龄 | 0.776 | 0.186 | 3.242 | 0.728 |
| 性别 | 0.614 | 0.152 | 2.474 | 0.492 |
| TNM 分期 | 4.62 | 1.181 | 18.078 | 0.028* |
| 肿瘤大小 | 8.078 | 1.833 | 35.587 | 0.006** |
| 淋巴结转移 | 6.584 | 1.134 | 38.245 | 0.036* |
| 肿瘤分化程度 | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
表2:结直肠癌患者预后因素的Cox回归分析。采用Cox回归分析评估结直肠癌患者的临床病理特征及miR-1298表达水平与预后的关系。*p < 0.05;**p< 0.01。缩写:CI = 置信区间;CRC = 结直肠癌;TNM = 肿瘤-淋巴结-转移。
补充文件。 请点击此处下载该文件。
讨论
结直肠癌由于其高发病率和高死亡率,给个人和社会带来了沉重负担。尽管已有结肠镜等筛查手段,仍有大量结直肠癌患者在晚期才被确诊,凸显出对更有效、非侵入性生物标志物以实现早期检测的迫切需求11。此外,转移性结直肠癌的预后仍然较差,药物耐药和疾病复发相对常见12。因此,深入理解结直肠癌发生、进展和转移的分子机制,对于开发新的靶向治疗策略并克服治疗耐药至关重要。结直肠癌具有高度异质性,意味着外观相似的肿瘤可能在生物学行为上存在显著差异13。因此,持续开展研究对于提高早期检出率、推进个体化治疗,最终改善结直肠癌患者的生存率具有重要意义。
miRNA 的异常与结直肠癌(CRC)的发生、分期及预后密切相关14。由于 miRNA 在体液中具有较高的稳定性,因此在非侵入性诊断和预后生物标志物方面具有重要潜力15。本研究发现,miR-1298 在结直肠癌组织中表达下调,其表达水平与 TNM 分期及淋巴结转移相关,提示其在结直肠癌进展中可能发挥一定作用。值得注意的是,本研究首次在临床结直肠癌队列中全面表征了 miR-1298 的表达情况,并揭示了其与关键临床病理参数(包括 TNM 分期、淋巴结转移和肿瘤分化程度)之间的关联。
核心细胞过程(包括增殖、凋亡、迁移和侵袭)的失调是癌症发生和死亡的根本驱动因素16。不受控制的增殖使肿瘤细胞能够进行初始的克隆扩增,同时,对凋亡的逃逸使这些细胞能够在内部损伤或外界应激条件下存活并不断积累。这种联合作用导致原发性肿瘤的生长17,18。因此,针对这些特征的分子驱动因素的靶向治疗是开发结直肠癌(CRC)有效疗法的关键。miRNA通过调控癌细胞的恶性表型参与肿瘤的发生发展19。miR-1298就是其中一种miRNA。例如,miR-1298-5p的下调可促进胃癌的进展20。而miR-1298的上调则抑制乳腺癌细胞的增殖,诱导细胞凋亡,并引起细胞周期阻滞21。此外,miR-1298-5p在膀胱癌中也发挥肿瘤抑制作用22。本研究结果表明,miR-1298的过表达可抑制结直肠癌细胞的增殖、迁移和侵袭,并促进凋亡,提示其可能抑制CRC的恶性表型。重要的是,本研究通过系统评估CRC细胞中的主要恶性表型,拓展了以往的研究报道,为miR-1298在该特定癌症类型中的功能提供了更为全面的表征。
就其促肿瘤作用而言,BMP7可通过调控PI3K/AKT等信号通路促进癌细胞增殖23。通过调节Bcl-2等抗凋亡因子的水平,BMP7赋予癌细胞抵抗凋亡的能力24。此外,BMP7主要通过诱导上皮-间质转化(EMT)来增强癌细胞的迁移和侵袭能力25。BMP7在促进癌症发展中的作用与我们的发现一致,即BMP7在结直肠癌(CRC)组织中表达升高。生物信息学分析提示,BMP7可能是miR-1298的靶基因,并鉴定出miR-1298与BMP7之间存在一个预测的结合位点。进一步的挽救实验表明,BMP7可能在CRC中作为miR-1298的功能性中介分子发挥作用。考虑到BMP7在癌症中相关的信号通路,我们进一步假设miR-1298/BMP7轴调控下游信号通路(SMAD、PI3K/AKT、EMT),从而控制CRC细胞的行为。关键的是,我们通过荧光素酶报告基因实验验证了这一预测,证实miR-1298可直接结合BMP7的3′非翻译区(UTR)。此外,挽救实验显示,恢复BMP7表达可部分逆转miR-1298过表达所产生的抑瘤效应,提供了功能证据表明BMP7是miR-1298在CRC中的下游中介分子。据我们所知,本研究是首次在结直肠癌中确立miR-1298/BMP7调控轴的研究。
除了提供机制方面的深入见解外,本研究还给出了支持miR-1298临床应用价值的转化证据。ROC曲线分析表明,miR-1298在结直肠癌(CRC)中可能具有诊断价值。生存分析进一步显示,miR-1298低表达与较差的预后相关,而Cox回归分析指出,miR-1298水平降低可能是CRC的预后因素,这支持了miR-1298作为CRC诊断和预后生物标志物的潜在价值。
本研究存在一些局限性。在临床样本方面,由于本研究主要采用单中心数据,未来仍需开展多中心验证研究,以更充分地证实miR-1298在结直肠癌(CRC)中的抑瘤作用。本研究侧重于体外细胞实验,未能完全反映体内肿瘤微环境的复杂性。缺乏异种移植瘤模型是本研究的局限之一。未来的研究应包括体内验证实验,以进一步阐明miR-1298/BMP7轴在肿瘤微环境中的作用。此外,后续实验还可通过生物信息学预测以及体外和体内实验,进一步验证miR-1298/BMP7轴的上游和下游通路。随访时间相对较短,限制了长期生存估计的成熟度。尽管已进行Kaplan–Meier和Cox回归分析,但结果可能受到随访时间较短的影响。目前正在进行更长期的随访,以验证miR-1298在结直肠癌中的预后价值。此外,本研究尚未实验验证miR-1298/BMP7轴通过调控SMAD、PI3K/AKT和EMT等下游信号通路对结直肠癌细胞行为的影响,这些通路仍需进一步探索。本研究未开展反向挽救实验(miR-1298抑制剂 + BMP7 siRNA),此类实验可提供补充证据,以判断BMP7敲低是否能够逆转miR-1298抑制所导致的促瘤效应。缺乏此类挽救实验削弱了本研究的机制性结论。未来需要结合反向挽救实验设计和体内验证的研究,以全面确立miR-1298/BMP7轴在结直肠癌中的功能。
综上所述,miR-1298 可能与结直肠癌(CRC)的进展相关。在功能上,miR-1298 可能抑制结直肠癌细胞的增殖、侵袭和迁移。BMP7 可能是 miR-1298 在结直肠癌中发挥功能作用的潜在中介分子。
披露
作者没有相关财务或非财务利益需要披露。
致谢
作者声明在撰写本文过程中未获得任何资金、资助或其他支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1% 结晶紫溶液 | Sigma-Aldrich | C0775 | |
| 10% SDS-PAGE 试剂盒 | Epizyme | PG112 | |
| 4% 多聚甲醛 | Sigma-Aldrich | P6148 | |
| 6 孔细胞培养板 | Corning | 3516 | |
| 96 孔细胞培养板 | Corning | 3599 | |
| Annexin V-FITC/PI 凋亡检测试剂盒 | 多个供应商(例如 Elabscience、BD Biosciences) | E-CK-A211(Elabscience)或 556547(BD) | |
| 抗 BMP7 抗体 | Abcam | ab176707 | |
| 抗 GAPDH 抗体 | Abcam | ab181602 | |
| BCA 蛋白定量试剂盒 | Sangon | C503021 | |
| BMP7 突变型 3‘-UTR 报告质粒 | 定制构建(克隆至 pmirGLO 载体) | Custom | |
| BMP7 引物 | Sangon Biotech (上海,中国) | 定制合成 | |
| BMP7 野生型 3‘-UTR 报告质粒 | 定制构建(克隆至 pmirGLO 载体) | Custom | |
| 细胞计数试剂盒-8(CCK-8) | Dojindo(日本) | CK04 | |
| 细胞培养瓶(T-25) | Corning | 430639 | |
| DMEM(Dulbecco‘s 改良 Eagle 培养基) | Invitrogen(Thermo Fisher Scientific) | 11995065 | |
| 胎牛血清(FBS) | Invitrogen(Thermo Fisher Scientific) | 16140071 | |
| FHC 细胞系(正常人结肠上皮细胞) | ATCC | CRL-1831 | |
| 流式细胞仪 | BD Biosciences | FACSCanto™ II | |
| FlowJo V10 软件 | FlowJo, LLC | — | |
| GAPDH 引物(mRNA 内参) | Sangon Biotech (上海,中国) | 定制合成 | |
| HCT-116 细胞系(人结直肠癌细胞) | ATCC | CCL-247 | |
| HRP 标记二抗 | Beyotime | A0208 | |
| 倒置显微镜 | Nikon(或同等产品) | Eclipse Ts2 | |
| Lipofectamin 3000 转染试剂 | Invitrogen(Thermo Fisher Scientific) | L3000015 | |
| 荧光素酶检测系统 | Promega | E1500 | |
| Matrigel 基底膜基质 | Corning | 354230 | |
| 酶标仪 | BioTek(Agilent) | Synergy H1 | |
| miR-1298 抑制剂 | GenePharma(上海,中国) | 定制(按订单合成) | |
| miR-1298 模拟物 | GenePharma(上海,中国) | 定制(按订单合成) | |
| miR-1298 引物 | Sangon Biotech (上海,中国) | 定制合成 | |
| Mir-X miRNA 第一链合成试剂盒 | Takara Bio | 638313 | |
| OE-NC | GenePharma(上海,中国) | 定制(按订单合成) | |
| Opti-MEM 培养基 | Gibco | 31985070 | |
| 被动裂解缓冲液 | Promega | E194A | |
| pcDNA3.1 载体(空载体对照) | Invitrogen(Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7(OE-BMP7 过表达质粒) | GenePharma(上海,中国) | 定制(按订单合成) | |
| pmirGLO 双荧光素酶 miRNA 靶标表达载体 | Promega | E1330 | |
| PMSF | Beyotime | ST506 | |
| PrimeScript RT 试剂盒(完美实时) | Takara(日本) | RR037A | |
| 含 gDNA 消除剂的 PrimeScript RT 试剂盒 | Takara Bio | RR047A | |
| 蛋白酶抑制剂混合物 | Thermo | 78429 | |
| PVDF 膜 | Absin | abs935 | |
| RIPA 裂解液 | Abcam | ab156034 | |
| 无 RNase 微量离心管(1.5 mL) | Axygen(Corning) | MCT-150-C | |
| 无 RNase 移液器吸头 | Axygen(Corning) | T-300(10 µL)、T-200-Y(200 µL)、T-1000-B(1000 µL) | |
| si-BMP7 | GenePharma(上海,中国) | 定制(按订单合成) | |
| si-NC | GenePharma(上海,中国) | 定制(按订单合成) | |
| 星形孢菌素(凋亡阳性对照) | Sigma-Aldrich | S5921 | |
| SW480 细胞系(人结直肠腺癌细胞) | ATCC | CCL-228 | |
| SYBR Green qPCR 主混合液 | Takara(日本) | RR036A | |
| Transwell 小室(24 孔,8.0 µm 孔径) | Corning(Costar) | 3422 | |
| TRIzol 试剂 | Invitrogen(Thermo Fisher Scientific) | 15596026 | |
| U6 引物(miRNA 内参) | Sangon Biotech (上海,中国) | 定制合成 |
参考文献
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.