本方案通过可视化紫花苜蓿(Medicago sativa L.)茎横切面上木质素和果胶细胞壁组分的沉积情况,旨在鉴定茎中可作为靶向改良目标的特定组织,以培育具有理想茎秆消化特性的新型紫花苜蓿品系。
本文内容
摘要
摘要
随着植物的生长,细胞壁组分的积累会限制反刍动物对饲草营养的利用。特别是植物组织中木质素的沉积会阻碍细胞壁中的碳水化合物——纤维素和半纤维素的降解,从而降低饲草所能提供的能量。然而,细胞壁中易于消化的果胶组分则较易被降解。有关不同茎部细胞类型中木质素和果胶沉积的信息,可能为阐明不同苜蓿品系间茎消化率差异的机制提供线索。体外将茎横切片在瘤胃液中孵育,可模拟茎组织在瘤胃中经历的降解过程。结合组织学染色与显微镜观察,该方法能够实现对组织降解随时间变化过程的可视化,并显示木质素和果胶在茎中的分布位置。Wiesner染色法可与木质素中的愈创基(G)醛基单元反应,将其染成洋红色。类似地,钌红可与果胶中的羧基发生相互作用,将茎中的果胶染成从粉红色至橙色和棕色的不同色调。本实验方案描述了苜蓿茎横切片经瘤胃微生物处理后的消化过程,随后通过染色以观察细胞壁中木质素和果胶的分布模式。该方法可用于鉴定茎组织中木质素和果胶的存在或缺失区域,从而便于不同苜蓿品系之间的比较分析。
引言
细胞壁包裹着每一个植物细胞。纤维素、半纤维素、木质素和果胶是细胞壁的组成成分,它们构成了反刍动物饮食中必需的植物纤维。果胶是高度可消化(可溶性)的多糖1,而木质素是一种难以消化的聚合物,会限制纤维的降解2。因此,木质素会降低植物的可消化性,最终减少反刍动物从饲草中获取的能量。然而,木质素在植物重要的生理功能中起着支撑作用,例如通过增强管胞结构来促进植物体内的水分运输3。先前的研究表明,茎秆纤维中木质素含量的降低或果胶含量的增加,可能提高茎秆的可消化性和饲草的营养价值4。因此,本实验方案重点关注这两种细胞壁成分。仅测定茎秆细胞壁中木质素和果胶的总浓度,不足以解释茎秆纤维可消化性的潜在机制5。体外与瘤胃液共孵育以及组织化学染色方法,可通过可视化不同茎秆纤维可消化性植物之间细胞壁成分的差异,提供细胞水平上的信息4,6。在本方案中,紫花苜蓿(Medicago sativa L.),一种常见的多年生饲用豆科植物,作为模式物种,用于展示茎组织中木质素和果胶的分布模式——茎组织中的木质素含量高于叶片,而果胶含量则较低。
体外 用瘤胃液孵育可模拟反刍动物胃内牧草的消化过程,从而观察牧草解剖结构对消化率的影响。通过在试管中创建类似于瘤胃内的环境,可于不同时间点取出贴附在玻片上的茎部横切片,以评估其经瘤胃液处理后组织降解的程度。6该方法为苜蓿茎解剖结构的可视化提供了一种相对简单、快速且经济的途径7 并检测含有不同细胞壁组分的细胞类型在茎秆消化过程中的变化。
茎横切面的组织学染色可实现细胞壁组分的可视化。间苯三酚与盐酸(HCl)结合形成威斯纳染液,可特异性显示含有愈创木基木质素单元的茎组织8 通过与G C6C3醛(松柏醛)单体反应9木质素由多种单体亚基组成;然而,在本文中,“木质素”一词仅指G单元单体,因为该单体是与维斯纳染色剂发生反应的单体10 因此可通过本方案进行可视化观察。某些组织(如木质部导管)始终为木质化结构6否则,苜蓿茎组织中的木质素沉积始于次生(形成层)生长启动时,并与茎节间伸长停止同时发生。6钌红可与含有羧基的果胶类物质结合,这些羧基有时会发生酯化,并共享一些侧链11果胶中的羧基存在于胞间层和初生细胞壁中,可与钌红发生相互作用。11果胶参与细胞伸长,因此在初生生长期间的细胞中存在。在整个文稿中,“果胶”一词泛指可能存在的多种果胶成分。将组织学染色与瘤胃 体外 孵育有助于观察茎中细胞壁组分的定位,并凸显不同细胞类型在瘤胃消化过程中的变化。最终,该方案可用于鉴定含有木质素和果胶的茎细胞,并表征不同苜蓿品系及孵育时间下的变化模式。
方案
本研究遵循动物实验对象的机构指南(IACUC 2301-40689B)。
1. 样品管标记
- 孵育、储存和染色用样品管的准备与标记
- 为每个样品预先标记五组独立的、带螺旋盖的一次性50 mL锥形离心管。在每支管上标注样品编号及孵育时间,用于下述不同用途。
- 标记预孵育暂存管,并加入35 mL超纯水。
- 标记用于第3和第4节的孵育管。按孵育时间(0、4、8、24、48或96 h)将各管分开放置于不同的试管架中。
注意:请使用工业级永久性记号笔标记,以防标签在水浴过程中脱落。 - 标记孵育后储存管,并加入35 mL体积比为50:50的100%甘油与超纯水混合液。用于在染色前将消化后的横切面连同载玻片一起保存于其中。
- 标记染色前处理管,并加入35 mL体积比为50:50的200-proof乙醇与超纯水混合液。用于在染色前从横切面中去除甘油。
- 标记水化管,并加入35 mL超纯水。
2. 茎横切及载玻片制片
- 使用镊子从样本茎段中每次选取一段,并切除该段的中心部分。
注意:每个生物重复样本使用四根茎段作为技术重复。从每个样本的所有可能茎段中随机选取四根茎段。在所有孵育实验中,使用一组额外的标准茎段作为对照。 - 裁剪两块挤塑聚苯乙烯硬质泡沫绝缘材料,每块长约 2.5 cm,厚约 0.6 cm。沿每块材料的长度方向切出一个小楔形,使茎的节间能够紧密地夹在两块泡沫之间。
- 将茎段“三明治”固定在滑动式切片机的载物台上,该切片机可切出厚度为 100 μm 的切片。使用细头画笔,在茎段和切片刀上滴加一滴水,以利于获得平整的切片。
- 将茎段横切面切成 100 μm 厚度。用画笔将每一片横切面转移至预先标记的、盛有超纯水的培养皿中临时保存,并从培养皿中移除所有泡沫材料。
注意:若泡沫发生撕裂,应更换切片刀,因为撕裂可能表明刀片已变钝。 - 为每个孵育时间点的每个样本手工标记两张标准尺寸(25 mm × 75 mm)的玻璃载玻片(每种染色 × 6 个时间点 = 每个生物重复样本共 12 张载玻片)。在每张标签上注明样本编号、孵育时间及所用染色剂。
- 裁取一段长 2.5 cm、宽 2 mm 的双面胶带。将胶带短边置于载玻片底部上方 0.5 cm 处,粘性面朝下,并戴手套用力按压胶带的离型纸面,确保牢固粘附。
注意:此步骤应在平坦表面上进行,以避免玻璃载玻片破裂。 - 使用解剖显微镜将所有横切面调整为相同方向。撕去双面胶带的离型纸,然后用湿润的细头画笔保持切片方向不变,将其转移至已标记的载玻片上的胶带上。保持横切面略微湿润。
- 将离型纸覆盖在横切面上,用画笔轻轻滚压,使横切面牢固粘附于双面胶带上。移除离型纸后,将贴有四个横切面的载玻片放入步骤 1.1.2 中所述的预先标记的保存管中,确保超纯水完全覆盖已固定的横切面。
- 若需使用钌红和维斯纳染色剂进行染色,将两张载玻片背对背放入每个保存管中,双面胶带朝外。
注意:在所有载玻片完成贴附并放入盛有超纯水的管子后,如需可于室温下存放过夜。
3. 准备工作 体外 茎横切面的孵育
- 使用为孵育准备的一次性带螺旋盖的50 mL离心管(见1.1.3)。将每个孵育时间点的所有样品管分组,放置于同一个塑料架上。
- 使用四位小数分析天平,称取0.2 g经1 mm研磨的玉米秸秆标准物质至称量纸上,小心转移至除0 h管以外的各孵育管中,0 h管作为未孵育对照。盖紧管盖,置于一旁备用。
注意:玉米秸秆标准物质在孵育过程中为瘤胃微生物提供能量,因为茎段横截面的生物量不足以维持微生物活性。 - 在开始孵育前,向循环水浴锅中加入足量水,并将温度平衡至39 °C。调节水位高度,使其淹没50 mL管上的35 mL刻度线;必要时使用曝气装置,以保持水浴中水流和温度的均匀性。
- 用于接种液的麦克杜格尔缓冲液(McDougall’s buffer)的配制
- 在开始孵育前不超过2天内配制麦克杜格尔缓冲液。
注意:将麦克杜格尔缓冲液与瘤胃液按4:1比例混合,以制备接种液。根据样品数量调整缓冲液体积,并确保接种液总量足以每管提供30 mL。 - 量取1,600 mL超纯水。将其中1 L转移至一个3 L平底锥形瓶中,保留600 mL用于试剂的转移和冲洗。
- 在锥形瓶中放入一个磁力搅拌子,并将锥形瓶置于搅拌器上。
- 在锥形瓶口放置一个塑料漏斗。依次加入15.7 g碳酸氢钠(NaHCO₃)、5.9 g无水磷酸氢二钠(Na₂HPO₄)、0.91 g氯化钾(KCl)、0.75 g氯化钠(NaCl)、0.19 g七水合硫酸镁(MgSO₄·7H₂O)和0.06 g二水合氯化钙(CaCl₂),每次加入一种试剂,并在加入下一种试剂前确保前一种已完全溶解。每次加入后,使用部分保留的600 mL超纯水冲洗漏斗。
- 加入二水合氯化钙后,插入CO₂扩散器以促进溶解并进行鼓泡处理。待溶液变澄清后,继续鼓泡10–15分钟。
- 用塞子紧密封口,并用封口胶带固定塞子,因为加热缓冲液时可能导致容器内压力升高。
- 将溶液在20 °C下储存,最多可保存2天。若次日使用,可在使用前一天将其放入39 °C水浴中,或直接在使用当天放入39 °C水浴中。
- 在开始孵育前不超过2天内配制麦克杜格尔缓冲液。
4. 体外 茎横切面的孵育
- 孵育当天,在通风橱中取一个100 mL烧杯,加入47 mL水和4 mL 1 N NaOH,再加入0.625 g半胱氨酸盐酸盐。另取一个100 mL烧杯,加入0.625 g硫化钠和47 mL水,将两种溶液分别保存,直至接种液配制完成。
- 用热水填满一个保温瓶,以建立温暖环境,用于将瘤胃微生物从奶牛运输到实验室。准备一个五加仑的桶,用于从保温瓶中转移热水。
- 前往牛舍,从牛舍管理人员指定的瘘管牛采集瘤胃液。
注意:为了尽量减少实验误差,应在每天大致相同的时间、从同一头奶牛采集瘤胃液。请提前与牛舍管理人员协调,告知采集瘤胃液的具体时间安排。 - 确定实验牛,并穿戴适当的个人防护装备,包括实验服、护目镜、鞋套和齐肩长手套。
注意:步骤 4.4–4.8 中的操作仅限经适用的 IACUC 协议授权的人员执行。 - 将保温瓶中的温水倒入五加仑桶中。准备两层50号纱布(粗棉布)用于过滤瘤胃样品。
- 从瘘管奶牛采集瘤胃液
- 小心打开套管,将塞子放入盛有温水的五加仑桶中,以避免塞子被污染。戴上手套后,从瘤胃中取出足够的内容物,以便获取瘤胃的固液界面物质。
- 到达固液界面后,收集数捧样品,通过两层规格为50号、每层约45 cm见方的纱布,挤压至预热的螺旋盖保温瓶中。将经纱布挤出的瘤胃液收集后,弃去残留的固体物质。
- 重复步骤4.6.2,直至每个包含60根接种管的组别所对应的保温瓶中含有1 L瘤胃液,根据待孵育样品的数量酌情调整体积。
注意:瘤胃瘘管牛每周可抽取的瘤胃液量有特定限制。请与牛舍管理员沟通,确保抽取的瘤胃液量不超过该牛的允许上限。
- 收集到足够的瘤胃液后,立即 tightly 关闭保温瓶以维持其温度。更换瘘管,并用五加仑水桶中的温水进行清洁。
- 离开畜舍时,将污染的鞋套、手套和纱布丢弃至指定的废弃物容器中。尽快返回实验室,以维持瘤胃液的温度和厌氧条件。
- 返回实验室后,在通风橱中将两种还原剂溶液(见4.1)混合,配制还原溶液。
- 将一个容量不小于2 L并放入大号搅拌子的玻璃烧杯置于加热搅拌板上,设定温度至 <30 °C,并放置一个 CO₂ 液体上方放置扩散器。加入1,600 mL McDougall缓冲液,并缓慢搅拌,避免产生CO₂ 扩散器与液体接触。
注意:如需在低温下操作,可使用聚丙烯烧杯。使用 CO₂ 以置换 O₂ 并有助于维持无氧条件。 - 用两层50号纱布衬垫一个大漏斗,并将其置于2 L量筒上。过滤400 mL瘤胃液,并将其加入McDougall缓冲液(见3.4.7)中,以制备接种液。
- 向接种液中加入80 mL还原溶液(见4.9),缓慢混匀。保持CO₂ 防止扩散器与液体接触。
- 在通风橱内,取下孵育管的管盖,并按孵育时间将孵育管分别放入不同的试管架中。打开预孵育保存管的管盖,以准备转移载玻片(见1.1.2)。
- 每次随机选取一个预孵育保存管,用镊子将载玻片转移至相应的孵育管中(参见1.1.3)。将装有载玻片的孵育管放入小型样品架中,并将预孵育保存管置于一旁。
注意:执行步骤 4.14–4.15 时需两人配合。应尽量避免瘤胃液-缓冲液混合物冷却。 - 用带有钝头粗孔针头的60 mL注射器吸取30 mL接种液。沿培养管管壁缓慢将溶液注入,用CO₂排尽管内空气₂ 约20秒后,盖上管盖,并将离心管放回架中。
- 将装有接种试管的架子放入 39 °C 水浴。每天至少轻轻摇动试管一次,并每天调换试管架的位置,以尽量减少受热不均。
注意:试管中气泡的形成表明存在活跃的发酵。 - 每次孵育结束后,从水浴中取出相应的支架。一次打开一个管子,取出每张载玻片,并用超纯水轻轻冲洗,去除固体物质和残留的接种液。
- 将清洗后的载玻片放入孵育后储存管中,管内含有步骤1.1.4中所述的甘油-水混合物。
5. 木质素的横截面染色
- 如果载玻片保存在50:50的甘油-水混合液中,请将贴有横切面组织的两张载玻片转移至预先准备的含有乙醇-超纯水溶液的染色前清洗管中(见1.1.5)。将试管置于冰箱中过夜,以在染色前去除甘油。
- 在25 mL锥形瓶中加入0.3 g间苯三酚(PG),溶于10 mL无水乙醇中,配制3%的间苯三酚(PG)溶液;用铝箔包裹锥形瓶以保护光敏试剂免受光照。密封瓶口,并在瓶上标注溶液名称、配制日期和配制人姓名,于20 °C保存。
- 从冷藏的试管中取出载玻片,暂时转移至步骤1.1.6所述的水化管中,管内含有100%超纯水。
注意:操作过程中应保持横切面组织处于水化状态,以尽量减少氧化,避免组织损伤并影响后续成像。 - 在通风橱中使用移液器,将50 μL的3%乙醇PG溶液(见5.2)与25 μL盐酸(HCl)在50 mL烧杯中混合,配制威斯纳染液。
注意:根据载玻片数量按比例调整试剂用量,保持PG与HCl的体积比为2:1。
警告:盐酸具有腐蚀性,可腐蚀金属,引起严重皮肤灼伤和眼睛损伤,并可能引发呼吸道刺激。应在通风橱中操作,避免吸入蒸气或气溶胶;操作时需佩戴适当的防护手套、防护服、眼部及面部防护装备;操作后应彻底清洗暴露的皮肤。 - 从试管中取出一张载玻片,用低绒纸巾轻轻吸去双面胶带周围玻璃表面的液体,防止染液从胶带上流失。将载玻片置于小型塑料托盘上,用移液器向横切面组织上滴加数滴威斯纳染液。
- 设定12分钟计时器,并用铝箔覆盖载玻片以避光。染色过程中定期检查横切面组织,必要时重新添加染液,防止干燥。
注意:应防止横切面组织干燥,因氧化可能损伤组织并影响后续成像。 - 12分钟后,用低绒纸巾轻轻吸去多余的威斯纳染液。在封片前对组织进行清洗,以减少显微镜物镜接触腐蚀性HCl蒸气的风险。
- 在每个横切面组织上滴加1–2滴50%甘油-超纯水溶液,并加盖24 mm × 30 mm盖玻片(No. 1.5厚度)。立即进行显微观察与成像。
注意:应在6–8小时内完成图像采集,因威斯纳染色具有时间敏感性,随时间推移染色区域可能变黄并发生扩散。
6. 果胶的横截面染色
- 按照步骤 5.1 的操作,在染色前从储存的载玻片上去除甘油-超纯水混合液。
- 在 125 mL 锥形瓶中加入 0.02 g 钌红,并溶于 100 mL 超纯水中,配制 0.02% 的钌红溶液;用铝箔包裹锥形瓶以保护光敏试剂免受光照。塞紧瓶塞,并在瓶身标注溶液名称、配制日期及配制人姓名,于 20 °C 保存。
- 从冷藏的乙醇-超纯水试管中取出载玻片,将正确标记并带有贴附组织切片的载玻片转移至含有 100% 超纯水的试管中(见 1.1.6)临时存放。
注意:遵循步骤 5.3 中所述的水合注意事项。 - 用镊子取出一张载玻片,用低绒纸巾轻轻吸去胶带周围的水分,防止染液流至玻片表面。将载玻片放置于小型塑料托盘上。
- 滴加数滴钌红溶液(见 6.2)至横切面上,确保完全均匀覆盖。用铝箔包裹载玻片,避光孵育 10 分钟,随后用超纯水轻轻冲洗 2 分钟以去除多余染液。
- 吸去载玻片上多余的水分,然后在每个横切面上滴加 1–2 滴 50% 甘油-超纯水溶液。用 24 mm × 30 mm 盖玻片(No. 1.5 厚度)封片,立即进行显微观察与成像。
注意:为获得最佳结果,应在同一天内完成显微分析。
7. 明场成像
- 使用显微镜在10×、20×和40×放大倍数下,通过明场照明观察横切面。图像采集参数和设置详见表1。
结果
使用离心管模拟瘤胃条件可实现相对快速且低成本的实验 体外 消化 Medicago sativa 茎的横切面。使用滑动式切片机, 100 μm-厚的横切面 M. sativa 茎段被制备(图1A)。将茎的横切面用双面胶带粘附在玻璃载片上(图1B)并浸入瘤胃液接种溶液中,孵育时间从4小时到96小时不等(图1C)。对于 体外 孵育,使用带盖的一次性50 mL离心管作为孵育容器,并加入0.2 g 1 mm研磨的玉米秸秆底物,以维持整个孵育过程中瘤胃微生物的活性。将离心管置于恒温水浴中孵育,温度维持在 39 °C (图1D)。通过观察接种液中形成气体气泡,可直观确认瘤胃微生物的活跃发酵。本方案所需的材料在常规湿化学实验室中均易获得。双面胶带虽不能防止组织在接触瘤胃液过程中发生降解,但可固定消化后残留的茎段部分,便于后续染色及显微观察。
未经处理的茎横切面 体外 孵育(0 h)可实现对不同茎组织中初始细胞壁组分的可视化。经威斯纳染色的横切面显示了呈现木质素相关染色的组织图 2A–E),而用钌红染色的横切面则突出显示了富含果胶相关染色的组织(图3A–E)。在维氏染色切片中,成熟的初生韧皮部纤维呈现洋红色染色(图2B–E)。木质部导管和髓射线间的木质部也呈现洋红色染色(图2B–D)。可见红宝石红染色出现在表皮、厚角组织、叶绿组织和次生韧皮部(图3B–E)和髓(pith)图3B–D)。一些束间木质部和初生韧皮部纤维也用钌红染色图3B–E)。通过拼接在10倍放大下获取的5 × 5图像网格来显示整个茎的横截面(图 2A 和 图3A)。对茎横切面的一个区域还以10×倍率采集了额外图像(图2B 和 图3B), 20× (图 2C 和 图3C),以及上方的40倍放大倍数(图 2D 和 图3D)以及下方(图2E 和 图3E维管形成层
Wiesner染色组织 M. sativa 茎的横切面在所有样本中均清晰可见 体外 0 h 至 96 h 的孵育(图 4A–F)。在0 h时,所有细胞均具有清晰的边界(图 4A). 之后 8小时后,薄壁且未木质化(即未染色)细胞壁的细胞(如厚角组织)边缘模糊,出现组织降解迹象,部分细胞(如次生韧皮部细胞)消失。24小时后,随着周围组织的降解,木质部导管的螺旋状三维结构变得更加清晰。图 4D)。24小时后,未染色的细胞逐渐降解并消失(图 4D–F)。随着这些组织降解,解剖结构支撑的丧失导致未染色的表皮向侧方塌陷,在24、48和96小时呈现出一条细而透明的细胞带状结构。图 4D–F).
体外 孵育 M. sativa 茎秆横切面经钌红染色后,可实现对暴露于瘤胃液0–96小时后茎秆组织中与果胶相关的染色情况进行可视化观察图5A–F)。在0至4小时,所有细胞周围清晰的边缘表明细胞保持完整(图 5A,B)随着孵育时间延长至8小时,皮层中具有薄的、未木质化细胞壁的组织(包括厚角组织、叶绿组织和次生韧皮部)逐渐失去结构完整性,导致细胞边界模糊图5C)。在24、48和96小时时,大部分周围的皮层组织已消失,而表皮、束间木质部、髓部及维管组织的部分区域仍可见(图 5D–F)。周围解剖结构的丧失伴随着表皮区域的侧向塌陷。至96小时时,残留的钌红染色组织明显少于早期孵育时间点。图5F总体而言,随着孵育过程的进行,茎组织逐渐丧失,同时被钌红染色呈阳性的细胞数量减少。非木质化且与果胶相关的薄壁细胞发生降解并最终消失,这是预料之中的现象,因为果胶会随着时间推移而迅速降解。
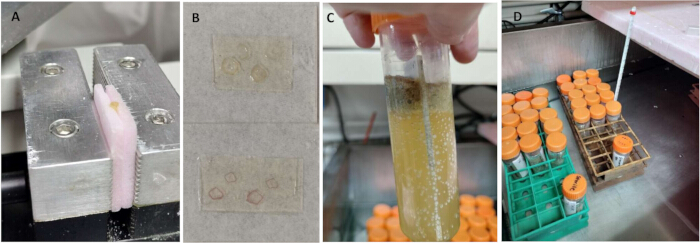
图1: 体外 苜蓿茎横切面的孵育 (A将苜蓿茎段夹在两块挤塑聚苯乙烯硬质泡沫绝缘材料之间,并固定于滑动式切片机载物台上进行横切。B四个横截面,每个 100 μm 用双面胶带将较厚的样品固定在玻璃载片上 体外 孵育和组织学染色。C将两张载玻片背对背放置,双面胶带朝外,放入含有30 mL瘤胃液-缓冲接种液和0.2 g 1-mm研磨玉米秸秆的50 mL试管中。用CO₂吹扫试管后加盖,进行孵育。孵育期间,试管侧壁出现的气泡表明瘤胃微生物正在进行活跃的发酵。D) 含50 mL离心管的试管架保持在 39 °C 孵育过程中使用水浴。水位覆盖接种液但低于管口,防止水进入试管。 请点击此处以查看此图的放大版本。
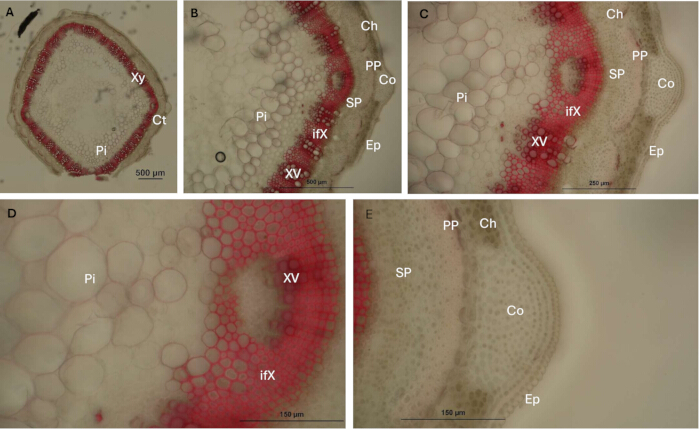
图 2:紫丁香酚染色显示紫花苜蓿茎组织中木质化细胞壁成分的分布。(A–E)未经消化处理的紫花苜蓿茎横切面(孵育时间 = 0 小时)作为初始参照,用于识别呈现紫丁香酚染色的茎组织。木质部导管(XV)、束间木质部(ifX)和成熟的初生韧皮部纤维(PP)染成洋红色。放大倍数与比例尺:(A)在 10× 放大倍数下拍摄的 5 × 5 拼接图像网格,比例尺 = 500 μm;(B)10×,比例尺 = 500 μm;(C)20×,比例尺 = 250 μm;(D, E)40×,比例尺 = 150 μm。缩写:Xy = 木质部;Ct = 皮层;Pi = 髓部;Ep = 表皮;Co = 厚角组织;Ch = 叶绿组织;SP = 次生韧皮部;XV = 木质部导管;ifX = 束间木质部;PP = 成熟的初生韧皮部纤维。请点击此处查看该图的高清版本。
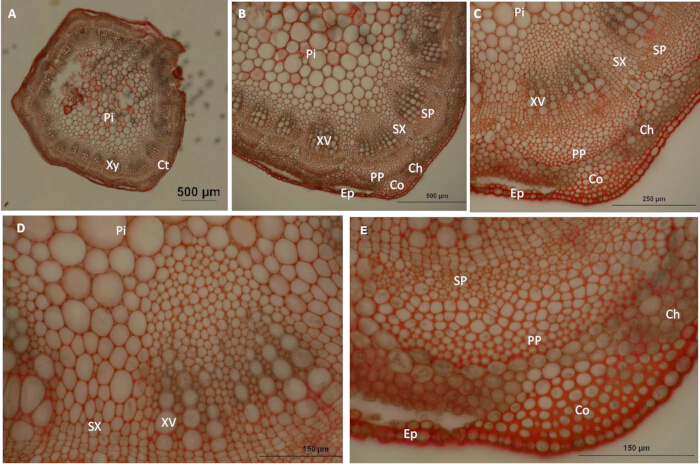
图3:紫苜蓿茎组织的钌红染色显示细胞壁中果胶多糖的分布情况。(A–E)未经消化处理的紫苜蓿茎横截面(孵育时间 = 0 小时)作为初始参照,用于识别呈现钌红染色的茎组织。表皮(Ep)、厚角组织(Co)、绿色组织(Ch)、次生韧皮部(SP)和髓部(Pi)均呈现红色染色。次生木质部(SX)和成熟初生韧皮部(PP)也出现染色,而木质部导管(XV)则相对无染色。放大倍数与比例尺:(A)在10倍放大下获取的5 × 5拼接图像,比例尺 = 500 μm;(B)10倍,比例尺 = 500 μm;(C)20倍,比例尺 = 250 μm;(D、E)40倍,比例尺 = 150 μm。缩写:Xy = 木质部;Ct = 皮层;Pi = 髓部;Ep = 表皮;Co = 厚角组织;Ch = 绿色组织;SP = 次生韧皮部;XV = 木质部导管;SX = 次生木质部;PP = 成熟初生韧皮部。 请点击此处查看该图的放大版本。
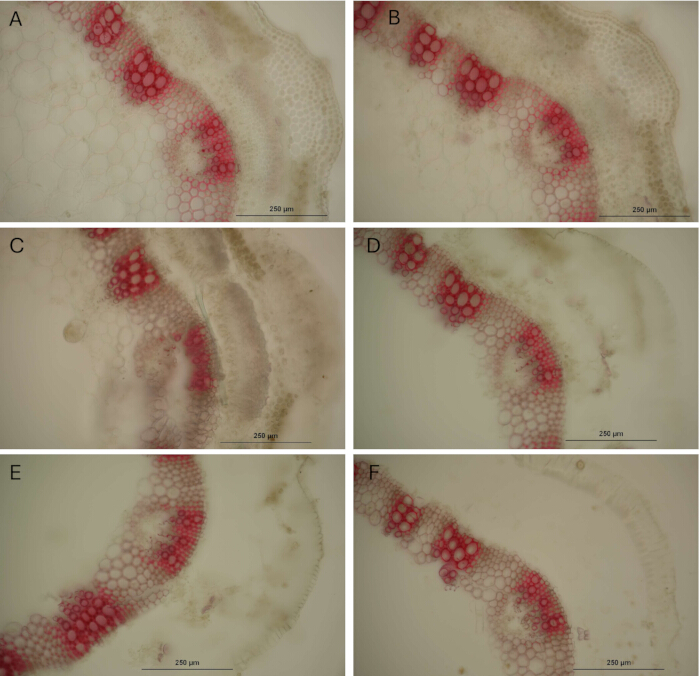
图4:苜蓿茎组织在处理后的变化 体外 孵育和维斯纳染色。 来自相同节间的苜蓿茎横切面经过处理 体外 与瘤胃液孵育A0 小时,(B)4 小时,(C)8 小时,(D24 小时,(E)48 小时,以及(F) 96 小时。木质部导管(XV)、束间木质部(ifX)和成熟的初生韧皮部纤维(PP)在整个孵育期间均保留了威斯纳染色。在未成熟茎组织中,束间木质部(ifX)呈现微弱染色。随着孵育时间的延长,周围组织逐渐丧失结构完整性,使得残留的染色维管结构愈发明显。比例尺 = 250 μm. 请点击此处以查看此图的放大版本。
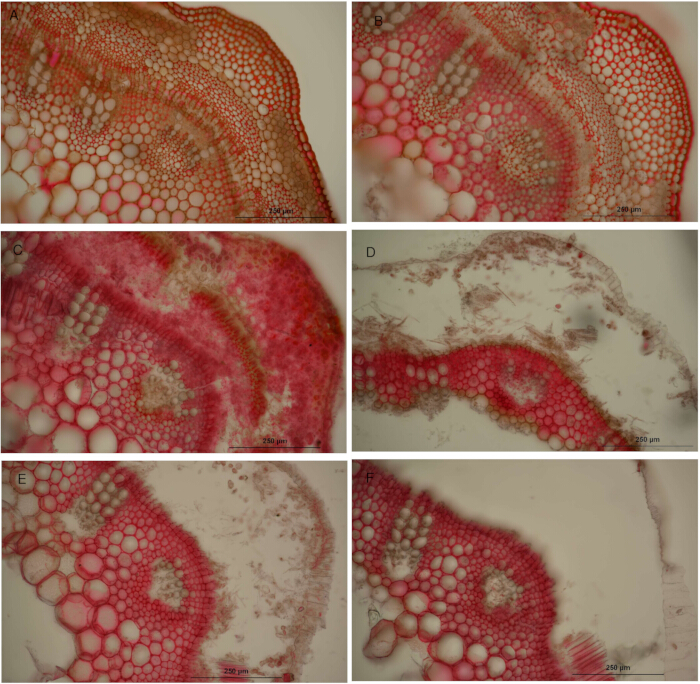
图5:苜蓿茎组织在处理后的变化 体外 孵育与钌红染色。 来自相同节间的苜蓿茎横截面样本经过处理 体外 与瘤胃液孵育A0 小时,(B)4 小时,(C8 小时,(D)24 小时,(E) 48 小时,以及(F96 h。在多个茎组织中观察到钌红染色,而木质部导管(XV)则相对未被染色。随着孵育时间的延长,组织结构和钌红染色逐渐丧失。在较晚的孵育时间点,部分木质部导管、髓间木质部(ifX)和表皮区域(Ep)仍可辨识。比例尺 = 250 μm. 请点击此处以查看此图的放大版本。
| 参数 | 设置 |
| 快速(对焦) | 2000 × 1328 |
| 质量(捕获) | 2000 × 1328 |
| 颜色模式 | RGB 颜色 |
| 位深度 | 每通道 8 位 |
| 有效颜色深度 | 24 位 RGB(8 位 R + 8 位 G + 8 位 B) |
| 增益 | 2 |
| 10 倍放大曝光时间(ms) | 30 |
| 20 倍放大曝光时间(ms) | 50 |
| 150 倍放大曝光时间(ms) | 150 |
表1:成像用显微镜和相机设置。 使用配备数字彩色相机和成像软件的正置显微镜进行明场成像时所采用的显微镜、相机及图像采集设置。
讨论
本研究所用的苜蓿材料来自五个苜蓿品系的克隆。经过两轮双向选择后,选出了两个实验品系。 体外 中性洗涤纤维消化率(IVNDFD),来自具有低16小时IVNDFD和低96小时IVNDFD或高16小时IVNDFD和高96小时IVNDFD的母本植株12. 本研究还纳入了三个遗传背景未知的商用品系,并根据近红外光谱分析筛选母本植株,以确定(a)木质素含量最高、(b)木质素含量最低、以及(c)中性洗涤纤维和酸性洗涤纤维含量最低的个体。这五个苜蓿品系于2021年5月从温室移栽至美国明尼苏达州两个地点的重复田间试验中。在每个生长季的第一茬和第二茬收获时,分别于植株发育的营养期、初蕾期、始花期、盛花期和绿荚期,从每个苜蓿品系中采集10根茎秆。取每根茎秆基部第七节间,切下后置于含有体积比为50:50的无水乙醇与超纯水混合液的50 mL离心管中,保存至横切面孵育。该方法基于本实验室团队在20世纪90年代前期开展的研究工作,当时已确定将第七节间作为研究单位4,6.
体外 利用瘤胃液孵育及苜蓿茎组织的组织学染色,以探究细胞壁组分在降解茎组织中的沉积模式。 体外 孵育过程模拟了紫花苜蓿茎秆在瘤胃中经历的降解程度,随后的组织学染色则凸显了在定时微生物消化后仍可检测到的细胞中残留的木质素和果胶。使用滑动式切片机确保了横切面厚度的标准化,以尽量减少可能干扰实验结果的切片伪影13尽管本实验方案仅检测了木质素和果胶,但也可使用其他染料(如甲苯胺蓝、阿斯特拉蓝和直接红23)对这些及其他细胞壁组分进行组织学染色。14,15,16此外,偏振光可用于检测细胞壁中的纤维素,而荧光试剂(如番红O)可使木质素可视化17 以及细胞壁多糖。此外,抗体可用于标记特定的果胶18除了苜蓿之外,该方案也可应用于其他物种。然而,染色反应可能因物种、基因型、发育阶段和环境条件的不同而有所差异19.
使用低成本双面胶带将茎横切片粘附于载玻片的方法此前已有描述6,20在开始此操作之前 体外 孵育方案需要确定一种双面胶带,该胶带能够耐受数天的液体浸泡且易于获取。评估了多种在预期工业用途和厚度上有所不同的胶带类型。简言之,将1英寸长的双面胶带片段和茎横切面固定在载玻片上,浸入水中,持续1周内不同时间段,以确定其是否仍能牢固黏附于载玻片。部分双面胶带从载玻片上脱落,而另一些在长时间接触液体后变得不透明。胶带透明度的丧失会影响显微观察,阻碍茎横切面高质量图像的获取。在所测试的黏合剂中,乙烯基双面胶带表现最佳。原始实验中使用的胶带购于20世纪90年代,仍有效;然而,后续实验无法获得相同产品。因此,所选用的胶带在使用前应进行测试,以确保胶带及横切面在整个孵育期间保持黏附。胶带还应保持透明,以便获取高质量图像。 关键词:孵育方案,双面胶带,乙烯基胶带,茎横切面,显微观察,图像质量,黏附性,透明度
的 体外 孵育步骤包含多个对时间敏感的操作环节,需要周密的计划与协调。完成该步骤所需的总时间 体外 孵育程序可能根据实验规模的不同而有所变化。例如,为了获得可靠的茎横切面数据集,每个样本的载玻片上需放置四个不同的苜蓿茎样本 × 体外 孵育间隔 × 染色组合。对于16个样本、6个孵育时间间隔和两种染色剂,每种情况共需要768个茎横切面 体外 孵育运行。制备768个横切面约需8小时,切片随后可置于含有超纯水的培养皿中过夜保存,并于次日进行封片。封片前,需对192张载玻片和96个离心管(50 mL)进行标记。由于为便于茎组织间的比较,横切面需在不同孵育时间段和染色处理间保持一致的取向,因此封片过程额外耗时8小时;该方法比随机封片更为耗时。封片后的载玻片在启动后续步骤前,需在超纯水中过夜保存。 体外 第二天孵育。在制备和安装苜蓿茎横切片的同时,也需要配制 McDougall’s 缓冲液。该缓冲液须在实验开始前不超过 2 天内配制。 体外 孵育及所需升温至 39 °C 在接种固定横切面之前,必须进行周密的规划和准备,以确保方案的顺利实施。
Wiesner 染色法常用于观察植物组织中与木质素相关的结构。尽管该染色方法相对简单21 且具有一定的特异性22,但它仅针对与愈创木基(G)木质素单元相关的肉桂醛末端基团进行染色13。在紫花苜蓿等双子叶被子植物中,G 单元和丁香基(S)单元是木质素聚合物的主要组成成分,尽管也存在少量对羟基苯基(H)环状亚基。因此,由于 Wiesner 染色法不与 S 型木质素发生反应,可能低估茎中总木质素的含量。G 和 S 单元均可存在于维管束间木质部和初生韧皮纤维(即厚壁组织)中;因此,尽管 S 单元不与 Wiesner 染料反应,G 单元的染色仍可指示这些组织中木质素相关结构的存在。Mäule 染色法可用于可视化 S 单元,从而更全面地反映茎中木质素单元的分布情况13。钌红对果胶的染色强度可能因果胶酸的酯化或去酯化状态不同而有所变化23,染色颜色可从黄橙色到鲜红色不等。由于钌红可与多种碳水化合物相互作用,使用该染料可能导致组织中果胶含量被高估11。随着紫花苜蓿茎的成熟,木质素比例增加,木质素在较老的茎中也可能干扰果胶的染色。同一种染料染色后色调的差异在视觉上可能难以区分;然而,图像分析技术有助于克服这一局限性。
随后 体外 与瘤胃液孵育并进行组织学染色后,可在显微镜下观察茎横切面,并采集图像用于后续分析。由于威斯纳染色法在24小时内会褪色9,对染色后茎段进行木质素的明场显微分析应于染色当天完成,理想时间为染色后6–8小时内,以确保各图像间染色效果一致。钌红染色的强度随时间保持稳定,因此对染色样本进行当日成像的要求相对较低。但为了保持一致性,钌红染色的样本图像也均在染色后6–8小时内采集。图像使用配备大尺寸CMOS图像传感器的高清晰度、高分辨率数码彩色显微相机获取。所有图像均采用相同的曝光时间、模拟增益、位深、图像质量和聚焦设置,以确保图像间的可比性,并最大限度减少因采集参数差异引入的变异。曝光时间根据放大倍数(10×, 20×,和 40×)以防止曝光过度或不足,从而获得高质量的图像。因此,应比较相同放大倍数下获取的图像,以尽量减少因不同曝光设置带来的差异。成像参数可能需要根据所使用的显微镜和相机进行调整(表1)。其他显微技术,包括扫描电子显微镜 6,20 以及荧光显微镜技术14,15,17,也曾被用于可视化细胞壁组分,尽管本实验方案中采用了明场显微镜。
本方案生成了大量茎横截面图像数据集(>15,000 张),可用于将本方案通过组织学染色获得的定性信息,进一步拓展为基于机器学习技术的定量分析。高效图像分析流程可自动并加速从图像中提取定量数据。与计算机科学家合作,有助于开发用于图像预处理、去除无关噪声以及提取感兴趣特征的工具,以验证多个假设。机器学习方法需要具备足够规模的适当训练和测试数据集,以确保模型性能的稳健性。较小的数据集可采用较简单的图像分析方法进行分析,例如使用 ImageJ24 或显微镜配套的图像分析软件手动测量目标性状25。因此,在图像采集阶段即考虑后续预期用途,有助于更高效地确定所需采集图像的类型与数量,以及相应的分析方法。
披露
作者声明,本研究的开展不存在任何可能被解释为潜在利益冲突的商业或财务关系。本出版物中提及的商标名称或商业产品仅用于提供具体信息,并不意味着美国农业部的推荐或认可。美国农业部是一个提供平等机会的供应商和雇主。所有实验均遵守实验所在国美国的现行法律法规。
致谢
作者感谢 R. Ted Jeo 对以往相关工作的深入见解。感谢明尼苏达大学双城分校大学影像中心提供显微镜图像采集与分析软件,用于准备发表所需的图像。本研究由美国农业部—农业研究局 [062-21500-001-000D] 及非援助性合作协议(编号:58-5062-2-016)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 铝箔 | Boardwalk | 7106BW | 18 英寸 × 1,000 英尺;用于保护对光敏感的染色液免受光照 |
| 二水合氯化钙,纯度≥99% | Sigma Life Science | C7902-500G | CAS 号 10035-04-8;用于配制 McDougall’s 缓冲液的试剂 |
| 相机软件 | Nikon | NIS-Elements AR 5.42.04 | 64 位成像软件,用于图像采集与分析 |
| 二氧化碳气体 | Matheson | UN1013 | 工业级;用于在样品制备和孵育过程中维持无氧条件 |
| 循环水浴锅 | Precision | — | 温控循环水浴锅,用于将样品维持在 39 °C |
| 玉米秸秆标准品 | 明尼苏达大学 | NA | 2023 年秋季采自美国明尼苏达州圣保罗市;研磨至 1 mm,用作微生物底物 |
| 盖玻片 | Thermo Scientific | 3419 | 24 mm × 30 mm,1.5 号厚度,1 盎司 |
| 配备 FX 大尺寸 CMOS 图像传感器的 Digital Sight 10 彩色显微相机 | Nikon | MQA20000 | 数字彩色相机,用于获取明场显微图像 |
| 解剖显微镜 | Nikon | SMZ18 | 立体显微镜,用于定位和摆放茎横切面 |
| 双面胶带 | SelloTape Office Vinyl Double Sided Tape | 4270 | 2 mm × 53 m;用于将茎横切面固定在载玻片上 |
| 电子天平 | AND | GH-202 | 具有四位小数读数精度的分析天平 |
| 锥形瓶(125 mL) | Kimax | 25600 | 125 mL 锥形瓶;可与 5 号塞子配合使用 |
| 锥形瓶(25 mL) | Pyrex | 4980 | 25 mL 锥形瓶;可与 0 号塞子配合使用 |
| 乙醇(200 证明) | Fisher Scientific | 04-355-720 | 无水乙醇,用于配制染色液及染色前冲洗 |
| 挤塑聚苯乙烯硬质泡沫保温板 | Owens Corning | 1407788 | 1 英寸 × 2 英尺 × 2 英尺,R-5,15 PSI 泡沫板;用于在切片过程中支撑茎节间组织 |
| 镊子 | Fisher Scientific | 10-316A | 实验室镊子,用于操作茎段、载玻片和已固定的切片 |
| 载玻片 | FisherBrand | 125503 | 25 mm × 75 mm × 1 mm;用于固定茎横切面 |
| 圆底烧瓶(6 L) | Pyrex | CLS43205L-4EA | 6 L 玻璃烧瓶,用于配制或处理较大体积的溶液 |
| 甘油,实验室级液体 | Fisher Science Education | 525342C | CAS 号 56-81-5;甘油,用于封片和储存溶液 |
| 50 号双层粗棉布 | JINIOHEE Shop | B0FL27KXRN | 100% 棉,漂白白色;用于过滤瘤胃物质和瘤胃液 |
| 量筒(10 mL) | Pyrex | 700024 | 10 mL 量筒,用于测量液体体积 |
| 盐酸 | Fisher | A1445-500 | CAS 号 7647-01-0;与间苯三酚配合使用以配制 Wiesner 染液 |
| 工业级永久性记号笔 | Sharpie | 13601 | 细头;用于在孵育管上做防水标记 |
| 盐酸半胱氨酸水合物 | Sigma-Aldrich | C121800-10G | CAS 号 345909-32-2;还原剂,用于孵育液的配制 |
| 低尘擦拭纸 | Kimberly-Clark | 34155 | 4.5 英寸 × 8.5 英寸;用于吸除载玻片上多余液体而不残留纤维 |
| 低剖面切片刀片 | Leica 819 | 63065-LP | 替换用低剖面刀片,用于制备均匀的茎横切面 |
| 七水合硫酸镁 | Fisher Chemical | M80-500 | CAS 号 10034-99-8;用于配制 McDougall’s 缓冲液的试剂 |
| 磁力搅拌子 | Fisher Scientific | 03-411-783 | 76 mm × 12 mm;用于混合缓冲液和接种液 |
| 邮寄地址标签 | Avery | 5167 | 1/2 英寸 × 1 3/4 英寸;用于样品和载玻片的标识 |
| 画笔 | Loew-Cornell | — | 7000 系列,3 号圆头;细毛刷,用于转移和操作茎横切面 |
| 带盖培养皿 | Becton Dickinson Labware | 81731119 | 60 mm × 15 mm;用于在超纯水中临时存放茎横切面 |
| 间苯三酚,1,3,5-三羟基苯 | Sigma-Aldrich | P3502-25G | CAS 号 108-73-6;用于配制 Wiesner 染液的试剂 |
| 移液器(100 μL) | Gilson | P 1000; 767547M | 可调体积移液器,用于分配染色液 |
| 塑料漏斗 | Nalgene | 10-437-23E | 150 mm;用于试剂转移和过滤 |
| 聚丙烯烧杯(4 L) | Nalgene | 1201-4000 | 4 L 耐化学腐蚀烧杯,用于配制和混合接种液 |
| 氯化钾 | Fisher Chemical | P217-500 | CAS 号 7447-40-7;用于配制 McDougall’s 缓冲液的试剂 |
| 剃刀片 | Personna | 66-0089 | 厚度 0.009 英寸;用于手动修剪茎组织 |
| 钌红,氨合三氯氧化钌 | Sigma | R-2751 | CAS 号 11103-72-3;组织学染料,用于可视化果胶物质 |
| 剪刀 | Fiskars | 1063071 | 通用剪刀,用于裁剪胶带、泡沫和其他耗材 |
| 螺口锥形离心管(50 mL) | Corning | 430828 | 聚丙烯材质,无热原;用于样品盛放、孵育、冲洗和储存 |
| 滑动式切片机 | Leica | 2000R | 滑动式/推拉式切片机,用于制备 100 μm 厚的茎横切面 |
| 碳酸氢钠,ACS 级 | Fisher Chemical | S233-3 | CAS 号 144-55-8;用于配制 McDougall’s 缓冲液的试剂 |
| 氯化钠 | Fisher Chemical | — | CAS 号 7647-14-5;用于配制 McDougall’s 缓冲液的试剂 |
| 氢氧化钠 | Fisher Chemical | S318-500 | CAS 号 1310-73-2;用于配制还原溶液 |
| 无水磷酸氢二钠(Na2HPO4) | Sigma Aldrich | S-9763 | CAS 7558-79-4 |
| 无水硫化钠,ACS 级,纯度≥98.0% | Oakwood Chemicals | 245960 | CAS 号 1313-84-4;还原剂,用于配制孵育液 |
| 药匙 | Fisher Scientific | 14-375-10 | 实验室刮勺,用于转移粉末状试剂 |
| 磁力搅拌器 | Thermolyne by Sybron | 7200 | 磁力搅拌板,用于混合缓冲液和接种液 |
| 注射器(60 mL)配粗针头 | Monoject | 935401028 | 60 mL 注射器配大孔径针头,用于分配接种液 |
| 试管架 | Thermo Scientific | 14-809-44 | 用于整理和支撑 50 mL 孵育管的架子 |
| 温度计 | FisherBrand | 13201663 | 实验室温度计,用于验证溶液和水浴温度 |
| 直立式显微镜 | Nikon | Eclipse Ni | 直立明场显微镜,用于观察和成像染色后的茎横切面 |
| 循环泵 | Little Giant Pump Co. | 502203 | 型号 2E-38N;115 VAC,60 Hz,1.7 A;用于循环水浴并维持温度均匀 |
| 称量纸 | VWR Scientific Products | 12578-165 | 一次性称量纸,用于称量和转移固体试剂及玉米秸秆底物 |
参考文献
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
重印与许可
本文已发表
视频即将推出