本方案描述了一种可重复的小鼠胸主动脉和腹主动脉来源的原代平滑肌细胞的分离与培养方法。该方法可获得适用于 体外 血管重塑与动脉瘤相关生物学研究。
本文内容
摘要
摘要
原代主动脉平滑肌细胞(SMCs)的分离与培养为研究包括主动脉瘤在内的血管疾病相关细胞机制提供了重要手段。本文介绍了一种详细且经过优化的小鼠胸主动脉和腹主动脉节段来源的主动脉SMCs分离与培养方案。该方法包括精细的主动脉解剖、去除周围组织,以及使用胶原酶、弹性蛋白酶和大豆胰蛋白酶抑制剂进行两步酶消化,随后通过机械解离并在特定培养条件下扩增细胞。本方案特别强调了提高细胞得率、纯度和可重复性的关键步骤,包括外膜去除和酶消化时间的精确控制。采用此方法可成功分离并扩增原代SMCs,所得细胞具有典型的形态特征和生长模式。该方案提供了一种可重复且可调整的方法,用于获取原代主动脉SMCs,并可作为 体外 与血管重塑和主动脉瘤生物学相关的研究。
引言
主动脉平滑肌细胞(SMCs)是血管壁的重要组成部分,对主动脉的结构完整性和功能调节均具有关键作用。在健康的血管中,SMCs维持一种以表达收缩蛋白为特征的收缩表型,例如α-平滑肌肌动蛋白(α-SMA)和平滑肌肌球蛋白重链(MYH11)1,2,3。该表型有助于维持血管张力并保持细胞外基质的有序结构。然而,在腹主动脉瘤(AAA)等病理状态下,SMCs会发生表型转变,向合成型和促炎状态转化1,2,3。这种转变伴随着增殖能力增强、细胞因子分泌增多以及基质降解酶的产生,最终导致主动脉壁的削弱4,5。
动物模型,包括血管紧张素II(Ang II)诱导的主动脉瘤形成,已显著推动了对腹主动脉瘤(AAA)发病机制的理解1,6,7,8,9,10,11。然而,这些模型无法实现对细胞通路的精确操控,也无法直接观察平滑肌细胞(SMC)特异性机制。体外系统利用原代SMCs提供了一种互补方法,可在受控条件下对信号通路、基因调控及细胞反应进行深入研究12。
尽管具有实用性,但分离原代小鼠主动脉平滑肌细胞在技术上具有挑战性。小鼠主动脉体积较小,周围存在脂肪组织和结缔组织,且可能存在外膜成纤维细胞污染,这些因素均会影响细胞纯度。此外,酶消化过程必须严格控制,以平衡组织解离效果与细胞活力的维持。这些步骤中的变异常导致不同实验及不同实验室之间结果不一致。
已发表多种关于原代小鼠主动脉平滑肌细胞分离与培养的方案,其中大多数依赖于在酶消化前完全机械去除外膜,并主要针对整段主动脉或胸主动脉节段13,14本方案在上述方法的基础上进行了多项技术优化,包括引入短暂的酶预消化步骤,以在组织完全解离前促进外膜与中膜层的分离;采用标准化的消化条件并结合间歇性的轻柔机械解离;以及建立分别分离和培养胸主动脉(THX)与腹主动脉(ABD)平滑肌细胞的工作流程。这些优化旨在提高组织处理过程的一致性与可重复性,同时促进针对血管重塑和动脉瘤生物学的区域性研究。所获得的平滑肌细胞(SMC)培养物适用于多种下游应用,包括基因沉默、药理学研究以及与血管重塑和动脉瘤生物学相关的机制性研究。尽管从非病变主动脉分离的原代平滑肌细胞本身并不天然重现动脉瘤表型,但其提供了一个可控的实验体系 体外 用于研究在靶向实验干预后与动脉瘤形成相关的细胞通路的系统。
方案
选用8至10周龄、体重18–20 g的雌性C57BL/6J成年小鼠进行下述操作,每次分离使用两只小鼠。所有动物实验均遵循肯塔基大学机构动物照护与使用委员会(IACUC)的指导原则,并在第2022-4153号实验方案下获得批准。所用试剂与设备的详细信息列于材料表中。完整的分离与培养操作流程示意图见 图1。
警告:氯胺酮和赛拉嗪为管制药品,应根据机构政策和适用法规进行操作、储存和处置。II型胶原酶和弹性蛋白酶为蛋白水解酶,可能引起皮肤、眼睛和呼吸道刺激。台盼蓝是一种有害染料,操作时应佩戴适当个人防护装备,并避免接触皮肤和眼睛。所有危险试剂均应根据机构安全指南和制造商说明进行操作和处置。
1. 试剂与培养基的制备
- 在分离当天,于无菌的 15 mL 圆底离心管中新鲜配制 10 mL 酶消化液:
- 加入 10 mg II 型胶原酶(终浓度为 1 mg/mL)(参见材料表)。
- 加入 10 mg 大豆胰蛋白酶抑制剂(终浓度为 1 mg/mL)(参见材料表)。
- 加入 71 µL 弹性蛋白酶悬浮液(终浓度为 0.744 U/mL)(参见材料表)。
- 使用含钙和镁但不含酚红的 HBSS 配制该溶液(参见材料表)。
- 加入 100 µL 青霉素/链霉素(终体积的 1%)(参见材料表)。
- 充分混匀溶液,并使用 0.2 µm 尼龙注射器滤器过滤除菌(参见材料表)。
- 配制完全平滑肌细胞培养基(500 mL)
- 以不含酚红的 Dulbecco 改良 Eagle 培养基/营养混合物 F-12(DMEM/F12)385 mL 作为基础培养基(参见材料表)。
- 添加 100 mL 经炭/葡聚糖处理的胎牛血清(终体积的 20%)(参见材料表)。
- 加入 10 mL 青霉素/链霉素(终体积的 2%)(参见材料表)。
- 加入 5 mL 两性霉素 B(终体积的 1%)(参见材料表)
- 将培养基过滤除菌后,置于 4 °C 保存。
- 使用前将所有试剂预热至 37 °C。
2. 组织处理的准备工作
- 将酶消化液预先等分至6孔培养板中的4个孔(每孔2.5 mL),并在组织处理前于37 °C、5% CO₂的培养箱中预热。其中2孔标记为“THX”,2孔标记为“ABD”,用于主动脉节段的处理。 同一解剖区域的多个节段可置于同一孔中进行处理。
- 准备两个独立的培养皿(见材料表),内含完全平滑肌细胞培养基,并分别标记为THX和ABD。
- 将含有培养基的培养皿置于湿化培养箱中预热。
- 提前准备好20 mL无菌HBSS,用于血管灌注和组织处理。
- 另准备两个培养皿,每皿含3 mL HBSS,用于依次清洗分离出的主动脉。
- 准备已标记的15 mL锥形管(见材料表),每管加入5 mL HBSS,用于临时储存和分离THX与ABD主动脉节段。
- 在不同动物之间使用洗涤剂清洁手术器械,用蒸馏水冲洗,70%乙醇消毒,并使用玻璃珠灭菌器进行灭菌(见材料表)。
3. 动物准备与主动脉剥离
- 根据肯塔基大学 IACUC 方案 2022-4153 批准的终末操作程序,通过腹腔(IP)注射氯胺酮(300 mg/kg)和赛拉嗪(30 mg/kg)对小鼠进行麻醉(参见材料表)。
- 通过夹捏脚趾无反射反应确认麻醉深度足够。
- 使用 70% 乙醇对术区进行消毒。
- 在深度外科麻醉状态下,按照机构和美国兽医医学协会(AVMA)指南,通过心脏穿刺放血处死小鼠,随后进行心脏灌流 HBSS。
- 打开胸腔,进行心脏穿刺以收集血液。
- 使用装有 25 号针头的 10 mL 注射器,通过左心室灌注,缓慢注入 10 mL 无菌 HBSS,以灌流血管系统。建议灌流速度约为 0.5 mL/s,以有效清除残留血液。
- 小心移除周围器官(肝脏、肺、脾、胃肠道、肾脏)。 保留一段与主动脉相连的膈肌。
- 从主动脉根部至髂动脉分叉处分离主动脉,保留完整的膈肌。膈肌作为胸段(THX)与腹段(ABD)区域之间的解剖学边界 (图 2B)。
- 立即将主动脉转移至无菌 HBSS 中(图 2A)。
4. 主动脉清洗与分离
- 将含有主动脉的无菌培养皿置于解剖显微镜下(参见材料表)。
- 使用精细镊子小心去除脂肪组织和结缔组织(参见材料表)。
- 将主动脉分离为胸段(THX)和腹段(ABD)。
注意: 胸段(THX)位于膈肌上方的主动脉区域,向上延伸至主动脉根部,而腹段(ABD)则从膈肌下方的主动脉区域向下延伸至髂动脉分叉处(图2B)。 - 将清理后的血管段分别转移至含有新鲜HBSS的15 mL锥形管中,用于后续处理。
5. 酶解与细胞分离
- 将主动脉节段在酶溶液中于 37 °C 孵育 8–10 分钟。
- 从酶溶液中取出主动脉节段。
- 将节段转移至分别含有指定用于 THX 和 ABD 样本的完全 SMC 培养基的培养皿中 。
- 使用粗头和细头镊子去除主动脉的外膜层。当主动脉外表面呈现光滑且半透明状态,无可见残留的结缔组织或脂肪组织时,表明外膜已完全去除(图 2C)。
- 将主动脉节段转移至新鲜酶溶液中,并直接在溶液内将中膜层剪切成小片段(图 3A)。
- 将组织片段于 37 °C、含 5% CO₂ 的湿润培养箱中孵育 1 小时。
- 通过上下吹打约 10–15 次进行轻柔的机械解离,以促进细胞释放(图 3B)。
- 在持续孵育期间,每隔 30–60 分钟重复一次机械解离步骤,总消化时间达 2–3 小时,或直至获得均一的细胞悬液。
6. 细胞收集、洗涤、接种与初始培养
- 将含有解离细胞的酶消化液分别转移至为胸主动脉(THX)和腹主动脉(ABD)样本准备的 15 mL 圆底离心管中(参见材料表)。
- 用 5 mL 培养基冲洗每个消化孔,并将冲洗液合并至相应的离心管中。
- 在室温下以 400 × g 离心 5 分钟,沉淀细胞。
- 若细胞沉淀不充分,可重复一次离心步骤。
- 小心吸除上清液,避免扰动细胞沉淀(图 3C)。
- 用 5 mL 新鲜培养基重悬细胞,并在相同条件下进行一次额外的洗涤和离心步骤。
- 吸除上清液后,将最终的细胞沉淀重悬于适当体积(通常为 6 mL)的完全平滑肌细胞(SMC)培养基中。
- 将从胸主动脉或腹主动脉段获得的全部细胞悬液接种至 6 孔培养板中的两个孔(每孔 3 mL 悬液),于 37 °C、5.0% CO₂ 条件下培养。细胞在分离后立即接种,无需预先计数,因此此阶段不设定目标接种密度。
- 培养物在 5–7 天内保持不扰动,以促进细胞贴壁和初步扩增。
暂停点:接种后,培养物可在孵箱中维持 5–7 天,再进入第 7 节的细胞维持与扩增步骤。
7. 细胞的维持与扩增
- 每 3–4 天更换一次培养基。
- 定期监测细胞形态和融合度。
- 当细胞融合度达到约 80–90% 时进行传代。
- 吸除培养基,用预热的磷酸盐缓冲液(PBS)洗涤细胞(参见材料表)。
- 加入 0.05% 胰蛋白酶-EDTA,于 37 °C 下孵育 5–10 分钟。
- 当 80%–90% 的细胞脱落时,继续下一步操作。
- 轻轻敲击培养皿以促进细胞脱落。
- 加入等体积的完全培养基以中和胰蛋白酶活性。
- 轻柔吹打以使残留细胞脱落。
- 将细胞悬液转移至锥形管中,于 400 × g 离心 5 分钟。
- 弃去上清液,将细胞沉淀重悬于新鲜培养基中。
- 按 1:2 的传代比例(或所需实验密度)接种细胞,于 37 °C、5% CO₂ 条件下培养。让细胞贴壁后静置培养 24–48 小时。
注意:进行后续实验时,建议使用第 3 至第 7 代(P3–P7)的细胞,以尽量减少培养诱导的表型漂移。第 7 代以后的细胞更易发生表型漂移,可能出现形态和功能的改变。
8. 通过α-SMA免疫荧光染色进行验证
- 在适合荧光显微镜观察的材料上培养细胞。
- 将细胞以每孔15,000个的密度接种于96孔光学底板中。待细胞生长至所需汇合度。
- 准备细胞以进行固定
- 吸弃贴壁细胞的培养液。用 PBS 洗涤 3 次 200 µL 每孔加入含0.1%吐温-20的Tris缓冲盐水(TBS-T) 每次洗涤5分钟,然后使用生物安全柜内的真空泵抽吸。
- 固定细胞
- 添加 200 µL 每孔加入 4% 多聚甲醛(PFA)1x PBS 溶液。室温孵育 10–20 分钟,然后吸除。
- 透化处理
- 添加 200 µL 每孔加入 0.1% Triton X-100 的 1x PBS 溶液。室温孵育 10–15 分钟,然后吸除液体。
- 阻断非特异性结合
- 用溶液洗涤细胞 3 次 200 µL 每孔加入 TBS-T,每洗一次 5 分钟。加入 200 µL 每孔加入含5%牛血清白蛋白(BSA)的TBS-T溶液
- 将培养板置于摇床中,室温下约200 rpm振荡1小时。
- 一抗染色
- 制备一抗 α在含5% BSA的TBS-T中按1:1,000稀释-SMA抗体。
- 从轨道摇床上取出培养板,吸出指定孔中的封闭液 α-SMA 染色。对于仅使用二抗的对照组,省略一抗,并将对照孔置于含 5% BSA 的 TBS-T 中。
- 添加 200 µL 每孔稀释的一抗 α-SMA 抗体加入实验孔中。将实验孔和仅含二抗的对照孔在4°C孵育过夜 4 °C 在温和的轨道摇床上。
- 二抗染色
- 在含0.1% Tween 20的TBS-T中按1:2,500比例稀释荧光二抗。
- 从轨道摇床中取出培养板,吸出所有孔中的液体。
- 用洗涤液冲洗所有孔 3 次 200 µL 每孔加入 TBS-T,每次洗涤 5 分钟,然后吸去液体。
- 添加 200 µL 每孔加入稀释的荧光二抗,包括仅含二抗的对照孔。
- 避光保护,于室温下在约200 rpm的摇床中孵育1小时。
- 核染色与荧光成像
- 制备一种 2 µg/mL Hoechst 33342 溶液
- 用……洗涤细胞 3 次 200 µL 每孔加入 TBS-T,每次洗涤 5 分钟。加入足量 Hoechst 33342 染色液以覆盖细胞,室温避光孵育 10 分钟。
- 使用倒置荧光显微镜以 20x 放大倍数采集荧光图像 α使用385 nm激发Hoechst 33342,475 nm激发荧光标记的二抗,对α-SMA染色的THX和ABD培养物进行成像,二抗阴性对照在10倍物镜下拍摄,以在视野中包含足够数量的细胞核。
- 定量分析 α-SMA阳性细胞
- 评估 α通过计数与呈现清晰形态的细胞相关联的Hoechst阳性细胞核来评估-SMA阳性率 α-SMA 阳性梭形细胞胞质染色。对荧光信号模糊或不明确的细胞,应保守计分 α-SMA 阴性。
- 计算 α-SMA 阳性细胞的数量作为指标 α-SMA 阳性细胞数除以在所评估的显微镜视野中计数的 Hoechst 阳性细胞核总数,再乘以 100。
结果
分离后24–48小时内,部分细胞开始贴附于培养表面并伸展,最初呈圆形形态。在早期时间点,细胞贴附情况可能有所差异,由于初始分离过程中获得的活细胞数量有限,培养物可能显得稀疏。至第3–5天,贴壁细胞逐渐呈现出血管平滑肌细胞(SMCs)典型的长梭形、细长形态,并开始增殖,形成小的细胞簇。包括主动脉分离、分段、酶消化、机械解离及细胞接种在内的实验流程示意图见图1。
胸主动脉(THX)和腹主动脉(ABD)的分离、基于解剖位置的分段以及外膜层去除的代表性图像见图2。THX和ABD主动脉区域根据膈肌相对解剖位置进行区分,如图2B所示。酶消化、机械解离以及离心后形成可见细胞沉淀的代表性图像见图3。
在第3代时,采用台盼蓝排斥法(1:1)和 Countess全自动细胞计数仪对细胞数量和活力进行评估。数据来自3次独立的分离实验,共使用6只小鼠(每次分离使用2只小鼠)。THX培养物的平均细胞数量为5.10 × 10⁵ ± 7.81 × 10⁴ 个细胞(范围:4.20 × 10⁵–5.60 × 10⁵),活力为66.33 ± 18.18%(范围:46–81%);ABD培养物的平均细胞数量为4.63 × 10⁵ ± 2.31 × 10⁴ 个细胞(范围:4.50 × 10⁵–4.90 × 10⁵),活力为61.66 ± 12.01%(范围:50%–74%)(表1)。
培养至第5–7天时,细胞通常达到约70%–90%的融合度,形成致密且相对均一的单层。细胞常呈平行排列,反映出其收缩性谱系特征。胸主动脉(THX)与腹主动脉(ABD)来源的平滑肌细胞(SMCs)在增殖速率和细胞密度上可能存在差异,这与主动脉已知的区域性异质性一致。图4展示了来自THX和ABD主动脉节段的原代SMCs在低倍(10x)和高倍(20x)放大下的代表性相差显微图像。
SMC 表现出典型的细长梭形形态,在汇合时呈平行排列的有序结构以及均匀的生长模式,而成纤维细胞样细胞通常表现出更为扁平且不规则的形态,排列方向无序,分布不均。这些形态学特征和生长特性为在缺乏分子验证的情况下,提供了一种实用且可重复的原代培养中 SMC 群体鉴定方法。成功的分离表现为细胞在 24–48 小时内早期贴壁,逐渐获得梭形形态,并在第 5–7 天形成汇合的单层细胞。当细胞密度较高时,细胞通常呈平行排列,符合平滑肌表型特征。结果不理想的情况可能包括细胞贴壁差、细胞得率低,或出现扁平、形状不规则的细胞,这可能提示消化不完全、酶消化时间过长,或混入了非平滑肌细胞群体的污染。
一致的细胞活力以及极少的成纤维细胞样污染进一步支持了成功的分离。为进一步验证平滑肌细胞(SMC)的身份,采用第8节所述方法对代表性原代培养细胞进行α-平滑肌肌动蛋白(α-SMA)免疫荧光染色(图5)。胸腺(THX)和腹主动脉(ABD)来源的培养物均显示出血管平滑肌细胞典型的丝状α-SMA染色模式。在四个显微视野中定量分析发现,共评估72个Hoechst阳性细胞,其中69个为α-SMA阳性,总体α-SMA阳性率为95.8%(95% CI,88.5%–98.9%)。具体而言,20个THX细胞中有20个为α-SMA阳性,52个ABD细胞中有49个为α-SMA阳性。图5展示了所评估样本中的代表性视野。
在早期传代过程中,细胞保持稳定的形态和增殖能力。然而,随着培养时间的延长,细胞可能逐渐表现出表型改变的特征,包括铺展程度增加、排列减少以及生长模式改变。
在这些条件下,原代平滑肌细胞培养物适用于下游应用,包括基因敲低、药理学处理以及血管重塑和主动脉瘤形成相关通路的机制研究。
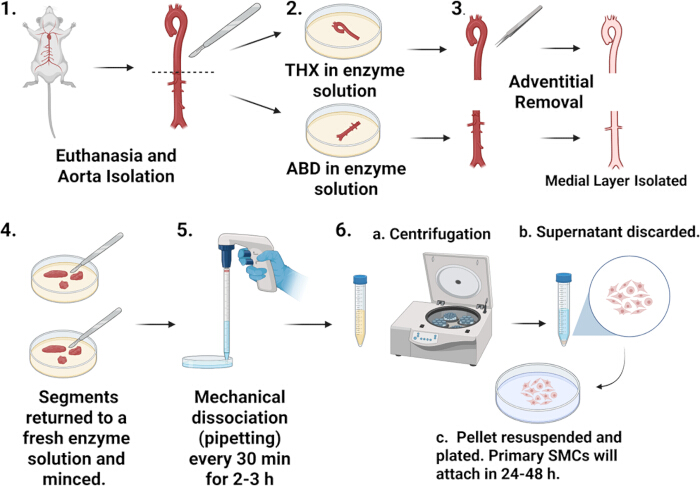
图1:实验流程示意图。 小鼠主动脉平滑肌细胞分离的主要实验流程示意图。图1 显示安乐死及主动脉的分离。图2 显示将胸主动脉(THX)和腹主动脉(ABD)段分离并放入酶消化液中。图3 显示去除外膜并分离中膜层。图4 显示将组织片段转移至新鲜酶溶液中并进行剪碎处理。图5 显示每30分钟通过吹打进行机械解离,持续2–3小时。图6 显示细胞收集与接种过程,包括6a离心、6b去除上清液和6c重悬沉淀并接种细胞。请点击此处查看该图的放大版本。
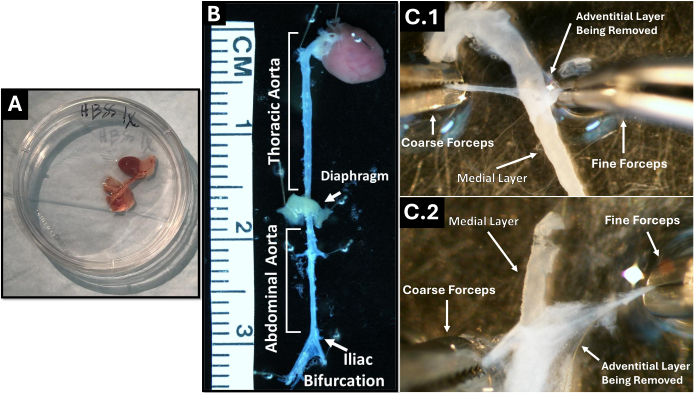
图2:小鼠主动脉节段的分离与制备。(A)完整分离的主动脉置于培养皿中。(B)清理后的主动脉,显示解剖标志,包括胸主动脉(THX)和腹主动脉(ABD)区域,以及膈肌和髂动脉分叉。(C)使用精细和粗头镊子去除THX(上图)和ABD(下图)节段外膜的代表性图像,暴露出下方的中膜层,该层对平滑肌细胞的分离至关重要。请点击此处查看该图的放大版本。
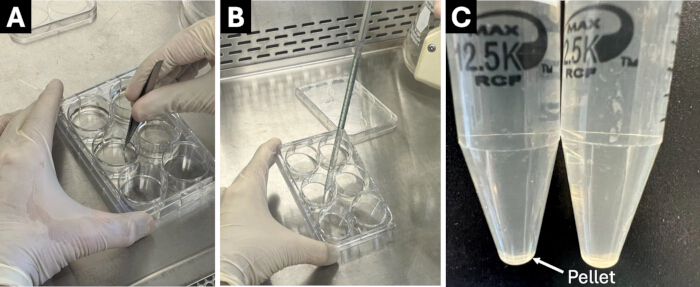
图 3:主动脉组织的酶消化与机械解离。 (A)去除外膜层后,将中膜层转移至新鲜酶溶液中,并用小剪刀剪碎。 (B)通过轻柔吹打实现主动脉组织碎片机械解离的示例。 (C)经酶消化和离心后,可见细胞沉淀。 请点击此处查看该图的放大版本。
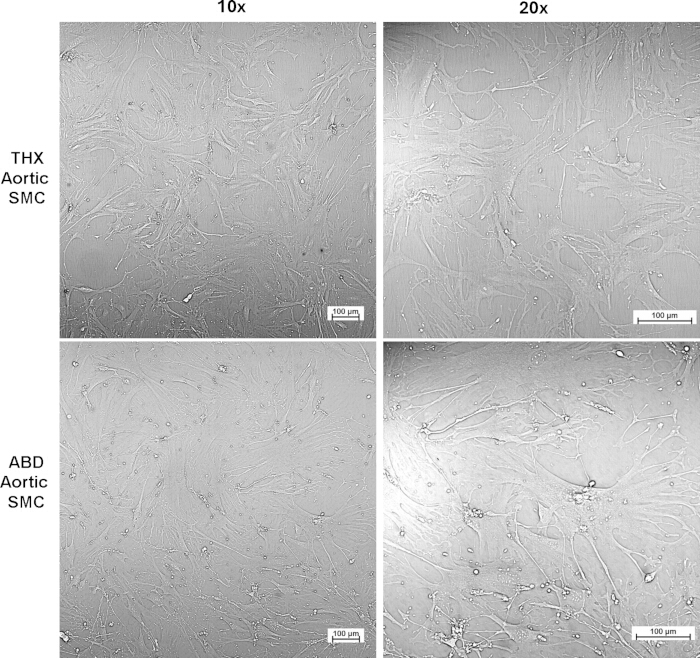
图4:小鼠原代主动脉平滑肌细胞(SMCs)的典型形态学特征。 从小鼠胸主动脉和腹主动脉节段分离得到的原代平滑肌细胞在标准条件下培养,并在第4代时进行成像。图中展示了低倍(10×)和高倍(20×)下的代表性相差显微图像。细胞呈现典型的细长梭形形态,并呈定向排列,符合收缩型平滑肌细胞表型特征。胸主动脉来源与腹主动脉来源的SMCs在细胞密度和排列结构上可观察到差异,反映了其区域异质性。比例尺 = 100 µm。 请点击此处查看该图的高清版本。
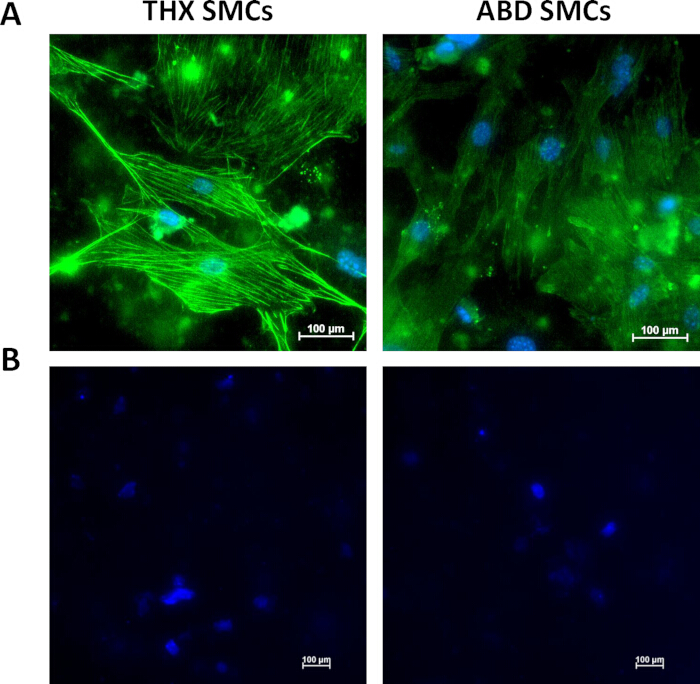
图5:原代小鼠主动脉平滑肌细胞的免疫荧光验证。(A)从胸主动脉(THX,左)和腹主动脉(ABD,右)分离的原代平滑肌细胞的代表性免疫荧光图像,α-平滑肌肌动蛋白(α-SMA)染色呈绿色。细胞核用Hoechst 33342复染(蓝色)。图像以20倍放大倍数采集。(B)THX(左)和ABD(右)原代平滑肌细胞的代表性仅二抗对照图像,未使用α-SMA一抗,仅用Hoechst 33342复染(蓝色)。图像以10倍放大倍数采集。在四个显微视野中定量分析,72个细胞中有69个为α-SMA阳性(95.8%)。比例尺 = 100 µm。 请点击此处查看该图的放大版本。
| 小鼠原代主动脉平滑肌细胞培养物的细胞计数与活力 | |||
| 主动脉节段 | 独立分离次数,n | 细胞计数(均值 ± 标准差)* | 细胞活力(均值 ± 标准差)† |
| THX | 3 | 5.10 x 10⁵ ± 7.81 x 10⁴ cells | 66.33 ± 18.18 % |
| ABD | 3 | 4.63 x 10⁵ ± 2.31 x 10⁴ cells | 61.66 ± 12.01 % |
| *细胞计数来自3次独立分离的第3代细胞。 | |||
| †细胞计数和活力通过使用Countess全自动细胞计数仪进行1:1台盼蓝排斥法测定。 | |||
表1:原代小鼠主动脉平滑肌细胞培养物的细胞计数与活力
| 步骤 | 问题 | 可能原因 | 推荐解决方案 |
| 主动脉解剖 | 细胞得率低 | 主动脉回收不完全或解剖过程中组织损伤 | 确保从主动脉根部至髂动脉分叉处完整分离;操作轻柔以避免组织损伤 |
| 主动脉清洗 | 成纤维细胞污染 | 外膜组织去除不彻底 | 初次消化后仔细剥离外膜;这对平滑肌细胞纯度至关重要 |
| 初次消化 | 难以去除外膜 | 酶解松解不充分 | 在尝试机械剥离前确保充分孵育(8–10 分钟) |
| 酶消化 | 细胞得率低 | 组织消化不足 | 略微延长消化时间或增加机械解离频率 |
| 酶消化 | 细胞活力差 | 消化过度或酶暴露时间过长 | 缩短消化时间,避免长时间孵育 |
| 机械解离 | 细胞释放效果差 | 吹打不充分 | 每 30–60 分钟进行轻柔但重复的吹打 |
| 细胞贴壁 | 细胞贴壁不良 | 细胞损伤或培养基温度过低 | 使用预热的培养基,并尽量减少操作带来的应激 |
| 早期培养 | 无细胞生长 | 细胞活力低或存在污染 | 确认消化条件和无菌状态;必要时重复分离 |
| 细胞形态 | 非梭形(持续存在圆形/扁平细胞) | 污染或表型漂移 | 验证外膜是否彻底去除;避免过度生长和长期培养 |
| 细胞增殖 | 增殖缓慢 | 血清浓度不理想 | 在早期扩增阶段使用 20% FBS |
| 汇合度 | 过度汇合的细胞难以传代 | 传代延迟 | 在细胞达到 80–90% 汇合度时进行传代 |
| 传代 | 细胞脱落效果差 | 细胞过度汇合或胰酶消化不充分 | 略微延长胰酶作用时间,并辅以机械辅助促进脱落 |
| 长期培养 | 平滑肌细胞表型丢失 | 代次过高或培养时间过长 | 使用第 3–7 代的细胞 |
| 可重复性 | 不同分离批次间存在差异 | 操作技术差异或生物学变异 | 在实验间标准化酶液配制、时间控制和操作流程 |
表2:原代小鼠主动脉平滑肌细胞分离与培养的故障排除指南。 总结了在原代小鼠主动脉平滑肌细胞的分离、消化和培养过程中常见的技术问题,包括可能的原因及推荐的解决方案,以提高实验的可重复性。
讨论
本方案提供了一种稳定且可重复的小鼠主动脉平滑肌细胞(SMCs)原代分离与培养方法 体外 研究。除了其技术上的实用性外,该方法对于研究血管重塑和主动脉瘤形成背后的机制也具有重要意义。鉴于肾素-血管紧张素系统(RAS)及血管紧张素II(Ang II)在血管炎症和动脉瘤形成中的明确作用15,16原代主动脉平滑肌细胞的分离为在细胞水平上探究这些通路提供了一种重要的方法。
成功的关键因素之一是彻底去除外膜组织。外膜中含有成纤维细胞及其他非平滑肌细胞(SMC)群体,若去除不充分,这些细胞在培养中可能过度生长并超过SMC。短暂的初始酶消化步骤有助于将外膜与中膜层进行机械分离,从而实现更精确的解剖。该步骤操作不当是SMC分离方案中污染和结果变异最常见的原因之一。
酶消化条件也必须仔细优化。使用II型胶原酶、弹性蛋白酶和大豆胰蛋白酶抑制剂的组合,可有效降解细胞外基质成分,同时保持细胞活力。然而,必须密切监测消化过程。消化不足会导致组织解离不完全和细胞得率降低,而过度消化则可能损伤细胞,影响其贴壁能力,并降低细胞活力。因此,通过轻柔且反复的移液进行机械解离是一个必要的补充步骤,有助于促进细胞释放,同时最大限度减少酶暴露过度。上述步骤共同强调了在酶学处理与机械处理之间取得平衡的重要性,以优化细胞得率和细胞活力。在整个操作过程中保持一致的消化时间、组织处理方式和机械解离方法,对于提高不同分离实验间的可重复性同样至关重要。
培养条件在维持平滑肌细胞(SMC)表型和功能中起核心作用。高血清培养基(20% 胎牛血清)有助于分离后原代细胞的初始贴壁和扩增。采用活性炭/葡聚糖处理的血清可减少标准血清制剂中激素和脂质成分带来的变异性。然而,长期暴露于高血清环境或长时间培养可促使表型漂移,向合成型或成纤维细胞样状态转变。为最大限度减少这些影响,建议使用早期至中期传代细胞(P3–P7),并避免过度融合的培养状态,因其可能改变细胞形态并降低增殖能力。
分离细胞的形态是评估培养质量的重要初步指标。健康的平滑肌细胞(SMCs)呈现典型的纺锤形、细长形态,并在较高融合度时呈平行排列。细胞形态偏离此特征,如出现扁平化或不规则形状,可能提示存在污染、培养条件次优或表型漂移。提示表型由收缩型向合成型转换的形态学特征包括细胞铺展增加、纺锤形形态减少、失去平行排列以及生长模式更加异质化。
尽管形态学评估具有一定的参考价值,但它不足以明确确定平滑肌细胞表型,应通过分子验证加以补充,例如使用以下标志物: α-SMA 和 MYH11,具体取决于应用。在本研究中, α-SMA 免疫荧光染色证实了分离细胞的身份,并显示其中存在较高比例的 α- SMA阳性细胞在THX和ABD培养物中均存在(图5). 该方案的一个关键优势在于能够从主动脉的不同区域(包括胸主动脉段和腹主动脉段)分离平滑肌细胞。这些区域在生物学特性上存在内在差异,包括细胞外基质组成、胚胎起源以及对疾病的易感性不同。分离区域特异性的平滑肌细胞有助于研究血管生物学中的空间异质性,并可能揭示不同区域对动脉瘤形成的特异性易感机制。16,17,18现有的小鼠主动脉血管平滑肌细胞分离方法采用过夜胶原酶消化13 或酶消化4–6小时,据报道5–6小时可获得更佳的回收率14,与本方案中采用8–10分钟预消化后进行2–3小时消化相比,总处理时间从安乐死到细胞接种约为4小时。Adhikari 等报道了25–35 × 103 培养5天后每毫升活细胞数及sm22阳性率为97%–99%α 以及 Acta2,而本方案获得的第3代细胞数量为 5.10 × 10⁵ ± 7.81 × 10⁴ 用于THX和4.63的细胞 × 105 ± 2.31 × 10⁴ 用于ABD的细胞,总体 α-SMA 阳性率为 95.8%。Hubert 等人采用了过夜消化法,但未报告定量的细胞得率或纯度百分比13,14相比之下,McMurray 等人的组织块法在正常主动脉组织块中出现平滑肌细胞长出之前,平均需要约 7.6 天的滞后期, >10天时90%的组织块显示出外延生长 >第12天达到95%,而本酶法允许在细胞分离当天直接将分离的细胞进行接种培养18本方案结合了一个简短的预消化步骤,有助于去除外膜,并采用标准化的消化和机械解离条件,以促进组织处理和细胞回收的一致性。结合胸段(THX)和腹段(ABD)平滑肌细胞的区域特异性分离,缩短了处理时间,并对细胞回收率和 α-SMA 阳性在可重复性方面具有实用优势 体外 研究。
该方法非常适合用于涉及遗传学和药理学干预的机制研究。原代平滑肌细胞(SMC)培养可用于基因沉默技术,包括siRNA介导的基因敲低,以及基因过表达研究和药物处理。这些方法能够直接探究参与平滑肌细胞表型转换、炎症反应以及细胞外基质重塑的信号通路,而这些过程正是主动脉瘤发生与进展的核心环节1,5。
在疾病建模的背景下,需考虑本方案的局限性。本方案中的平滑肌细胞来源于无疾病的鼠类主动脉,因此本身不表现出与动脉瘤相关的表型。因此,需要额外的实验方法,包括药物刺激、基因操作或与体内模型结合,以重现与疾病相关的过程,如炎症激活、细胞外基质重塑和表型转换。除上述考虑因素外,本方案还存在若干局限性。由于动物间的生物学差异或技术操作中的微小变化,不同分离批次之间可能出现细胞产量和生长动力学的变异性。此外,基于酶消化的分离方法可能影响细胞表面受体表达或信号通路,这在解释下游功能研究结果时应予以考虑。原代平滑肌细胞随着传代次数的增加会逐渐丧失其收缩表型,这可能影响实验结果。通过严格标准化操作流程并使用低传代细胞,有助于减轻这些局限性。本方案常见的技术挑战及推荐解决方案总结于表 2中。
综上所述,本方案为原代小鼠主动脉平滑肌细胞的分离与培养提供了一个可靠且可调整的技术框架。当该方法与体内模型相结合时,能够实现对血管重塑及主动脉瘤发生过程中细胞与分子机制的全面研究。
披露
作者声明不存在利益冲突。语言编辑和语法校正使用了Grammarly;所有科学内容及解释均由作者完成。
致谢
部分经费由肯塔基大学医学院提供。图示摘要(图1)使用 BioRender.com 在学术出版许可下制作,出版协议编号为 GI2A3W9TY8。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 μm 尼龙注射器滤器 | VWR | 76439-080 | 无菌过滤 |
| 15 mL 圆底离心管 | VWR | — | 用于清洗后主动脉转移及细胞收集 |
| 6孔/12孔培养板(未处理) | Corning | — | 细胞培养 |
| 50 mL 圆底离心管 | VWR | — | 细胞收集 |
| 96孔光学底微孔板 | Thermo Fisher Scientific | 165305 | 用于平滑肌细胞验证 |
| α-平滑肌肌动蛋白抗体(单克隆) | Cell Signaling Technology | 19245S | 用于平滑肌细胞验证;工作稀释比例为1:1000 |
| Alexa Fluor 488 IgG 二抗(多克隆) | Invitrogen | A-11008 | 用于平滑肌细胞验证;工作稀释比例为1:2500 |
| 两性霉素B | Thermo Fisher Scientific | 15290018 | 抗真菌剂 |
| 牛血清白蛋白 | Sigma-Aldrich | A7906 | 用于平滑肌细胞验证 |
| CO2 培养箱(37 °C) | Various | — | 细胞培养条件 |
| II型胶原酶 | Worthington Biochemical | LS004174 | 用于酶解消化;使用浓度为260 U/mg |
| Countess 自动细胞计数仪 | Invitrogen | C10281 | 用于细胞计数 |
| 解剖显微镜 | Various | — | 组织清洗 |
| DMEM/F12 培养基 | Thermo Fisher Scientific | 21041-025 | 基础培养基 |
| 弹性蛋白酶 | Worthington Biochemical | LS002279 | 用于基质降解;使用浓度为4.17 U/mg蛋白 |
| 胎牛血清(炭吸附/葡聚糖处理) | Cytiva (Hyclone) | SH30068.03 | 培养时使用浓度为20% |
| 含Ca2+和Mg2+的HBSS | Thermo Fisher Scientific | 14025-092 | 用于消化缓冲液 |
| Hoechst 33342 溶液 | BD Pharmingen | 561908 | 用于平滑肌细胞验证 |
| 热珠灭菌器 | Fine Science Tools | 18000-45 | 用于主动脉提取 |
| 氯胺酮 | Dechra | — | 用于小鼠麻醉 |
| 青霉素/链霉素 | Thermo Fisher Scientific | 15140122 | 抗生素 |
| 磷酸盐缓冲液(PBS) | Thermo Fisher Scientific | 20012-027 | 洗涤缓冲液 |
| 氯化钠 | Fisher Scientific | BDH9286 | 用于平滑肌细胞验证;工作浓度为150 mM(每升8.8 g) |
| 大豆胰蛋白酶抑制剂 | Worthington Biochemical | LS003570 | 防止过度消化 |
| Tris碱 | Fisher Scientific | BP152 | 用于平滑肌细胞验证;工作浓度为20 mM(每升2.4 g) |
| Triton X-100 | Fisher Scientific | BP151 | 用于平滑肌细胞验证;工作浓度为0.1% |
| 台盼蓝染液 | Thermo Fisher Scientific | T10282 | 用于细胞计数 |
| 胰蛋白酶-EDTA(0.05%) | Thermo Fisher Scientific | 15400054 | 用于传代 |
| Tween 20 | Fisher Scientific | BP337 | 用于平滑肌细胞验证;工作浓度为0.1% |
| 赛拉嗪 | Covetrus | 61035 | 用于小鼠麻醉 |
| 可选材料(如使用) | |||
| 培养瓶(T25/T75) | Corning | — | 细胞扩增 |
参考文献
- Ensor M, et al. Nicotine promotes Ang II-induced abdominal aortic aortopathies in female and male mice: role of sex hormones. Clin Sci (Lond). 2025;139(8):411-429.
- Ailawadi G, et al. Smooth muscle phenotypic modulation is an early event in aortic aneurysms. J Thorac Cardiovasc Surg. 2009;138(6):1392-1399.
- Frismantiene A, Philippova M, Erne P, Resink TJ. Smooth muscle cell-driven vascular diseases and molecular mechanisms of VSMC plasticity. Cell Signal. 2018;52:48-64.
- Alsiraj Y, et al. Female mice with an XY sex chromosome complement develop severe angiotensin II-induced abdominal aortic aneurysms. Circulation. 2017;135(4):379-391.
- Thatcher SE, et al. Exogenous 17-β estradiol administration blunts progression of established angiotensin II-induced abdominal aortic aneurysms in female ovariectomized mice. Biol Sex Differ. 2015;6:12.
- Daugherty A, Manning MW, Cassis LA. Angiotensin II promotes atherosclerotic lesions and aneurysms in apolipoprotein E-deficient mice. J Clin Invest. 2000;105(11):1605-1612.
- AlSiraj Y, et al. Monosomy X in female mice influences the regional formation and augments the severity of angiotensin II-induced aortopathies. Arterioscler Thromb Vasc Biol. 2021;41(1):269-283.
- Alsiraj Y, et al. Sex chromosome complement defines diffuse versus focal angiotensin II-induced aortic pathology. Arterioscler Thromb Vasc Biol. 2018;38(1):143-153.
- Alsiraj Y, et al. Therapeutic assessment of combination therapy with a neprilysin inhibitor and angiotensin type 1 receptor antagonist on angiotensin II-induced atherosclerosis, abdominal aortic aneurysms, and hypertension. J Pharmacol Exp Ther. 2021;377(3):326-335.
- AlSiraj Y, et al. Serotonin 3 receptor antagonism reduces angiotensin II-induced abdominal aortic aneurysms: contribution of periaortic fat-derived serotonin. J Pharmacol Exp Ther. 2025;392(2):100533.
- AlSiraj Y et al. Role of adipocyte angiotensinogen or angiotensin type 1A receptors in the development of diet-induced atherosclerosis or angiotensin II-induced abdominal aortic aneurysms. JVS Vasc Sci. 2025;7:100397.
- Alexander MR, Owens GK. Epigenetic control of smooth muscle cell differentiation and phenotypic switching in vascular development and disease. Annu Rev Physiol. 2012;74:13-40.
- Hubert MO, Rodriguez-Vita J, Wiedmann L, Fischer A. Isolation of murine primary aortic smooth muscle cells. Bio Protoc. 2021;11(3):e3907.
- Adhikari N, et al. Guidelines for the isolation and characterization of murine vascular smooth muscle cells. A report from the International Society of Cardiovascular Translational Research. J Cardiovasc Transl Res. 2015;8(3):158-163.
- AlSiraj Y, Woolley C, Thatcher SE, Cassis LA. Sex differences and the role of the renin-angiotensin system in atherosclerosis and abdominal aortic aneurysms. In: Sex Differences in Cardiovascular Physiology and Pathophysiology. Academic Press; 2019:167-184.
- Boese AC, et al. Sex differences in vascular physiology and pathophysiology: estrogen and androgen signaling in health and disease. Am J Physiol Heart Circ Physiol. 2017;313(3):H524-H545.
- Majesky MW. Developmental basis of vascular smooth muscle diversity. Arterioscler Thromb Vasc Biol. 2007;27(6):1248-1258.
- McMurray HF, Parrott DP, Bowyer DE. A standardised method of culturing aortic explants, suitable for the study of factors affecting the phenotypic modulation, migration and proliferation of aortic smooth muscle cells. Atherosclerosis. 1991;86(2-3):227-237.
重印与许可
本文已发表
视频即将推出