本文介绍了一种快速、可重复的小鼠模型构建流程,用于研究睡眠剥夺引起的情景记忆缺陷。该流程在同一批小鼠中联合应用轻柔处理法诱导睡眠剥夺、新物体识别测试以及海马区生物标志物分析,整个实验周期为10天,并包含结构化的干预记录和预定义的质量控制标准。
方法文章
一种利用新物体识别与海马生物标志物快速建模小鼠睡眠剥夺所致识别记忆缺陷的工作流程
* These authors contributed equally
本文内容
摘要
摘要
睡眠不足会导致认知功能下降,并可能加速神经退行性过程。本文介绍了一种快速且可重复的小鼠睡眠剥夺诱导识别记忆缺陷的建模工作流程,同时将行为学结果与海马区分子变化相联系。该方案在标准化的10分钟新物体识别(NOR)熟悉阶段结束后,立即采用持续5小时的温和干预法进行睡眠剥夺。在精确设定的5小时保留间隔后,通过5分钟的新物体识别测试评估识别记忆,随后立即采集同一批动物的海马组织,用于定量检测促炎性细胞因子(包括白细胞介素-1β(IL-1β)、白细胞介素-6(IL-6)和肿瘤坏死因子-α(TNF-α))以及氧化应激标志物(包括超氧化物歧化酶(SOD)、谷胱甘肽过氧化物酶(GPx)和丙二醛(MDA))。本方法学的主要进展并不在于行为学或生物化学技术本身——这些技术已较为成熟,而在于将这些技术操作标准化并整合为一个连贯的工作流程。该方案要求对温和干预措施进行结构化、可量化的记录,将训练和睡眠剥夺固定于特定的昼夜节律时间点,保持个体动物的NOR行为记录与组织样本之间的对应关系,并预先规定了质量控制和分析标准。该操作设计旨在最小化物理束缚和强制运动,可在较短的实验周期内完成,可作为候选参考工作流程,供各实验室用于评估自身实施温和干预法睡眠剥夺的效果,待独立验证后推广使用。
引言
睡眠是一种基本的生理过程,对大脑功能、学习和记忆巩固至关重要1。睡眠不足与认知功能障碍、情绪障碍以及神经退行性疾病的发展密切相关2。在啮齿类动物中进行的实验性睡眠剥夺(SD)被广泛用于研究急性睡眠丧失所导致的神经生物学后果。海马是与陈述性和空间记忆密切相关的大脑区域,对睡眠剥夺尤为敏感3。
目前有多种方法可用于诱导啮齿类动物的睡眠剥夺。改良多平台法可有效减少快速眼动睡眠,但可能引入显著的应激反应和身体耗竭4。相比之下,轻柔处理法(GH)通过轻度感觉刺激维持清醒状态,例如当出现睡眠迹象时轻敲笼子、扰动垫料或提供新的筑巢材料。在学习后立即实施短暂的GH干预,可干扰依赖海马的记忆巩固过程,同时避免长期睡眠剥夺范式所伴随的诸多混杂因素5。由于本方案中的干预措施由姿势和行为清醒信号触发,而非基于脑电图确认的快速眼动睡眠检测,因此此处所采用的GH方法属于一种已被确立的全睡眠剥夺技术,而非特异性针对快速眼动睡眠的方法,并且该形式已应用数十年之久6。
新物体识别(NOR)测试是一种广泛用于评估识别记忆的行为学实验方法。该方法基于啮齿类动物对新物体的探索倾向强于熟悉物体的自然行为特征,无需使用奖赏、惩罚或大量训练7,8。急性睡眠剥夺已被证明会损害对新物体的辨别能力,从而为记忆巩固障碍提供了一种有效的行为学读出指标9。在分子水平上,睡眠缺失可引发海马区神经炎症和氧化应激反应,表现为促炎性细胞因子和脂质过氧化产物水平升高,同时伴随抗氧化能力下降10,11。
应用该模型的难点并不在于其各个组成部分的可获得性,而在于不同研究之间缺乏操作上的一致性。轻柔处理(gentle handling)常被报道,但缺乏对干预强度的系统记录;行为学和分子学终点指标通常在不同的动物群组中分别采集;探索行为的质量控制标准以及样本量规划也并非总是明确说明。本文的总体目标是提供一种标准化的操作流程,用于建立睡眠剥夺所致识别记忆缺陷的模型,同时在同一动物个体中将行为学结果与海马区分子检测指标进行关联分析。该方法通过整合训练后5小时的轻柔处理窗口期、干预强度记录日志、同一队列动物的行为学测试与组织样本采集,以及预设的分析标准,形成一个为期10天的统一实验流程(图1),从而弥补上述可重复性方面的不足。此前已有睡眠研究方法学文献指出,轻柔处理操作缺乏标准化的问题6。
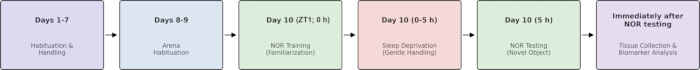
图 1. 实验流程的示意图。 该方案历时10天,包括动物处理与适应阶段,随后进入关键测试日,包含10分钟的新物体识别(NOR)熟悉期、5小时的GH睡眠剥夺、5分钟的NOR测试,并立即从同一动物采集海马组织用于生物标志物分析。请点击此处查看该图的放大版本。
方案
所有动物实验程序均经艾尔默(浙江艾尔默生物科技有限公司)实验动物福利与伦理委员会审查批准,申请单位为南京鼓楼医院(课题负责人:Yuan Liu),批准号:ALM202605070,批准日期为2026年5月7日(有效期4年),符合相关机构及国家法规要求。本方案中使用8–12周龄的成年雄性C57BL/6J小鼠。
1. 准备与动物适应
- 标准实验室条件下饲养的家鼠 22°C ± 1°C 相对湿度50%–60%,光照周期为12小时光照/12小时黑暗(光照开启时间为07:00,定义为ZT0)。自由供应标准啮齿类动物饲料和水。
- 在测试前至少连续7天,每天对每只小鼠进行3–5分钟的抓握操作。
注意:该步骤可最大限度减少因操作引起的应激反应,从而避免干扰探索行为。 - 准备一个40 cm的方形不透明NOR实验箱 × 40 cm × 40 cm,内壁为非反光材料。使用与动物毛色形成对比的场地颜色。
- 选择重量足以防止移位且由无孔材料制成的NOR物体。所选物体在形状和质地方面应具有可区分性,同时整体大小相近。
注意: 图2 显示训练和测试配置。 - 第8天和第9天,将小鼠在适应前1小时转移至测试房间。将每只小鼠放入空旷的敞箱中10分钟,然后放回其原饲养笼中。
- 在动物之间用70%乙醇擦拭实验区域和物体。在正常实验室通风条件下,让乙醇自然晾干约3–5分钟,然后再引入下一只动物。
警告:乙醇高度易燃。确保通风良好,并远离点火源。
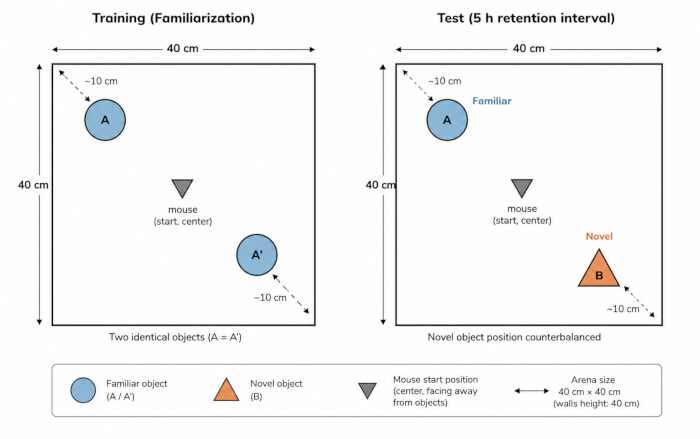
图2.新物体识别装置及实验设计示意图。 在熟悉阶段,将两个相同的物体(A 和 A′)放置在实验区域对角的两个角落。在经过5 h的保留间隔后进入测试阶段,将其中一个熟悉的物体替换为一个新物体(B)。在不同动物之间交替新物体位于左侧或右侧的位置,每组中约一半动物接受新物体在左侧,另一半在右侧,以尽量减少空间偏好偏差。请点击此处查看该图的放大版本。
2. 新物体识别训练(熟悉阶段)
- 在第10天,于ZT1(根据所述光照时间表为08:00)开始NOR训练。在各组之间保持此开始时间,以尽量减少昼夜节律变异。
- 在训练开始前1小时将小鼠转移至测试房间。将两个相同物体(A和A′)放置在场地对角的角落,距离墙壁约10 cm。
- 必要时将物体固定在地面上。
- 将小鼠置于场地中央,使其朝向远离物体的方向。允许小鼠自由探索10分钟。
- 使用顶部视频追踪系统记录行为。将主动探索定义为鼻子朝向物体且距离≤2 cm、嗅闻物体或用鼻子触碰物体。
注意:若小鼠仅坐在物体上或攀爬物体但无主动嗅闻行为,则不应计入物体探索。 - 使用EthoVision XT 17.5软件配合Basler acA1300-60gm顶部相机记录并分析NOR行为。配置追踪软件,设定每个物体周围≤2 cm范围为鼻尖检测区域,以评估主动探索行为,该设置应与步骤2.5中定义的标准一致。
- 在10分钟熟悉期结束后,立即将小鼠从场地中移除。
- 在引入下一只动物前,使用70%乙醇彻底清洁场地和物体。
3. 通过温和操作法进行睡眠剥夺
- 在第10天训练开始前,为每只动物分配一个唯一的识别代码。在整个行为记录和组织采集过程中保持该识别代码不变。
- 使用Excel RAND函数生成的计算机随机数,按照1:1的比例将动物随机分配至SD组和NSD组。
- NOR训练结束后,立即将NSD小鼠放回其原饲养笼中,并保持5小时不受干扰。SD组和NSD组动物应处于相同的环境条件下,并在同一昼夜节律时间窗内进行操作。
- NOR训练结束后,立即对SD小鼠开始GH睡眠剥夺处理。在原饲养笼中持续维持其清醒状态5小时。
- 持续监测动物状态。当小鼠出现与睡眠相关的姿势(如蜷缩身体、闭眼或持续静止不动)时,立即进行干预。
- 逐步施加刺激,首先轻敲饲养笼。如有必要,可轻微扰动垫料、引入清洁的新物体(如纸管),或用软毛刷轻轻触碰动物。
- 避免使用身体束缚、强制运动以及厌恶性或疼痛性刺激。
- 在整个5小时GH期间,为每个饲养笼填写表1中的干预记录。记录每小时大约干预次数、主要使用的干预类型,以及任何偏离方案的情况或动物福利相关问题。
- 在不同实验批次中使用相同的干预记录模板。
警告:禁止使用身体束缚、强制运动或疼痛性刺激,因为这些因素本身可能独立影响记忆、应激反应和炎症相关结果。
| 笼具/队列编号 | H1 | H2 | H3 | H4 | H5 | 主要干预类型 | 异常情况或福利观察记录 |
| 记录编号 | H1 记录次数 | H2 记录次数 | H3 记录次数 | H4 记录次数 | H5 记录次数 | 轻敲 / 垫料 / 新物体 / 软毛刷 | 如有则记录 |
表1:温和抓握干预记录模板。 记录笼号或队列编号、在5小时睡眠剥夺期(H1–H5)每小时内进行的温和抓握干预次数、主要干预类型以及任何方案偏离或动物福利观察记录。
4. 新物体识别测试阶段
- 在完成新物体识别训练后精确 5 小时,开始新物体识别测试阶段,以保持固定的 5 小时记忆保持间隔。
- 将一个熟悉的物体(A)和一个新奇的物体(B)放置在实验区域内。
- 通过交替新奇物体在左侧和右侧的位置,在动物之间进行位置平衡,使每组中约一半动物的新奇物体位于左侧,另一半位于右侧。
- 将小鼠置于实验区域的中心,允许其自由探索 5 分钟。
- 使用与熟悉阶段相同的 overhead 视频追踪系统记录会话过程,并应用步骤 2.5 中规定的探索行为定义。
- 在每只动物之间使用 70% 乙醇清洁实验区域和物体。
5. 同一批次组织采集与海马体解剖
- 新物体识别实验(NOR)结束后,立即识别出同一只已进行行为学测试的动物,用于组织采集。
- 根据批准的动物实验方案,无需麻醉,直接通过断头法处死动物,以避免麻醉剂对炎症相关及磷酸化依赖性生物标志物的潜在干扰。处死后立即采集脑组织。
- 在所有样本管和记录中保留该动物唯一的行为学记录编号,以确保每个分子样本均与该动物的NOR测试结果直接对应。
- 迅速取出脑组织,并置于无菌、冰冷的解剖板上。
- 沿正中矢状面切开,分离两侧半球,使用预冷的微型解剖铲从每个半球中分离海马体。
- 将分离出的海马组织在液氮中速冻,并于−80°C保存直至分析。
注意:液氮可导致严重冻伤。操作时须佩戴适当的低温个人防护装备。
6. 海马生物标志物的定量分析
- 在冰浴条件下,向 RIPA 裂解缓冲液中加入蛋白酶和磷酸酶抑制剂混合物,使其工作浓度为 1×(每毫升裂解缓冲液加入 10 µL 的 100× 储存液)。
- 按照 1:10(w/v)的组织与缓冲液体积比(每毫克组织使用 10 µL 裂解缓冲液),在添加了抑制剂的冰浴 RIPA 裂解缓冲液中匀浆海马组织。对于每侧半球约 25–30 mg 的典型海马组织质量,每侧半球使用约 250–300 µL 裂解缓冲液,或对总共约 50–60 mg 的双侧海马组织使用约 500–600 µL 裂解缓冲液。
- 将 RIPA 匀浆液在 4°C 条件下以 14,000 × g 离心 15 分钟,并收集上清液。使用该上清液进行总蛋白定量以及三种细胞因子 ELISA 检测。
注意:对于 SOD、GPx 和 MDA 检测,请根据制造商建议,使用试剂盒配套的匀浆缓冲液以保持酶活性。 - 使用相应的试剂盒专用匀浆缓冲液(而非 RIPA 裂解缓冲液),按 1:9 的组织与缓冲液比例(w/v)制备另一份 10%(w/v)的海马组织匀浆,用于 SOD、GPx 和 MDA 的测定。
- 使用 BCA 蛋白检测试剂盒测定总蛋白浓度。
- 使用 材料表 中列出的靶向特异性 ELISA 或生化检测试剂盒,定量 IL-1β、IL-6、TNF-α、SOD、GPx 和 MDA。严格按照各试剂盒制造商提供的说明进行操作。
- 在相应的检测缓冲液中配制标准品。稀释样品,使光密度值落在标准曲线的线性范围内。
- 将海马样品用相应检测稀释液稀释约 1:5,用于细胞因子 ELISA 检测。根据需要在 1:2 至 1:10 范围内调整稀释倍数,以获得处于标准曲线线性范围内的光密度值。
- 直接使用第 6.4 步所述的 10%(w/v)海马匀浆的上清液进行 SOD、GPx 和 MDA 检测。不要将第 6.8 步中描述的细胞因子 ELISA 稀释方案用于这三项检测。
- 对于 IL-1β、IL-6 和 TNF-α ELISA 检测,每孔加入 100 µL 标准品或适当稀释的海马样品,设复孔,在 37°C 孵育 90 分钟。随后每孔加入 100 µL 生物素化检测抗体,在 37°C 孵育 60 分钟。
- 向每个细胞因子 ELISA 孔中加入 100 µL HRP 偶联物,在 37°C 孵育 30 分钟。然后在避光条件下,用 TMB 底物在 37°C 显色约 15 分钟。
- 对于 SOD 检测,将 20 µL 海马匀浆上清液与 20 µL 酶工作液和 200 µL 底物溶液混合,在 37°C 孵育 20 分钟,并在 450 nm 处测定吸光度。
- 对于 GPx 检测,将 200 µL 海马匀浆上清液与含 GSH 的反应混合物混合,在 37°C 孵育 5 分钟。终止反应后,在 4°C 以 3500 × g 离心 10 分钟。取上清液进行显色反应约 15 分钟,并使用 200 µL 反应上清液在 412 nm 处测定吸光度。
- 对于 MDA 检测,将 100 µL 海马匀浆上清液与 1.0 mL MDA 工作试剂混合,在 95°C 水浴中孵育 40 分钟。冷却后离心混合物。转移约 250 µL 上清液至微孔板,在 532 nm 处测定吸光度。
- 对于细胞因子 ELISA 检测,使用试剂盒指定的波长(通常为 450 nm)读取吸光度,若可提供参考波长校正,则应使用。
- 采用适当的模型(如四参数逻辑回归)生成标准曲线。将每个生物标志物的检测结果归一化至总蛋白含量。
- 根据所选试剂盒的兼容性,以 pg/mg 蛋白表示细胞因子浓度,以 U/mg 蛋白表示抗氧化酶活性,以 nmol/mg 蛋白表示 MDA 含量。
7. 数据分析与质量控制
- 提取对熟悉物体的探索时间(T熟悉)以及新物体(T新颖的在NOR测试阶段。
- 按如下方法计算辨别指数(DI):
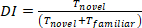 .
注意:DI 值高于 0.5 表示对新物体具有偏好。 - 当总物体探索时间(T新颖的 + T熟悉的小于10秒。在进行组水平分析前应用此标准,并报告所有被排除的数据。
- 使用Shapiro–Wilk检验评估每组数据的正态性,使用Levene检验评估方差齐性。对每组数据,采用双尾单样本t检验将辨别指数(DI)与0.5的机遇水平进行比较;若不满足正态性假设,则改用单样本Wilcoxon符号秩检验与0.5进行比较。
- 所有统计检验的显著性水平均设为0.05,除非另有说明。
- 当满足正态性和方差齐性假设时,采用双尾非配对 t 检验比较独立的 NSD 组与 SD 组之间的 DI;否则使用 Mann–Whitney U 检验。
- 使用双因素重复测量方差分析(以组别和物体类型为因素)分析熟悉与新奇物体探索时间。进行Sidak校正的成对事后比较,并在所有组间比较估计值旁报告95%置信区间。
- 在满足正态性和方差齐性假设时,采用双尾非配对t检验比较独立的NSD组与SD组之间的各海马生物标志物;否则使用Mann-Whitney U检验。
- 在对同一队列中的多个生物标志物进行评估时,应使用 Benjamini–Hochberg 方法对生物标志物组的整体假发现率进行控制。同时报告名义 p 值和经 FDR 校正的 p 值。
- 使用 G*Power 3.1 版本进行双侧独立样本比较的先验效能分析,以新物体识别指数作为主要结局指标。预期效应量依据既往已发表的研究结果设定,这些研究显示,学习后睡眠剥夺会显著损害对新物体的偏好。
- 使用 Cohen 效应量标准值进行先验检验效能分析 d = 1.35,双侧α为0.05,检验效能为80%,组间分配比例为1:1。这些参数计算得出每组最少需要10只动物。
注:效应量根据先前发表的物体识别数据进行估算9Palchykova 等报道了在测试阶段新物体探索时间存在显著的组间效应(F(1,16) = 8.26, p < 0.007),即训练后立即睡眠剥夺的小鼠与时间匹配的对照组相比(n = 每组9个),对应于Cohen的 d ≈ 1.36. 标准化效应量 d 因此,先验功效分析采用 1.35。 - 将计划的样本量增加20%,每组12只动物(共24只动物),以允许预先设定的行为学或技术性剔除标准。预先设定总物体探索时间 <NOR测试中持续10秒、与福利相关的排除、视频记录无法使用以及组织/样本检测的技术故障作为排除标准。
- 不要根据观察到的治疗效应的方向或大小来排除动物。
- 使用 Python 3.12 版本进行统计分析,采用 SciPy 1.17 版本进行假设检验和效应量计算,并使用 statsmodels 0.14 版本进行 Benjamini–Hochberg 错误发现率校正。
- 在使用本方案生成正式数据集时,应报告效应量(如 Cohen's d 用于组间比较)以及在步骤 7.4–7.9 中指定的所有统计检验的 p 值。
结果
成功实施本方案应产生一致的行为-分子结果模式,无需孤立地解释任何单一读数。完整的实验流程如图1所示,NOR装置及实验设计如图2所示。在NSD组中,小鼠应对新物体表现出明显偏好,表现为辨别指数(DI)高于0.5的随机水平。接受训练后5小时GH处理的小鼠应表现出减弱的新物体偏好,其DI低于NSD对照组。各组之间的总物体探索时间应保持相近;若出现探索行为的整体减少,则提示可能存在运动、焦虑或操作上的混杂因素,而非选择性的识别记忆缺陷。在本研究队列中(NSD组,n = 12;SD组,n = 12,其中一只动物根据第7.3步预设的总探索时间阈值被排除,因此NOR分析中SD组n = 11;该排除标准一致应用于下文报告的辨别指数和总探索时间分析),NSD小鼠的平均DI为0.70 ± 0.05(均值 ± 标准差),显著高于0.5的随机水平(单样本t检验,t(11) = 15.21,p < 0.0001),而SD小鼠的平均DI为0.51 ± 0.05,与随机水平无显著差异(t(10) = 0.49,p = 0.638)。两组间的DI差异具有统计学显著性(非配对t检验,t(21) = 9.28,p < 0.0001;Cohen's d = 3.87;均值差 = 0.19,95%置信区间[0.15, 0.23])(图3A)。各组间的总探索时间差异无统计学显著性(NSD组:33.5 ± 8.7 s;SD组:29.9 ± 6.2 s;t(21) = 1.13,p = 0.272)(图3B),表明该处理对识别记忆具有选择性影响,而非导致探索行为的普遍性减少。
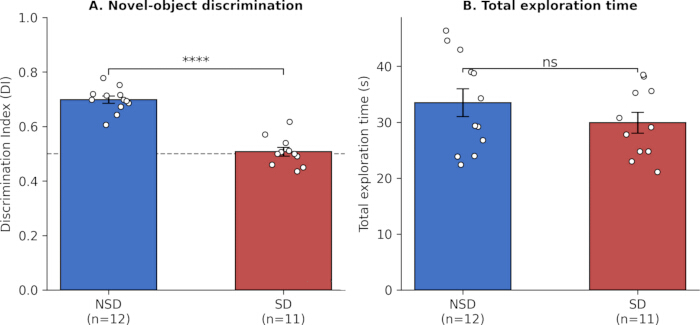
图3。新物体识别表现。 (A)NSD(n = 12)和SD(n = 11;根据预先设定的总探索时间阈值排除1只动物)组的辨别指数(DI)。虚线表示0.5的机遇水平。(B)测试阶段中NSD(n = 12)和SD(n = 11;排除标准同A图)组的总物体探索时间。柱状图表示均值±标准误(SEM);空心圆圈表示单个动物。****p < 0.0001;ns,无显著性差异(双尾非配对t检验)。请点击此处查看该图的放大版本。
干预记录(表1)应显示,高抓挠行为(GH)通过轻度、逐步增强的感觉刺激干预得以维持,而非通过束缚或强制运动实现。若不同组间每小时干预次数存在显著差异,在解释行为差异之前,应首先审查笼具条件、观察者一致性及操作手法。在本研究记录的12个组中,5小时GH时间段内每小时干预次数介于1至6次之间,主要干预方式为轻敲笼具和扰动垫料,软毛刷和新物体干预使用频率较低;所有笼具均未实施身体束缚或强制运动,且未观察到任何动物福利异常情况。
从同一批动物采集的生化指标应为行为表型提供分子层面的背景信息。成功的睡眠剥夺(SD)模型预期会表现出相较于匹配的非睡眠剥夺(NSD)对照组更为协调的变化模式,包括海马区促炎性细胞因子负荷升高、抗氧化酶活性降低以及脂质过氧化标志物增加。将每份组织样本与相应的物体识别记忆(NOR)记录相对应,可在避免因独立的行为学与生化实验批次带来的批次差异的同时,实现个体动物水平上的行为学与分子数据一致性评估。在本研究队列中(NSD组,n = 12;SD组,n = 12),所有六项海马生物标志物在预期方向上均表现出组间显著差异,并且在对六项标志物进行Benjamini–Hochberg错误发现率(FDR)校正后,差异仍具统计学意义:IL-1β(NSD组 43.4 ± 7.5 vs. SD组 58.6 ± 5.3 pg/mg蛋白;t(22) = −5.73,名义p < 0.0001,FDR校正后p < 0.0001,d = −2.34)、IL-6(57.8 ± 8.1 vs. 71.8 ± 7.4 pg/mg;t(22) = −4.42,名义p = 0.0002,FDR校正后p = 0.0002,d = −1.81)、TNF-α(40.5 ± 7.8 vs. 55.1 ± 7.8 pg/mg;t(22) = −4.60,名义p = 0.0001,FDR校正后p = 0.0002,d = −1.88)、SOD(18.0 ± 2.0 vs. 14.0 ± 1.8 U/mg;t(22) = 5.16,名义p < 0.0001,FDR校正后p < 0.0001,d = 2.11)、GPx(13.2 ± 0.9 vs. 10.8 ± 1.4 U/mg;t(22) = 4.92,名义p < 0.0001,FDR校正后p < 0.0001,d = 2.01)以及MDA(3.5 ± 0.3 vs. 4.9 ± 0.8 nmol/mg;t(22) = −5.59,名义p < 0.0001,FDR校正后p < 0.0001,d = −2.28)。这些数据展示于图4中。图 3和图4中所示的各个数据点为本队列中获得的实际实验测量值,所有报告的均值、效应量、p值和置信区间均直接基于这些原始数据计算得出。
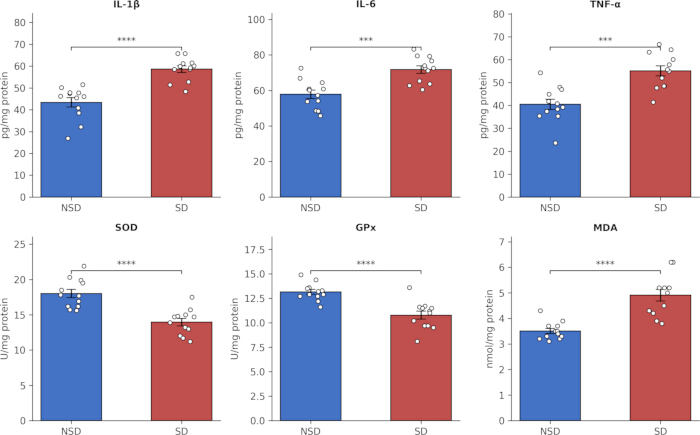
图4。NSD与SD小鼠海马区生物标志物比较。 NSD(n = 12)和SD(n = 12)小鼠海马区中IL-1β、IL-6和TNF-α(促炎性细胞因子)、SOD和GPx(抗氧化酶)以及MDA(脂质过氧化标志物)的水平。柱状图表示均值±标准误(SEM),空心圆圈代表单个动物数据点。显著性标记反映对六个标志物组合进行Benjamini–Hochberg FDR校正后的p值。***p < 0.001,****p < 0.0001(经FDR校正,双尾非配对t检验)。请点击此处查看该图的放大版本。
如果NSD小鼠未表现出对新物体的偏好,或总探索时间低于预设阈值,或生物标志物变异异常增大,则在重复该队列实验前,应根据表2的总结,排查适应性训练、物体选择、干预操作的一致性、样本标识以及组织处理时机等问题。这些结果属于不理想的实验结果,需在进行数据分析前完成问题排查。在本队列中,一只SD动物(M19)因总探索时间低于预先设定的阈值(8.7 s;步骤7.3)而被排除在NOR分析之外,这体现了该标准所针对的不理想结果类型;所有NSD动物均表现出对新物体的偏好,且本数据集中未出现因生物标志物变异异常增大而需要重复队列的情况。
| 问题 | 可能原因 | 解决方案 |
| NOR实验中整体探索行为较低 | 适应不足、焦虑水平过高或环境干扰过大 | 延长每日抓取适应时间;确认测试房间安静且光线昏暗;训练前验证动物对实验区域的适应情况。 |
| NSD对照组未表现出对新物体的偏好 | 物体本身存在先天偏好差异或区分度不足 | 在未受处理动物中预先筛选物体;选用质地或形状明显不同但大小和可接触性相匹配的物体。 |
| GH干预次数变异较大 | 观察者判断标准不一致或笼具条件不统一 | 使用相同的清醒状态标准对观察者进行培训;采用统一的干预记录表;标准化垫料、笼内丰富化物品及环境条件。 |
| 生物标志物测量值变异性高 | 解剖延迟、样本身份混淆或样本降解 | 保持行为学实验与样本编号的一一对应;统一解剖时间;迅速进行液氮速冻;匀浆过程中保持样本置于冰上。 |
| SD小鼠表现出明显应激反应 | 操作过于强烈 | 仅使用轻微的感觉刺激干预;一旦观察到应激表现,立即停止操作并遵循批准的动物福利规程。 |
表2:故障排除。 在新物体识别实验、温和抓取法睡眠剥夺以及海马生物标志物检测流程中可能遇到的常见问题,及其可能原因和建议的纠正措施。
讨论
本文提供了一种快速且可重复的研究框架,用于探讨急性睡眠剥夺所致的识别记忆缺陷及海马区分子变化。在标准化的10分钟学习阶段结束后,立即实施5小时的轻柔干预操作,该方法针对学习后的特定巩固窗口,旨在降低与长期剥夺模型或强制运动相关程序所伴随的生理负担4,5。然而,如方法局限性部分所述,本研究未包含直接的压力激素测量数据以证实其生理应激反应较低。
最关键的技术因素包括适应环境、一致的物体选择、固定的5小时保留间隔时间,以及在GH期间持续但非厌恶性的监测。由于NOR依赖于自发探索行为,残留的焦虑或对实验区域的不良适应可能会抑制对物体的探索,从而掩盖与记忆相关的效果8。预先设定的探索时间排除标准和干预记录提供了实用的质量控制手段,有助于区分行为实验失败与真实的记忆表型。当总体探索水平较低、正常睡眠剥夺(NSD)对照组未表现出对新物体的偏好、GH干预次数差异显著、生物标志物测量结果变异度高,或SD小鼠表现出明显痛苦时,研究人员应在重复或解读实验前查阅表2中的相应故障排除流程。
本方案的渐进式贡献并不在于简单地组合既往已确立的技术,而在于四个特定的操作要素,其目的旨在提升可重复性,而非技术的可获得性。首先,强制性的干预记录(方案 步骤3 和 表1)引入了一种可量化、可比较的记录方式,用于在不同队列和研究之间标准化GH(全睡眠剥夺)强度。该技术本身已有明确的应用历史,而本方案则强调其实施过程中的操作标准化,这与GH作为全睡眠剥夺技术的既往历史一致,也回应了此前研究中GH实施缺乏标准化的问题6。其次,本方案采用同一队列设计,即在单一的10天流程中,从相同且个体可追踪的动物中收集行为学和分子学终点指标;该设计旨在减少在不同队列中分别采集行为学与生化终点所带来的变异。第三,本方案将训练和剥夺时间窗口固定于明确的昼夜节律锚定点(ZT1,方案 步骤2),并要求NSD组与SD组在光照相条件相匹配的环境下维持(方案 步骤3),从而在实验流程中控制昼夜节律的时间因素。第四,本方案预先规定了质量控制与分析标准,包括最低探索时间阈值(方案 步骤7)、透明的排除报告、前瞻性功效分析、对DI值与0.5随机水平的检验、假设检验、对多个生物标志物比较的校正,以及效应量报告。综上,这些要素将各自独立但已确立的方法整合为一个明确且可转移的工作流程,提议作为候选参考框架,供各独立实验室在其实验实施中进行比对和基准评估,其定位并非报告某项特定的生物学发现,而是在未来经独立采纳与重复验证之前,为标准化操作提供依据。
该实验流程存在若干局限性。GH 方法劳动强度较大,且需要实验人员持续关注,这限制了通量。此外,GH 能够维持动物的清醒状态,但其本身并不能量化睡眠结构。未来的研究可引入脑电图(EEG)/肌电图(EMG)的预实验验证,以记录警觉状态,并在将该流程应用于完整的实验队列之前,确认 GH 操作所导致的睡眠剥夺程度。未来的研究也可结合皮质酮水平的测定,以评估干预措施引起的应激相关效应。这些测定不在本研究当前的方案范围内,因此不应将其解读为本研究中已完成的验证工作。新物体识别实验(NOR)对识别记忆敏感,但不能全面评估空间导航能力或工作记忆;当需要更广泛的认知功能特征分析时,可补充 Y 形迷宫、Barnes 迷宫或其他单次试验任务等辅助检测方法。改良的多平台法是一种可实验性诱导睡眠剥夺的替代方法,已被用于量化睡眠剥夺及恢复过程4;相比之下,本研究所采用的 GH 流程侧重于轻度感觉干预,而不施加强制运动。然而,由于本方案未直接测量生理应激标志物,因此尚无法得出 GH 所引发的生理应激反应较低的结论。
因此,该方法最好被视为一种标准化的入门平台,而非睡眠剥夺所有认知后果的完整模型。其价值在于将学习后的生长激素干预、旨在减少与强制运动范式相比物理操作的行为读出、同一动物海马体的采集以及透明的质量控制明确关联起来。新物体识别(NOR)提供了一种经过充分验证的单次试验方法,用于评估识别记忆7,8,而睡眠剥夺此前已被证实与物体识别能力受损9、海马体神经炎症改变10以及海马体氧化应激和记忆缺陷11相关。因此,该框架有助于不同群体间的比较,并为机制研究以及旨在减轻睡眠剥夺相关认知损伤的干预措施筛选提供实用基础;先前的研究也已探讨了针对睡眠剥夺相关认知损伤和神经炎症的干预手段12。与此目标一致,本提交内容重点在于建立并标准化可重复的工作流程,同时提供代表性数据以展示方案的执行效果;更全面的数据集和更广泛的生物学解释可在未来另行报道。
披露
作者声明无利益冲突。
致谢
本工作由南京鼓楼医院青年培养基金、国家自然科学基金(资助号:82502706)以及江苏省基础研究计划(资助号:BK20250258)资助。在稿件的撰写与修改过程中使用了人工智能辅助工具,包括用于起草和润色文字内容,以及生成和优化示意图。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 70% 乙醇 | 任何供应商 | N/A | NOR实验箱及物体的清洁 |
| 成年雄性 C57BL/6J 小鼠(8–12 周 | 浙江艾力莫生物技术有限公司 | N/A | 实验动物 |
| BCA 蛋白检测试剂盒 | 赛默飞世尔科技(Pierce) | 23225 | 总蛋白测定与归一化 |
| 行为分析软件 | Noldus 信息技术有限公司 | EthoVision XT 版本 17.5 | NOR 探索评分与分析 |
| 可达到14,000的离心机 &4℃下;× g °C | Eppendorf | Centrifuge 5424 R;货号 5404000610 | 海马匀浆的澄清 |
| 洁净的纸管 | 任何供应商 | N/A | 温和操作干预 |
| 低温个人防护装备 | 任何供应商 | N/A | 液氮的安全操作 |
| 谷胱甘肽过氧化物酶检测试剂盒 | Abcam | ab102530 | GPx 定量检测 |
| 海马组织匀浆器 | IKA-Werke GmbH & Co. KG | T 10 基础型 ULTRA-TURRAX;货号 0003737000 | 在裂解缓冲液中匀浆海马组织 |
| 液氮 | 任何供应商 | N/A | 分离海马体的速冻处理 |
| MDA 检测试剂盒 | Sigma-Aldrich | MAK085 | MDA 定量检测 |
| 酶标仪 | 安捷伦科技 / BioTek | BioTek Epoch 2 微孔板分光光度计 | 在试剂盒指定波长下的吸光度测量 |
| 微型刮勺 | 任何供应商 | N/A | 海马体解剖;使用预冷的 |
| 小鼠 IL-1β ELISA试剂盒 | R&D系统 | MLB00C | IL-1β 定量分析 |
| 小鼠IL-6 ELISA试剂盒 | R&D系统 | M6000B | IL-6定量检测 |
| 小鼠 TNF-α ELISA试剂盒 | R&D系统 | MTA00B | TNF-α 定量分析 |
| 对象集 A/A′ 和 B | 任何供应商 | N/A | NOR熟悉化与测试阶段 |
| 不透明的NOR实验箱(40 cm × 40 cm × 40 cm | 任何供应商 | N/A | 行为学测试 |
| 头顶式视频记录系统 | Basler AG | acA1300-60gm | 新物体识别熟悉期与测试期的视频记录 |
| 蛋白酶/磷酸酶抑制剂混合物 | 赛默飞世尔科技(Thermo Scientific) | 78440 | 加入裂解缓冲液中,终浓度为1× 工作浓度(10 µL/mL 从100× 储备液 |
| RIPA 裂解缓冲液 | 赛默飞世尔科技 | 89900 | 海马组织匀浆制备 |
| 适用于低温储存的样品管 | 赛默飞世尔科技(Nunc) | Nunc CryoTube,1.8 mL;货号 375418 | 动物特异性样本编号的维护与海马组织切片的储存 |
| 软毛刷 | 任何供应商 | N/A | 温和操作干预 |
| SOD 检测试剂盒 | Sigma-Aldrich | 19160 | SOD 定量检测 |
| 统计与功效分析软件 | G*Power;Python 软件基金会 | G*Power 3.1 版;Python 3.12 版(SciPy 1.17;statsmodels 0.14) | 第7节方案中所述的先验功效分析与统计分析 |
| 标准啮齿类动物饲料 | 江苏谢通药业生物工程有限公司 | 辐照大鼠/小鼠维持饲料;XTI01WC-010 | 随意喂养动物 |
| −80 °C 冷冻机 | 海尔生物医疗 | DW-86L626 | 长期保存速冻的海马组织 |
参考文献
- Walker MP, Stickgold R. Sleep, memory, and plasticity. Annual Review of Psychology. 2006;57:139-166.
- Musiek ES, Holtzman DM. Mechanisms linking circadian clocks, sleep, and neurodegeneration. Science. 2016;354(6315):1004-1008.
- Havekes R, Abel T. The tired hippocampus: the molecular impact of sleep deprivation on learning and memory. Current Opinion in Neurobiology. 2017;44:33-39.
- Machado RB, Hipólide DC, Benedito-Silva AA, Tufik S. Sleep deprivation induced by the modified multiple platform technique: quantification of sleep loss and recovery. Brain Research. 2004;1004(1-2):45-51.
- Hagewoud R, et al. Sleep deprivation impairs spatial working memory and reduces clearance of hippocampal β-amyloid in rats. Neurobiology of Aging. 2013;34(1):22-30.
- Fenzl T, et al. Fully automated sleep deprivation in mice as a tool in sleep research. J Neurosci Methods. 2007;166(2):229-35.
- Ennaceur A, Delacour J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioral data. Behavioural Brain Research. 1988;31(1):47-59.
- Leger M, et al. Object recognition test in mice. Nature Protocols. 2013;8(12):2531-2537.
- Palchykova S, et al. Sleep deprivation impairs object recognition in mice. Neurobiology of Learning and Memory. 2006;85(3):263-271.
- Wadhwa M, et al. Sleep deprivation induces spatial memory impairment by altered hippocampus neuroinflammation and microglia activation in rats. Journal of Neuroimmunology. 2011;238(1-2):14-23.
- Silva RH, et al. Role of hippocampal oxidative stress in memory deficits induced by sleep deprivation in mice. Neuropharmacology. 2016;104:1-8.
- Wang Y, et al. Ellagic acid ameliorates sleep deprivation-induced cognitive impairment and neuroinflammation in mice. Aging. 2020;12(10):10327-10340.