本研究检测了2型糖尿病患者血清中miR-3619-5p的表达水平,并探讨了该分子在胰腺β细胞功能中的调控作用。miR-3619-5p在T2DM中呈下调表达,可能通过靶向MTA3参与胰腺β细胞功能的调控。
本文内容
摘要
摘要
2型糖尿病(T2DM)的核心病理特征是胰腺β细胞功能衰竭;因此,识别能够有效调控胰腺β细胞稳态的循环生物标志物和分子靶点具有重要的实际意义。作为基因表达的关键调控分子,miRNA在胰腺β细胞的增殖、凋亡及胰岛素分泌过程中发挥重要作用。本研究旨在探讨miR-3619-5p在T2DM患者血清中的表达模式及其临床价值,并阐明其在胰腺β细胞增殖中的调控作用。采用RT-qPCR检测miR-3619-5p和MTA3的表达水平,利用ROC曲线评估其诊断效能。通过生物信息学分析和双荧光素酶报告基因实验验证靶基因与配体之间的关系。采用CCK-8法检测细胞增殖能力,流式细胞术检测细胞凋亡情况,ELISA法测定胰岛素分泌水平。结果表明,miR-3619-5p和MTA3在T2DM患者及胰腺β细胞中均呈低表达。miR-3619-5p可能作为T2DM诊断的生物标志物;其过表达可促进细胞增殖、抑制细胞凋亡并增强胰岛素分泌。miR-3619-5p靶向调控MTA3,二者呈显著正相关。miR-3619-5p模拟物可逆转si-MTA3对胰腺β细胞功能造成的损伤。综上所述,miR-3619-5p在T2DM中呈低表达,具有诊断价值;miR-3619-5p可能通过靶向MTA3参与调控胰腺β细胞功能。
引言
慢性代谢性疾病2型糖尿病(T2DM)主要表现为胰岛素抵抗并伴随胰岛素分泌功能进行性减退,占所有糖尿病病例的80%以上1。其发病机制复杂,涉及遗传因素与环境因素的共同作用,以及细胞和分子调控的异常2,3。由于胰腺β细胞是胰岛素分泌的主要细胞,其增殖能力异常下降是T2DM中胰岛素分泌不足的关键原因4。目前,T2DM的临床诊断主要依赖血糖和糖化血红蛋白(HbA1c)等传统指标;然而,这些指标在早期筛查和疾病进展预测方面的敏感性有限5。迫切需要鉴定出敏感且特异的生物标志物及关键调控靶点,以期为T2DM的精准诊断与治疗提供新策略。
在长期高血糖引起的糖毒性作用下,胰岛β细胞的增殖受到抑制,而凋亡增加,导致葡萄糖依赖性胰岛素分泌能力逐渐丧失;这一过程是推动疾病持续进展的关键因素6,7。微小RNA(miRNA)参与细胞内的多种生理过程8,并对胰岛细胞的增殖、凋亡及胰岛素分泌等生理过程发挥重要的调控作用9,10。多项研究表明,多种miRNA在2型糖尿病(T2DM)中呈现异常表达,并与该疾病的发病机制密切相关11,12,13。miR-3619-5p参与细胞增殖和凋亡等生物学过程,目前对其的研究主要集中在肿瘤学领域14,15。在皮肤鳞状细胞癌、肺癌、结直肠癌和胃癌等多种恶性肿瘤中均观察到miR-3619-5p的异常表达,其通过调控靶基因影响肿瘤细胞的增殖、转移和凋亡16,17,18,19。然而,关于miR-3619-5p在T2DM中胰腺功能的临床表达特征、临床相关性及其调控机制的研究仍存在明显空白。
作为MTA家族的重要成员,MTA3介导蛋白质-蛋白质相互作用和基因转录调控,广泛参与细胞增殖、凋亡和代谢等关键生理过程20。目前关于MTA3的研究主要集中于肿瘤学领域21,22,23,其在代谢性疾病特别是2型糖尿病(T2DM)中的作用研究较少。一些研究发现,MTA3作为一种与糖尿病相关的基因,参与调控高糖诱导的肝纤维化过程24。这提示MTA3可能参与T2DM的进展过程;然而,其在T2DM背景下是否受miR-3619-5p调控仍有待证实。
综上所述,目前关于miR-3619-5p的研究主要局限于肿瘤和炎症模型,其在2型糖尿病(T2DM)中的临床表达谱以及在胰腺β细胞稳态和糖代谢紊乱中的作用仍有待探索。因此,本研究旨在通过评估miR-3619-5p在T2DM患者血清中的表达水平及其临床意义,验证miR-3619-5p与MTA3之间的靶向关系,并进一步探讨其在胰腺β细胞增殖中的调控作用,从而为T2DM发病机制的研究以及临床诊断与治疗提供新的理论依据。
方案
本研究经通州湾人民医院医学伦理委员会批准(批准号:2024122001)。研究中所采用的程序遵循《赫尔辛基宣言》的原则。所有参与研究的个体均签署了知情同意书。本研究中所包含的每位个体的数据均已获得发表同意。
研究对象
本研究回顾性选取了2022年1月至2023年6月期间在我院确诊的102例2型糖尿病(T2DM)患者。纳入对象需符合T2DM的诊断标准,包括空腹血糖≥7.0 mmol/L和餐后2小时血糖≥11.1 mmol/L;近3个月内未接受胰岛素或新一代降糖药物治疗;无心、肝、肾等重要器官严重并发症;无恶性肿瘤、自身免疫性疾病或感染性疾病病史;且临床资料完整。排除1型糖尿病或其他特殊类型糖尿病患者;因严重感染、创伤、手术等原因处于应激状态者;近3个月内使用过糖皮质激素、免疫抑制剂等药物者;以及妊娠或哺乳期女性。同时纳入同期在我院进行常规健康体检的80名个体作为对照组。
样本采集
所有研究参与者均禁食至少 8–12 小时;清晨采集 5 mL 静脉血,分装至无 RNase 的 EP 管中,离心(3000 × g,10 分钟)以分离血清,并于 -80 °C 保存以备后续使用。
细胞培养与处理
大鼠胰岛β细胞系INS-1在含有10%胎牛血清(FBS)和1%青霉素-链霉素的RPMI 1640培养基中培养。为建立高糖(HG)诱导的细胞损伤模型,将INS-1细胞培养于含25 mM葡萄糖的培养基中25。在未处理组中,INS-1细胞则在RPMI 1640培养基(含11.1 mM葡萄糖)中培养。
转染实验使用转染试剂盒,分别转染miR-3619-5p模拟物(mimics)、miRNA空白对照(miR-NC)、si-MTA3以及空白对照(si-NC)。miR-3619-5p模拟物、miR-3619-5p抑制剂、siRNA及其相应的阴性对照均购自RiboBio。miRNA模拟物浓度:50 nM;miRNA抑制剂浓度:100 nM;siRNA浓度:50 nM。转染后48小时进行后续实验。相关序列见补充表1。
定量逆转录聚合酶链式反应(RT-qPCR)
采用TRIzol试剂从血清中提取总RNA,采用miRNeasy Mini Kit从细胞中提取总RNA。检测miR-3619-5p时,使用逆转录试剂盒进行逆转录反应;在完成cDNA合成后,使用miRNA定量试剂盒进行定量分析,以内参U6进行标准化。检测MTA3时,使用mRNA逆转录试剂盒将mRNA逆转录为cDNA,并使用mRNA定量试剂盒进行RT-qPCR分析,以内参GAPDH进行标准化。miR-3619-5p和MTA3表达水平的变化采用2-ΔΔCt法进行分析。引物序列见补充表1。
双荧光素酶报告基因(DLR)检测
将包含 miR-3619-5p 结合位点的 MTA3 野生型(WT)和突变型(MUT)3'-非翻译区(3'-UTR)克隆至 pmirGLO 载体中。利用转染试剂将该载体与 miR-3619-5p 模拟物(mimic)及 miR-3619-5p 抑制剂(inhibitor)共转染至 293T 细胞中。转染对照组包括:空载报告质粒组(Control)和 miRNA 阴性对照转染组(miR-NC)。转染 48 小时后,使用双荧光素酶报告基因检测系统测定相对荧光素酶活性,以海肾荧光素酶活性作为内参对照。每组包含三个独立的生物学重复,每个生物学重复包含三个技术重复。
细胞增殖实验
将转染后的细胞接种至96孔板中。分别在培养0 h、24 h、48 h和72 h后,每孔加入10 μL CCK-8试剂,于37 °C孵育2 h,使用酶标仪在450 nm波长下测定吸光度。
细胞凋亡检测
用 PBS 洗涤细胞三次,然后将细胞重悬于 200 μL 结合缓冲液中,其中含有 10 μL Annexin V-FITC 和 5 μL PI。室温避光孵育 15 分钟。加入 300 μL 结合缓冲液,立即使用流式细胞仪分析细胞,以计算凋亡率。
酶联免疫吸附测定(ELISA)
将转染的细胞接种至96孔板中,并在37 °C下饥饿培养过夜。随后将培养基更换为含有25 mM葡萄糖的溶液,继续培养1小时;然后收集处理后的INS-1细胞培养上清,用于检测胰岛素分泌水平。将INS-1细胞重悬于酸性甲醇中,进行超声破碎,收集上清液以测定细胞内总胰岛素含量。使用大鼠胰岛素ELISA试剂盒,并按照制造商提供的说明书进行操作。该检测利用试剂盒中提供的参考标准品绘制标准曲线,根据样品的吸光度值计算胰岛素的绝对浓度,单位为μIU/mL。最后,通过将培养基中测得的胰岛素水平与细胞内总胰岛素含量进行归一化处理,评估胰岛素分泌能力。统计图中的数据以相对于对照组的倍数变化(fold change)表示。
蛋白质印迹
收集各组转染后的细胞,加入 RIPA 裂解缓冲液。采用 BCA 法测定总蛋白浓度。取 50 μg 总蛋白与 5× 上样缓冲液混合,煮沸 10 分钟。经 10% SDS-聚丙烯酰胺凝胶电泳后,将蛋白质转移至聚偏二氟乙烯膜。用 5% 脱脂牛奶封闭 1 小时;加入一抗 MTA3(1:1000)和 GAPDH(1:1000),4 °C 过夜孵育;用 TBST 洗涤膜后,加入 HRP 标记的羊抗兔 IgG 二抗(1:1000),室温孵育 1 小时;采用 ECL 化学发光法显影。
统计分析
定量数据以均值 ± 标准差表示。在进行统计分析之前,采用 Shapiro–Wilk 检验验证数据的正态性,采用 Levene 检验评估方差齐性,以判断参数检验的适用性。这些检验的结果表明,本研究中的所有定量数据均符合正态分布,并满足方差齐性的假设;因此,采用参数检验进行统计分析。两组间的数据比较使用独立样本 t 检验,而多组间的比较则采用单因素方差分析(ANOVA)结合 Tukey 事后检验。散点图用于评估变量之间的线性关系。在满足正态性和线性假设的前提下,采用 Pearson 相关性分析。Pearson 相关性分析纳入了全部 102 名参与者,未排除任何离群值。散点图中观察到的数据点聚集现象是由于样本观测值重叠所致。所有实验均包含三个重复样本,且每项实验独立重复三次。以 p 值 <0.05 为差异具有统计学意义。
结果
研究参与者人口统计学特征及临床代谢参数的比较
比较结果显示,2型糖尿病(T2DM)患者的空腹血糖(FBG)和糖化血红蛋白(HbA1c)水平显著升高(P < 0.001),而其他参数无显著差异(P > 0.05)(表1)。
miR-3619-5p 的表达及其临床意义
RT-qPCR 分析显示,2 型糖尿病(T2DM)患者血清中 miR-3619-5p 的表达水平显著降低(P < 0.001;图 1A)。ROC 曲线分析表明,miR-3619-5p 用于诊断 T2DM 的 AUC 为 0.871(95% CI:0.820–0.922)(图 1B)。此外,对 102 例 T2DM 患者进行的 Pearson 相关性分析结果显示,miR-3619-5p 的表达水平与空腹血糖(FBG)(图 1C)和糖化血红蛋白(HbA1c)(图 1D)呈显著负相关。
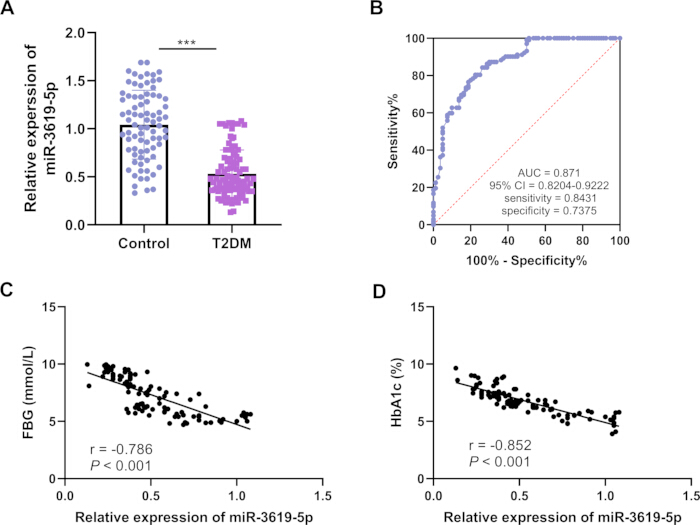
图1:miR-3619-5p的表达及其临床意义。(A)T2DM患者血清中miR-3619-5p表达的RT-qPCR分析。(B)利用miR-3619-5p诊断T2DM的ROC曲线。(C)miR-3619-5p相对表达水平与空腹血糖(FBG)之间的Pearson相关性分析。(D)miR-3619-5p相对表达水平与HbA1c之间的Pearson相关性分析。误差线表示标准差(SD);对照组,n = 80;T2DM组,n = 102。***P < 0.001 请点击此处查看该图的放大版本。
miR-3619-5p 对胰岛 β 细胞功能的影响
我们对经高糖(HG)处理的INS-1胰岛β细胞进行了细胞功能检测,以模拟2型糖尿病(T2DM)的进展过程。结果显示,高糖处理后miR-3619-5p的表达水平显著降低(P < 0.001),而转染miR-3619-5p模拟物可显著上调其表达水平(P < 0.01;图2A)。在细胞增殖与凋亡方面,高糖处理显著抑制细胞增殖并促进细胞凋亡(P < 0.001),而miR-3619-5p模拟物在高糖处理条件下可促进细胞增殖并抑制细胞凋亡(P < 0.01;图2B、C)。ELISA结果显示,高糖处理后胰岛素分泌显著减少(P < 0.001),而miR-3619-5p模拟物可增加高糖处理后的胰岛素分泌(P < 0.01;图2D)。
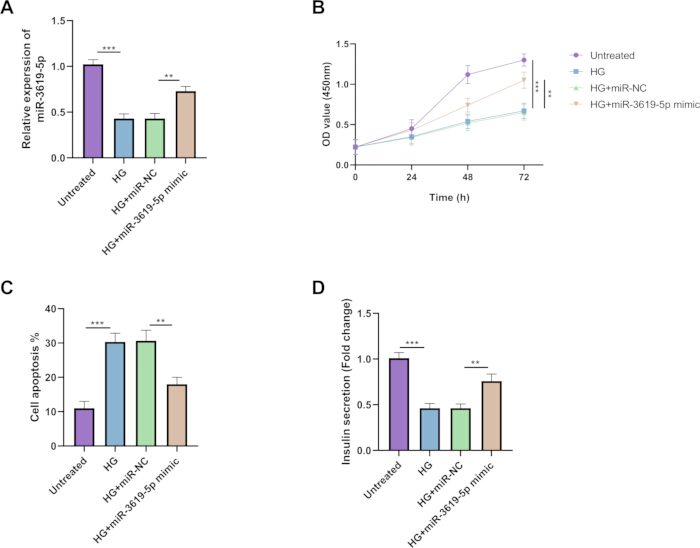
图2:miR-3619-5p 对胰岛β细胞功能的影响。 使用高糖(HG)处理 INS-1 胰岛β细胞,以模拟 2 型糖尿病(T2DM)的进展过程。(A) 采用 RT-qPCR 检测细胞中 miR-3619-5p 的表达水平。(B) 使用 CCK-8 法评估细胞增殖能力。(C) 采用流式细胞术评估细胞凋亡情况。(D) 采用 ELISA 检测胰岛素分泌水平(以总细胞内胰岛素含量归一化)。误差线表示标准差(SD),n = 3。***P < 0.001;**P < 0.01 请点击此处查看该图的放大版本。
miR-3619-5p 靶基因的验证
生物信息学预测在四个数据库中总共发现174个靶基因(图3A),MTA3结合位点具有高度保守性(Context++评分:-0.31;Context++评分百分位数:98)。鉴定出miR-3619-5p与MTA3的3'-非翻译区(3'-UTR)之间存在互补结合位点(图3B)。双荧光素酶报告基因(DLR)结果显示,与对照组相比,miR-3619-5p模拟物组中MTA3野生型(WT)的相对荧光素酶活性显著升高,表明miR-3619-5p能够与MTA3结合(图3C)。
T2DM 患者血清中 MTA3 的表达显著降低(图 3D);在高糖处理的 INS-1 细胞中,MTA3 的表达也显著下调,而 miR-3619-5p 模拟物可上调 MTA3 的表达(图 3E)。Western 印迹结果显示,miR-3619-5p 模拟物可上调 MTA3 蛋白水平,而 miR-3619-5p 抑制剂则显著下调其表达(补充图 1)。Pearson 相关性分析显示,在 102 例 T2DM 患者血清中,miR-3619-5p 与 MTA3 水平之间存在显著正相关关系(图 3F)。这些结果进一步验证了 miR-3619-5p 对 MTA3 的正向调控作用。
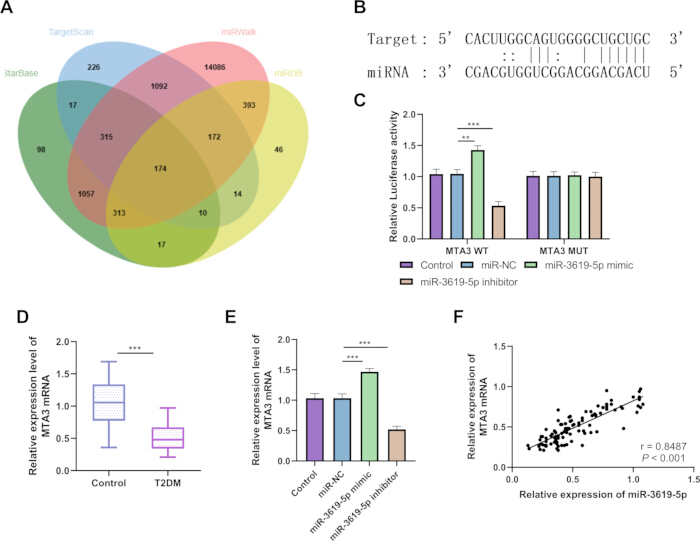
图3:miR-3619-5p 靶基因的验证。(A)在四个数据库(TargetScan、miRWalk、StarBase 和 miRDB)中鉴定出的 miR-3619-5p 共有靶基因。(B)miR-3619-5p 与 MTA3 基因 3’-非翻译区(3’-UTR)的结合位点。(C)双荧光素酶报告基因(DLR)检测(n = 3)。(D)T2DM 患者血清中 MTA3 表达的 RT-qPCR 分析(对照组,n = 80;T2DM 组,n = 102)。(E)细胞中 MTA3 表达的 RT-qPCR 分析(n = 3)。(F)T2DM 患者血清中 miR-3619-5p 与 MTA3 表达的 Pearson 相关性分析(对照组,n = 80;T2DM 组,n = 102)。误差线表示标准差(SD)。***P < 0.001;**P < 0.01 请点击此处查看该图的放大版本。
MTA3 对胰岛 β 细胞功能的影响
结果显示,在高糖处理后,si-MTA3 进一步降低了 MTA3 的表达水平,而与 miR-3619-5p 模拟物共转染则逆转了这一效应(图 4A)。si-MTA3 进一步抑制了高糖处理细胞的增殖,促进细胞凋亡,并加剧胰岛素分泌功能的损伤;而与 miR-3619-5p 模拟物共转染则逆转了由 si-MTA3 介导的上述细胞表型,恢复了细胞增殖能力,减少细胞凋亡,并缓解胰岛素分泌的抑制(图 4B–D)。
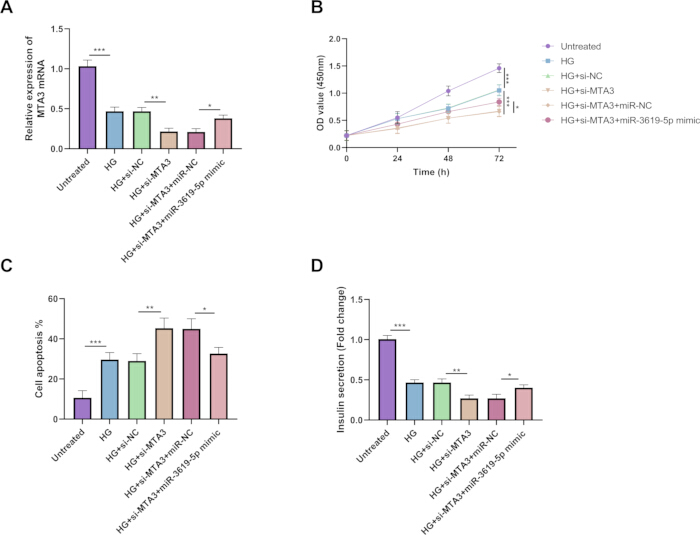
图4:MTA3对胰腺β细胞功能的影响。 将si-MTA3和miR-3619-5p模拟物转染入细胞,以进一步研究MTA3对胰腺β细胞功能的影响。(A) 通过RT-qPCR分析细胞中MTA3的表达水平。(B) 采用CCK-8法检测细胞增殖能力。(C) 通过流式细胞术测定细胞凋亡率。(D) 采用ELISA检测胰岛素分泌水平(以细胞内总胰岛素含量归一化)。误差线表示标准差(SD),n = 3。***P < 0.001;**P < 0.01;*P < 0.05 请点击此处查看该图的放大版本。
综上所述,临床样本结果表明,2型糖尿病(T2DM)患者血清中miR-3619-5p的表达显著下调,且miR-3619-5p与空腹血糖(FBG)和糖化血红蛋白(HbA1c)水平显著相关;基于细胞的实验证实,miR-3619-5p可特异性调控MTA3,从而影响INS-1大鼠胰岛β细胞的存活能力及胰岛素分泌功能。综合以上结果提示,miR-3619-5p参与了胰岛β细胞功能的调控,初步实现了本研究探讨miR-3619-5p在2型糖尿病中的作用及其潜在调控机制的研究目标。
数据可用性:
支持本研究结论的所有原始和处理后的数据集均已作为补充文件1上传。
| 指标 | 对照组 (n = 80) | T2DM组 (n = 102) | P值 |
| 年龄(岁) | 51.41 ± 9.70 | 52.29 ± 7.03 | 0.478 |
| 性别(男/女) | 43/37 | 54/48 | 0.914 |
| BMI (kg/m2) | 24.04 ± 3.10 | 24.81 ± 3.04 | 0.093 |
| TC (mmol/L) | 4.60 ± 0.64 | 4.78 ± 0.65 | 0.068 |
| TG (mmol/L) | 1.61 ± 0.18 | 1.67 ± 0.26 | 0.093 |
| HDL-C (mmol/L) | 1.43 ± 0.13 | 1.38 ± 0.18 | 0.085 |
| LDL-C (mmol/L) | 2.55 ± 0.29 | 2.63 ± 0.31 | 0.067 |
| FBG (mmol/L) | 4.96 ± 0.97 | 7.16 ± 1.64 | <0.001 |
| HbA1c (%) | 4.42 ± 0.49 | 6.77 ± 1.16 | <0.001 |
表1:受试者之间临床参数的比较。 T2DM,2型糖尿病;BMI,体重指数;TC,总胆固醇;TG,甘油三酯;HDL,高密度脂蛋白;LDL,低密度脂蛋白;FBG,空腹血糖;HbA1c,糖化血红蛋白。
补充表 1:本研究中使用的引物和试剂序列。请点击此处下载该文件。
补充图1:MTA3的蛋白表达。 MTA3蛋白水平的Western印迹分析。(A)MTA3蛋白水平。(B)MTA3的原始Western印迹图像。(C)GAPDH的原始Western印迹图像。误差线表示标准差(SD),n = 3。***P < 0.001;**P < 0.01请点击此处下载该文件。
补充文件 1:原始数据。请点击此处下载该文件。
讨论
2型糖尿病(T2DM)的核心病理特征是胰岛素抵抗和胰腺β细胞功能障碍,其中胰腺β细胞增殖能力下降及数量减少是导致胰岛素分泌异常的关键因素,也是疾病进展的主要驱动因素26。鉴定能够调控胰腺β细胞增殖并改善其功能的关键分子,对于2型糖尿病的精准诊断与治疗具有重要意义。
作为基因表达的关键调控分子,miRNA在胰腺β细胞的增殖、凋亡以及胰岛素分泌中发挥重要作用。大量miRNA与2型糖尿病(T2DM)的发病机制密切相关27,28,29。Song等研究发现,敲低miR-3619-5p可抑制结直肠癌中的细胞迁移30。其他研究发现,接受腹膜透析的糖尿病患者中miR-3619-5p表达下调31。然而,miR-3619-5p在T2DM中的作用及机制尚未见报道。本研究发现,T2DM患者血清中miR-3619-5p的表达水平显著低于健康对照组,与Costa等31的研究结果一致,提示miR-3619-5p表达降低可能与T2DM的发生和发展密切相关。相关性分析显示,miR-3619-5p的表达水平与空腹血糖(FBG)和糖化血红蛋白(HbA1c)呈负相关,表明miR-3619-5p表达越低,患者的血糖控制越差。这进一步证实miR-3619-5p可能参与T2DM的代谢紊乱过程,其表达水平可能反映疾病的严重程度;该结论与Chen等的研究一致,后者报道差异表达的RNA可能参与脂质代谢、胰岛素分泌及葡萄糖调节32。ROC曲线分析结果提示,miR-3619-5p可能作为T2DM诊断的生物标志物,弥补传统血糖指标在早期诊断中敏感性不足的问题。
胰岛β细胞增殖能力异常下降是2型糖尿病(T2DM)胰岛功能衰竭的核心环节;促进胰岛β细胞增殖并增加细胞数量,是改善胰岛素分泌功能的关键33,34。本研究通过细胞实验表明,miR-3619-5p显著促进INS-1细胞增殖并抑制其凋亡,从而增强胰岛素分泌。这提示miR-3619-5p可能通过促进胰岛β细胞增殖和抑制凋亡来改善胰岛素分泌功能,进而参与T2DM的发病机制。该机制与既往研究中报道的miRNA调控胰岛β细胞增殖的机制一致,例如miR-26a-5p和miR-765可通过调控靶基因表达来促进胰岛β细胞的增殖与分化35,36。
本研究利用生物信息学预测和双荧光素酶报告基因(DLR)检测证实,MTA3 是 miR-3619-5p 的靶基因。作为一种与转移相关的蛋白,MTA3 广泛参与细胞增殖、凋亡和代谢等关键生理过程20。研究发现,MTA3 参与调控高糖诱导的肝纤维化24。2 型糖尿病(T2DM)介导的 MTA3 抑制与睾丸中氧化应激水平升高相关37。在本研究中,高糖(HG)处理的细胞中 MTA3 表达下调。结合细胞增殖实验结果,推测 si-MTA3 可能通过抑制胰腺 β 细胞增殖而参与 T2DM 的发病机制,而 miR-3619-5p 可能通过调控 MTA3 的表达缓解这种抑制作用,从而改善胰腺 β 细胞功能。该机制的阐明进一步完善了 miRNA 调控胰腺 β 细胞增殖的分子网络,为 T2DM 发病机制的研究提供了新的视角。
本研究的结果具有潜在的临床和转化价值。血清miR-3619-5p可在外周静脉血中检测到;若在后续大规模队列研究中得到验证,其有望作为辅助性生物学标志物,协助临床医生识别存在胰岛β细胞功能障碍风险的个体,从而实现更早期的风险分层。miR-3619-5p可通过靶向调控MTA3通路,减轻高血糖对胰岛β细胞的损伤,维持β细胞存活及胰岛素分泌。这表明miR-3619-5p/MTA3轴可能成为糖尿病中胰岛保护的新靶点,为后续开发保护胰岛功能的核酸类药物或小分子抑制剂提供基础实验依据。
本研究存在若干局限性,需予以说明:首先,本研究为单中心研究,可能存在选择偏倚,且受试者之间的个体差异相对有限。未来的研究应扩大样本量并开展多中心研究,以验证miR‑3619‑5p的表达谱及其临床价值。其次,本研究仅在细胞水平验证了miR-3619-5p对胰岛β细胞增殖的调控作用,尚未通过动物实验进行进一步验证。未来研究应建立2型糖尿病(T2DM)动物模型,以深入探讨其在体内的作用机制。第三,microRNA(miRNA)通常具有多功能特性,miR-3619-5p也可能调控多种相关基因。同时,体外转染miRNA模拟物或抑制剂的系统可能存在脱靶效应;高剂量的人工干预可能非特异性地激活或抑制多条信号通路,难以完全模拟生理条件下的作用模式。未来研究需通过更全面的全转录组靶点筛选,以区分特异性靶向调控与脱靶效应引起的非特异性生物学效应。第四,本研究在体外高糖模型中采用了25 mM葡萄糖干预,但未设立甘露醇渗透压对照组,因此无法充分区分葡萄糖特异性代谢效应与渗透压应激所致的影响。未来实验应加入渗透压对照,以进一步阐明高糖水平对INS-1细胞的作用机制。最后,临床样本与体外细胞模型之间存在物种差异;尽管INS-1细胞是研究胰岛β细胞功能成熟性的经典体外模型,但在大鼠细胞中观察到的调控机制不能直接等同于人类体内的真实生物学过程。因此,在将本研究于体外细胞水平发现的miR-3619-5p/MTA3调控关系应用于临床时应保持谨慎。未来研究需采用人源胰岛β细胞模型或人原代胰岛组织,进一步验证该通路的物种保守性。
T2DM 患者的血清和胰岛 β 细胞中 miR-3619-5p 表达下调;通过靶向 MTA3,miR-3619-5p 可缓解高血糖诱导的胰岛 β 细胞功能障碍,促进胰岛 β 细胞增殖,抑制细胞凋亡,并改善胰岛素分泌。本研究表明,miR-3619-5p 可能有助于糖尿病风险的分层评估,而 miR-3619-5p/MTA3 轴可能是胰岛保护的潜在靶点。未来,我们将开展更大规模的队列研究以验证其临床价值,并利用糖尿病动物模型进行体内功能验证;同时,我们将深入分析介导胰岛功能变化的 MTA3 下游信号通路,并进一步评估该靶点在胰岛保护治疗中的转化潜力。
披露
作者没有相关财务或非财务利益需要披露。
致谢
本研究由糖尿病与尿路感染患者预防策略项目(编号:MSZ2025119)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Annexin V-FITC/PI 凋亡检测试剂盒 | Roche, Switzerland | 11684795910 | Annexin V-FITC(10 µL)和 PI(5 µL)染色;避光孵育 15 分钟 |
| 细胞计数试剂盒-8(CCK-8) | Dojindo, Japan | CK04 | 细胞活力比色法检测;每孔加入 10 µL,孵育 2 小时,测定 OD450 |
| D-葡萄糖 | Sigma-Aldrich | G7021 | 在培养基中添加至 25 mM,建立高糖诱导的细胞损伤模型 |
| 双荧光素酶报告基因检测系统 | Promega, USA | E1910 | 依次检测萤火虫荧光素酶和海肾荧光素酶活性 |
| 胎牛血清(FBS) | Gibco, USA | 10437028 | 终浓度补充至 10% |
| 流式细胞仪 | Beckman Coulter, USA | CytoFLEX | 用于计算细胞凋亡率的流式细胞术分析 |
| GAPDH 抗体 | Abcam, UK | ab181602 | Western blot |
| GAPDH 引物 | Sangon Biotech, China | Custom synthesis | mRNA 定量时作为内参基因用于标准化 |
| 山羊抗兔 IgG H&L(HRP) | Abcam, UK | ab6721 | Western blot |
| HEK293T 细胞系 | ATCC, USA | CRL-3216 | 人胚胎肾细胞;转染效率高,适用于荧光素酶检测 |
| INS-1 细胞系 | Sunncell, China | SNL-332 | 大鼠胰岛素瘤细胞系;在含 10% FBS 和 1% 青霉素-链霉素的 RPMI 1640 培养基中培养 |
| LightCycler 480 II 实时荧光定量 PCR 系统 | Roche, Switzerland | 5015278001 | 实时 PCR 扩增;支持 96 孔板或 384 孔板格式 |
| Lipofectamine 3000 | Invitrogen, USA | L3000001 | 基于脂质的转染试剂 |
| 酶标仪 | BioTek, Agilent | Synergy H1 | 吸光度测定;根据标准曲线插值计算样品浓度 |
| miR-3619-5p 抑制剂 | RiboBio, China | miR20017999-1-5 | 化学合成的单链 RNA,用于抑制 miR-3619-5p 功能 |
| miR-3619-5p 模拟物 | RiboBio, China | miR10017999-1-5 | 化学合成的双链 RNA,用于过表达 miR-3619-5p |
| miR-3619-5p 引物 | Sangon Biotech, China | Custom synthesis | 用于检测 miR-3619-5p 的特异性引物 |
| miR-NC(miRNA 空白对照) | RiboBio, China | miR2N0000001-1-5 | 非靶向阴性对照,用于 miRNA 模拟物/抑制剂实验 |
| miRNeasy Mini 试剂盒 | Qiagen, Germany | 217004 | 从细胞样本中提取总 RNA |
| miScript II RT 试剂盒 | Qiagen, Germany | 218160 | 用于 miRNA 的逆转录;采用 poly(A) 加尾和 oligo-dT 引物法 |
| miScript SYBR Green PCR 试剂盒 | Qiagen, Germany | 218073 | 基于 SYBR Green 的 miRNA 定量 PCR 检测 |
| MTA3 抗体 | Invitrogen, USA | PA5-100022 | Western blot |
| MTA3 引物 | Sangon Biotech, China | Custom synthesis | 用于检测 MTA3 mRNA 的特异性引物 |
| NanoDrop 2000 分光光度计 | Thermo Fisher Scientific, USA | ND-2000 | 评估 RNA 浓度和纯度 |
| 青霉素-链霉素 | Gibco, USA | 15140122 | 抗生素溶液,使用浓度为 1%,用于防止细菌污染 |
| pmirGLO 双荧光素酶 miRNA 靶标表达载体 | Promega, USA | E1330 | 用于验证 miRNA 靶标的双荧光素酶报告载体;包含萤火虫和海肾荧光素酶基因 |
| 含 gDNA Eraser 的 PrimeScript RT 试剂盒 | TaKaRa, Japan | RR047A | 逆转录反应中包含基因组 DNA 去除步骤 |
| 大鼠胰岛素 ELISA 试剂盒 | Invitrogen, USA | ERINS | 定量检测 INS-1 细胞分泌至培养基中的胰岛素 |
| RPMI 1640 培养基 | Gibco, USA | 11875093 | 基础培养基;添加 10% FBS 和 1% 青霉素-链霉素 |
| si-MTA3 | RiboBio, China | siB170209084646-1-5 | 靶向 MTA3 的小干扰 RNA,用于基因沉默 |
| si-NC(siRNA 空白对照) | RiboBio, China | siB06525141922-1-5 | 非靶向 siRNA 对照 |
| SYBR Green Master PCR Mix | TaKaRa, Japan | RR820A | 基于 SYBR Green 的定量 PCR 扩增 |
| TRIzol 试剂 | Invitrogen, USA | 15596026 | 从血清样本中提取总 RNA |
| U6 引物 | Sangon Biotech, China | Custom synthesis | miRNA 定量时作为内源性参照用于标准化 |
参考文献
- Wang L, et al. Associated factors and principal pathophysiological mechanisms of type 2 diabetes mellitus. Front Endocrinol (Lausanne). 2025;16:1499565.
- Wan Z, et al. The role of systemic inflammation in the association between serum 25-hydroxyvitamin D and type 2 diabetes mellitus. Clin Nutr. 2021;40(6):3661–7.
- Okamoto A, et al. Efficacy and safety of semaglutide in glycemic control, body weight management, lipid profiles and other biomarkers among obese type 2 diabetes patients initiated or switched to semaglutide from other GLP-1 receptor agonists. J Diabetes Metab Disord. 2021;20(2):2121–8.
- Aguayo-Mazzucato C, et al. β Cell Aging Markers Have Heterogeneous Distribution and Are Induced by Insulin Resistance. Cell Metab. 2017;25(4):898–910.e5.
- Goshrani A, Lin R, O'Neal D, Ekinci EI. Time in range-A new gold standard in type 2 diabetes research Diabetes Obes Metab. 2025;27(5):2342–62.
- Niu F, et al. β-cell neogenesis: A rising star to rescue diabetes mellitus. J Adv Res. 2024;62:71–89.
- Zhang Y, et al. THADA inhibition in mice protects against type 2 diabetes mellitus by improving pancreatic β-cell function and preserving β-cell mass. Nat Commun. 2023;14(1):1020.
- Ho PTB, Clark IM, Le LTT. MicroRNA-Based Diagnosis and Therapy. Int J Mol Sci. 2022;23(13).
- Poy MN, et al. A pancreatic islet-specific microRNA regulates insulin secretion. Nature. 2004;432(7014):226–30.
- Karagiannopoulos A, Cowan E, Eliasson L. miRNAs in the Beta Cell-Friends or Foes Endocrinology. 2023;164(5).
- Hu H, et al. Plasma miR-193b-3p Is Elevated in Type 2 Diabetes and Could Impair Glucose Metabolism. Front Endocrinol (Lausanne). 2022;13:814347.
- Benko J, et al. MiR-126 and miR-146a as markers of type 2 diabetes mellitus: a pilot study. Bratisl Lek Listy. 2023;124(7):527–33.
- Liu C, Gao Y, Wu J, Zou J. Exosomal miR-23a and miR-192, Potential Diagnostic Biomarkers for Type 2 Diabetes. Clin Lab. 2021;67(2).
- Liu Y, Li J, Wang S, Song H, Yu T. STAT4-mediated down-regulation of miR-3619-5p facilitates stomach adenocarcinoma by modulating TBC1D10B. Cancer Biol Ther. 2020;21(7):656–64.
- Ma J, et al. M2 macrophage facilitated angiogenesis in cutaneous squamous cell carcinoma via circ_TNFRSF21/miR-3619-5p/ROCK axis. Kaohsiung J Med Sci. 2022;38(8):761–71.
- Zhang M, Luo H, Hui L. MiR-3619-5p hampers proliferation and cisplatin resistance in cutaneous squamous-cell carcinoma via KPNA4. Biochem Biophys Res Commun. 2019;513(2):419–25.
- Ge L, Tan W, Li G, Gong N, Zhou L. Circ_0026134 promotes NSCLC progression by the miR-3619-5p/CHAF1B axis. Thorac Cancer. 2022;13(4):582–92.
- Sun Z, Li X, Shi Y, Yao Y. LncRNA PVT1 facilitates the growth and metastasis of colorectal cancer by sponging with miR-3619-5p to regulate TRIM29 expression. Cancer Rep (Hoboken). 2024;7(6):e2085.
- Wu C, et al. Long Noncoding RNA Plasmacytoma Variant Translocation 1 Regulates Cisplatin Resistance via miR-3619-5p/TBL1XR1 Axis in Gastric Cancer. Cancer Biother Radiopharm. 2020;35(10):741–52.
- Tang Y, et al. Mechanisms of MTA3 in cancer and related diseases and its clinical applications. Front Oncol. 2025;15:1731799.
- Lau P, et al. Sphingosine kinase 1 promotes tumor immune evasion by regulating the MTA3-PD-L1 axis. Cell Mol Immunol. 2022;19(10):1153–67.
- Du L, et al. MTA3 Represses Cancer Stemness by Targeting the SOX2OT/SOX2 Axis. iScience. 2019;22:353–68.
- Liu Y, et al. Discovery of Jaspamycin from marine-derived natural product based on MTA3 to inhibit hepatocellular carcinoma progression. Sci Rep. 2024;14(1):25294.
- Li Q, et al. High glucose promotes hepatic fibrosis via miR‑32/MTA3‑mediated epithelial‑to‑mesenchymal transition. Mol Med Rep. 2019;19(4):3190–200.
- Pu M, Kong L, Li J, Su L, Chen Y. LncRNA NBR2 affects pancreatic β-cell function in type 2 diabetes mellitus by targeting miR-646. Diabetol Metab Syndr. 2025;17(1):454.
- Galicia-Garcia U, et al. Pathophysiology of Type 2 Diabetes Mellitus. Int J Mol Sci. 2020;21(17).
- Wang J, et al. Extracellular vesicles mediate the communication of adipose tissue with brain and promote cognitive impairment associated with insulin resistance. Cell Metab. 2022;34(9):1264–79.e8.
- Rosado JA, Diez-Bello R, Salido GM, Jardin I. Fine-tuning of microRNAs in Type 2 Diabetes Mellitus. Curr Med Chem. 2019;26(22):4102–18.
- Taheri M, Eghtedarian R, Ghafouri-Fard S, Omrani MD. Non-coding RNAs and type 2 diabetes mellitus. Arch Physiol Biochem. 2023;129(2):526–35.
- Song B, et al. LINC00882 Plays a Tumor-promoter Role in Colorectal Cancer by Targeting miR-3619-5p to Up-regulate CTNNB1. Arch Med Res. 2022;53(1):29–36.
- Costa NA, et al. Peritoneal dialysis influences microRNA expression and pro-inflammatory response: results from a cross-sectional study. J Bras Nefrol. 2026;48(1):e20240218.
- Chen J, et al. Identification of the LncRNA PRNCR1/miR-642a-5p/SSTR3 CeRNA network and its diagnostic value in type 2 diabetes mellitus. Diabetol Metab Syndr. 2025;18(1):39.
- Elizabeth MM, et al. Pancreatic β-Cells and Type 2 Diabetes Development. Curr Diabetes Rev. 2017;13(2):108–21.
- Kerper N, Ashe S, Hebrok M. Pancreatic β-Cell Development and Regeneration. Cold Spring Harb Perspect Biol. 2022;14(5).
- Yang F, Zhao S, Zhang X, Ding S, Xu Y. RNF6 Targeted by miR-26a-5p Protects Pancreatic β-Cell Function Against Type 2 Diabetes. Diabetes Metab Syndr Obes. 2022;15:93–102.
- Zheng L, et al. miR-765 targeting PDX1 impairs pancreatic β-cell function to induce type 2 diabetes. Arch Physiol Biochem. 2023;129(6):1279–88.
- Liu F, et al. T2DM-elicited oxidative stress represses MTA3 expression in mouse Leydig cells. Reproduction. 2022;163(5):267–80.