本研究结合配对的人体组织、两种肺鳞状细胞癌细胞系、RNA和蛋白质稳定性检测、基因挽救实验以及FOXD1敲低异种移植模型,探讨METTL3相关的FOXD1调控机制,并为研究转录后致癌机制提供可重复的实验框架。
研究文章
METTL3 相关的 FOXD1 调控促进肺鳞状细胞癌进展:一种多模型实验方法
* These authors contributed equally
本文内容
摘要
摘要
肺鳞状细胞癌(LUSC)的治疗选择有限,这促使研究人员探索支持肿瘤细胞生长的分子通路。采用基因表达谱交互分析(GEPIA)、定量反转录聚合酶链反应(qRT-PCR)、蛋白质印迹法(western blotting)和免疫组织化学方法,在配对组织和细胞系中评估叉头框D1(FOXD1)的表达水平。在LUSC细胞中敲低FOXD1或甲基转移酶样蛋白3(METTL3),并检测细胞活力、细胞凋亡、细胞迁移、全基因组N6-甲基腺苷(m6A)修饰水平、转录本稳定性及蛋白质稳定性。构建FOXD1敲低的异种移植模型以验证其功能 体内 FOXD1 的作用;未对动物体内的 METTL3 进行干预。
FOXD1在肺鳞状细胞癌组织和细胞中的表达高于相应对照组。FOXD1敲低可降低细胞活力和迁移能力,增加细胞凋亡,并抑制异种移植瘤的生长。METTL3的表达水平与配对的肺鳞状细胞癌组织中FOXD1的表达呈正相关。在培养的细胞中,METTL3敲低降低了整体m6A修饰水平和FOXD1的表达量,而重新表达FOXD1可部分挽救相关表型。放线菌素D、环己酰亚胺和MG132实验结果表明,METTL3影响FOXD1的RNA和蛋白质稳定性。
这些数据支持METTL3与FOXD1在LUSC细胞中存在功能关联。体内实验中,FOXD1敲低抑制了异种移植瘤的生长,并减少了Ki-67染色,表明FOXD1是异种移植瘤生长的促进因子。METTL3与FOXD1的直接结合、位点特异性的m6A修饰、阅读蛋白的依赖性,以及METTL3–FOXD1通路在体内的完整验证仍有待确立。
引言
肺癌仍然是全球癌症死亡的主要原因1,2。肺鳞状细胞癌(LUSC)是非小细胞肺癌(NSCLC)的一种主要组织学亚型,常在治愈性局部治疗已不可行时才被发现3,4。尽管全身治疗已有所改善,但许多患者预后仍然不佳5。因此,明确维持LUSC生长的分子机制可能揭示可验证的生物标志物和治疗假设。
叉头框D1(FOXD1)是一种转录因子,与结直肠癌、头颈部癌、胃癌、口腔鳞状细胞癌以及乳腺癌相关6,7,8,9,10。在非小细胞肺癌(NSCLC)中,FOXD1的表达与不良预后以及实验性细胞生长和转移相关11,12。microRNA-30a-5p亦可通过靶向FOXD1抑制肺鳞状细胞癌(LUSC)细胞的增殖和迁移13。这些发现表明FOXD1可能是LUSC的一个潜在调控因子,但尚不清楚其在该疾病中表达维持的机制。
N6-甲基腺苷(m6A)是一种可逆的RNA修饰,由“书写”、“擦除”和“阅读”蛋白分别负责其添加、去除和识别。该调控系统可影响RNA的加工、翻译及降解过程,其功能异常与恶性表型及治疗反应相关14,15,16,17。甲基转移酶样蛋白3(METTL3)是m6A“书写”复合物的催化组分;然而,仅凭METTL3与FOXD1之间的相关性,尚不足以证明存在直接甲基化作用或“阅读”蛋白介导的调控机制。
我们推测,METTL3 通过 m6A 相关的转录后调控机制维持 FOXD1 的表达,从而促进肺鳞状细胞癌(LUSC)的进展。本研究整合了配对的临床样本、两种肿瘤细胞系、功能缺失与功能回复实验、转录本和蛋白质稳定性分析,以及 FOXD1 敲低的异种移植模型,为探究 METTL3 与 FOXD1 之间的功能关系提供了实验框架,同时区分了二者之间的关联性与直接位点特异性甲基化作用。
方案
人体组织采集遵循《赫尔辛基宣言》进行,并经吉林大学第一医院伦理审查委员会批准(批准号:2022-339;2022年7月22日),所有参与者均签署了书面知情同意书。动物实验方案经吉林大学第一医院动物管理委员会批准(批准号:2022-0015;2022年1月25日),并按照机构规定的动物护理和使用指南进行。
研究对象
存档标本包括12例配对的原发性肺鳞状细胞癌(LUSC)组织及相应的癌旁非肿瘤组织,采集自2019年1月至2020年12月期间接受手术的患者。纳入研究的患者均经病理学确诊为原发性LUSC,无明确转移病史,且在入组前6个月内未接受过针对LUSC的治疗。病例通过随机数字表法选取,共包括7名男性和5名女性,年龄范围为30–65岁。所有参与者均签署了书面知情同意书。
细胞系
人支气管上皮 BEAS-2B 细胞(RRID: CVCL_0168)、肺鳞癌 SK-MES-1 细胞(RRID: CVCL_0630)和 NCI-H226 细胞(RRID: CVCL_1544)购自中国科学院细胞库。细胞在含 10% 胎牛血清和 1% 青霉素-链霉素的杜氏改良伊格尔培养基中培养,培养条件为 37 °C、5% CO2。商品化试剂的标识信息汇总于随附的材料表中。
小干扰RNA筛选与挽救实验
针对FOXD1或METTL3的三个独立的小干扰RNA在SK-MES-1和NCI-H226细胞中进行了筛选。转染后48小时,通过定量反转录PCR(qRT-PCR)和蛋白质印迹法检测基因敲低效果。由于FOXD1 siRNA-1在两种细胞系中均产生最显著的表达降低,因此被用于后续的FOXD1功能实验。后续的METTL3实验则使用筛选获得的si-METTL3试剂。存档记录未明确标识SmartPool,也未保留可明确匹配序列或供应商的标识符。在挽救实验中,细胞分别接受选定的si-METTL3试剂、FOXD1过表达载体,或两者同时处理;转染后48小时检测基因表达水平和细胞表型。
RNA 提取与定量逆转录 PCR
使用苯酚-胍盐试剂从组织或细胞中提取总RNA,并利用商业逆转录试剂盒进行逆转录。采用TB Green预混液在实时荧光定量PCR系统(RRID: SCR_018051)上进行qRT-PCR。引物序列见表1。相对表达量以甘油醛-3-磷酸脱氢酶(GAPDH)为内参进行标准化。反应体系配制及热循环程序均按照所列预混液的制造商说明书进行。
蛋白质印迹
使用含有蛋白酶抑制剂的放射免疫沉淀分析(RIPA)缓冲液裂解组织或细胞。将等量的蛋白质通过十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分离,并转移至聚偏二氟乙烯(PVDF)膜上。膜在4 °C下与抗FOXD1抗体(1:1,000)、抗METTL3抗体(1:1,000;RRID: AB_2142033)或抗GAPDH抗体(1:2,000;RRID: AB_10622025)孵育过夜,随后在室温下与辣根过氧化物酶标记的抗兔免疫球蛋白G孵育1小时。通过增强型化学发光法显影信号,以GAPDH作为上样对照。材料表列出了商用的一抗,并记录二抗为抗兔免疫球蛋白G检测抗体。
细胞活力与凋亡
进行细胞活力检测时,将对照组和转染的LUSC细胞以每孔2,000个细胞的密度接种于96孔板中。每隔12小时,每孔加入10 µL细胞计数试剂盒-8(CCK-8)试剂,将培养板在37 °C孵育1小时后,在450 nm波长下测定吸光度。进行细胞凋亡分析时,将每孔1 × 10⁵个细胞接种于6孔板中,并在转染后48小时进行分析。收集细胞后,按照Annexin V–异硫氰酸荧光素(FITC)/碘化丙啶(PI)检测试剂盒说明书操作,用100 µL结合缓冲液重悬细胞,在避光条件下室温孵育30分钟(每种试剂各加入5 µL),并在4小时内通过流式细胞术进行分析。
Transwell 迁移
将转染的LUSC细胞置于上层Transwell小室的无血清培养基中,下层小室中加入500 µL含10%胎牛血清的培养基。培养24 h后,用4%多聚甲醛固定迁移细胞,并用结晶紫染色10 min。用棉签擦除上层膜表面未迁移的细胞。在相同成像条件下用显微镜观察迁移细胞,并使用ImageJ(RRID: SCR_003070)进行定量分析。
m6A 甲基化修饰
采用比色法RNA甲基化检测试剂盒测定全局m6A丰度。RNA提取并经质量评估后,将200 ng RNA加入检测孔中。每孔加入50 µL捕获抗体,室温孵育60分钟。孔板洗涤三次后,加入50 µL检测抗体孵育30分钟,再洗涤四次,随后加入信号增强溶液孵育30分钟。在450 nm处测定吸光度。所有步骤均按照所列试剂盒说明书进行。
mRNA 稳定性检测
将LUSC细胞接种于6孔板中,并转染阴性对照小干扰RNA(si-NC)或靶向METTL3的小干扰RNA(si-METTL3)。转染48小时后,加入放线菌素D至终浓度5 µg/mL以抑制转录。分别在0 h、2 h、4 h和6 h收集细胞,提取总RNA,并通过qRT-PCR检测FOXD1转录本的丰度。
放线菌酮 (CHX) 和 MG132 检测
在每项抑制剂终点实验中,比较了未经处理的载体对照细胞、经抑制剂处理的载体对照细胞以及经抑制剂处理的METTL3过表达细胞。MG132使用浓度为10 µM,CHX为20 µM;处理12小时后收集裂解液用于蛋白质印迹分析。在CHX时间进程实验中,转染si-NC或si-METTL3的细胞经20 µM CHX处理,并在0小时、3小时、6小时和9小时收集样本。FOXD1蛋白丰度通过蛋白质印迹法测定。
体内 实验
将5周龄的裸胸BALB/c裸鼠分为阴性对照组和FOXD1敲低SK-MES-1组(每组8只小鼠)。每只小鼠皮下注射约8 × 106个细胞。移植后1周开始进行肿瘤监测;连续20天,每4天记录一次肿瘤大小。接种后第27天,在最后一次测量结束后,按照批准的机构方案对小鼠实施安乐死,并立即切除肿瘤,称重并拍照。用于移植的是稳定的FOXD1敲低及匹配的阴性对照SK-MES-1细胞群体。
免疫化学
切除的肿瘤组织经石蜡包埋后切成4–5 µm厚的切片。切片经脱蜡、水化后,于4 °C与一抗孵育过夜,随后在室温下与相应的二抗孵育30分钟。抗原阳性细胞通过二氨基联苯胺底物显色进行可视化。在异种移植瘤中评估FOXD1和Ki-67的表达,配对切片在同一染色批次中处理,并在相同的成像参数下进行图像采集。
统计学分析
分析使用 GraphPad Prism 8 版本(RRID: SCR_002798)和 R(RRID: SCR_001905)进行。两组之间的比较采用学生 t 检验,涉及两组以上的比较则采用方差分析。配对的人体组织分析使用了 12 对患者样本;体外实验结果汇总自三次独立的生物学重复实验;异种移植分析每组使用八只小鼠。技术重复不视为独立观察值。数据以均值 ± 标准差表示。双侧 P 值 < 0.05 被认为具有统计学显著性。
结果
人肺鳞状细胞癌组织中 FOXD1 表达升高
基因表达谱交互式分析(GEPIA)查询显示,肺鳞状细胞癌(LUSC)样本中的FOXD1转录本丰度高于正常肺组织样本,而肺腺癌的比较结果则无统计学意义(图1A)。对12对配对的LUSC及相邻非肿瘤组织进行分析,通过qRT-PCR和蛋白质印迹法均得到一致的变化趋势(图1B、C)。免疫组织化学染色也显示,肿瘤组织切片中的FOXD1信号强于配对的相邻组织(图1D)。
FOXD1 沉默可降低 LUSC 细胞的存活率和迁移能力,并促进细胞凋亡
FOXD1 转录本在 SK-MES-1 和 NCI-H226 细胞中的表达量高于 BEAS-2B 细胞(图 2A)。筛选了三种靶向 FOXD1 的小干扰 RNA;其中 siRNA-1 在 qRT-PCR 和蛋白质印迹检测中显示出最显著的敲低效果,因此被选用于后续实验(图 2B、C)。与阴性对照相比,FOXD1 沉默显著降低了两种肺鳞癌细胞系的 Cell Counting Kit-8 信号值(图 2D),增加了 Annexin V 阳性细胞比例(图 2E),并抑制了 Transwell 迁移能力(图 2F)。由于仅使用了一种选定的试剂进行后续实验,因此该功能实验结果尚不能排除脱靶效应的影响。
METTL3 表达水平与 LUSC 样本中的 FOXD1 相关
m6A 甲基化是一种在真核生物中广泛存在的动态可逆化学修饰,由甲基转移酶和去甲基化酶共同调控,并由 m6A 结合蛋白识别和处理18。在12例肺鳞状细胞癌(LUSC)组织中,整体 m6A 信号高于配对的相邻正常组织,且在两种 LUSC 细胞系中的信号也高于 BEAS-2B 细胞(图 3A)。编码 METTL3、METTL14、WTAP 和 RBM15 的转录本在配对的肿瘤样本中表达上调(图 3B)。在 GEPIA 数据集和12例肿瘤样本中,FOXD1 与 METTL3 表现出最显著的正相关性,而与 RBM15 的相关性较弱(图 3C、D)。Western blot 进一步显示肿瘤组织中 METTL3 蛋白水平更高(图 3E)。上述分析表明这些分子之间存在共变关系,而非直接调控关系。
METTL3 沉默改变 FOXD1 的表达水平及肺鳞癌细胞表型
通过qRT-PCR和蛋白质印迹法在SK-MES-1和NCI-H226细胞中筛选了三种靶向METTL3的小干扰RNA(图4A,B)。METTL3敲低降低了整体m6A信号(图4C)。FOXD1过表达增加了FOXD1水平,但未增加METTL3表达(图4D),四组挽救实验验证了METTL3敲低后FOXD1丰度降低,并可通过FOXD1表达质粒恢复其表达(图4E–F)。METTL3敲低降低了细胞活力和迁移能力,并促进细胞凋亡;而重新表达FOXD1部分逆转了这些变化(图4G–I)。因此,挽救实验结果表明,在培养的细胞中,FOXD1位于METTL3的下游发挥作用。
METTL3 的扰动与 FOXD1 RNA 及蛋白质的稳定性相关
越来越多的证据表明,m6A mRNA 修饰可调控 mRNA 生命周期的多个方面,包括 pre-mRNA 剪接、翻译、核质输出、降解以及剪接过程19,20。SRAMP 在 FOXD1 RNA 中鉴定了候选的 m6A 修饰位点,而 m6A2Target 数据库则预测 METTL3 是 H1299 细胞中与 FOXD1 相关的甲基化转移酶(“writer”)(图 5A、B)。这些数据库分析结果仅具有假设生成意义,尚不能证明 METTL3 在 LUSC 细胞中与 FOXD1 RNA 存在结合或位点特异性的甲基化修饰。在使用放线菌素 D 阻断转录后,METTL3 敲低组中 FOXD1 RNA 的下降速度较对照组细胞更快(图 5C)。在 MG132 处理条件下,METTL3 过表达细胞中的 FOXD1 蛋白水平高于载体对照组,但在 CHX 处理后未观察到该差异(图 5D、E)。CHX 时间进程实验显示,METTL3 敲低后 FOXD1 蛋白的降解速度加快(图 5F)。综上所述,这些实验结果与 METTL3 调控 FOXD1 RNA 和蛋白稳定性的作用一致,但并未确定具体的修饰腺苷位点,也未证实 METTL3 的直接结合或鉴定出识别该修饰的 m6A 阅读蛋白(“reader”)。
FOXD1 沉默抑制肺鳞状细胞癌异种移植瘤的生长
检测 FOXD1 功能 体内,将对照组和FOXD1敲低的SK-MES-1细胞皮下植入裸鼠体内(每组n = 8)。自移植后第1周开始,每4天测量肿瘤体积,持续20天,并在接种后第27天处死动物取瘤。剥离的肿瘤组织显示,FOXD1敲低组的肿瘤体积较小(图6A),其生长曲线的上升速度较慢(图6B),且最终体重较低(图6C)。FOXD1 和 Ki-67 染色在敲低肿瘤中也有所减少(图6D)。这些实验仅评估了FOXD1的敲低效果,未检测METTL3的抑制作用 在体.
综上所述,FOXD1 在肺鳞状细胞癌组织和细胞中高表达,并促进细胞增殖、迁移及异种移植瘤生长。METTL3 沉默可降低整体 m6A 水平,减少 FOXD1 表达,并抑制恶性细胞表型;而重新表达 FOXD1 可部分逆转这些效应。稳定性实验支持 METTL3 参与 FOXD1 的转录后调控,但尚未证实其对 FOXD1 存在直接的位点特异性甲基化修饰 体内 完整通路的挽救。研究设计总结如下 图7.
数据可用性:
本研究中分析的所有数据均已包含在文章及其图表中。支持报告结果的去标识化数值数据可根据合理要求向通讯作者获取,但需遵守机构治理和参与者保护要求。未使用任何模拟文件或自定义分析代码。
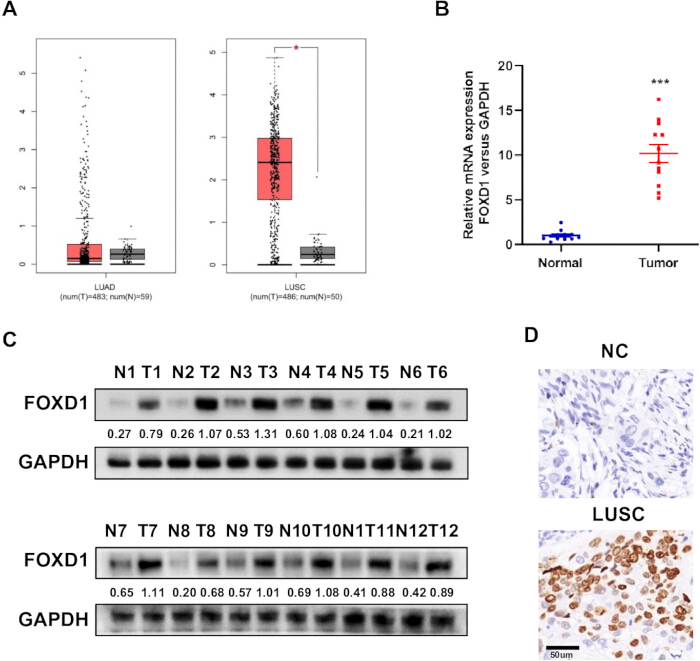
图1:人肺癌样本中 FOXD1 的表达. (A) GEPIA 对肺腺癌(LUAD)和肺鳞状细胞癌(LUSC)与正常肺组织样本中 FOXD1 转录本丰度的比较。B) 12 对肺鳞状细胞癌及相邻非肿瘤组织中 FOXD1 转录本的丰度。C) 相同配对组织中FOXD1蛋白的丰度。D代表性FOXD1免疫组织化学染色。人组织样本 n = 12 对; 体外-风格的技术重复不会改变患者层面的n值。D图中的比例尺 = 50 µm. ***P < 0.001. 请点击此处以查看此图的放大版本。
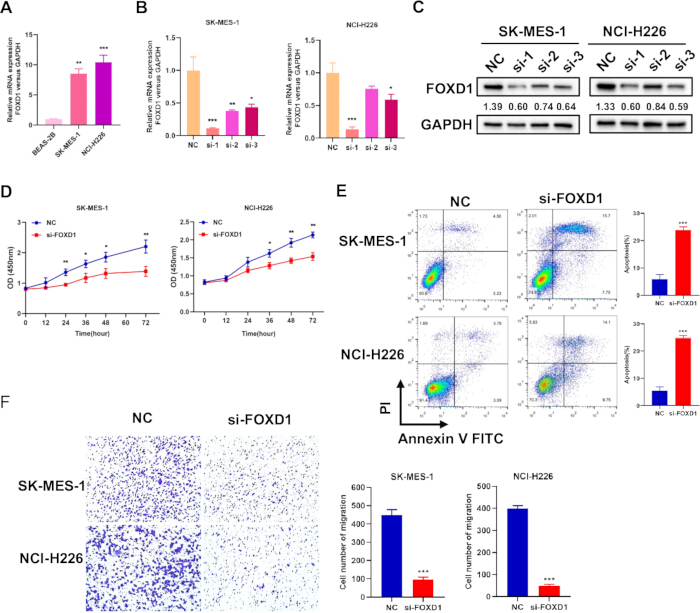
图2:FOXD1 沉默对 SK-MES-1 和 NCI-H226 细胞的影响。(A) BEAS-2B、SK-MES-1 和 NCI-H226 细胞中 FOXD1 转录本的丰度。(B) 转染后 48 小时,对三种靶向 FOXD1 的小干扰 RNA 进行 qRT-PCR 筛选。(C) 对相同的三种靶向 FOXD1 的小干扰 RNA 进行蛋白质印迹筛选。(D) FOXD1 沉默后的 CCK-8 细胞计数实验。(E) 转染后 48 小时进行 Annexin V–异硫氰酸荧光素/碘化丙啶细胞凋亡分析。(F) 转染细胞接种后 24 小时检测 Transwell 迁移能力;由于缺乏校准元数据,归档的视野图像未添加回溯性比例尺。所有实验均独立重复三次。*P < 0.05;**P < 0.01;***P < 0.001。请点击此处查看该图的高清版本。
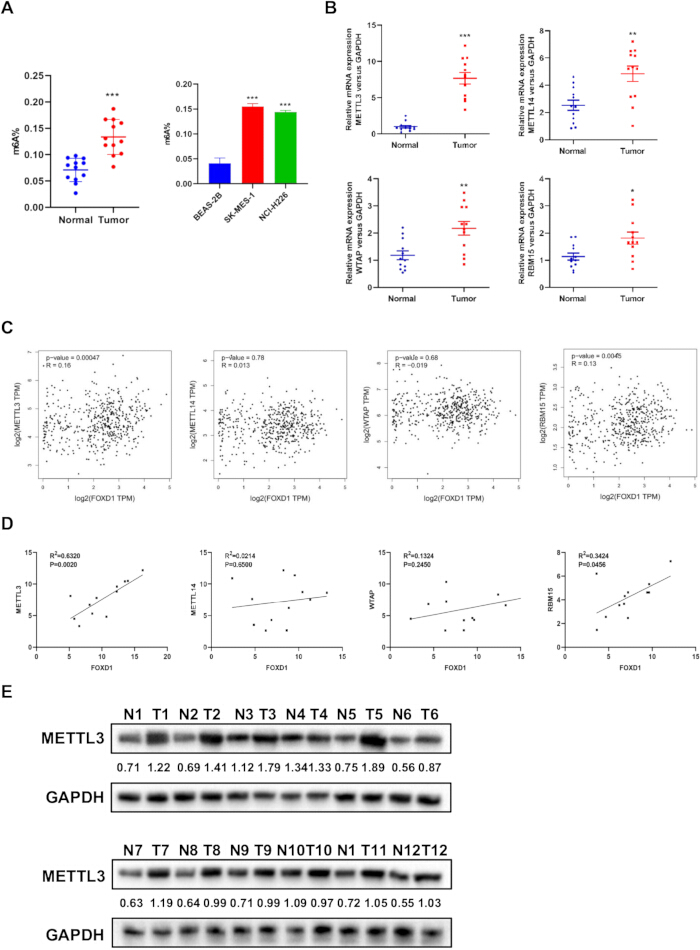
图3:整体N6-甲基腺苷修饰水平及METTL3与FOXD1之间的关联。(A)配对组织以及BEAS-2B、SK-MES-1和NCI-H226细胞中的整体m6A信号。(B)12对肺鳞状细胞癌(LUSC)组织及其相邻正常组织中METTL3、METTL14、WTAP和RBM15的转录水平。(C)GEPIA数据库中FOXD1与各m6A甲基转移酶“书写蛋白”的相关性分析。(D)12例LUSC肿瘤组织中FOXD1与各“书写蛋白”转录水平的相关性。(E)配对LUSC组织及其相邻正常组织中的METTL3蛋白表达水平。人组织样本n = 12对;细胞实验均代表三次独立的生物学重复实验。*P < 0.05;**P < 0.01;***P < 0.001。 请点击此处查看该图的放大版本。
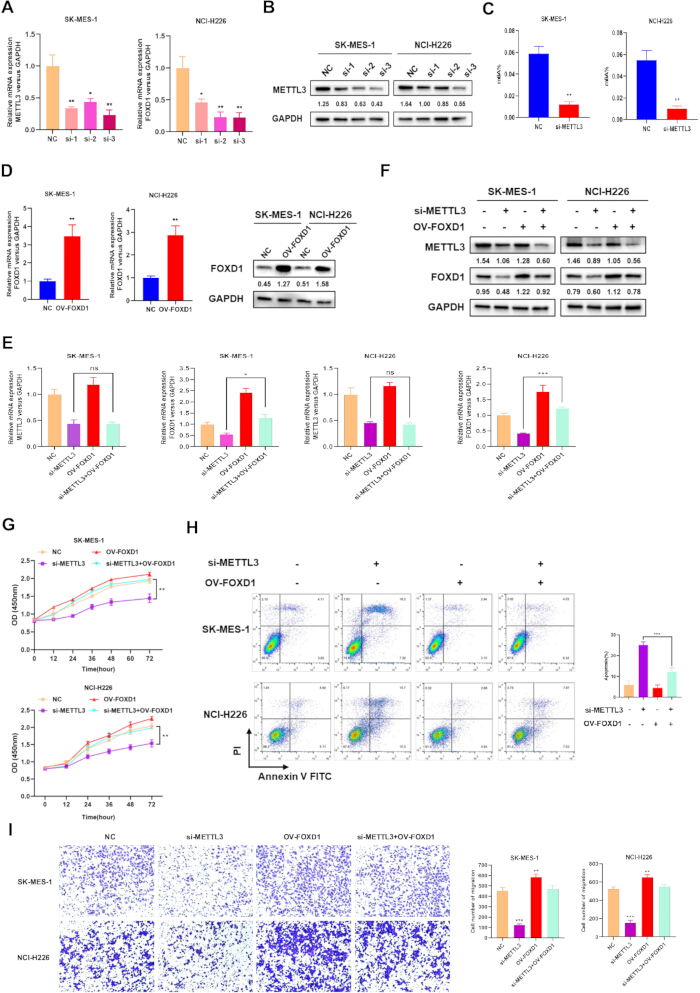
图4:METTL3 沉默、FOXD1 回补及肺鳞癌细胞表型。(A)转染后 48 小时,针对 METTL3 的三种小干扰 RNA 的 qRT-PCR 筛选结果。(B)相同三种 METTL3 靶向小干扰 RNA 的蛋白质印迹筛选结果。(C)METTL3 沉默后的整体 m6A 信号水平。(D)FOXD1 过表达后 FOXD1 转录本及蛋白表达水平。(E)通过 qRT-PCR 检测对照组、si-METTL3 组、ov-FOXD1 组以及联合干预 si-METTL3 + ov-FOXD1 组中 METTL3 与 FOXD1 转录本的表达水平。(F)通过蛋白质印迹法检测上述回补实验组中 METTL3 与 FOXD1 蛋白的表达水平。(G)CCK-8 细胞增殖实验。(H)流式细胞术检测细胞凋亡。(I)Transwell 迁移实验。所有实验均独立重复三次。蛋白质印迹条带下方的数值表示目标蛋白与 GAPDH 标准化后的比值。ns,无显著性差异;*P < 0.05;**P < 0.01;***P < 0.001。请点击此处查看该图的放大版本。
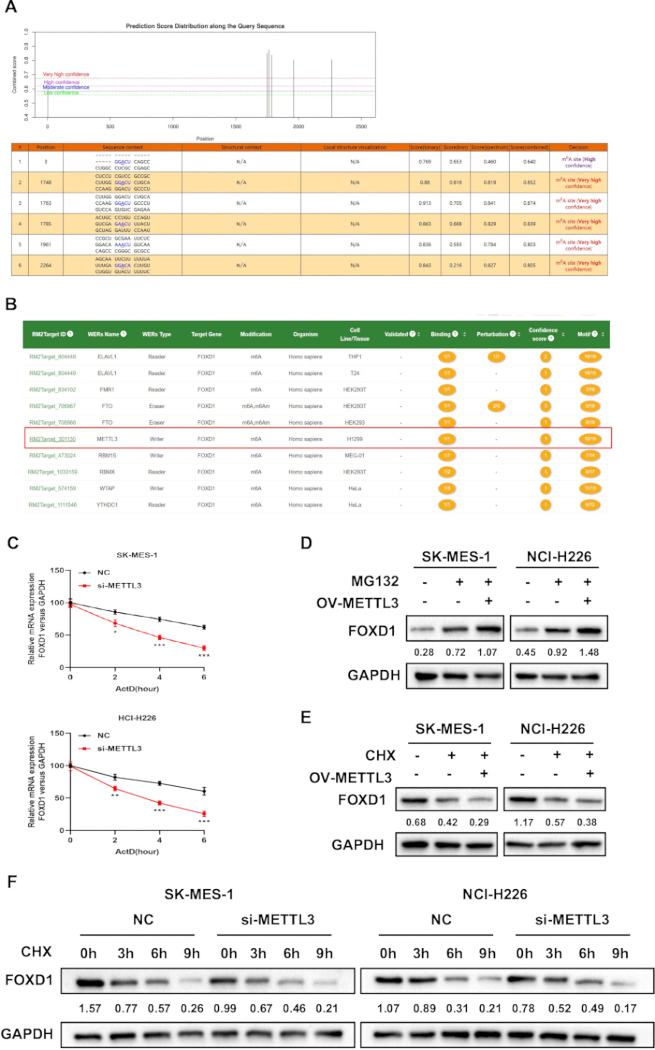
图5:METTL3 与 FOXD1 转录本及蛋白调控相关。(A)SRAMP 预测的 FOXD1 转录本中的 N6-甲基腺苷修饰位点。(B)m6A2Target 预测结果显示 METTL3 是与 FOXD1 相关的潜在甲基化“书写”蛋白。(C)在放线菌素 D 处理(5 µg/mL)后,阴性对照组和 METTL3 敲低细胞中 FOXD1 mRNA 的相对丰度,检测时间点为 0 h、2 h、4 h 和 6 h。(D)未处理的空载对照细胞、MG132 处理的空载对照细胞以及 MG132 处理的 METTL3 过表达细胞中 FOXD1 蛋白的丰度(10 µM MG132)。(E)未处理的空载对照细胞、CHX 处理的空载对照细胞以及 CHX 处理的 METTL3 过表达细胞中 FOXD1 蛋白的丰度(20 µM CHX)。(F)在 CHX 处理(20 µM)后 0 h、3 h、6 h 和 9 h,阴性对照组和 METTL3 敲低细胞中 FOXD1 蛋白的表达水平。GAPDH 作为上样对照。细胞实验均独立重复三次。所示蛋白印迹图为代表性结果;条带下方的数字表示归一化的 FOXD1/GAPDH 比值。*P < 0.05;**P < 0.01;***P < 0.001。 请点击此处查看该图的放大版本。
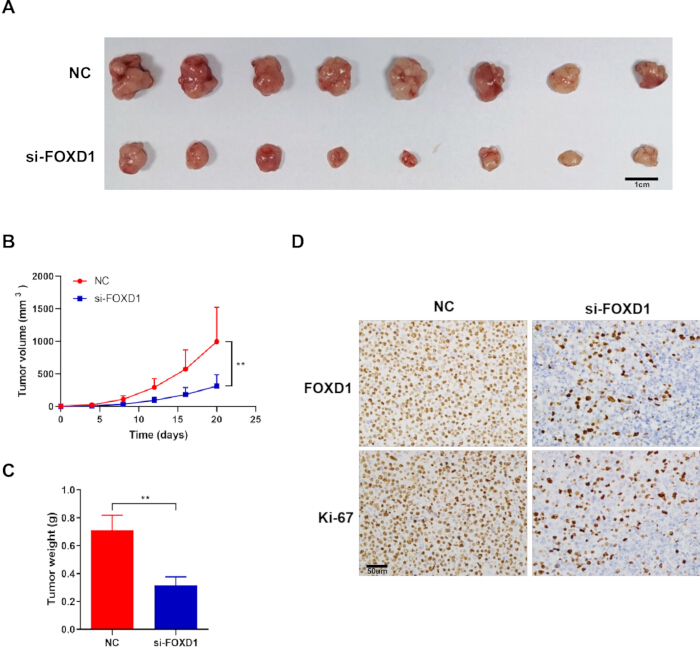
图6:FOXD1 沉默抑制 SK-MES-1 异种移植瘤的生长。(A)来自阴性对照组和 FOXD1 沉默组的剥离肿瘤;比例尺 = 1 cm。(B)自接种后1周开始,每4天测量一次肿瘤生长,持续20天,于接种后第27天收集样本。(C)收集时的肿瘤重量。(D)异种移植组织中代表性 FOXD1 和 Ki-67 免疫组织化学染色结果;比例尺 = 50 µm。每组 n = 8 只小鼠;**P < 0.01。请点击此处查看此图的放大版本。
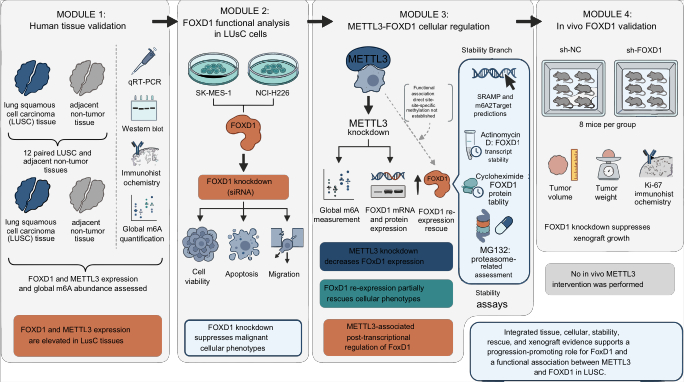
图7:整体研究设计与证据边界。采用配对的LUSC组织(n = 12对)和细胞系进行FOXD1、METTL3及全基因组m6A修饰谱分析;随后进行基因扰动与挽救实验,并开展细胞活力、凋亡、迁移和稳定性检测。构建FOXD1敲低的异种移植模型(每组n = 8只小鼠),持续监测20天。该示意图区分了基于细胞的METTL3证据与FOXD1特异性的体内证据,并指出了直接结合、位点特异性m6A修饰、阅读蛋白身份以及体内METTL3活性尚未得到验证。请点击此处查看该图的放大版本。
| 基因 | 方向 | 序列 (5′–3′) |
| FOXD1 | 正向 | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | 反向 | CGGAATCGGACGCAAGTCTT |
| GAPDH | 正向 | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | 反向 | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | 正向 | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | 反向 | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | 正向 | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | 反向 | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | 正向 | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | 反向 | CACTTAAAACACCGGCATTGG |
| WTAP | 正向 | GCAACAACAGCAGGAGTCTGCA |
| WTAP | 反向 | CTGCTGGACTTGCTTGAGGTAC |
表1:定量反转录聚合酶链式反应引物序列。序列以5′–3′方向表示。
讨论
本研究流程在配对组织、两种细胞系及异种移植模型中均支持FOXD1在肺鳞状细胞癌(LUSC)中的作用。FOXD1在肿瘤标本和LUSC细胞中表达较高,其表达下调可降低细胞活力和迁移能力,同时增加细胞凋亡。这些发现与已有报道一致,即FOXD1在多种癌症中与肿瘤生长、侵袭、治疗耐药性及不良预后相关10,11,12,13,21,22,23,24,25,26,27,28。此外,本研究通过将细胞表型与FOXD1敲低的异种移植实验相联系,进一步拓展了既往关于LUSC的研究结果。
成对组织和细胞分析进一步将FOXD1的丰度与METTL3及全局m6A水平关联起来。在12对肿瘤组织中,四个m6A“书写”基因的表达均升高,但METTL3与FOXD1表现出最强的正相关性。在培养的细胞中,METTL3的耗竭降低了全局m6A水平和FOXD1的丰度,而重新表达FOXD1可部分挽救细胞活力、凋亡和迁移表型。这些数据支持在所检测的细胞中存在METTL3-FOXD1功能关系,这与m6A调控对恶性表型的广泛影响一致29,30,31,32,33,34,35,36。
为确保可重复性,实验方案中有多个关键点需要注意。在进行功能实验之前,应先在每种细胞系中验证敲低效率,并通过挽救实验条件确认FOXD1的恢复,避免将构建体误读为METTL3过表达。放线菌素D、环己酰亚胺(CHX)和MG132处理必须严格按照方案中规定的浓度和取样时间进行。Transwell实验中应控制细胞密度、血清梯度以及成像视野的一致性。若研究者对工作流程进行调整,对于长期实验,可优先考虑使用稳定的短发夹RNA或基因组编辑技术。 体内 实验,但这些替代方法需要独立验证。
该研究存在若干局限性。人类队列包含12对配对样本,且未设计用于结局建模。仅选择了一条小干扰RNA用于功能实验,因此未实现对序列非依赖性脱靶效应的验证。Western blot结果的解读仅限于图中所示的归一化数值;未进行事后推断性检验。SRAMP和m6A2Target预测、全基因组m6A水平检测以及RNA稳定性实验均不能替代RNA免疫沉淀、甲基化RNA免疫沉淀、定点突变或阅读蛋白特异性挽救实验。未对METTL3进行干扰操作。 体内,因此异种移植数据无法支持一种 体内 METTL3 声称
未来的研究应验证METTL3的药理学抑制作用,绘制FOXD1相关的m6A位点及其直接结合图谱,鉴定相关的m6A阅读蛋白,并重复验证挽救策略 体内. 一个更大且独立标注的队列也将被需要,以评估临床结局。在当前研究范围内,该研究支持FOXD1作为功能性肺鳞状细胞癌调控因子,并提供了基于细胞的证据表明METTL3影响FOXD1的丰度;但并未确立完整的METTL3-m6A-阅读蛋白-FOXD1通路。
披露
作者声明不存在利益冲突。
作者 贡献:
D.A. 和 Q.D. 参与了数据收集和临床信息获取。K.W. 和 S.F. 进行了分子生物学实验和数据分析。L.G. 参与了研究设计和数据解读。H.Z. 进行了统计分析,并协助完成数据验证。Y.S. 开展了动物实验和免疫组织化学分析。Q.P. 参与了细胞迁移实验和实验资源提供。G.L. 构思并监督了本研究,同时起草了稿件。所有作者均审阅、修改并批准了最终稿件。
致谢
作者感谢 Zhe Tang 和 Yan Zhang 分别在定量聚合酶链式反应和蛋白质印迹实验中提供的技术支持,感谢 Yang Li 在细胞活力和细胞凋亡检测方面提供的帮助。本研究由西藏自治区自然科学基金(编号:XZ202001ZR0040G)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 7500 Fast 实时荧光定量 PCR 系统 | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| 放线菌素 D | Sigma-Aldrich | SBR00013 | RNA 稳定性检测,5 µg/mL |
| Annexin V-FITC/PI 凋亡检测试剂盒 | BD Biosciences | 556547 | 流式细胞术检测细胞凋亡 |
| 裸胸 BALB/c 裸鼠 | N/A | N/A | 皮下移植瘤模型 |
| BEAS-2B | 中国科学院细胞库 | https://www.cellosaurus.org/CVCL_0168 | 非肿瘤性支气管上皮细胞参考株;RRID: CVCL_0168 |
| 细胞计数试剂盒-8 | Beyotime | C0037 | 细胞活力检测 |
| 结晶紫 | N/A | N/A | Transwell 染色,10 分钟 |
| 环己酰亚胺 | MedChemExpress | HY-12320 | 蛋白质稳定性检测,20 µM |
| DAB 底物试剂盒 | N/A | N/A | 免疫组织化学显色 |
| 杜尔贝科改良伊格尔培养基 | Gibco | 11995065 | 细胞培养 |
| 增强型化学发光试剂 | Thermo Fisher Scientific | A38556 | Western blot 检测 |
| 胎牛血清 | Gibco | 10091148 | 细胞培养,10% |
| 流式细胞仪 | N/A | N/A | 细胞凋亡检测 |
| FOXD1 抗体 | Thermo Fisher Scientific | PA5-27142 | Western blot,1:1,000;免疫组织化学 |
| FOXD1 过表达载体 | N/A | N/A | FOXD1 功能回复实验 |
| GAPDH 抗体 | Cell Signaling Technology | 5174 | Western blot 上样对照,1:2,000(RRID: AB_10622025) |
| GEPIA | 北京大学 | http://gepia.cancer-pku.cn/ | 基因表达与相关性分析;RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Version 8 | 统计分析;RRID: SCR_002798 |
| 辣根过氧化物酶标记的抗兔免疫球蛋白 G | N/A | N/A | Western blot,室温孵育 1 小时 |
| ImageJ | 美国国立卫生研究院 | https://imagej.nih.gov/ij/ | 迁移图像定量分析;RRID: SCR_003070 |
| Ki-67 抗体 | N/A | N/A | 移植瘤免疫组织化学检测 |
| m6A2Target | 网络资源 | http://m6a2target.canceromics.org/ | m6A 调控因子-靶标关联预测 |
| METTL3 抗体 | Proteintech | 15073-1-AP | Western blot,1:1,000;RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | 蛋白酶体抑制实验,10 µM |
| N6-甲基腺苷比色法检测试剂盒 | Epigentek | P-9005-96 | 全基因组 m6A 水平检测 |
| NCI-H226 | 中国科学院细胞库 | https://www.cellosaurus.org/CVCL_1544 | 肺鳞癌细胞模型;RRID: CVCL_1544 |
| Olympus 显微镜 | Olympus | 型号未记录 | Transwell 成像 |
| 青霉素-链霉素 | Gibco | 10378016 | 细胞培养,1% |
| 聚偏二氟乙烯膜 | Merck | IPVH00010 | Western blot 转膜 |
| PrimeScript 反转录试剂盒 | Takara | RR037A | 互补 DNA 合成 |
| R 统计计算软件 | R 基金会 | https://www.r-project.org/ | 统计分析;RRID: SCR_001905 |
| 放射免疫沉淀分析裂解缓冲液 | Beyotime | P0013B | 蛋白质提取 |
| RNAiso Plus | Takara | 9108 | RNA 提取 |
| siRNA 试剂 | N/A | N/A | FOXD1 和 METTL3 基因敲低;选用 siRNA-1 |
| SK-MES-1 | 中国科学院细胞库 | https://www.cellosaurus.org/CVCL_0630 | 肺鳞癌细胞及移植瘤模型;RRID: CVCL_0630 |
| SRAMP | 网络资源 | http://www.cuilab.cn/sramp | 候选 FOXD1 m6A 位点预测 |
| TB Green PCR 主混合液 | Takara | RR820A | qRT-PCR |
| 转染试剂 | N/A | N/A | siRNA 与质粒递送 |
| Transwell 小室 | N/A | N/A | 细胞迁移实验 |
参考文献
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.