我们提出了一种结合摄取实验和药物干扰的三维受激发射损耗(3D STED)工作流程,用于在接近各向同性的超分辨率下对完整果蝇(Drosophila)翅成虫盘中的膜蛋白运输进行可视化观察。
本文内容
摘要
摘要
果蝇 黑腹果蝇 广泛用于研究保守的发育和细胞信号通路 体内许多信号通路(包括Wnt信号通路)依赖于严格调控的分泌、内吞以及细胞内运输过程。然而,由于上皮组织(如翅成虫盘)中的细胞体积微小且呈紧密排列的柱状结构,要在完整组织中观察膜相关蛋白的动态行为仍然具有挑战性。本文介绍了一种结合三维受激发射损耗(3D STED)纳米显微技术、摄取实验与药物干扰方法的实验方案 果蝇 翅成虫盘。该工作流程能够在完整组织结构中以接近各向同性的分辨率实现膜相关蛋白动态的超分辨率成像。以分泌Wingless的细胞为例,我们可视化了Wingless(Wg)在顶膜的定位与转运过程。为分析动态转运过程,该成像流程结合了一种摄取示踪实验,可选择性地标记在特定时间窗口内正在进行分泌和再内吞的蛋白质。结合化学抑制剂处理及三维受激发射损耗(3D STED)纳米显微镜成像,该方法可实现对膜转运动态的功能性分析。综上,该工作流程为在完整组织样本中以亚细胞分辨率研究膜结构组织与蛋白质转运提供了通用且灵活的框架。 果蝇.
引言
果蝇 黑腹果蝇 在发育生物学、进化、行为学以及包括癌症和其他人类疾病研究在内的生物医学研究中,是一种广泛使用的模式生物1,2许多基本的细胞信号通路在不同物种间高度保守 果蝇 以及脊椎动物,使该模式系统在研究保守的生物学机制方面具有重要价值 体内.
在本方案中, 果蝇 翅成虫盘被用作研究Wingless(Wg)/Wnt信号通路中膜相关动态的模型系统。许多发育信号通路依赖于信号分子的严格调控的分泌、膜定位、内吞作用以及细胞内运输3在翅成虫盘的背腹(DV)边界也存在类似情况,Wg 从产生细胞的顶端膜分泌,并通过与糖磷脂酰肌醇锚定蛋白聚糖(glypicans)的相互作用,被运输至邻近的接收细胞。4,5,6,7在受体细胞中,Wg 与 Frizzled 受体结合并激活下游 Wnt 信号通路。除了被转运至 DV 边界以外的 Wg 外,一部分 Wg 会被产生细胞重新内吞,并通过内体系统转运至不同的细胞内目的地8,9,10因此,位于DV边界处产生Wg的细胞为研究膜运输、分泌动态以及调控信号活性的细胞机制提供了极佳的模型。 体内.
然而,成虫盘上皮细胞高度柱状的结构使得成像具有挑战性,需要比传统共聚焦显微镜更高的、更各向同性的分辨率,才能分辨单个囊泡。为了克服这些限制,我们优化了完整 Drosophila 组织中用于超分辨率纳米显微成像的组织制备、染色和成像条件。具体而言,我们建立了一种三维受激发射损耗显微成像(3D STED)的工作流程,可实现沿上皮细胞顶-基底轴方向膜相关蛋白定位的正交可视化11,12。3D STED 特别适用于此类应用,因其相较于传统共聚焦显微镜具有更高的轴向分辨率,能够在组织密集区域中清晰呈现精细的亚细胞结构13,14。利用该方法,我们分析了翅成虫盘 DV 边界处分泌 Wg 的细胞的顶膜区域,检测到 Wg 与其他膜相关蛋白(如 Discs large 1 (Dlg1) 或 Evenness interrupted/Wntless (Evi/Wls))共同定位于顶膜。
为了进一步研究蛋白质转运动态,该成像流程与先前建立的摄取实验15相结合。该实验能够选择性地检测在特定时间窗口内经历分泌并随后被重新内吞的蛋白质,从而可视化通过质膜转运的一群动态蛋白质。为了拓展其应用范围,摄取实验与药理学干扰手段联合使用,以分析特定细胞过程如何影响膜转运动态。这些方法共同提供了一个强大的框架,可在高空间分辨率下于天然组织环境中研究蛋白质转运、分泌及信号传导机制。
此外,该方案可与多种染色方法兼容,包括标准的免疫荧光染色方案。引入荧光染料也是可行的,从而进一步扩展可观察的细胞结构和分子靶标的范围。在所有情况下,荧光染料的选择应确保其适用于STED纳米显微成像。尽管本方案主要针对双色(红色和远红)三维STED成像,但该工作流程可轻松适配其他荧光染料和不同的成像配置,从而提高其在多种实验应用中的灵活性。
该方案共同建立了一个多功能框架,可在完整样本中结合STED超分辨率纳米显微技术与功能扰动方法 果蝇 组织。该工作流程为未来在复杂组织环境中以亚细胞分辨率研究膜结构、蛋白质转运及信号动态提供了基础。
方案
1. 联合 离体 抑制剂处理与摄取实验
注意:有关所用化学品和材料的详细信息,请参见材料表。
- 培养基与溶液的配制
- 制备 SchM+ 培养基。
- 在 Schneider 昆虫培养基中加入 4% 胎牛血清(FBS),充分混匀。
注意:SchM+ 培养基应在实验当天新鲜配制。
- 在 Schneider 昆虫培养基中加入 4% 胎牛血清(FBS),充分混匀。
- 制备 1× PBS-T
- 加入 0.1% Triton X-100 至 1× 磷酸盐缓冲液(PBS)并充分混匀。
- 配制化合物溶液。
警告:以下许多化学化合物被认为具有细胞毒性,必须在通风橱内使用适当的设备进行操作,并妥善处理废弃物。- Dynasor2-24:根据制造商说明,将 Dynasor2-24(也称为 Dyngo-4a)溶于二甲基亚砜(DMSO)中,配制 10 mM 的储存液。用于处理时,将储存液用 SchM+ 稀释 1:1000 或 1:2000,以获得最终浓度 10 µM 或 5 µM分别。
- DMSO 对照:将 DMSO 用 SchM+ 培养基按 1:1000 比例稀释后使用 200 µL 作为每次实验的阴性对照。
- 准备用于摄取实验的酸性缓冲液。
- 配制 0.1 M 甘氨酸溶液于 dH₂O 中2O.
- 用37%盐酸(HCl)将pH值调节至3.5。
- 制备 SchM+ 培养基。
- 样本采集
- 保持果蝇培养于 25 °C 12小时光照/12小时黑暗循环。
- 使用镊子从试剂瓶中收集三龄幼虫(L3),并放入12孔玻璃染色板中,每孔加入SchM+培养基。
注意:每次实验重复均需准备足够的组织,以确保包含对照样本。 - 从幼虫后端切开并翻转。
- 将倒置的幼虫组织浸没在 SchM+ 中,尽可能彻底地去除肠道和脂肪体。
- 然后,将组织转移至含有 SchM+ 的 0.2 mL PCR 管中。
注意:每个聚合酶链式反应(PCR)管中仅放置6-7只倒置的幼虫,以确保组织完全浸没并可自由移动。
注意:应避免将组织过多填充入管中,以防染色过程中产生人为假象。请参考 材料表 有关本研究中所用化学品和材料的详细信息。
- 离体 抑制剂处理与摄取实验
- 从样品中移除 SchM+ 培养基。
- 根据需要加入先前配制的化合物溶液,例如, 200 µL 的 5 µM Dynasor2-24 溶液
警告:这些化学化合物具有细胞毒性,必须在通风橱中使用适当的设备进行操作,并妥善处理废弃物。 - 添加 200 µL 加入DMSO(1:1000)溶液作为对照样品,代表阴性对照。
- 对于摄取实验(Witte 等,2021)15),将一抗加入药物溶液中:检测Wg时使用抗-Wg抗体,按1:20稀释;检测绿色荧光蛋白(GFP)标记的蛋白时使用抗-GFP抗体,按1:40稀释。
- 在室温(RT)避光孵育样品 90 分钟。
注意:摄取实验为可选步骤,若无需使用,可从方案中直接省略。此外,可根据具体实验需求选用其他化学化合物。建议对化合物进行梯度稀释,以确定每种具体应用的最佳浓度。参考相关文献 材料表 有关本研究中所用化学品和材料的详细信息。
- 样品固定
- 孵育时间结束后,立即移除步骤1.3中的染色液。
- (可选)用……将样品冲洗两次 200 µL 的 SchM+。
- 为正确去除摄取实验中的一抗,请在室温下用酸性缓冲液孵育组织5分钟。
- 快速洗涤3次× 使用SchM+处理3分钟。
- 在室温下用含4%甲醛的SchM+溶液固定样品30分钟。
- 一抗孵育
注意:如果摄取实验中使用的抗体之外还需额外的一抗,应在此阶段加入,并按照标准的免疫组织化学染色程序进行处理。- 用4%正常山羊血清封闭组织× 在室温下,用 PBS-T 轻柔振荡孵育至少 30 分钟。
- 去除封闭液。
- 加入1份一抗溶液× PBS按所需浓度稀释(示例:抗wg抗体1:200,抗dlg1抗体1:50,抗GFP抗体1:200,或其他所需抗体)
- 在指定条件下孵育样品 4 °C 在温和振荡条件下过夜。
- (可选)在室温下轻柔振荡孵育一抗至少1.5小时。
- 注意:请参阅 材料清单 有关本研究中所用化学品和材料的详细信息。
- 二抗孵育
- 移除一抗溶液。
注意:使用一次抗体溶液于1× PBS 可在新鲜的 1.5 mL 反应管中储存并重复使用数次 4 °C. - 洗涤组织 3 次× 10 分钟内完成 1× 在 PBS-T 中轻轻振荡。
以1:200稀释比例加入所需的二抗× PBS-T 加 1:2000 Hoechst33342 进行细胞核复染。用于STED的二抗包括:鸡抗小鼠Alexa Fluor 594、 goat anti-rabbit Alexa Fluor 594、 goat anti-rabbit STAR635P 和 goat anti-mouse STAR635P。参考 材料表 有关本研究中所用化学品和材料的详细信息。 - 4 °C 避光孵育过夜 4 °C (可选:室温下轻柔振荡孵育至少1.5小时)。
- 第二天洗涤组织3次× 10 分钟内 1× 在轻柔振荡条件下使用 PBS-T。样品现已准备好进行 STED 成像封片。查看完整工作流程 图1.
注意:显微镜光学系统通常专为 23 °C 操作,除非需要其他条件。温度稳定性至关重要,因为温度波动会引起热漂移,并可能影响激光时序。稳定的室温应保持在20–23 °C (≤ ±±1 °C 建议进行波动分析16,其中21.5–22 °C 通常用于补偿显微镜产生的热量。所有显微镜组件应在成像前达到热平衡。载物台式培养箱可提供精确的样品温度控制,但封闭结构可能积聚热量并加剧漂移。主动冷却可提高稳定性。本研究中,使用自制培养箱(EMBL Heidelberg)将温度维持在21.5 ±± 0.05 °C,最大限度地减少热漂移,确保稳定的三维受激辐射损耗(3D STED)性能。
- 移除一抗溶液。
2. 三维受激发射损耗超分辨纳米显微成像的样品制备与成像
- 设备和材料准备:
- 设置显微镜。
- 确保使用适合实验的显微镜。本实验中使用的是 Leica Stellaris 8 STED Falcon 显微镜。
- 使用合适的物镜。本实验中使用的是 HC PL APO 86x/1.20 W motCORR STED white 物镜。
- 为确保成像正常,应在成像前至少 2 小时开启整个显微镜系统(参见步骤 1.6.4 后的注释)。
- 准备聚-L-赖氨酸包被的培养皿。
- 用 0.6% 聚-L-赖氨酸和 0.002% Photo Flo 溶于 dH2O 中配制溶液。分装后可长期保存于 -20 °C。解冻后置于 4 °C 保存,最多可重复使用 10 次。
- 向 µ-皿(∅35 mm)的 1.5H 玻璃盖玻片底部加入 200 µL 聚-L-赖氨酸溶液。
- 将培养皿倾斜竖直放置以晾干。
- 待聚-L-赖氨酸溶液完全干燥后,再重复包被一次。
- 在盖玻片底部两侧小心添加指甲油作为间隔物。
- 封片后,用 1.5H 圆形(∅12 mm)盖玻片覆盖样品(见图 2)。
- 设置显微镜。
- 3D STED 成像的封片设置
- 注:对于 3D STED 纳米显微成像(参见步骤 2.2.12 后的注释),必须匹配 STED 物镜与封片介质之间的折射率(本例中为水镜与 1× PBS 封片介质)。
- 将样品置于盛有 1× PBS 的小型培养皿中。
- 在先前制备的聚-L-赖氨酸包被的培养皿上滴加 15 µL 的 1× PBS 液滴。
- 解剖分离出幼虫组织中剩余的翅成虫盘,并将其放入 15 µL 的 1× PBS 液滴中。
- 确保翅成虫盘附着在包被的盖玻片上,而不是漂浮在液体中。
- 不要用力按压成虫盘;应让其尽可能轻柔地沉降到盖玻片上。为获得正确的方向,需确保翅成虫盘以周膜朝下的方式贴附于盖玻片。
- 封片后,用 1.5H 圆形(∅12 mm)盖玻片覆盖样品。
- 确保盖玻片边缘落在先前涂布的指甲油间隔物上,以避免样品被压碎。
- 用指甲油在所有边缘密封盖玻片,防止封片介质蒸发。
- 将培养皿避光保存,直至最终成像。
- 将样品提前至少 30 分钟放入显微镜的孵育室中,使其温度与显微镜孵育室温度一致。
- 为防止样品移动,使用压敏胶(如 Blu Tack)将培养皿固定在显微镜载物台上。
注:术语 2D STED 和 3D STED 描述的是分辨率增强的类型,而非指获取单张图像还是 z 轴层扫图像12,17。2D STED 仅提高横向(x,y)分辨率,通常可达 <50 nm,而轴向(z)分辨率仍与共聚焦显微镜相近(约 600 nm)。该模式相对稳健,通常可容忍样品与物镜浸没介质之间折射率匹配不理想的情况12。3D STED 则同时提升横向和轴向分辨率,尤其在 z 轴方向改善显著。通过优化荧光染料和 STED 耗尽条件,可在生物样品中实现接近各向同性的 ~100–120 nm 分辨率17,18。然而,3D STED 耗尽模式对球面像差极为敏感。因此,成功成像需要精确匹配折射率,并根据实际盖玻片厚度精细调节物镜的校正环。
- 纳米显微成像的要求与设置
- 按照制造商说明,开启所有必要的显微镜设备。
- 暂勿开启激光钥匙。
- 成像前至少 1.5 小时,将显微镜孵育室温度设定为 22–23 °C。
- 同时将样品放入显微镜孵育室,并使其适应温度至少 30 分钟。
- 开启计算机并打开 LAS X 软件(版本 4.9.0)。
- 在启动窗口中选择 STED 成像 并启动软件。
- 软件加载完成后,当两台激光器指示灯显示绿色时,打开其安全钥匙。
- 进入 采集 选项卡,并选择合适的 STED 物镜(HC PL APO 86x/1.20 W motCORR STED)。
- 进入 配置 选项卡,点击 激光器配置 按钮。
- 点击所有激光器滑块,将其设置为 开启 状态。
- 进入 配置 选项卡,点击 STED 按钮。
- 点击 对齐光束。
- 在开始成像 30 分钟和 2 小时后重复进行光束对齐,以确保最佳对齐状态;若发现分辨率下降或背景升高,应视需要再次重复对齐。
- 利用盖玻片表面的反射信号,调节物镜的校正环(电动)以匹配盖玻片厚度:
- 进入 采集 选项卡,开始设置 motCORR 值。
- 在 共聚焦 模式下为 GFP 荧光创建新通道,并对样品细胞进行聚焦。
- 点击 实时 按钮,将样品移动至无样品区域。
- 停止实时成像。
- 确保此通道仅使用 HyDS 探测器。
- 将 陷波滤光片 配置设为 反射 模式。
- 点击 方向 按钮,选择 xzy 方向。
- 如果样品显示不稳定或存在 z 轴移动,将快速实时成像速度降低至 100 Hz。
- 点击 快速实时 按钮,开始实时成像。
- 找到样品盖玻片的位置,其将显示为一条线。
- 调节 motCORR 值,使该线条信号尽可能锐利且狭窄
注:使用 1.5H 盖玻片时,该值通常在 48–56% 范围内。 - 现在开始在 采集 选项卡中选择用于成像的通道。
- 参见 表 1 获取 STED 模式下 Alexa Fluor 594 和 STAR635P 检测的设置参数。
- 成像
- 通过显微镜目镜选择成像区域。
- 小心旋转样品,使 DV 边界垂直对齐(图 2)。
- 关闭显微镜快门,切换至共聚焦成像模式,并通过计算机操作显微镜。
- 点击 快速实时 按钮,调整焦距,并检查 DV 边界的取向。
- 停止实时成像。
- (可选)在此阶段以共聚焦模式在 xyz 方向获取一张概览图像(将两个通道的 STED 激光设为 0%),供后续参考。获取概览图像后,重新开启 STED 激光。
- 选择 xzy 方向,并将出现的线条调整至正交成像所需的精确区域。
- 点击 快速实时 按钮,必要时调整焦距。
- 使用显微镜上的 z 轮调节样品的 x 位置。
- 确保两个通道的 STED 激光均已开启,且所有设置正确无误。
- 点击 开始实验。
- 每个像素的强度(探测器处于光子计数模式)应在 50 至 300 个检测光子之间;该值也取决于激光功率、像素驻留时间和扫描线累加次数。若具备荧光寿命成像模块(FLIM,Falcon),应确认每次激光脉冲检测到的光子数少于一个。
- 根据具体样品情况调整各项参数。
- STED 纳米显微成像中的挑战
- 为在 3D STED 中可视化特定形态区域,需在显微镜上旋转并调整样品方向,使组织在从 XY 视图切换至 XZ 视图前精确对齐所需轴线。通过使用可自由旋转的圆形培养皿进行封片,可实现此灵活性(图 2)。
- 在 xz 扫描过程中,样品沿 z 轴物理移动,最初由于垂直轴振荡导致培养皿在 xy 方向轻微移动。为防止培养皿移动,使用固定胶(Blu Tack)将培养皿固定在显微镜样品台上。这既允许自由旋转,又可防止沿垂直方向(z 轴)移动。
- 为防止封片介质蒸发和组织干燥,使用指甲油密封盖玻片。
- 为避免因样品与显微镜之间温度差异导致的样品漂移,应在成像前至少 30 分钟将样品放入显微镜孵育室,使其适应显微镜温度16。
- 关于二抗的选择,请遵循以下步骤:
- 多种荧光染料适用于 STED 成像,但仅有一部分在使用单一耗尽激光(本例中为 775 nm)时具备适合双色 STED 的理想光物理和光谱特性。应使用同一 STED 耗尽波长作用于两种荧光染料,以确保内在的色差对齐,避免因定义不同通道的耗尽模式不同而需进行色差校正。
- 常见的荧光染料组合包括 STAR RED/STAR635P、ATTO 647N/ATTO 643,分别与 Alexa Fluor 594、STAR 580 或 STAR ORANGE 搭配使用18,19。本实验采用广泛使用的 Alexa Fluor 594 与 STAR635P 组合。尽管它们的发射光谱部分重叠,但可通过为 Alexa Fluor 594 设置窄检测窗口并以逐线扫描模式采集,最大限度减少串扰(见 表 1)。由于这会降低 Alexa Fluor 594 的检测效率,建议将较强免疫染色信号分配至该通道。
结果
为了在翅成虫盘中建立适用于三维受激辐射损耗(STED)纳米显微成像的合适条件,我们首先对Wg以及顶端膜相关蛋白Dlp进行了标准的免疫荧光染色。Wg使用Alexa Fluor 594检测,而Dlp则用STAR635P标记,这两种荧光染料均适用于STED纳米显微成像(图3)。图像既在无STED耗尽条件下采集以获得共聚焦质量的图像,也在STED耗尽条件下按照步骤2.3中所述设置进行超分辨率成像(图3)。
对同一组织区域在共聚焦和STED条件下成像的xz截面进行直接比较,展示了3D STED纳米显微技术所提供的空间分辨率的显著提升(图3A–D′)。在共聚焦图像中呈现为拉长信号的结构(图3A、A′以及图3C、C′),在STED模式下被分辨为多个独立的点状结构(图3B、B′以及图3D、D′)。这一改进在Alexa Fluor 594和STAR635P通道中均能观察到,并被用于优化染色和成像参数,以在完整的翅盘组织中实现尽可能高的信号质量和各向同性分辨率。
接下来,我们将Wg摄取实验15与药物抑制相结合,以研究Wg在顶膜的转运及其通过网格蛋白依赖性内吞作用的再循环过程。我们使用了一种内源性标记的Wg::GFP果蝇品系20,可在保留与其他小鼠来源抗体兼容性的同时,利用抗GFP抗体检测细胞外的Wg::GFP。
翅成虫盘用Dynasore 2-24处理,该物质是一种靶向网格蛋白和动力蛋白依赖性内吞作用的动力蛋白抑制剂21,22,随后进行Wg摄取实验。使用抗GFP抗体标记细胞外Wg::GFP以监测其内化过程,同时利用抗Dlg1染色显示组织形态。Wg通过Alexa Fluor 594标记并在STED模式下成像,而Dlg1则用STAR635P标记(图4)。经DMSO处理的对照组圆盘在摄取实验过程中显示出Wg::GFP逐渐内化,内吞信号可检测到的深度约为 14 µm (图4A,A′)。本实验依据第1和第2节所述方案独立重复两次(图4B, C)。在第一次重复实验中,经处理后 5 µM Dynasore2-24 完全抑制了 Wg 的摄取(n = 4; 图4B,B′)。在第二次重复实验中,Wg 的内化减少但未完全消除(n = 4; 图 4C, C′),最大穿透深度降低至约 5 µm.
这种变异性在药理学抑制实验中较为常见,可能反映了抑制剂效能或处理时机的差异。抑制不完全、抑制剂在组织中的渗透有限、检测过程中内吞作用的恢复,或酸洗与固定步骤引入的延迟,均可能导致Wg残留的内化现象。尽管如此,两组实验均一致显示,与DMSO对照组相比,Wg的摄取量和渗透深度显著降低,表明内吞作用得到了有效抑制。这些结果也强调了在整个实验流程中精确控制时间对于获得可重复结果的重要性。
酸剥离后偶尔会观察到残留的膜相关信号,这可能代表已经进入早期胞吞小窝的Wg::GFP分子,因此无法被抗体清除23,24,25。
综上所述,这些实验表明,将Wg摄取实验与药物干扰及三维受激发射损耗(STED)纳米显微技术相结合,能够在完整的翅成虫盘组织中实现膜 trafficking 动态过程的可视化。同时,这些实验进一步确定了成功实施该方案的关键参数,包括合适的荧光染料与抗体组合、优化的抑制剂处理条件、摄取实验的严格时间控制,以及成像前样品的立即封片。
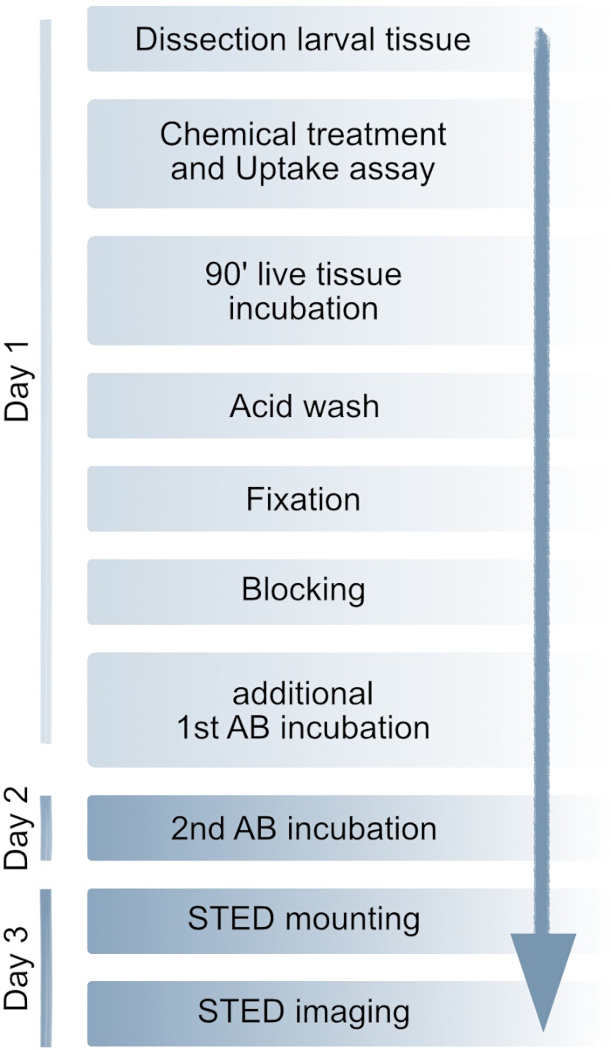
图1:实验方法流程图。完整方案可在3天内完成。可选择在同一天进行二抗孵育。详细操作步骤见“实验方案”部分。AB:抗体。 请点击此处查看此图的放大版本
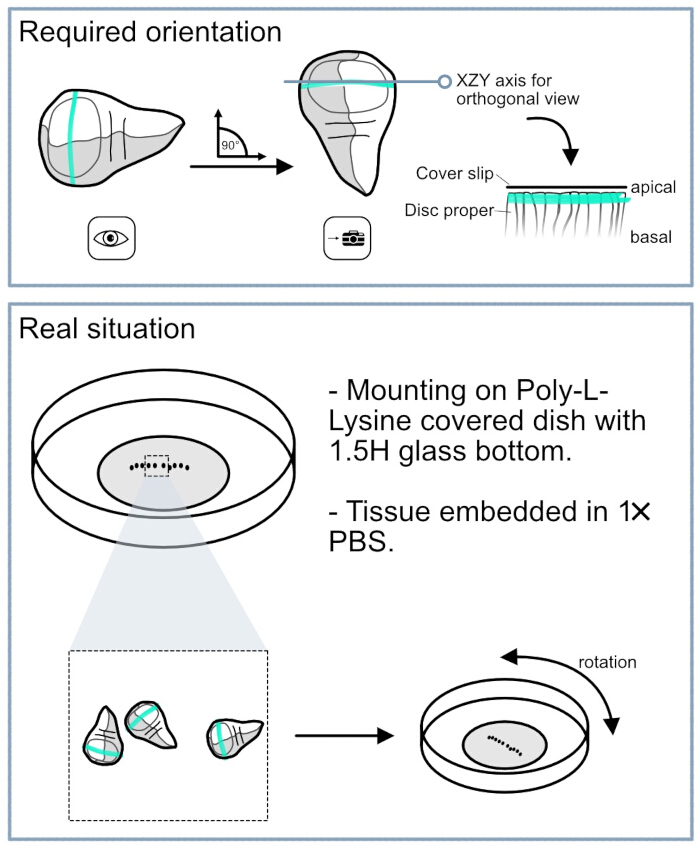
图2:装片过程中面临的挑战 果蝇 用于三维STED的翅盘 上方图示展示了翅成虫盘所需的方向定位。在分析Wg分泌细胞时,必须确保背腹(DV)边界在目镜视野中完全垂直排列。这种对齐方式可使相机视野旋转至正交平面,从而准确定位目标细胞群体。下方图示展示了成像过程中处理翅成虫盘的实际装置。翅成虫盘被置于底部带有1.5H玻璃盖玻片的圆形培养皿中。盖玻片表面涂有聚-L-赖氨酸,以促进组织附着。圆形培养皿的设计可在显微镜载物台上自由旋转,从而实现DV边界的精确垂直对齐,满足成像需求。 请点击此处查看此图的放大版本。
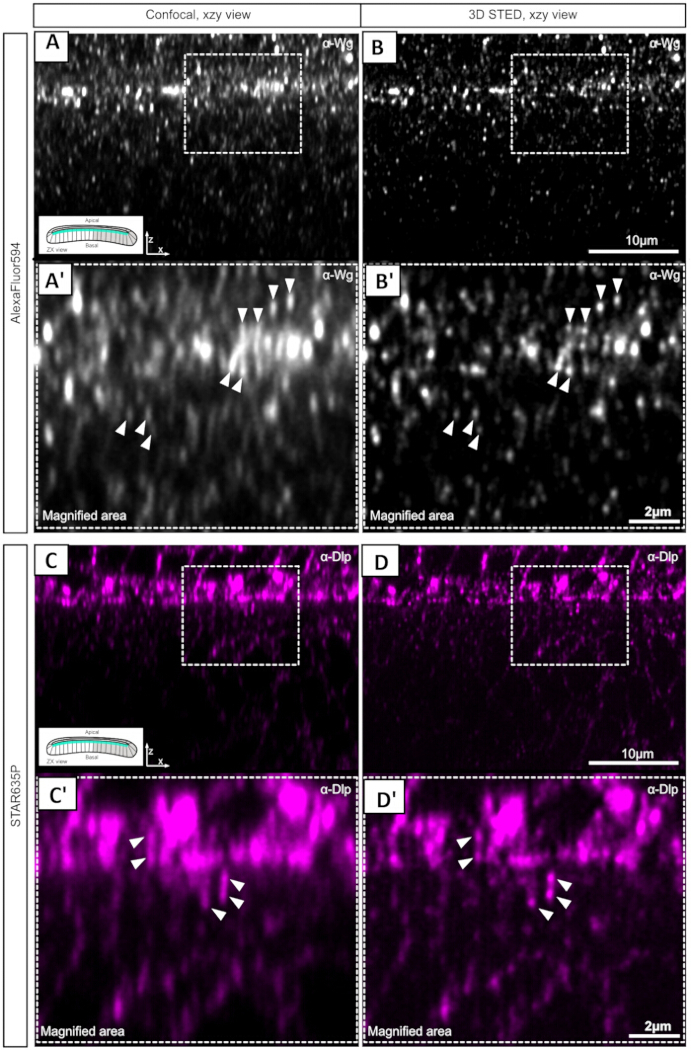
图3:共聚焦与三维STED成像在DV边界处的比较 果蝇 翅盘 (A) DV边界处Wg分泌细胞的共聚焦图像,显示为XZ平面。使用Alexa Fluor 594检测抗Wg染色。A’) 所示区域的放大视图,显示在顶膜区域出现拉长的信号(箭头)。B,B’) 通过三维STED纳米显微镜对同一区域进行成像。显示的是Alexa Fluor 594信号。与共聚焦成像相比,三维STED将拉长的信号解析为清晰的点状结构,并揭示出多个独立的信号(箭头所示)。C同一标本的STAR635P通道共聚焦图像 A 和 B例如,使用 STAR635P 标记的二抗检测 Dlp,以标记顶端膜。C’放大视图显示共聚焦图像中的拉长信号。D同一区域的3D STED图像 C. (D’) 放大视图显示,共聚焦显微镜下观察到的宽而细长的信号经三维受激辐射损耗(3D STED)成像被解析为清晰的点状结构。 请点击此处以查看此图的放大版本。
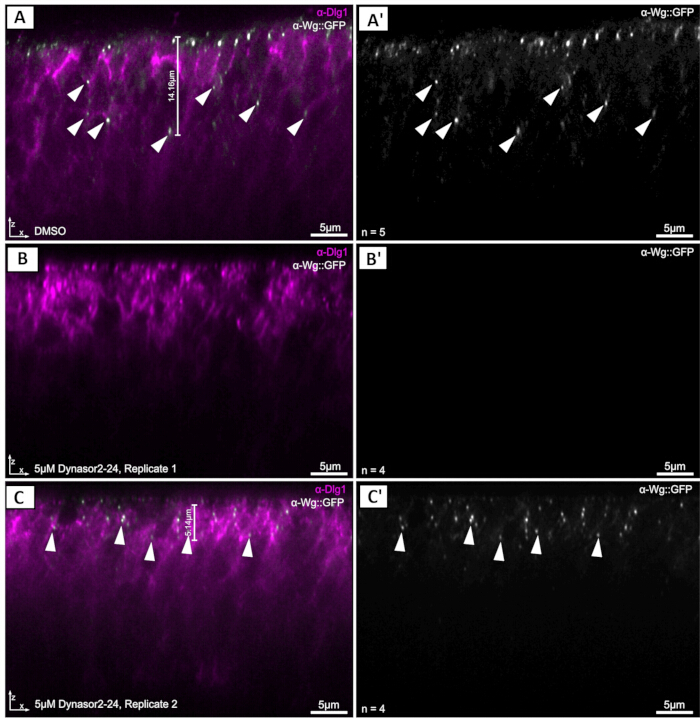
图4:通过三维受激辐射损耗显微镜(3D STED)在黑腹果蝇(Drosophila)翅成虫盘中结合化学抑制与Wg摄取实验的可视化结果。(A,A’)DMSO处理的对照组样本(n = 5)。细胞外Wg::GFP(灰色)被有效标记,细胞内摄取的Wg::GFP可在胞内检测到(箭头所示)。Dlg1(品红色)标记组织形态及成虫盘本体的顶端区域。 (B,B’)使用5 µM Dynasore2-24处理的重复实验1代表性样本,以抑制网格蛋白和动力蛋白依赖性内吞作用(n = 4)。在摄取实验后,Wg::GFP信号完全消失。 (C,C’)使用5 µM Dynasore2-24处理的重复实验2代表性样本(n = 4)。在顶端表面附近仍可检测到微弱的Wg::GFP信号(箭头所示),但细胞内信号仅局限于组织最表层约5 µm范围内,而DMSO对照组中该深度约为14 µm(测量标尺见A和C)。Dlg1(品红色)作为形态学参照。请点击此处查看该图的放大版本
| 设置 | Alexa Fluor 594 通道 | STAR635P 通道 |
| 目标 | 86x/1.2 HC PL APO CS2(水) | 86x/1.2 HC PL APO CS2(水) |
| 像素大小 | 37 nm × 37 nm | 37 nm × 37 nm |
| 缩放 | 1.2 | 1.2 |
| 检测窗口 | 3072 × 1536 像素 | 3072 × 1536 像素 |
| 线平均 | 1 | 1 |
| 线积累 | 16 | 16 |
| 扫描速度 | 100–200 | 100–200 |
| 针孔尺寸 | 70 μm | 70 μm |
| 激发激光线 | 580 nm | 638 nm |
| 激发激光线强度 | 4%–10%(取决于样本) | 8%–10%(取决于样本) |
| 检测器 | HyD X2,595–625 nm | HyD X4,650–740 nm |
| Tau门控激发激光 | 0.5–8 ns | 0.5–8 ns |
| 损耗激光线 | 775 nm | 775 nm |
| 耗尽激光功率 | 65-75%(取决于样本) | 65-75%(取决于样本) |
| 基于寿命的图像后处理(τ-受激发射损耗(STED) | τ-强度:10 | τ-强度:10 |
| τ- 背景抑制:主动 | τ- 背景抑制:主动 | |
| 平滑处理:0 | 平滑处理:0 |
表1:STELLARIS SP8显微镜上荧光染料的详细显微镜设置。 我们提供了所使用的Alexa Fluor 594和Star635P荧光染料的设置参数。
讨论
在完整组织内对膜运输和信号动态进行可视化仍面临技术挑战,尤其是在果蝇(Drosophila)翅成虫盘等高度极化的上皮细胞中。这些细胞狭窄的柱状形态限制了传统共聚焦显微镜所能获取的信息,特别是在分析蛋白质沿顶-基底轴定位时。在本方案中,我们通过结合三维受激发射损耗(3D STED)11,12 超分辨显微技术、基于抗体的摄取实验以及药理学干扰手段,克服了这些局限性。这些方法共同实现了在天然组织环境中以标准共聚焦成像无法达到的空间分辨率,对动态蛋白质运输事件进行可视化观察。
该实验流程的一个主要优势在于利用三维受激辐射损耗(STED)纳米显微镜对完整组织中的膜相关过程进行研究。共聚焦成像与STED成像的直接比较表明,共聚焦显微镜下观察到的拉长信号可通过三维STED成像被解析为离散的点状结构(图3),从而显著改善了对顶膜蛋白的可视化效果。这种分辨率的提升在分析分泌、内吞以及细胞内运输通路时尤为重要,因为在这些过程中,单个囊泡及膜相关蛋白复合物的精确定位至关重要。此外,获取正交切面图像的能力使得能够沿上皮细胞的顶-基底轴方向研究蛋白质的组织结构与运输情况。
将药理学干预与摄取实验相结合,进一步拓展了该方法的实验应用范围。摄取实验可选择性地标记在特定时间窗口内经历分泌并随后被重新内化的蛋白质,而药理学处理则能够干扰特定的转运通路。因此,这两种方法的结合可直接揭示细胞过程如何影响蛋白质转运动态。 体内如所示,在抑制网格蛋白依赖性内吞作用的条件下观察内化的Wg::GFP,会导致标记蛋白在顶膜处的内化信号消失和/或细胞内摄取信号减弱,说明该工作流程可用于在生理组织环境中研究转运机制。更广泛而言,该方法补充了经典的遗传学策略,并进一步增强了其应用价值 果蝇 作为信号通路机制研究的模型系统。
成功实施该方案需考虑多个关键因素。首先,一抗的选择至关重要,因为可靠的信号检测需要强效且特异性的标记。然而,针对内源性靶标的经验证抗体种类有限 果蝇 蛋白质仍然是一个主要限制因素。在本方案中,这 necessitated 使用一种内源性标记的 Wg::GFP 品系,因为许多常用 果蝇 抗体在小鼠体内产生,限制了多重免疫标记的应用。尽管荧光染料可作为标记细胞结构(如细胞膜、线粒体或其他细胞器)的替代方法,但大多数 commercially available 的染料均针对培养细胞优化,难以高效应用于完整组织 果蝇 组织。
此外,必须仔细评估二抗和荧光染料与STED纳米显微镜的兼容性,因为并非所有荧光染料在STED成像条件下都能提供足够的信号强度、光稳定性和耗尽效率19,26。本文展示的结果进一步强调了样品制备和组织处理的重要性。同样,药理学处理也必须仔细优化,因为过高的药物浓度可能破坏组织完整性,并产生掩盖生物学信号的成像伪影。准确的组织定位同样至关重要,因为必须精确定位背腹边界,才能获得正交视图并可重复地成像目标细胞群体(图2)。
可根据不同的实验需求引入多种改进措施:可通过调整摄取实验的持续时间,以在充分的蛋白质标记与组织完整性保护之间取得平衡。同样,抑制剂的浓度可能需要根据组织类型、发育阶段或所研究的信号通路进行滴定优化。本方案还可与多种染色方法兼容,包括标准免疫荧光、细胞外免疫荧光以及基于荧光染料的标记策略,前提是所选荧光染料适用于STED纳米显微成像。尽管当前方案侧重于双色成像,但引入额外的荧光染料和成像配置可进一步拓展其应用范围。
虽然本实验方案是使用 果蝇 翅芽成虫盘及Wg/Wnt信号通路作为模型系统,该方法的应用并不局限于上述体系。该工作流程可轻松拓展至其他 果蝇 组织,并可能适用于其他具有相似组织尺寸和光学特性的昆虫模型。更广泛而言,摄取实验、药理学干扰与三维受激发射损耗(3D STED)纳米显微技术的结合,为研究膜结构组织、蛋白质转运、分泌及信号传导动态提供了一个多功能的研究框架 体内这一能力不仅可能对发育信号通路的基础研究具有重要价值,而且对旨在理解与疾病相关的运输缺陷的生物医学研究也具有重要意义。该方法能够在完整组织内以亚细胞分辨率直接可视化动态蛋白质群体,为研究复杂生物系统中调控信号传导的细胞机制提供了一个强大的平台。
披露
作者声明无竞争利益。
致谢
M.B. 和 M.H. 由德国研究基金会合作研究中心 CRC/SFB1324(项目编号 331351713)关于 Wnt 信号传导机制与功能的研究提供支持。我们谨向德国癌症研究中心(DKFZ)光学显微镜核心设施(LMCF)致以感谢,感谢其提供的专业技术与支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.2 mL PCR 反应管 | Biozym | 711068 | |
| 1.5 mL 反应管 | Sarstedt | 72.706.700 | |
| 1.5H 玻璃盖玻片底部的 μ-Dish,35 mm | Ibidi | #81158 | |
| 1.5H 圆形(12 mm)盖玻片 | Marienfeld | none | |
| 12 孔玻璃染色板 | Marienfeld | CET6.20 | |
| 37% 甲醛 | Merck | F8775 | |
| 抗 dlg1 抗体 | DSHB | 4F3 | |
| 抗 dlp 抗体 | DSHB | 13G8 | |
| 抗 GFP 抗体 | Invitrogen | A11122 | |
| 抗小鼠 Alexa Fluor 594 | Invitrogen | A21201 | |
| 抗小鼠 STAR635P | Abberior | ST635P-1001 | |
| 抗兔 Alexa Fluor 594 | Invitrogen | A11012 | |
| 抗兔 STAR635P | Abberior | ST635P-1002 | |
| 抗 Wg 抗体 | DSHB | 4D4 | |
| 蓝丁胶(Blu Tack) | Bostik | 30811745 | 压敏型粘合剂 |
| DMSO | VWR | SIAL472301 | |
| Dumont 5 镊子 | Dumaont | No. 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| 胎牛血清(FBS) | Sigma-Aldrich | F7524 | |
| 甘氨酸 | Gerbu | 10.231.000 | |
| Leica Stellaris 8 STED Falcon 显微镜 | Leica Microsystems | N/A | |
| 指甲油 | essence | N/A | |
| 正常山羊血清 | Cell Signalling | 5425S | |
| 物镜:HC PL APO 86x/1.20 W motCORR STED 白光物镜 | Leica Microsystems | N/A | |
| PBS 片剂 | Life technologies | 18912014 | |
| Photo Flo | Kodak | N/A | |
| 聚-L-赖氨酸 | Sigma-Aldrich | P1524 | |
| Schneider's 昆虫培养基 | Sigma | S0146 | |
| 吐温-100(Triton-X100) | Sigma-Aldrich | T9284 |
参考文献
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.